Balancierende Selektion bezeichnet eine Reihe von Selektionsprozessen, durch die mehrere Allele (unterschiedliche Varianten eines Gens ) aktiv im Genpool einer Population erhalten werden , und zwar mit einer Häufigkeit, die über die durch Gendrift allein zu erwartende hinausgeht. Balancierende Selektion ist im Vergleich zur reinigenden Selektion selten. [ 1 ] Sie kann durch verschiedene Mechanismen auftreten, insbesondere wenn Heterozygote für die betreffenden Allele eine höhere Fitness aufweisen als Homozygote . [ 2 ] Auf diese Weise wird genetischer Polymorphismus erhalten. [ 3 ]
Hinweise auf balancierende Selektion finden sich in der Anzahl der Allele in einer Population, die oberhalb der Mutationsrate erhalten bleiben. Alle modernen Forschungsergebnisse zeigen, dass diese signifikante genetische Variation in panmiktischen Populationen allgegenwärtig ist.
Es gibt mehrere Mechanismen (die sich innerhalb einer Population nicht gegenseitig ausschließen), durch die balancierende Selektion den Polymorphismus aufrechterhält. Die beiden wichtigsten und am besten untersuchten sind der Heterozygotenvorteil und die frequenzabhängige Selektion.
Mechanismen
Heterozygotenvorteil
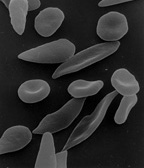

Bei der Heterozygoten-Vorteilsbildung oder heterotischen balancierenden Selektion besitzt ein Individuum, das an einem bestimmten Genlocus heterozygot ist , eine höhere Fitness als ein homozygotes Individuum. Polymorphismen, die durch diesen Mechanismus aufrechterhalten werden, sind balancierte Polymorphismen . [ 4 ] Aufgrund unerwartet hoher Heterozygotenfrequenzen und einer erhöhten Fitness heterozygoter Individuen wird die Heterozygoten-Vorteilsbildung in der Literatur teilweise auch als „Überdominanz“ bezeichnet.
Ein gut untersuchtes Beispiel ist die Sichelzellanämie beim Menschen, eine Erbkrankheit , die die roten Blutkörperchen schädigt . Sie entsteht durch die Vererbung eines Allels (HgbS) des Hämoglobin- Gens von beiden Elternteilen. Bei Betroffenen reagiert das Hämoglobin in den roten Blutkörperchen extrem empfindlich auf Sauerstoffmangel, was zu einer verkürzten Lebenserwartung führt. Wer das Sichelzellgen von einem Elternteil und ein normales Hämoglobin-Allel (HgbA) vom anderen erbt, hat eine normale Lebenserwartung. Diese heterozygoten Personen, sogenannte Träger des Sichelzellmerkmals , können jedoch gelegentlich gesundheitliche Probleme haben.
Der Heterozygote ist resistent gegen den Malariaerreger , der jährlich viele Menschenleben fordert. Dies ist ein Beispiel für balancierende Selektion zwischen der starken Selektion gegen homozygote Sichelzellanämie-Patienten und der Selektion gegen die Standard-HgbA-Homozygoten durch Malaria. Der Heterozygot hat überall dort, wo Malaria vorkommt, einen dauerhaften Vorteil (eine höhere Fitness). [ 5 ] [ 6 ] Die Erhaltung des HgbS-Allels durch positive Selektion wird durch deutliche Hinweise gestützt, dass Heterozygote in Regionen ohne Malaria eine geringere Fitness aufweisen. In Suriname beispielsweise wird das Allel im Genpool der Nachkommen afrikanischer Sklaven erhalten, da Suriname unter ganzjährigen Malariaausbrüchen leidet. Curaçao hingegen, wo ebenfalls eine bedeutende Bevölkerungsgruppe afrikanischer Sklaven lebt, kennt keine weitverbreitete Malaria und somit auch nicht den Selektionsdruck, das HgbS-Allel zu erhalten. Auf Curaçao ist die Häufigkeit des HgbS-Allels in den letzten 300 Jahren zurückgegangen und es wird aufgrund des Heterozygotennachteils schließlich aus dem Genpool verschwinden . [ 7 ]
Frequenzabhängige Selektion
Frequenzabhängige Selektion tritt auf, wenn die Fitness eines Phänotyps von seiner Häufigkeit im Verhältnis zu anderen Phänotypen in einer Population abhängt. Bei positiver frequenzabhängiger Selektion steigt die Fitness eines Phänotyps mit zunehmender Häufigkeit. Bei negativer frequenzabhängiger Selektion sinkt sie hingegen. Beispielsweise sind bei Beutewechseln seltene Beutemorphen aufgrund der Konzentration von Prädatoren auf die häufigeren Morphen tatsächlich fitter. Da die Prädation die demografische Häufigkeit der häufigen Beutemorphe verringert, wird die ehemals seltene Morphe zur häufigeren. Die zuvor vorteilhafte Morphe wird somit zur nachteiligen. Dies kann zu starken Schwankungen der Beutemorphen führen. Auch Wirt-Parasit-Interaktionen können negative frequenzabhängige Selektion bewirken, im Einklang mit der Red-Queen-Hypothese. Ein Beispiel hierfür ist der Parasitismus der neuseeländischen Süßwasserschnecke Potamopyrgus antipodarum durch den Saugwurm Microphallus sp. Dies führt über mehrere Generationen hinweg zu abnehmenden Häufigkeiten der am häufigsten vorkommenden Genotypen. Je häufiger ein Genotyp in einer Generation auftritt, desto anfälliger wird er für Parasitenbefall durch Microphallus sp. [ 8 ] Es ist anzumerken, dass in diesen Beispielen weder ein Phänotyp noch ein Genotyp vollständig aus einer Population verschwindet, noch wird ein Phänotyp oder Genotyp zur Fixierung selektiert. Polymorphismus wird somit durch negative frequenzabhängige Selektion aufrechterhalten.
Fitness variiert im Laufe der Zeit und im Raum.
Die Fitness eines Genotyps kann zwischen Larven- und Erwachsenenstadien oder zwischen verschiedenen Teilen eines Lebensraums stark variieren. [ 9 ] Variationen im Laufe der Zeit reichen, anders als räumliche Variationen, allein nicht aus, um mehrere Typen zu erhalten, da sich im Allgemeinen der Typ mit der höchsten geometrischen mittleren Fitness durchsetzt. Es gibt jedoch eine Reihe von Mechanismen, die ein stabiles Koexistenz ermöglichen. [ 10 ]
Komplexere Beispiele
Arten in ihrem natürlichen Lebensraum sind oft weitaus komplexer als die typischen Lehrbuchbeispiele.
Hainschnecke
Die Hainschnecke ( Cepaea nemoralis ) ist für den ausgeprägten Polymorphismus ihres Gehäuses bekannt. Dieses System wird durch eine Reihe multipler Allele gesteuert . Das ungebänderte Gehäuse ist das dominanteste Merkmal, und die verschiedenen Bänderungsformen werden durch Modifikatorgene reguliert (siehe Epistase ).

In England wird die Schnecke regelmäßig von der Singdrossel (Turdus philomelos) gejagt , die sie an Ambossen (großen Steinen) aufbricht . Dort sammeln sich die Bruchstücke an, sodass Forscher die erbeuteten Schnecken analysieren können. Die Drosseln jagen mit den Augen und erbeuten gezielt jene Formen, die am wenigsten gut zum jeweiligen Lebensraum passen . Schneckenkolonien finden sich in Wäldern, Hecken und Wiesen, und die Prädation bestimmt den Anteil der verschiedenen Phänotypen (Morphe) in jeder Kolonie.
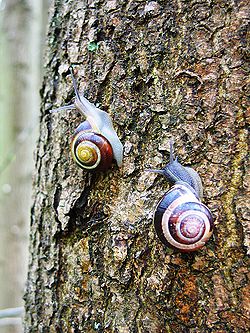
Eine zweite Art der Selektion wirkt ebenfalls bei der Schnecke, wobei bestimmte Heterozygote einen physiologischen Vorteil gegenüber den Homozygoten haben. Drittens ist apostatische Selektion wahrscheinlich, da die Vögel bevorzugt die häufigste Morphe annehmen. Dies ist der sogenannte „Suchmuster“-Effekt: Ein vorwiegend visuell orientierter Fressfeind jagt weiterhin die Morphe, die ihm einen guten Fangerfolg beschert hat, obwohl auch andere Morphen verfügbar sind.
Der Polymorphismus bleibt in nahezu allen Lebensräumen erhalten, obwohl die Anteile der verschiedenen Morphen stark variieren. Die für den Polymorphismus verantwortlichen Allele bilden ein Supergen mit einer so engen Kopplung, dass diese nahezu absolut ist. Diese Kontrolle schützt die Population vor einem hohen Anteil unerwünschter Rekombinanten.
Bei dieser Art scheint die Prädation durch Vögel der wichtigste (aber nicht der einzige) Selektionsfaktor zu sein, der den Polymorphismus antreibt. Die Schnecken leben auf heterogenen Lebensräumen, und Drosseln sind geschickt darin, unpassende genetische Merkmale zu erkennen. Die Vererbung physiologischer und kryptischer Diversität wird auch durch den Heterozygotenvorteil im Supergen erhalten. [ 11 ] [ 12 ] [ 13 ] [ 14 ] [ 15 ] Neuere Arbeiten haben den Einfluss der Gehäusefarbe auf die Thermoregulation untersucht [ 16 ] , und eine breitere Auswahl möglicher genetischer Einflüsse wird ebenfalls berücksichtigt. [ 17 ]
Chromosomenpolymorphismus bei Drosophila
In den 1930er Jahren sammelten Theodosius Dobzhansky und seine Mitarbeiter Drosophila pseudoobscura und D. persimilis aus Wildpopulationen in Kalifornien und angrenzenden Bundesstaaten. Mithilfe der Painter- Methode [ 18 ] untersuchten sie die Polytänchromosomen und entdeckten, dass alle Wildpopulationen polymorph für chromosomale Inversionen waren . Alle Fliegen sehen unabhängig von den Inversionen gleich aus; dies ist ein Beispiel für kryptischen Polymorphismus. Es verdichteten sich die Hinweise darauf, dass die natürliche Selektion dafür verantwortlich war.

- Die Werte für Heterozygoteninversionen des dritten Chromosoms waren oft viel höher, als sie unter der Nullhypothese sein sollten: Wenn es keinen Vorteil für irgendeine Form gäbe, sollte die Anzahl der Heterozygoten der Formel N s (Anzahl in der Stichprobe) = p 2 +2pq+q 2 entsprechen , wobei 2pq die Anzahl der Heterozygoten ist (siehe Hardy-Weinberg-Gleichgewicht ).
- Mithilfe einer von L’Hérètier und Teissier entwickelten Methode züchtete Dobzhansky Populationen in Populationskäfigen . Dies ermöglichte Fütterung, Zucht und Probenentnahme bei gleichzeitigem Ausbrechen der Tiere. Dadurch konnte Migration als mögliche Erklärung für die Ergebnisse ausgeschlossen werden. Stämme mit Inversionen bekannter Ausgangsfrequenz lassen sich unter kontrollierten Bedingungen halten. Es zeigte sich, dass die verschiedenen Chromosomentypen nicht zufällig schwanken, wie es bei selektiver Neutralität der Fall wäre, sondern sich auf bestimmte Frequenzen einstellen, bei denen sie sich stabilisieren.
- In verschiedenen Gebieten wurden unterschiedliche Anteile an Chromosomenvarianten gefunden. So zeigt sich beispielsweise bei *D. robusta* entlang eines 29 km langen Transekts nahe Gatlinburg , Tennessee , ein Gradient im Polymorphieverhältnis zwischen 300 m und 1200 m Höhe. [ 19 ] Auch in denselben Gebieten, die zu verschiedenen Jahreszeiten beprobt wurden, zeigten sich signifikante Unterschiede in den Anteilen der verschiedenen Formen. Dies deutet auf einen regelmäßigen Zyklus von Veränderungen hin, der die Population an die saisonalen Bedingungen anpasst. Für diese Ergebnisse ist Selektion die mit Abstand wahrscheinlichste Erklärung.
- Schließlich können die Morphen nicht allein durch Mutation auf dem hohen Niveau gehalten werden, und auch die genetische Drift ist keine mögliche Erklärung, wenn die Populationszahlen hoch sind.
1951 war Dobzhansky davon überzeugt, dass die Chromosomenvarianten in der Population durch den Selektionsvorteil der Heterozygoten erhalten blieben, wie bei den meisten Polymorphismen. [ 20 ] [ 21 ] [ 22 ]
Siehe auch
Referenzen
- ^ Charlesworth, Deborah; Willis, John H. (November 2009). „Die Genetik der Inzuchtdepression“ . Nature Reviews Genetics . 10 (11): 783–796 . doi : 10.1038/nrg2664 . ISSN 1471-0064 . PMID 19834483. S2CID 771357 .
- ^ King, RC; Stansfield, WD; Mulligan, PK (2006). A dictionary of genetics (7. Aufl.). Oxford: Oxford University Press. S. 44 .
- ^ Ford, EB (1940). „Polymorphismus und Taxonomie“. In: J. Huxley (Hrsg.). Die neue Systematik . Oxford: Clarendon Press. S. 493–513 .
- ^ Vererbung. 2009. Encyclopædia Britannica . Chicago.
- ^ Allison AC 1956. Die Sichelzell- und Hämoglobin-C-Gene in einigen afrikanischen Populationen. Ann. Human Genet. 21 , 67-89.
- ^ Sichelzellenanämie. 2009. Encyclopædia Britannica. Chicago.
- ^ David Wool. 2006. Die treibenden Kräfte der Evolution: Genetische Prozesse in Populationen. 80-82.
- ^ Koskella, B. und Lively, C. M. (2009), Evidenz für negative frequenzabhängige Selektion während der experimentellen Koevolution einer Süßwasserschnecke und eines sterilisierenden Trematoden. Evolution, 63: 2213–2221. doi : 10.1111/j.1558-5646.2009.00711.x
- ^ Ford EB 1965. Genetischer Polymorphismus , S. 26, Heterozygotenvorteil. MIT Press 1965.
- ^ Bertram, Jason; Masel, Joanna (20. März 2019). „Unterschiedliche Mechanismen treiben die Aufrechterhaltung des Polymorphismus an Loci an, die starker bzw. schwacher fluktuierender Selektion unterliegen“. Evolution . 73 ( 5): 883–896 . doi : 10.1111/evo.13719 . hdl : 10150/632441 . PMID 30883731. S2CID 83461372 .
- ^ Cain AJ und Currey JD Flächeneffekte bei Cepaea . Phil. Trans. R. Soc. B 246 : 1-81.
- ^ Cain AJ und Currey JD 1968. Klima und Selektion von Streifenmorphen bei Cepaea vom Klimaoptimum bis heute. Phil. Trans. R. Soc. B 253 : 483-98.
- ^ Cain AJ und Sheppard PM 1950. Selektion bei der polymorphen Landschnecke Cepaea nemoralis (L). Heredity 4 :275-94.
- ^ Cain AJ und Sheppard PM 1954. Natürliche Selektion bei Cepaea . Genetics 39: 89-116.
- ^ Ford EB 1975. Ökologische Genetik , 4. Aufl. Chapman & Hall, London
- ^ Jones JS, Leith BN & Rawlings P. 1977. Polymorphismus bei Cepaea : ein Problem mit zu vielen Lösungen. Annual Review of Ecology and Systematics 8 , 109-143.
- ^ Cook LM 1998. Ein zweistufiges Modell für den Polymorphismus bei Cepaea . Phil. Trans. R. Soc. B 353 , 1577-1593.
- ^ Painter TS 1933. „Eine neue Methode zur Untersuchung von Chromosomenumlagerungen und zur Erstellung von Chromosomenkarten“. Science 78 : 585–586.
- ^ Stalker HD und Carson HL 1948. „Ein Höhenprofil von Drosophila robusta “. Evolution 1 , 237–48.
- ^ Dobzhansky T. 1970. Genetik des Evolutionsprozesses . Columbia University Press NY
- ^ [Dobzhansky T.] 1981. Dobzhanskys Genetik natürlicher Populationen . Hrsg. von Lewontin RC, Moore JA, Provine WB und Wallace B. Columbia University Press NY
- ^ Ford EB 1975. Ökologische Genetik . 4. Aufl. Chapman & Hall, London.