| Wasserschichten |
|---|
|
| Schichtung |
| Siehe auch |

Die bathypelagische Zone (vom griechischen βαθύς (bathýs), tief) ist der Teil des offenen Ozeans , der sich von einer Tiefe von 1.000 bis 4.000 m unter die Meeresoberfläche erstreckt . Sie liegt zwischen der darüber liegenden mesopelagischen und der darunter liegenden abyssopelagischen Zone . Die bathypelagische Zone wird aufgrund des fehlenden Sonnenlichts auch als Mitternachtszone bezeichnet; dies verhindert die durch Photosynthese bedingte Primärproduktion und somit das Wachstum von Phytoplankton und Wasserpflanzen . Obwohl sie volumenmäßig größer ist als die photische Zone , ist unser Wissen über die bathypelagische Zone aufgrund der begrenzten Möglichkeiten zur Erforschung der Tiefsee nach wie vor eingeschränkt. [ 1 ]
Physikalische Eigenschaften

Die bathypelagische Zone zeichnet sich durch eine nahezu konstante Temperatur von etwa 4 °C und einen Salzgehalt von 33–35 g/kg aus. In dieser Region herrscht kaum Licht, da Sonnenlicht diese Meerestiefe nicht erreicht und Biolumineszenz nur schwach ausgeprägt ist. [ 2 ] Der hydrostatische Druck in dieser Zone liegt zwischen 100 und 400 Atmosphären (atm), da er mit jeder Tiefe von 10 m um 1 atm zunimmt. [ 3 ] Man geht davon aus, dass diese Bedingungen seit 8000 Jahren konstant sind. [ 2 ]
Diese Meerestiefe erstreckt sich vom Rand des Kontinentalschelfs bis zum oberen Rand der Tiefseezone und entlang der Kontinentalhänge . [ 2 ] [ 4 ] Die Bathymetrie der bathypelagischen Zone besteht aus begrenzten Bereichen, in denen der Meeresboden entlang der tiefsten Stellen der Kontinentalränder sowie an Tiefseebergen und mittelozeanischen Rücken in dieser Tiefe liegt . [ 5 ] Die Kontinentalhänge bestehen größtenteils aus abgelagertem Sediment, während Tiefseeberge und mittelozeanische Rücken große Flächen mit hartem Substrat aufweisen, die Lebensräume für bathypelagische Fische und benthische Wirbellose bieten. [ 5 ] Obwohl die Strömungen in diesen Tiefen sehr langsam sind, unterbricht die Topographie der Tiefseeberge die Strömungen und erzeugt Wirbel , die Plankton in der Region der Tiefseeberge zurückhalten und so auch die Fauna in der Nähe erhöhen. [ 4 ] [ 6 ]
Hydrothermale Quellen sind in einigen Gebieten der bathypelagischen Zone weit verbreitet und entstehen hauptsächlich durch die Ausbreitung tektonischer Platten der Erde an mittelozeanischen Rücken . [ 7 ] Da es in der bathypelagischen Zone an Licht mangelt, spielen diese Quellen eine wichtige Rolle in den globalen chemischen Prozessen der Ozeane und unterstützen so einzigartige Ökosysteme, die sich angepasst haben, um chemische Stoffe anstelle von Sonnenlicht durch Chemoautotrophie als Energiequelle zu nutzen. [ 8 ] [ 9 ] Darüber hinaus fördern hydrothermale Quellen die Ausfällung von Mineralien am Meeresboden [ 8 ] [ 9 ] [ 10 ] , wodurch sie für den Tiefseebergbau interessant werden . [ 10 ] [ 11 ] [ 12 ]
Biogeochemie
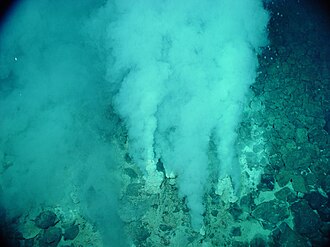
Viele biogeochemische Prozesse in der Bathypelagialzone hängen vom Eintrag organischer Substanz aus den darüber liegenden epipelagischen und mesopelagischen Zonen ab. Dieses organische Material, auch als Meeresschnee bezeichnet , sinkt in der Wassersäule ab oder wird durch abwärts gerichtete Konvektionsströmungen wie die Thermohaline Zirkulation transportiert . Hydrothermale Quellen liefern zudem Wärme und chemische Verbindungen wie Sulfid und Methan . [ 13 ] Diese Verbindungen können von Organismen in dieser Region für ihren Stoffwechsel genutzt werden. [ 14 ] Unser Verständnis dieser biogeochemischen Prozesse war historisch bedingt durch die Schwierigkeit und die hohen Kosten der Probenentnahme in diesen Meerestiefen begrenzt. Weitere technologische Herausforderungen, wie die Messung der mikrobiellen Aktivität unter den in der Bathypelagialzone herrschenden Druckbedingungen, haben unser Wissen über diese Region ebenfalls eingeschränkt. Obwohl wissenschaftliche Fortschritte unser Verständnis in den letzten Jahrzehnten erweitert haben, bleiben viele Aspekte weiterhin ungeklärt. [ 14 ] [ 15 ] [ 16 ] Ein Schwerpunkt aktueller Forschung liegt auf dem Verständnis der Kohlenstoff- Remineralisierungsraten in der Region. Bisherige Studien hatten Schwierigkeiten, die Remineralisierungsraten von Prokaryoten in dieser Region zu quantifizieren, da die entwickelten Methoden möglicherweise nicht für diese Region geeignet sind und deutlich höhere Remineralisierungsraten als erwartet ergeben. Weitere Forschung ist notwendig, um diese Frage zu klären und könnte eine Überarbeitung unseres Verständnisses des globalen Kohlenstoffkreislaufs erfordern . [ 14 ]

Partikuläre organische Substanz
Organisches Material aus der Primärproduktion in der epipelagischen Zone und, in weit geringerem Maße, organische Einträge terrestrischer Herkunft machen den Großteil der partikulären organischen Substanz (POM) im Ozean aus. POM gelangt durch absinkende Kotpillen von Ruderfußkrebsen und tote Organismen in die bathypelagische Zone. Diese organischen Substanzpakete sinken durch die Wassersäule und liefern organischen Kohlenstoff , Stickstoff und Phosphor an Organismen, die unterhalb der photischen Zone leben. Diese Pakete werden mitunter als Meeresschnee oder Meeresschuppen bezeichnet . Dies ist auch der wichtigste Nahrungstransportmechanismus für Organismen in der bathypelagischen Zone, da dort kein Sonnenlicht für die Photosynthese vorhanden ist ; Chemoautotrophie spielt, soweit wir wissen, eine untergeordnete Rolle. [ 17 ] [ 18 ]
Beim Absinken durch die Wassersäule wird partikuläre organische Substanz (POM) von Organismen aufgenommen, die ihr die Nährstoffe entziehen. Größe und Dichte dieser Partikel beeinflussen die Wahrscheinlichkeit, dass sie Organismen in der bathypelagischen Zone erreichen. Kleinere POM-Partikel verklumpen oft beim Absinken, was ihren Abstieg beschleunigt und ihre Aufnahme durch andere Organismen verhindert, wodurch die Wahrscheinlichkeit steigt, dass sie tiefere Wasserschichten erreichen. [ 19 ] [ 20 ] In manchen Regionen kann die Dichte dieser Partikel erhöht sein, da Mineralien, die mit bestimmten Phytoplanktonarten assoziiert sind, wie biogenes Siliziumdioxid und Kalziumkarbonat , als „Ballast“ wirken und so einen schnelleren Transport in größere Tiefen ermöglichen. [ 21 ]
Kohlenstoff
Der Großteil des organischen Kohlenstoffs wird in der epipelagischen Zone produziert , ein kleiner Teil wird in tiefere Meeresschichten transportiert. Dieser Prozess, die sogenannte biologische Pumpe , spielt eine wichtige Rolle bei der Bindung von Kohlenstoff aus der Atmosphäre in den Ozean. Organischer Kohlenstoff wird hauptsächlich in Form von partikulärem organischem Kohlenstoff (POC) und gelöstem organischem Kohlenstoff (DOC) in die bathypelagische Zone exportiert. [ 21 ] [ 22 ]
Partikulärer organischer Kohlenstoff (POC) ist der größte Bestandteil des organischen Kohlenstoffs , der in die Bathypelagialzone gelangt. Er liegt hauptsächlich in Form von Kotpillen und abgestorbenen Organismen vor, die aus dem Oberflächenwasser absinken und zum Meeresboden sinken. Regionen mit höherer Primärproduktion, in denen Partikel schnell absinken können, wie beispielsweise äquatoriale Auftriebszonen und das Arabische Meer , weisen den größten POC-Eintrag in die Bathypelagialzone auf. [ 21 ] [ 23 ]
Die vertikale Durchmischung von DOC-reichem Oberflächenwasser ist ebenfalls ein Prozess, der Kohlenstoff in die bathypelagische Zone transportiert; sie macht jedoch einen wesentlich geringeren Anteil des Gesamttransports aus als der POC-Transport. [ 15 ] [ 20 ] Der DOC-Transport erfolgt am ehesten in Regionen mit hoher Durchmischung oder starker Ozeanumwälzung, wie beispielsweise im Inneren von Wirbeln oder in Tiefwasserbildungsgebieten entlang der thermohalinen Zirkulation . [ 22 ]
Auflösung von Calciumcarbonat
Die Lysokline , die Zone in der Wassersäule, in der die Kalzitauflösung rasch einsetzt, liegt typischerweise nahe der Basis der bathypelagischen Zone in etwa 3500 m Tiefe, variiert jedoch zwischen den Ozeanbecken. [ 24 ] Die Lysokline befindet sich unterhalb der Sättigungstiefe (Übergang zu ungesättigten Bedingungen in Bezug auf Kalziumkarbonat ) und oberhalb der Karbonatkompensationstiefe (unterhalb derer keine Kalziumkarbonat-Erhaltung stattfindet). In einem übersättigten Milieu bleiben die Gehäuse kalzitbildender Organismen beim Absinken zum Meeresboden erhalten, was zu Sedimenten mit relativ hohen CaCO₃-Gehalten führt . Mit zunehmender Tiefe und steigendem Druck sowie sinkender Temperatur nimmt jedoch auch die Löslichkeit von Kalziumkarbonat zu, was zu verstärkter Auflösung und geringerem Nettotransport zum tieferen Meeresboden führt. Aufgrund dieser raschen Änderung der Auflösungsraten variieren die Sedimente in der bathypelagischen Zone stark hinsichtlich ihres CaCO₃- Gehalts und ihrer Ablagerung. [ 25 ]
Ökologie
Die Ökologie des bathypelagischen Ökosystems ist durch den Mangel an Sonnenlicht und Primärproduzenten sowie die begrenzte Produktion mikrobieller Biomasse durch Autotrophie eingeschränkt. Die Nahrungsnetze in dieser Region basieren auf partikulärer organischer Substanz (POM), die aus dem epipelagischen und mesopelagischen Wasser absinkt, sowie auf Sauerstoffzufuhr durch die thermohaline Zirkulation . [ 26 ] Trotz dieser Einschränkungen beherbergt dieses Ökosystem des offenen Ozeans Mikroorganismen , Fische und Nekton .
Mikrobielle Ökologie
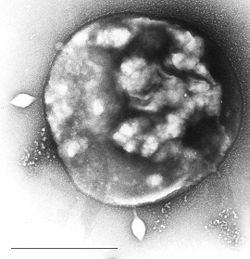
Ein umfassendes Verständnis der Faktoren, die die mikrobielle Ökologie der bathypelagischen Zone beeinflussen, fehlt aufgrund begrenzter Beobachtungsdaten, hat sich aber mit Fortschritten in der Tiefseetechnologie verbessert. Ein Großteil unseres Wissens über die mikrobielle Aktivität im Ozean stammt aus Studien flacherer Meeresregionen, da diese leichter zugänglich sind. Früher ging man davon aus, dass tieferes Wasser keine geeigneten physikalischen Bedingungen für diverse mikrobielle Gemeinschaften bietet. Die bathypelagische Zone erhält Einträge von organischem Material und partikulärer organischer Substanz (POM) aus dem Oberflächenozean in der Größenordnung von 1–3,6 Pg C/Jahr. [ 27 ] [ 28 ] [ 29 ]
Die Biomasse der Prokaryoten in der Bathypelagialzone ist abhängig von der Menge an absinkendem partikulärem organischem Material (POM) undder Verfügbarkeit von organischem Kohlenstoff und korreliert daher mit diesen. Diese für Mikroorganismen essenziellen organischen Kohlenstoffquellen nehmen typischerweise mit zunehmender Tiefe ab, da sie beim Absinken in die Bathypelagialzone verbraucht werden. [ 30 ] [ 31 ] [ 14 ] Die mikrobielle Produktion variiert je nach Ressourcenverfügbarkeit in einem bestimmten Gebiet um sechs Größenordnungen. [ 18 ] Die Prokaryotenhäufigkeit kann zwischen 0,03 und 2,3 × 10⁵ Zellen ml⁻¹ liegen , und die Populationsumsatzzeiten können zwischen 0,1 und 30 Jahren variieren. [ 18 ] [ 30 ] [ 31 ] Archaeen machen den größten Anteil der gesamten Prokaryotenzellzahl aus, und verschiedene Gruppen haben unterschiedliche Wachstumsbedürfnisse. So können beispielsweise einige Archaeengruppen Aminosäuregruppen leichter verwerten als andere. [ 32 ] [ 33 ] Bei einigen Archaeen wie Crenarchaeota 16S rRNA und archaealen amoA-Genen korreliert die Häufigkeit mit der Fixierung von gelöstem anorganischem Kohlenstoff (DIC) . [ 34 ] [ 35 ] [ 36 ] Die Nutzung von DIC erfolgt vermutlich durch die Oxidation von Ammonium [ 37 ] [ 38 ] [ 39 ] und stellt eine Form der Chemoautotrophie dar. Basierend auf regionalen Unterschieden und der Häufigkeit von Prokaryoten, der Produktion heterotropher Prokaryoten und dem Eintrag von partikulärem organischem Kohlenstoff (POC) in die bathypelagische Zone.
Die Forschung zur Quantifizierung bakterienfressender Weidegänger, wie heterotropher Eukaryoten , wurde durch Schwierigkeiten bei der Probenahme eingeschränkt. Oftmals überleben die Organismen den Transport an die Oberfläche aufgrund der drastischen Druckveränderungen innerhalb kurzer Zeit nicht. [ 40 ] Es wird zwar an der Quantifizierung der Zellhäufigkeit und Biomasse gearbeitet, doch aufgrund der geringen Überlebensrate ist es schwierig, genaue Zählungen zu erhalten. In den letzten Jahren wurden Anstrengungen unternommen, die Diversität der eukaryotischen Gemeinschaften in der bathypelagischen Zone mithilfe von Methoden zu kategorisieren, die die genetische Zusammensetzung mikrobieller Gemeinschaften anhand von Supergruppen bewerten. Dies ist eine Möglichkeit, Organismen mit gemeinsamer Abstammung zu klassifizieren. Zu den wichtigsten Gruppen bakterieller Weidegänger gehören Rhizaria , Alveolata , Fungi , Stramenopiles , Amoebozoa und Excavata (aufgelistet von der häufigsten zur seltensten Gruppe), während die übrige Zusammensetzung als unsicher oder anderweitig klassifiziert wird. [ 41 ]
Viren beeinflussen biogeochemische Kreisläufe durch ihre Rolle in marinen Nahrungsnetzen . [ 42 ] [ 43 ] [ 44 ] Ihre Gesamthäufigkeit kann bis zu zwei Größenordnungen niedriger sein als in der Mesopelagialzone ; jedoch findet sich häufig eine hohe Virenkonzentration in der Nähe von Tiefsee- Hydrothermalquellen . [ 45 ] Das Ausmaß ihrer Auswirkungen auf biologische Systeme zeigt sich in der Bandbreite der Verhältnisse von Viren zu Prokaryoten (1–223), was bedeutet, dass es gleich viele oder sogar mehr Viren als Prokaryoten gibt. [ 18 ]
Fauna
Fischökologie
Trotz des Lichtmangels spielt das Sehvermögen im Bathypelagial eine Rolle, wobei Biolumineszenz ein Merkmal sowohl nektonischer als auch planktonischer Organismen ist. [ 46 ] Im Gegensatz zu Organismen in der Wassersäule weisen benthische Organismen in dieser Region in der Regel keine oder nur geringe Biolumineszenz auf . [ 47 ] Die bathypelagische Zone beherbergt Haie , Tintenfische , Kraken und zahlreiche Fischarten, darunter Tiefsee- Anglerfische , Pelikanaale , Flohkrebse und Drachenfische . Die Fische zeichnen sich durch schwache Muskulatur, weiche Haut und schleimige Körper aus. Zu den Anpassungen einiger dort lebender Fische gehören kleine Augen und transparente Haut. Da Nahrung in dieser Zone knapp ist, ist das Leben für Fische jedoch schwierig; dies hat dazu geführt, dass die Arten einen langsamen Stoffwechsel entwickelt haben, um Energie zu sparen. [ 48 ] Gelegentlich führen große Mengen organischer Substanz aus verrottenden Organismen, wie beispielsweise Walreste , zu einem kurzzeitigen Aktivitätsschub, indem sie Organismen aus verschiedenen bathypelagischen Gemeinschaften anlocken. [ 48 ]
Tageszeitliche vertikale Migration
Einige bathypelagische Arten unternehmen Vertikalwanderungen , die sich von der tageszeitlichen Vertikalwanderung mesopelagischer Arten dadurch unterscheiden, dass sie nicht durch Sonnenlicht angetrieben werden. [ 49 ] Stattdessen wird die Wanderung bathypelagischer Organismen von anderen Faktoren bestimmt, von denen die meisten noch unbekannt sind. Einige Untersuchungen deuten darauf hin, dass die Bewegung von Arten in der darüber liegenden pelagischen Zone einzelne bathypelagische Arten zur Wanderung anregen könnte, wie beispielsweise Sthenoteuthis sp. , eine Tintenfischart . [ 50 ] In diesem speziellen Fall scheint Sthenoteuthis sp. innerhalb von etwa 4–5 Stunden einzeln zur Oberfläche zu wandern und sich dann zu Gruppen zusammenzuschließen. [ 50 ] Während in den meisten Regionen Wanderungsmuster durch Prädation bedingt sein können , wird angenommen, dass die Wanderungsmuster in dieser speziellen Region nicht allein auf Räuber-Beute-Beziehungen beruhen. Vielmehr handelt es sich um kommensalistische Beziehungen , wobei die in der Bathypelagialzone verbleibenden Arten von der durch die Aufwärtswanderung einer anderen Art verursachten Durchmischung partikulärer organischer Substanz (POM) profitieren. [ 51 ] Darüber hinaus scheint der Zeitpunkt der bathypelagischen Wanderung vertikal wandernder Arten mit dem Mondzyklus zusammenzuhängen . Die genauen Indikatoren, die diesen Zeitpunkt bedingen, sind jedoch noch unbekannt. [ 51 ]
Forschung und Erkundung

Diese Region ist aufgrund fehlender Daten/Beobachtungen und schwieriger Zugänglichkeit (z. B. Kosten, abgelegene Lage, extremer Druck) untererforscht. [ 15 ] [ 52 ] Historisch gesehen wurden in der Ozeanographie Kontinentalränder aufgrund ihrer relativ einfachen Zugänglichkeit am häufigsten beprobt und untersucht. [ 5 ] In jüngerer Zeit werden jedoch aufgrund technologischer Fortschritte und verbesserter Labormethoden sowie der Zusammenarbeit mit der Industrie zunehmend auch weiter draußen liegende und tiefer gelegene Gebiete wie mittelozeanische Rücken und Tiefseeberge erforscht. [ 53 ] [ 54 ] [ 55 ] [ 52 ] Die erste Entdeckung von Gemeinschaften, die sich von der chemischen Energie hydrothermaler Quellen ernähren, gelang 1977 an Bord einer Expedition unter der Leitung von Jack Corliss , einem Ozeanographen der Oregon State University . Zu den jüngsten Entwicklungen zählen ferngesteuerte Unterwasserfahrzeuge (ROVs), autonome Unterwasserfahrzeuge (AUVs) sowie unabhängige Gleiter und Bojen. [ 56 ] [ 57 ] [ 58 ]
Spezifische Technologien und Forschungsprojekte
- SERPENT-Projekt [ 59 ]
- Ocean Twilight Zone (OTZ) Projekt [ 60 ]
- DEEP SEARCH Projekt [ 61 ]
- DEEPEND-Projekt [ 62 ]
- AUV Sentry [ 63 ]
- ROV Jason [ 64 ]
- Hybrid- ROV Nereus
- AUV Autosub Long Range [ 65 ]
Klimawandel
Die Ozeane wirken als Puffer gegen den vom Menschen verursachten Klimawandel, da sie atmosphärisches CO₂ aufnehmen und Wärme aus der Atmosphäre absorbieren können. Diese Fähigkeit der Ozeane wird jedoch durch den weiteren Anstieg der atmosphärischen CO₂-Konzentrationen und die fortschreitende Erwärmung der globalen Temperaturen beeinträchtigt . Dies führt unter anderem zu Veränderungen wie Sauerstoffmangel , Ozeanversauerung , Temperaturanstieg und abnehmender Kohlenstoffbindung . Diese Störungen können erhebliche Auswirkungen auf die Organismen der Tiefsee und die Prozesse haben, die organischen Kohlenstoff in die Tiefsee transportieren. [ 66 ] [ 17 ]
Kohlenstoffspeicherung
Die bathypelagische Zone dient aufgrund ihres enormen Volumens und der jahrhundertelangen bis jahrtausendelangen Isolation dieser Gewässer von der Atmosphäre als bedeutendes Kohlenstoffreservoir und spielt daher eine wichtige Rolle bei der Abmilderung der Auswirkungen des anthropogenen Klimawandels. [ 17 ] Die Einlagerung von partikulärem organischem Kohlenstoff (POC) in die darunterliegenden Sedimente durch die biologische Kohlenstoffpumpe und der Transport von gelöstem anorganischem Kohlenstoff (DIC) in das Ozeaninnere durch den thermohalinen Transport sind Schlüsselprozesse zur Entfernung von überschüssigem atmosphärischem Kohlenstoff. Da jedoch die atmosphärischen CO₂- Konzentrationen und die globalen Temperaturen weiter ansteigen, wird die Effizienz der Kohlenstoffspeicherung und -einlagerung in der Bathypelagialzone höchstwahrscheinlich abnehmen. Zwar kann es in einigen Regionen, wie beispielsweise in der Arktis, wo längere Perioden mit geringer Meereisbedeckung den Kohlenstofffluss von der Meeresoberfläche nach unten erhöhen, zu einem Anstieg des POC-Eintrags kommen, doch insgesamt wird voraussichtlich weniger Kohlenstoff in der Bathypelagialzone gebunden werden. [ 66 ]
Referenzen
- ^ „Februar 2017 Unbeständig, trüb und mild“ . Weather . 72 (4): i– iv. April 2017. doi : 10.1002/wea.2860 . ISSN 0043-1656 . S2CID 247658710 .
- ^ a b c Miller, Charles B. (2012). Biologische Ozeanographie . Patricia Wheeler (2. Aufl.). Hoboken, NJ: John Wiley & Sons. ISBN 978-1-4443-3301-5OCLC 768606918 .
- ^ „Woods Hole Oceanographic Institution“ . Woods Hole Oceanographic Institution . Abgerufen am 1. Dezember 2022 .
- ^ a b Fortschritte in der Meeresbiologie. Band 32, Die Biogeographie der Ozeane . AJ Southward, JHS Blaxter. London: Academic Press. 1997. ISBN 0-12-026132-4OCLC 646756756 .
{{cite book}}: CS1 Wartung: andere ( Link ) - ^ a b c Marjo., Agostini, Vera N. Vierros (2009). Globale biogeographische Klassifizierung der offenen Ozeane und des Tiefseebodens (GOODS) . UNESCO, Zwischenstaatliche Ozeanographische Kommission. OCLC 554853878 .
{{cite book}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - ^ US-Handelsministerium, Nationale Ozean- und Atmosphärenbehörde (11. November 2022). „Das globale Förderband – Strömungen: Bildungsangebot des Nationalen Ozeandienstes der NOAA“ .
- Beaulieu , Stace E.; Baker, Edward T.; German, Christopher R.; Maffei, Andrew (November 2013). „Eine maßgebliche globale Datenbank für aktive submarine hydrothermale Quellfelder: GLOBAL VENTS DATABASE“ . Geochemistry, Geophysics, Geosystems . 14 (11): 4892–4905 . doi : 10.1002/2013GC004998 . hdl : 1912/6496 . S2CID 53604809 .
- ^ a b TIVEY, MARGARET KINGSTON (2007). „Entstehung hydrothermaler Fluide am Meeresboden und damit verbundener Mineralvorkommen“ . Oceanography . 20 (1): 50–65 . doi : 10.5670/oceanog.2007.80 . hdl : 1912/2775 . ISSN 1042-8275 . JSTOR 24859975 .
- ^ a b „Hydrothermale Quellen – Woods Hole Oceanographic Institution“ . Abgerufen am 1. Dezember 2022 .
- Van Dover, CL; Arnaud-Haond, S.; Gianni, M.; Helmreich, S.; Huber, JA; Jaeckel, AL; Metaxas, A .; Pendleton , LH ; Petersen, S.; Ramirez-Llodra, E.; Steinberg, PE; Tunnicliffe, V.; Yamamoto, H. (2018-04-01). „Wissenschaftliche Begründung und internationale Verpflichtungen zum Schutz aktiver hydrothermaler Ökosysteme vor Tiefseebergbau“. Marine Policy . 90 : 20–28 . doi : 10.1016/j.marpol.2018.01.020 . hdl : 1721.1/134956.2 . ISSN 0308-597X .
- ^ Miller, Kathryn A.; Thompson, Kirsten F.; Johnston, Paul; Santillo, David (2018). „Ein Überblick über den Tiefseebergbau einschließlich des aktuellen Entwicklungsstands, der Umweltauswirkungen und der Wissenslücken“ . Frontiers in Marine Science . 4. doi : 10.3389/fmars.2017.00418 . hdl : 10871/130175 . ISSN 2296-7745 .
- ^ GAO Science, Technology Assessment, and Analytics (November 2022). "Tiefseebergbau" (PDF) .
{{cite web}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - Sweetman , Ak; Levin, La; Rapp, Ht; Schander, C (21.01.2013). „Faunatrophische Struktur an hydrothermalen Quellen des südlichen Mohn-Rückens im Arktischen Ozean“ . Marine Ecology Progress Series . 473 : 115–131 . Bibcode : 2013MEPS..473..115S . doi : 10.3354/meps10050 . hdl : 1956/19293 . ISSN 0171-8630 .
- ^ a b c d Arístegui, Javier; Gasol, Josep M.; Duarte, Carlos M.; Herndld, Gerhard J. (September 2009). „Mikrobielle Ozeanographie des pelagischen Bereichs des dunklen Ozeans“ . Limnology and Oceanography . 54 (5): 1501–1529 . Bibcode : 2009LimOc..54.1501A . doi : 10.4319/lo.2009.54.5.1501 . hdl : 10553/1417 . ISSN 0024-3590 . S2CID 11348058 .
- Carlson, Craig A.; Hansell, Dennis A.; Nelson, Norman B.; Siegel, David A.; Smethie, William M.; Khatiwala, Samar; Meyers, Meredith M.; Halewood, Elisa (August 2010). „Export von gelöstem organischem Kohlenstoff und anschließende Remineralisierung in den mesopelagischen und bathypelagischen Bereichen des Nordatlantikbeckens“. Deep Sea Research Part II: Topical Studies in Oceanography . 57 (16): 1433–1445 . Bibcode : 2010DSRII..57.1433C . doi : 10.1016/j.dsr2.2010.02.013 .
- ^ del Giorgio, Paul A.; Duarte, Carlos M. (November 2002). „Respiration in the open ocean“ . Nature . 420 (6914): 379–384 . Bibcode : 2002Natur.420..379D . doi : 10.1038 / nature01165 . ISSN 0028-0836 . PMID 12459775. S2CID 4392859 .
- ^ abcHonjo, Susumu; Eglinton, Timothy; Taylor, Craig; Ulmer, Kevin; Sievert, Stefan; Bracher, Astrid; German, Christopher; Edgcomb, Virginia; Francois, Roger; Iglesias-Rodriguez, M. Debora; Van Mooy, Benjamin; Rapeta, Daniel (2014-09-01). "Understanding the Role of the Biological Pump in the Global Carbon Cycle: An Imperative for Ocean Science". Oceanography. 27 (3): 10–16. doi:10.5670/oceanog.2014.78. hdl:1912/6863.
- ^ abcdNagata, Toshi; Tamburini, Christian; Arístegui, Javier; Baltar, Federico; Bochdansky, Alexander B.; Fonda-Umani, Serena; Fukuda, Hideki; Gogou, Alexandra; Hansell, Dennis A.; Hansman, Roberta L.; Herndl, Gerhard J.; Panagiotopoulos, Christos; Reinthaler, Thomas; Sohrin, Rumi; Verdugo, Pedro (August 2010). "Emerging concepts on microbial processes in the bathypelagic ocean – ecology, biogeochemistry, and genomics". Deep Sea Research Part II: Topical Studies in Oceanography. 57 (16): 1519–1536. Bibcode:2010DSRII..57.1519N. doi:10.1016/j.dsr2.2010.02.019.
- ^Jackson, G.A. (2002). "Collecting The Garbage Of The Sea: The Role Of Aggregation In Ocean Carbon Transport": 20.
{{cite journal}}: Cite journal requires|journal=(help) - ^ abArístegui, Javier; Agustí, Susana; Middelburg, Jack J.; Duarte, Carlos M. (2005-01-06), "Respiration in the mesopelagic and bathypelagic zones of the oceans", Respiration in Aquatic Ecosystems, Oxford University Press, pp. 181–205, doi:10.1093/acprof:oso/9780198527084.003.0010, hdl:10553/51651, ISBN 978-0-19-852708-4, retrieved 2022-12-01
- ^ abcFrancois, Roger; Honjo, Susumu; Krishfield, Richard; Manganini, Steve (December 2002). "Factors controlling the flux of organic carbon to the bathypelagic zone of the ocean: FACTORS CONTROLLING ORGANIC CARBON FLUX". Global Biogeochemical Cycles. 16 (4): 34–1–34-20. doi:10.1029/2001GB001722. S2CID 128876389.
- ^ a b Burd, Adrian B.; Hansell, Dennis A.; Steinberg, Deborah K.; Anderson, Thomas R.; Arístegui, Javier; Baltar, Federico; Beaupré, Steven R.; Buesseler, Ken O.; DeHairs, Frank; Jackson, George A.; Kadko, David C.; Koppelmann, Rolf; Lampitt, Richard S.; Nagata, Toshi; Reinthaler, Thomas (August 2010). „Bewertung des scheinbaren Ungleichgewichts zwischen geochemischen und biochemischen Indikatoren meso- und bathypelagischer biologischer Aktivität: Was zum Teufel ist falsch an den aktuellen Berechnungen von Kohlenstoffbilanzen?“ Deep Sea Research Part II: Topical Studies in Oceanography . 57 (16): 1557–1571 . Bibcode : 2010DSRII..57.1557B . doi : 10.1016/j.dsr2.2010.02.022 . hdl : 10553/51638 .
- ^ Antia, Avan N.; Koeve, Wolfgang; Fischer, Gerhard; Blanz, Thomas; Schulz-Bull, Detlef; Schölten, Jan; Neuer, Susanne; Kremling, Klaus; Kuss, Joachim; Peinert, Rolf; Hebbeln, Dirk; Bathmann, Ulrich; Conte, Maureen; Fehner, Uwe; Zeitzschel, B. (Dezember 2001). „Beckenweiter Partikelkohlenstofffluss im Atlantischen Ozean: Regionale Exportmuster und Potenzial für die atmosphärische CO 2 -Sequestrierung“ . Globale biogeochemische Kreisläufe . 15 (4): 845– 862. Bibcode : 2001GBioC..15..845A . doi : 10.1029/2000GB001376 . S2CID 53462171 .
- ^ Chen CTA, Feely RA, Gendron JF. 1988. Lysokline, Calciumcarbonat-Kompensationstiefe und kalkhaltige Sedimente im Nordpazifik. Pac Sci 42(3-4): 237-252.
- ^ Broecker, W. S. (2003), „Der ozeanische CaCO3-Zyklus“ , Treatise on Geochemistry , Bd. 6, Elsevier, S. 529–549 , Bibcode : 2003TrGeo...6..529B , doi : 10.1016/B0-08-043751-6/06119-3 , ISBN 978-0-08-043751-4abgerufen am 01.12.2022
- ^ Keith, David A.; Ferrer-Paris, Jose R.; Nicholson, Emily; Kingsford, Richard T. (Hrsg.). (15.12.2020). IUCN Global Ecosystem Typology 2.0: Deskriptive Profile für Biome und funktionelle Ökosystemgruppen . IUCN, Internationale Union für Naturschutz. doi : 10.2305/iucn.ch.2020.13.en . ISBN 978-2-8317-2077-7. S2CID 241360441 .
- ^ Jannasch, Holger W.; Wirsen, Carl O. (11.05.1973). „Tiefsee-Mikroorganismen: In-situ-Reaktion auf Nährstoffanreicherung“ . Science . 180 ( 4086): 641–643 . Bibcode : 1973Sci...180..641J . doi : 10.1126/science.180.4086.641 . ISSN 0036-8075 . PMID 17774289. S2CID 7037952 .
- ^ Hansell, Dennis A. (2002), „DOC im globalen Kohlenstoffkreislauf der Ozeane“ , Biogeochemie mariner gelöster organischer Substanz , Elsevier, S. 685–715 , doi : 10.1016/b978-012323841-2/50017-8 , ISBN 9780123238412abgerufen am 01.12.2022
- Martin , John H.; Knauer, George A.; Karl, David M.; Broenkow, William W. (Februar 1987). „VERTEX: Kohlenstoffkreislauf im Nordostpazifik“ . Deep Sea Research Part A. Oceanographic Research Papers . 34 (2): 267–285 . Bibcode : 1987DSRA...34..267M . doi : 10.1016/0198-0149(87) 90086-0 . ISSN 0198-0149 .
- ^ a b Nagata, Toshi; Fukuda, Hideki; Fukuda, Rumi; Koike, Isao (März 2000). „Verteilung und Produktion von Bakterioplankton in tiefen Pazifikgewässern: Großräumige geographische Variationen und mögliche Kopplung mit sinkenden Partikelflüssen“ . Limnology and Oceanography . 45 (2): 426–435 . Bibcode : 2000LimOc..45..426N . doi : 10.4319/lo.2000.45.2.0426 . ISSN 0024-3590 . S2CID 85409928 .
- Reinthaler , Thomas; van Aken, Hendrik; Veth, Cornelis; Arístegui, Javier; Robinson, Carol; Williams, Peter J. le B.; Lebaron, Philippe; Herndl, Gerhard J. (Mai 2006). „ Prokaryotische Atmung und Produktion im Meso- und Bathypelagial des östlichen und westlichen Nordatlantikbeckens“ . Limnology and Oceanography . 51 (3): 1262–1273 . Bibcode : 2006LimOc..51.1262R . doi : 10.4319/lo.2006.51.3.1262 . hdl : 10553/1199 . ISSN 0024-3590 . S2CID 17568366 .
- ^ Karner, Markus B.; DeLong, Edward F.; Karl, David M. (Januar 2001). „Archaeen-Dominanz in der mesopelagischen Zone des Pazifischen Ozeans“ . Nature . 409 (6819): 507–510 . Bibcode : 2001Natur.409..507K . doi : 10.1038/35054051 . ISSN 0028-0836 . PMID 11206545. S2CID 6789859 .
- Herndl , Gerhard J.; Reinthaler, Thomas; Teira, Eva; van Aken, Hendrik; Veth, Cornelius; Pernthaler, Annelie; Pernthaler, Jakob (Mai 2005). „Beitrag von Archaeen zur gesamten prokaryotischen Produktion im Tiefseeatlantik“ . Applied and Environmental Microbiology . 71 (5): 2303–2309 . Bibcode : 2005ApEnM..71.2303H . doi : 10.1128 /AEM.71.5.2303-2309.2005 . ISSN 0099-2240 . PMC 1087563. PMID 15870315 .
- Hansman , Roberta L.; Griffin, Sheila; Watson, Jordan T.; Druffel, Ellen RM; Ingalls, Anitra E.; Pearson, Ann; Aluwihare, Lihini I. (21.04.2009). „Die Radiokohlenstoffsignatur von Mikroorganismen im Mesopelagial“ . Proceedings of the National Academy of Sciences of the United States of America . 106 (16): 6513–6518 . Bibcode : 2009PNAS..106.6513H . doi : 10.1073 / pnas.0810871106 . ISSN 0027-8424 . PMC 2672484. PMID 19366673 .
- ^ Wuchter, Cornelia; Schouten, Stefan; Boschker, Henricus TS; Sinninghe Damste, Jaap S. (Februar 2003). „Bikarbonataufnahme durch marine Crenarchaeota“ . FEMS-Briefe zur Mikrobiologie . 219 (2): 203–207 . doi : 10.1016/s0378-1097(03)00060-0 . ISSN 0378-1097 . PMID 12620621 .
- ^ Pearson, A.; McNichol, AP; Benitez-Nelson, BC; Hayes, JM; Eglinton, TI (September 2001). „Ursprünge von Lipid-Biomarkern in Oberflächensedimenten des Santa-Monica-Beckens: eine Fallstudie mittels verbindungsspezifischer Δ<sup>14</sup>C-Analyse“ . Geochimica et Cosmochimica Acta . 65 (18): 3123–3137 . Bibcode : 2001GeCoA..65.3123P . doi : 10.1016/s0016-7037(01)00657-3 . ISSN 0016-7037 .
- Könneke , Martin; Bernhard, Anne E.; de la Torre, José R.; Walker, Christopher B.; Waterbury, John B.; Stahl, David A. (September 2005). „Isolierung eines autotrophen, ammoniakoxidierenden marinen Archaebakteriums“ . Nature . 437 (7058): 543–546 . Bibcode : 2005Natur.437..543K . doi : 10.1038 / nature03911 . ISSN 0028-0836 . PMID 16177789. S2CID 4340386 .
- ^ Wuchter, Cornelia; Abbas, Ben; Coolen, Marco JL; Herfort, Lydie; van Bleijswijk, Judith; Timmers, Peer; Strous, Marc; Teira, Eva; Herndl, Gerhard J.; Middelburg, Jack J.; Schouten, Stefan; Sinninghe Damsté, Jaap S. (15.08.2006). „Archaeische Nitrifikation im Ozean“ . Verfahren der National Academy of Sciences . 103 (33): 12317– 12322. Bibcode : 2006PNAS..10312317W . doi : 10.1073/pnas.0600756103 . ISSN 0027-8424 . PMC 1533803 . PMID 16894176 .
- ^ Beman, J. Michael; Popp, Brian N.; Francis, Christopher A. (April 2008). „Molekulare und biogeochemische Beweise für die Ammoniakoxidation durch marine Crenarchaeota im Golf von Kalifornien“ . Das ISME Journal . 2 (4): 429–441 . doi : 10.1038/ismej.2007.118 . ISSN 1751-7370 . PMID 18200070 . S2CID 8607463 .
- ^ Edgcomb, Virginia P.; Beaudoin, David; Gast, Rebecca; Biddle, Jennifer F.; Teske, Andreas (01.08.2010). „Marine subsurface eukaryotes: the fungal majority“ . Environmental Microbiology . 13 (1): 172–183 . doi : 10.1111/j.1462-2920.2010.02318.x . ISSN 1462-2912 . PMID 21199255 .
- ^ Pernice, Massimo C; Giner, Caterina R; Logares, Ramiro; Perera-Bel, Júlia; Acinas, Silvia G; Duarte, Carlos M; Gasol, Josep M; Massana, Ramon (April 2016). „Große Variabilität badypelagischer mikrobieller eukaryotischer Gemeinschaften in den Weltmeeren“ . Das ISME Journal . 10 (4): 945–958 . doi : 10.1038/ismej.2015.170 . ISSN 1751-7362 . PMC 4796934 . PMID 26451501 .
- ^ Weinbauer, Markus G. ( Mai 2004). „Ökologie prokaryotischer Viren“ . FEMS Microbiology Reviews . 28 (2): 127–181 . doi : 10.1016/j.femsre.2003.08.001 . ISSN 1574-6976 . PMID 15109783. S2CID 3495147 .
- Motegi , Chiaki; Nagata, Toshi; Miki, Takeshi; Weinbauer, Markus G.; Legendre, Louis; Rassoulzadegand, Fereidoun (10.08.2009). „Virale Kontrolle der bakteriellen Wachstumseffizienz in marinen pelagischen Umgebungen“ . Limnology and Oceanography . 54 (6): 1901–1910 . Bibcode : 2009LimOc..54.1901M . doi : 10.4319/lo.2009.54.6.1901 . ISSN 0024-3590 . S2CID 86571536 .
- ^ Breitbart, Mya; Middelboe, Mathias; Rohwer, Forest (2008), „Marine Viren: Dynamik, Diversität und Einfluss auf mikrobielle Prozesse“ , Mikrobielle Ökologie der Ozeane , Hoboken, NJ, USA: John Wiley & Sons, Inc., S. 443–479 , doi : 10.1002/9780470281840.ch12 , ISBN 9780470281840abgerufen am 01.12.2022
- ^ Ortmann, Alice C.; Suttle, Curtis A. (August 2005). „Hohe Viruskonzentrationen in einem Tiefsee-Hydrothermalquellensystem deuten auf virusbedingte mikrobielle Mortalität hin“ . Deep Sea Research Part I: Oceanographic Research Papers . 52 (8): 1515–1527 . Bibcode : 2005DSRI...52.1515O . doi : 10.1016/j.dsr.2005.04.002 . ISSN 0967-0637 .
- ^ Widder, EA (07.05.2010). „Biolumineszenz im Ozean: Ursprünge der biologischen, chemischen und ökologischen Vielfalt“ . Science . 328 (5979): 704–708 . Bibcode : 2010Sci...328..704W . doi : 10.1126 / science.1174269 . ISSN 0036-8075 . PMID 20448176. S2CID 2375135 .
- ^ Frank, Tamara M.; Johnsen, Sönke; Cronin, Thomas W. (2012-10-01). „Licht und Sehen im Tiefseebenthos: II. Sehen bei Tiefseekrebsen“ . Journal of Experimental Biology . 215 (19): 3344–3353 . doi : 10.1242/jeb.072033 . hdl : 11603/13394 . ISSN 1477-9145 . PMID 22956247. S2CID 13524696 .
- Gooday , AJ; Turley, Carol M. (1990-06-19). „Reaktionen benthischer Organismen auf den Eintrag organischen Materials in den Meeresboden: ein Überblick“ . Philosophical Transactions of the Royal Society of London. Series A, Mathematical and Physical Sciences . 331 ( 1616): 119–138 . Bibcode : 1990RSPTA.331..119G . doi : 10.1098/rsta.1990.0060 . ISSN 0080-4614 . S2CID 122884530 .
- ^ Sutton, TT (Dezember 2013). „Vertikale Ökologie des pelagischen Ozeans: Klassische Muster und neue Perspektiven“ . Journal of Fish Biology . 83 (6): 1508–1527 . doi : 10.1111/jfb.12263 . ISSN 0022-1112 . PMID 24298949 .
- ^ ein b Kaartvedt, Stein; Røstad, Anders; Christiansen, Svenja; Klevjer, Thor A. (Juni 2020). „Diel-Vertikalwanderung und individuelles Verhalten von Nekton jenseits der Dämmerungszone des Ozeans“ . Tiefseeforschung Teil I: Ozeanographische Forschungsarbeiten . 160 103280. Bibcode : 2020DSRI..16003280K . doi : 10.1016/j.dsr.2020.103280 . HDL : 10754/662508 . ISSN 0967-0637 . S2CID 216470635 .
- ^ a b Ochoa, José; Maske, H.; Sheinbaumc, J.; Candela, J. (14.06.2013). „Tages- und Mondzyklen der Vertikalwanderung bis unter 1000 m im Ozean und die vertikale Vernetzung tiefenabhängiger Populationen“ . Limnology and Oceanography . 58 (4): 1207–1214 . Bibcode : 2013LimOc..58.1207O . doi : 10.4319/lo.2013.58.4.1207 . ISSN 0024-3590 . S2CID 83993399 .
- ^ a b Marsh, Leigh; Copley, Jonathan T.; Huvenne, Veerle AI; Tyler, Paul A.; die Isis ROV Facility (2013-08-01). „Das Gesamtbild erfassen: Hochauflösende Mosaikbilder neu entdeckter hydrothermaler Quellen im Südlichen Ozean mithilfe präziser ROV-Videografie“. Deep Sea Research Part II: Topical Studies in Oceanography . Deep-Sea Biodiversity and Life History Processes. 92 : 124–135 . Bibcode : 2013DSRII..92..124M . doi : 10.1016/j.dsr2.2013.02.007 . ISSN 0967-0645 .
- ^ Macreadie, Peter I.; McLean, Dianne L.; Thomson, Paul G.; Partridge, Julian C.; Jones, Daniel OB; Gates, Andrew R.; Benfield, Mark C.; Collin, Shaun P.; Booth, David J.; Smith, Luke L.; Techera, Erika; Skropeta, Danielle; Horton, Tammy; Pattiaratchi, Charitha; Bond, Todd (01.09.2018). „Augen im Meer: Die Geheimnisse des Ozeans mithilfe industrieller, ferngesteuerter Unterwasserfahrzeuge (ROVs) entschlüsseln“ (PDF) . Science of the Total Environment . 634 : 1077–1091 . Bibcode : 2018ScTEn.634.1077M . doi : 10.1016/j.scitotenv.2018.04.049 . ISSN 0048-9697 . PMID 29660864 . S2CID 4955364 .
- ^ Bellingham, James G.; Rajan, Kanna (16.11.2007). „Robotik in abgelegenen und feindlichen Umgebungen“ . Science . 318 (5853): 1098–1102 . Bibcode : 2007Sci...318.1098B . doi : 10.1126 / science.1146230 . ISSN 0036-8075 . PMID 18006738. S2CID 38842741 .
- ^ McLean, Dianne L.; Parsons, Miles JG; Gates, Andrew R.; Benfield, Mark C.; Bond, Todd; Booth, David J.; Bunce, Michael; Fowler, Ashley M.; Harvey, Euan S.; Macreadie, Peter I.; Pattiaratchi, Charitha B.; Rouse, Sally; Partridge, Julian C.; Thomson, Paul G.; Todd, Victoria LG (2020). „Steigerung des wissenschaftlichen Werts von ferngesteuerten Unterwasserfahrzeugen (ROVs) in unseren Ozeanen“ . Frontiers in Marine Science . 7. doi : 10.3389/fmars.2020.00220 . hdl : 10536/DRO/DU:30137212 . ISSN 2296-7745 .
- ^ „Was ist ein ROV? Fakten zur Meeresforschung: NOAA Office of Ocean Exploration and Research“ . oceanexplorer.noaa.gov . Abgerufen am 1. Dezember 2022 .
- ^Wynn, Russell B.; Huvenne, Veerle A. I.; Le Bas, Timothy P.; Murton, Bramley J.; Connelly, Douglas P.; Bett, Brian J.; Ruhl, Henry A.; Morris, Kirsty J.; Peakall, Jeffrey; Parsons, Daniel R.; Sumner, Esther J.; Darby, Stephen E.; Dorrell, Robert M.; Hunt, James E. (2014-06-01). "Autonomous Underwater Vehicles (AUVs): Their past, present and future contributions to the advancement of marine geoscience". Marine Geology. 50th Anniversary Special Issue. 352: 451–468. Bibcode:2014MGeol.352..451W. doi:10.1016/j.margeo.2014.03.012. ISSN 0025-3227.
- ^"Measurements in support of the Deepwater Horizon incident's response effort". spie.org. Retrieved 2022-12-01.
- ^"SERPENT Project | SERPENT Project". serpentproject.com. Retrieved 2022-12-01.
- ^"The Ocean Twilight Zone : Woods Hole Oceanographic Institution". twilightzone.whoi.edu. Retrieved 2022-12-01.
- ^US Department of Commerce, National Oceanic and Atmospheric Administration. "DEEP SEARCH: DEEP Sea Exploration to Advance Research on Coral/Canyon/Cold seep Habitats: NOAA Office of Ocean Exploration and Research". oceanexplorer.noaa.gov. Retrieved 2022-12-01.
- ^"Low res biota images - DEEPEND Consortium". restore.deependconsortium.org. Retrieved 2022-12-01.
- ^"AUV Sentry". National Deep Submergence Facility. Retrieved 2022-12-01.
- ^"ROV Jason". National Deep Submergence Facility. Retrieved 2022-12-01.
- ^"Autosub Long Range - AUVAC". AUVAC: Strengthening the AUV Community. Retrieved 2022-12-01.
- Sweetman , Andrew K.; Thurber, Andrew R.; Smith, Craig R.; Levin, Lisa A.; Mora, Camilo; Wei, Chih - Lin; Gooday, Andrew J .; Jones, Daniel OB; Rex, Michael; Yasuhara, Moriaki; Ingels, Jeroen; Ruhl, Henry A.; Frieder, Christina A.; Danovaro, Roberto; Würzberg, Laura (2017-01-01). Deming, Jody W.; Thomsen, Laurenz (Hrsg.). „Major impacts of climate change on deep-sea benthic ecosystems“ . Elementa: Science of the Anthropocene . 5 : 4. doi : 10.1525/elementa.203 . hdl : 10722/241753 . ISSN 2325-1026 . S2CID 133518883 .


