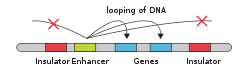

- DNA
- Verstärker
- Promoter
- Gen
- Transkriptionsaktivatorprotein
- Mediatorprotein
- RNA-Polymerase
In der Genetik bezeichnet man als Enhancer einen kurzen DNA- Abschnitt (50–1500 bp ), an den Proteine ( Aktivatoren ) binden können , um die Wahrscheinlichkeit der Transkription eines bestimmten Gens zu erhöhen . [ 1 ] [ 2 ] Diese Proteine werden üblicherweise als Transkriptionsfaktoren bezeichnet . Enhancer wirken cis- aktiv . Sie können bis zu 1 Mbp (1.000.000 bp) vom Gen entfernt liegen, stromaufwärts oder stromabwärts des Startpunkts. [ 2 ] [ 3 ] Im menschlichen Genom gibt es Hunderttausende von Enhancern. [ 2 ] Sie kommen sowohl in Prokaryoten als auch in Eukaryoten vor. [ 4 ] Aktive Enhancer werden typischerweise als Enhancer- oder regulatorische nicht-kodierende RNA transkribiert, deren Expressionsniveau mit dem mRNA-Niveau der Zielgene korreliert. [ 5 ]
Die erste Entdeckung eines eukaryotischen Enhancers erfolgte 1983 im Gen der schweren Kette der Immunglobuline . [ 6 ] [ 7 ] [ 8 ] Dieser Enhancer, der sich im großen Intron befindet , lieferte eine Erklärung für die transkriptionelle Aktivierung rearrangierter Vh-Genpromotoren, während nicht-rearrangierte Vh-Promotoren inaktiv blieben. [ 9 ] In jüngster Zeit wurde gezeigt, dass Enhancer an bestimmten Erkrankungen, beispielsweise der Myelosuppression , beteiligt sind . [ 10 ] Seit 2022 nutzen Wissenschaftler künstliche Intelligenz , um synthetische Enhancer zu entwickeln und diese in tierischen Systemen anzuwenden, zunächst in einer Zelllinie [ 11 ] und ein Jahr später auch in vivo. [ 12 ] [ 13 ]
Standorte
In eukaryotischen Zellen ist die Struktur des Chromatinkomplexes der DNA so gefaltet, dass sie den für prokaryotische DNA charakteristischen superhelikalen Zustand funktionell nachahmt. Obwohl die Enhancer-DNA linear weit vom Gen entfernt sein kann, befindet sie sich räumlich in unmittelbarer Nähe zum Promotor und Gen. Dies ermöglicht die Interaktion mit allgemeinen Transkriptionsfaktoren und der RNA-Polymerase II . [ 14 ] Derselbe Mechanismus gilt für Silencer im eukaryotischen Genom. Silencer sind Antagonisten von Enhancern, die, wenn sie an ihre spezifischen Transkriptionsfaktoren, sogenannte Repressoren , binden, die Transkription des Gens unterdrücken. Silencer und Enhancer können sich in unmittelbarer Nähe zueinander befinden oder sogar in derselben Region liegen; sie unterscheiden sich lediglich durch den Transkriptionsfaktor, an den die jeweilige Region bindet.
Ein Enhancer kann sich stromaufwärts oder stromabwärts des von ihm regulierten Gens befinden . Darüber hinaus muss ein Enhancer nicht in der Nähe des Transkriptionsstartpunkts liegen , um die Transkription zu beeinflussen, da einige mehrere hunderttausend Basenpaare stromaufwärts oder stromabwärts des Startpunkts gefunden wurden. [ 15 ] Enhancer wirken nicht direkt auf die Promotorregion, sondern werden, wie erstmals in In-vivo-Wettbewerbsexperimenten gezeigt wurde, von Aktivatorproteinen gebunden. [ 16 ] [ 17 ] Molekulare Studien zeigten anschließend direkte Interaktionen mit Transkriptionsfaktoren und Cofaktoren, darunter der Mediator-Komplex , der die Polymerase II und die allgemeinen Transkriptionsfaktoren rekrutiert, welche dann mit der Transkription der Gene beginnen. [ 18 ] [ 19 ] Enhancer können auch innerhalb von Introns vorkommen. Die Orientierung eines Enhancers kann sogar umgekehrt werden, ohne seine Funktion zu beeinträchtigen; außerdem kann ein Enhancer ausgeschnitten und an anderer Stelle im Chromosom eingefügt werden und dennoch die Gentranskription beeinflussen. [ 8 ] Dies ist ein Grund dafür, dass Intron- Polymorphismen Auswirkungen haben können, obwohl sie nicht translatiert werden . Enhancer können auch in der Exonregion eines nicht verwandten Gens gefunden werden [ 20 ] [ 21 ] [ 22 ] und auf Gene auf einem anderen Chromosom wirken . [ 23 ]
Enhancer werden von p300-CBP gebunden , und ihre Position kann mittels ChIP-seq gegen diese Familie von Koaktivatoren vorhergesagt werden . [ 24 ] [ 25 ] [ 26 ] [ 27 ]
Rolle bei der Genexpression
Die Genexpression in Säugetieren wird durch zahlreiche cis-regulatorische Elemente reguliert , darunter Kernpromotoren und promotornahe Elemente , die sich in der Nähe der Transkriptionsstartstellen von Genen befinden . Kernpromotoren reichen aus, um die Transkriptionsinitiierung zu steuern, weisen aber im Allgemeinen eine geringe Basalaktivität auf. [ 28 ] Weitere wichtige cis-regulatorische Module befinden sich in DNA-Regionen, die weit von den Transkriptionsstartstellen entfernt liegen. Dazu gehören Enhancer, Silencer , Insulatoren und Tethering-Elemente. [ 29 ] Innerhalb dieser Gruppe von Elementen spielen Enhancer und die mit ihnen assoziierten Transkriptionsfaktoren eine zentrale Rolle bei der Regulation der Genexpression. [ 30 ] Ein Enhancer, der sich in einer vom Promotor eines Gens entfernten DNA-Region befindet, kann einen sehr großen Einfluss auf die Genexpression haben; so kann die Expression mancher Gene durch einen aktivierten Enhancer um das bis zu 100-Fache erhöht werden. [ 31 ]
Enhancer sind Genomabschnitte, die wichtige Genregulationselemente darstellen. Sie steuern zelltypspezifische Genexpressionsprogramme, meist indem sie über weite Strecken Schleifen bilden und so in räumliche Nähe zu den Promotoren ihrer Zielgene gelangen. [ 32 ] Obwohl Hunderttausende von Enhancer-DNA-Abschnitten existieren, [ 2 ] werden für einen bestimmten Gewebetyp nur spezifische Enhancer in die Nähe der von ihnen regulierten Promotoren gebracht. In einer Studie an kortikalen Neuronen des Gehirns wurden 24.937 Schleifen gefunden, die Enhancer zu ihren Zielpromotoren führen. [ 31 ] Mehrere Enhancer, die jeweils oft Zehntausende oder Hunderttausende von Nukleotiden von ihren Zielgenen entfernt liegen, bilden Schleifen zu ihren Zielgenpromotoren und können sich untereinander koordinieren, um die Expression ihres gemeinsamen Zielgens zu steuern. [ 32 ]
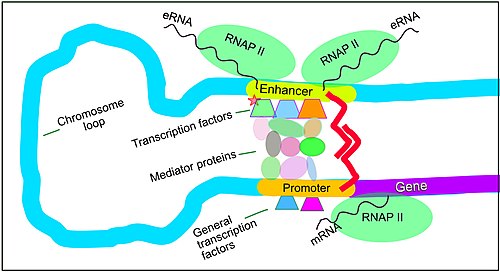
Die schematische Darstellung in diesem Abschnitt zeigt einen Enhancer, der sich in enger räumlicher Nähe zum Promotor eines Zielgens befindet. Die Schleife wird durch ein Dimer eines Konnektorproteins (z. B. ein Dimer von CTCF oder YY1 ) stabilisiert. Ein Teil des Dimers ist an sein Bindungsmotiv auf dem Enhancer, der andere an sein Bindungsmotiv auf dem Promotor verankert (in der Abbildung durch die roten Zickzacklinien dargestellt). [ 33 ] Mehrere zellfunktionsspezifische Transkriptionsfaktoren (in einer menschlichen Zelle gibt es etwa 1600 Transkriptionsfaktoren [ 34 ] ) binden im Allgemeinen an spezifische Motive auf einem Enhancer [ 35 ] . Eine kleine Kombination dieser Enhancer-gebundenen Transkriptionsfaktoren reguliert, wenn sie durch eine DNA-Schleife in die Nähe eines Promotors gebracht werden, die Transkriptionsrate des Zielgens. Der Mediator (ein Komplex, der üblicherweise aus etwa 26 Proteinen in einer interagierenden Struktur besteht) übermittelt regulatorische Signale von den Enhancer-DNA-gebundenen Transkriptionsfaktoren direkt an die an den Promotor gebundene RNA-Polymerase II (Pol II). [ 36 ]
Aktive Enhancer werden in der Regel von beiden DNA-Strängen transkribiert, wobei RNA-Polymerasen in zwei unterschiedliche Richtungen wirken und zwei Enhancer-RNAs (eRNAs) erzeugen (siehe Abbildung). [ 37 ] Ähnlich wie mRNAs sind diese eRNAs üblicherweise durch ihre 5′-Cap-Struktur geschützt . [ 38 ] Ein inaktiver Enhancer kann von einem inaktiven Transkriptionsfaktor gebunden werden. Durch Phosphorylierung des Transkriptionsfaktors kann dieser aktiviert werden, und der aktivierte Transkriptionsfaktor kann dann den gebundenen Enhancer aktivieren (siehe den kleinen roten Stern in der Abbildung, der die Phosphorylierung des an den Enhancer gebundenen Transkriptionsfaktors darstellt). [ 39 ] Ein aktivierter Enhancer beginnt mit der Transkription seiner RNA, bevor er die Transkription der mRNA seines Zielgens aktiviert. [ 40 ]
Hypothesen
Es gibt zwei unterschiedliche Hypothesen zur Informationsverarbeitung, die auf Enhancern stattfindet: [ 41 ].
- Enhancesome – beruhen auf einem hochgradig kooperativen, koordinierten Zusammenwirken und können durch einzelne Punktmutationen deaktiviert werden , die die Bindungsstellen einzelner Proteine verschieben oder entfernen.
- Flexible Genexpressionstafeln – weniger integrativ, mehrere Proteine regulieren unabhängig voneinander die Genexpression und ihre Summe wird von der basalen Transkriptionsmaschinerie abgelesen.
Methoden der Studie
Es gibt zahlreiche Methoden zur Untersuchung von Enhancern, wie z. B. ortsgerichtete Mutagenese , vergleichende Genomik oder In-vitro-Analysen von Transkriptionsfaktor- Bindungsassays (z. B. EMSA ). In jüngster Zeit wurden Hochdurchsatzmethoden etabliert, die es Wissenschaftlern ermöglichen, Tausende von Enhancern parallel zu analysieren. So haben beispielsweise massiv parallele Reporter-Assays (MPRAs) und die Sequenzierung selbsttranskribierender aktiver regulatorischer Regionen ( STARR-seq ) die Charakterisierung von Enhancern revolutioniert. Allerdings zeigten MPRA- und STARR-seq-Datensätze, die in Zelllinien wie K562 generiert wurden , erhebliche Inkonsistenzen in den Enhancer-Bestimmungen verschiedener Labore, die primär auf technische Unterschiede sowohl in den experimentellen Details als auch in der Datenverarbeitung zurückzuführen sind. [ 42 ]
Beispiele im menschlichen Genom
HACNS1
HACNS1 (auch bekannt als CENTG2 und in der Human Accelerated Region 2 lokalisiert) ist ein Gen-Enhancer, der möglicherweise zur Evolution des einzigartigen opponierbaren menschlichen Daumens und eventuell auch zu Modifikationen im Knöchel oder Fuß beigetragen hat , die es dem Menschen ermöglichen, auf zwei Beinen zu gehen . Bisherige Erkenntnisse zeigen, dass von den 110.000 im menschlichen Genom identifizierten Gen-Enhancer-Sequenzen HACNS1 im Laufe der menschlichen Evolution nach der Trennung von den Vorfahren der Schimpansen die größten Veränderungen erfahren hat .
GADD45G
Es wurde ein Enhancer in der Nähe des Gens GADD45g beschrieben, der möglicherweise das Gehirnwachstum bei Schimpansen und anderen Säugetieren, nicht aber beim Menschen, reguliert. [ 43 ] Der GADD45G-Regulator ist bei Mäusen und Schimpansen in Hirnregionen aktiv, in denen sich Zellen des Kortex, des ventralen Vorderhirns und des Thalamus befinden, und könnte die weitere Neurogenese hemmen. Der Verlust des GADD45G-Enhancers beim Menschen könnte zu einer Zunahme bestimmter neuronaler Populationen und zur Vergrößerung des Vorderhirns beitragen.
In der Entwicklungsbiologie
Die Entwicklung, Differenzierung und das Wachstum von Zellen und Geweben erfordern präzise regulierte Genexpressionsmuster . Enhancer fungieren als cis-regulatorische Elemente und vermitteln die räumliche und zeitliche Kontrolle der Entwicklung, indem sie die Transkription in spezifischen Zellen aktivieren und/oder in anderen Zellen unterdrücken. Die spezifische Kombination von Transkriptionsfaktoren und anderen DNA-bindenden Proteinen in einem sich entwickelnden Gewebe bestimmt somit, welche Gene in diesem Gewebe exprimiert werden. Enhancer ermöglichen es, dass dasselbe Gen räumlich und zeitlich in verschiedenen Prozessen eingesetzt wird. [ 44 ]
Identifizierung und Charakterisierung
Traditionell wurden Enhancer mithilfe von Enhancer-Trap- Techniken unter Verwendung eines Reportergens oder durch vergleichende Sequenzanalyse und computergestützte Genomik identifiziert. In genetisch gut zugänglichen Modellen wie der Fruchtfliege Drosophila melanogaster kann beispielsweise ein Reporterkonstrukt wie das lacZ -Gen mithilfe eines P-Element -Transposons zufällig in das Genom integriert werden . Integriert das Reportergen in der Nähe eines Enhancers, spiegelt seine Expression das durch diesen Enhancer gesteuerte Expressionsmuster wider. Durch Anfärben der Fliegen auf LacZ-Expression oder -Aktivität und Klonieren der Sequenz um die Integrationsstelle herum lässt sich somit die Enhancer-Sequenz identifizieren. [ 45 ]
Die Entwicklung genomischer und epigenomischer Technologien hat die Entdeckung von cis-regulatorischen Modulen (CRMs) grundlegend verändert. Next-Generation-Sequenzierung (NGS) ermöglicht nun Hochdurchsatz-Assays zur funktionellen CRM-Entdeckung. Die stetig wachsende Menge verfügbarer Daten, darunter umfangreiche Bibliotheken von Transkriptionsfaktor-Bindungsstellen (TFBS) , Sammlungen annotierter und validierter CRMs sowie umfangreiche epigenetische Daten verschiedenster Zelltypen, macht die präzise computergestützte CRM-Entdeckung zu einem erreichbaren Ziel. Ein Beispiel für einen NGS-basierten Ansatz ist die DNase-Sequenzierung, die die Identifizierung von nukleosomenfreien oder offenen Chromatinregionen ermöglicht, welche CRMs enthalten können. Neuere Techniken wie die ATAC-Sequenzierung benötigen weniger Ausgangsmaterial. Nukleosomenfreie Regionen lassen sich in vivo durch die Expression der Dam-Methylase identifizieren , was eine präzisere Identifizierung zelltypspezifischer Enhancer ermöglicht. [ 46 ] Zu den computergestützten Methoden gehören die vergleichende Genomik , das Clustering bekannter oder vorhergesagter TF-Bindungsstellen und überwachte maschinelle Lernverfahren, die mit bekannten CRMs trainiert wurden. Alle diese Methoden haben sich für die CRM-Entdeckung als effektiv erwiesen, weisen jedoch jeweils eigene Einschränkungen und Besonderheiten auf und sind mit einer unterschiedlich hohen Anzahl falsch-positiver Ergebnisse verbunden. [ 47 ] Im Ansatz der vergleichenden Genomik kann die Sequenzkonservierung nicht -kodierender Regionen auf Enhancer hinweisen. Sequenzen verschiedener Spezies werden aligniert und konservierte Regionen computergestützt identifiziert. [ 48 ] Die identifizierten Sequenzen können dann an ein Reportergen wie das grün fluoreszierende Protein oder lacZ gekoppelt werden, um das In-vivo - Genexpressionsmuster zu bestimmen, das durch den Enhancer nach Injektion in einen Embryo hervorgerufen wird. Die mRNA- Expression des Reporters kann mittels In-situ -Hybridisierung visualisiert werden. Diese Methode liefert ein direkteres Maß für die Enhancer-Aktivität, da sie nicht den komplexen Prozessen der Translation und Proteinfaltung unterliegt . Obwohl vieles auf eine Sequenzkonservierung wichtiger Entwicklungs-Enhancer hindeutet, zeigen andere Studien, dass die Funktion von Enhancern auch bei geringer oder gar keiner primären Sequenzkonservierung erhalten bleiben kann. Beispielsweise weisen die RET- Enhancer beim Menschen nur eine sehr geringe Sequenzkonservierung zu denen im Zebrafisch auf.Dennoch erzeugen die Sequenzen beider Arten nahezu identische Expressionsmuster von Reportergenen im Zebrafisch. [ 48 ] Ähnlich wurde bei stark divergierenden Insekten (getrennt durch etwa 350 Millionen Jahre) festgestellt, dass ähnliche Genexpressionsmuster mehrerer Schlüsselgene durch ähnlich zusammengesetzte CRMs reguliert werden, obwohl diese CRMs keine nennenswerte Sequenzkonservierung aufweisen, die mit Standardmethoden zur Sequenzanalyse wie BLAST nachweisbar wäre . [ 49 ]
Bei der Segmentierung von Insekten
Die Enhancer, die die frühe Segmentierung in Drosophila melanogaster -Embryonen steuern, gehören zu den am besten charakterisierten Entwicklungs-Enhancern. Im frühen Fliegenembryo sind die Gap-Gen- Transkriptionsfaktoren für die Aktivierung und Repression einer Reihe von Segmentierungsgenen, wie beispielsweise der Pair-Rule-Gene , verantwortlich . Die Gap-Gene werden blockweise entlang der antero-posterioren Achse der Fliege zusammen mit anderen maternalen Effekt -Transkriptionsfaktoren exprimiert. Dadurch entstehen Zonen, in denen unterschiedliche Kombinationen von Transkriptionsfaktoren exprimiert werden. Die Pair-Rule-Gene sind durch nicht-exprimierende Zellen voneinander getrennt. Darüber hinaus sind die Expressionsstreifen verschiedener Pair-Rule-Gene um einige Zelldurchmesser versetzt. So erzeugen einzigartige Kombinationen der Pair-Rule-Genexpression räumliche Domänen entlang der antero-posterioren Achse, um jedes der 14 einzelnen Segmente zu etablieren. Der 480 bp lange Enhancer, der für den scharfen zweiten Streifen des Pair-Rule-Gens even-skipped ( eve ) verantwortlich ist, wurde bereits umfassend charakterisiert. Der Enhancer enthält zwölf verschiedene Bindungsstellen für mütterliche und Gap-Gen-Transkriptionsfaktoren. Aktivierende und reprimierende Stellen überlappen sich in ihrer Sequenz. Eve wird nur in einem schmalen Zellstreifen exprimiert, der hohe Konzentrationen der Aktivatoren und niedrige Konzentrationen der Repressoren für diese Enhancer-Sequenz aufweist. Andere Enhancer-Regionen steuern die Eve -Expression in sechs weiteren Zellstreifen im Embryo. [ 50 ]
Bei der Musterbildung der Wirbeltiere
Die Festlegung der Körperachsen ist ein entscheidender Schritt in der tierischen Entwicklung. Während der embryonalen Entwicklung der Maus ist Nodal , ein Ligand der TGF-β- Superfamilie, ein Schlüsselgen, das sowohl die antero-posteriore als auch die links-rechts-Achse des frühen Embryos prägt. Das Nodal -Gen besitzt zwei Enhancer: den proximalen Epiblasten-Enhancer (PEE) und den asymmetrischen Enhancer (ASE). Der PEE liegt stromaufwärts des Nodal-Gens und steuert die Nodal -Expression in dem Abschnitt des Primitivstreifens , der sich zum Primitivknoten differenziert . [ 51 ] Der PEE aktiviert die Nodal-Expression als Reaktion auf eine Kombination aus Wnt-Signalgebung und einem zweiten, unbekannten Signal. Vermutlich bindet ein Mitglied der LEF/TCF-Transkriptionsfaktorfamilie an eine TCF-Bindungsstelle in den Zellen des Primitivknotens. Die Diffusion von Nodal vom Primitivknoten weg bildet einen Gradienten, der die sich ausdehnende antero-posteriore Achse des Embryos prägt. [ 52 ] Die ASE ist ein intronischer Enhancer, an den der Forkhead-Domänen -Transkriptionsfaktor Fox1 bindet. In der frühen Entwicklungsphase etabliert die Fox1-gesteuerte Nodal-Expression das viszerale Endoderm. Später in der Entwicklung treibt die Bindung von Fox1 an die ASE die Nodal -Expression auf der linken Seite des lateralen Plattenmesoderms an und etabliert so die für die asymmetrische Organentwicklung im Mesoderm notwendige Links-Rechts-Asymmetrie. [ 53 ]
Die Etablierung der drei Keimblätter während der Gastrulation ist ein weiterer entscheidender Schritt in der tierischen Entwicklung. Jedes der drei Keimblätter weist einzigartige Genexpressionsmuster auf, die seine Differenzierung und Entwicklung fördern. Das Endoderm wird früh in der Entwicklung durch die Expression von Gata4 festgelegt , und Gata4 steuert später die Darmmorphogenese. Die Gata4 -Expression wird im frühen Embryo durch einen intronischen Enhancer reguliert, der an den Forkhead-Domänen-Transkriptionsfaktor FoxA2 bindet. Anfänglich bewirkt der Enhancer eine breite Genexpression im gesamten Embryo, die jedoch schnell auf das Endoderm beschränkt wird. Dies deutet darauf hin, dass weitere Repressoren an dieser Beschränkung beteiligt sein könnten. Im späteren Verlauf der Entwicklung beschränkt derselbe Enhancer die Expression auf die Gewebe, aus denen Magen und Pankreas entstehen. Ein zusätzlicher Enhancer ist für die Aufrechterhaltung der Gata4- Expression im Endoderm während der intermediären Stadien der Darmentwicklung verantwortlich. [ 54 ]
Mehrere Verstärker fördern die Entwicklungsrobustheit
Einige Gene, die an wichtigen Entwicklungsprozessen beteiligt sind, besitzen mehrere Enhancer mit sich überschneidenden Funktionen. Sekundäre Enhancer, auch „ Schatten-Enhancer “ genannt, können viele Kilobasen vom primären Enhancer entfernt gefunden werden (primär bezieht sich üblicherweise auf den zuerst entdeckten Enhancer, der oft näher am von ihm regulierten Gen liegt). Jeder Enhancer allein bewirkt nahezu identische Genexpressionsmuster. Sind die beiden Enhancer also tatsächlich redundant? Jüngste Studien haben gezeigt, dass mehrere Enhancer es Fruchtfliegen ermöglichen, Umweltveränderungen wie einen Temperaturanstieg zu überleben. Bei erhöhter Temperatur kann ein einzelner Enhancer manchmal nicht das vollständige Expressionsmuster steuern, während das Vorhandensein beider Enhancer eine normale Genexpression ermöglicht. [ 55 ]
Evolution der Entwicklungsmechanismen
Ein Forschungsschwerpunkt der evolutionären Entwicklungsbiologie („Evo-Devo“) ist die Untersuchung der Rolle von Enhancern und anderen cis-regulatorischen Elementen bei der Erzeugung morphologischer Veränderungen durch entwicklungsbedingte Unterschiede zwischen Arten.
Stichling Pitx1
Jüngste Arbeiten untersuchten die Rolle von Enhancern bei morphologischen Veränderungen im Dreistacheligen Stichling . Stichlinge kommen sowohl im Meer als auch im Süßwasser vor, doch haben viele Süßwasserpopulationen ihre Bauchflossen (Anhängsel, die den Hinterbeinen der Vierfüßer homolog sind) vollständig verloren. Pitx1 ist ein Homeobox -Gen, das an der Entwicklung der Hinterbeine bei Wirbeltieren beteiligt ist. Vorläufige genetische Analysen deuteten darauf hin, dass Veränderungen in der Expression dieses Gens für die Reduktion der Bauchflossen bei Stichlingen verantwortlich sind. Fische, die ausschließlich das Süßwasser- Allel von Pitx1 exprimieren, besitzen keine Bauchflossenstacheln, während Fische mit einem Meeres-Allel diese behalten. Eine detailliertere Charakterisierung zeigte, dass eine 500 Basenpaare lange Enhancer-Sequenz die Pitx1- Expression in der Anlage der Hinterflosse aktiviert . Dieser Enhancer befindet sich in der Nähe einer chromosomalen Fragilitätsstelle – einer DNA-Sequenz, die aufgrund ungenauer DNA-Reparaturprozesse leichter bricht und daher mit höherer Wahrscheinlichkeit mutiert . Diese Fragilitätsstelle hat in isolierten Süßwasserpopulationen wiederholt unabhängig voneinander zum Verlust des Enhancers geführt, der für die Pitx1 -Expression in den Beckenstacheln verantwortlich ist. Ohne diesen Enhancer entwickeln Süßwasserfische keine Beckenstacheln. [ 56 ]
Evolution des Flügelmusters bei Drosophila
Pigmentierungsmuster gehören zu den auffälligsten und am einfachsten zu erfassenden Unterschieden zwischen verschiedenen Tierarten. Die Pigmentierung des Drosophila- Flügels hat sich als besonders geeignetes System zur Untersuchung der Entwicklung komplexer Pigmentierungsphänotypen erwiesen. Der Flügel von Drosophila guttifera weist zwölf dunkle Pigmentflecken und vier hellere graue Bereiche zwischen den Flügeladern auf. Die Pigmentflecken entstehen durch die Expression des Gens yellow , dessen Produkt schwarzes Melanin produziert . Jüngste Arbeiten haben gezeigt, dass zwei Enhancer im Gen yellow die Genexpression genau in diesem Muster bewirken: Der Enhancer für die Pigmentflecken steuert die Reportergenexpression in den zwölf Flecken, und der Enhancer für die Graustufen zwischen den Flügeladern steuert die Reportergenexpression in den vier unterschiedlichen Bereichen. Diese beiden Enhancer reagieren auf den Wnt-Signalweg , der durch die Expression des Gens wingless an allen pigmentierten Stellen aktiviert wird . Im Zuge der Evolution des komplexen Pigmentierungsphänotyps entwickelte das Gen yellow somit Enhancer, die auf das wingless-Signal reagieren, und die Expression von wingless entwickelte sich an neuen Stellen, um neuartige Flügelmuster hervorzubringen. [ 57 ]
Bei Entzündungen und Krebs
Jede Zelle enthält typischerweise mehrere hundert Enhancer einer speziellen Klasse, die sich über viele Kilobasen lange DNA-Sequenzen erstrecken und als „ Super-Enhancer “ bezeichnet werden. [ 58 ] Diese Enhancer enthalten zahlreiche Bindungsstellen für sequenzspezifische, induzierbare Transkriptionsfaktoren und regulieren die Expression von Genen, die an der Zelldifferenzierung beteiligt sind. [ 59 ] Während einer Entzündung fördert der Transkriptionsfaktor NF-κB die Chromatin-Remodellierung, indem er Kofaktoren selektiv von stark besetzten Enhancern umverteilt und dadurch Gene unterdrückt, die für die Aufrechterhaltung der Zellidentität verantwortlich sind und deren Expression sie verstärken. Gleichzeitig aktiviert diese NF-κB-vermittelte Remodellierung und Umverteilung andere Enhancer, die Veränderungen der Zellfunktion durch die Entzündung steuern. [ 60 ] [ 61 ] Infolgedessen reprogrammiert die Entzündung Zellen und verändert ihre Interaktionen mit dem restlichen Gewebe und dem Immunsystem. [ 62 ] [ 63 ] Bei Krebs sind Proteine, die die NF-κB-Aktivität kontrollieren, fehlreguliert, wodurch maligne Zellen ihre Abhängigkeit von Interaktionen mit dem umliegenden Gewebe verringern und ihre Überwachung durch das Immunsystem erschwert wird . [ 64 ] [ 65 ]
Geschichte
1980 beschrieben Max Birnstiel und Rudolf Grosschedl einen Enhancer, den sie als „Modulator“ bezeichneten. [ 66 ] 1981 wurde ein Enhancer beschrieben, der vom Polyomavirus SV40 stammt und zwei identische, jeweils 72 bp lange Abschnitte, sogenannte 72-bp-Repeats, enthält. Es wurde gezeigt, dass jedes der beiden Segmente für sich genommen eine schwache verstärkende Wirkung auf den Promotor hat, zusammen jedoch die Aktivität um ein Vielfaches erhöhen. [ 67 ] [ 68 ] [ 69 ]
Entwicklung von Enhancern in der synthetischen Biologie
Synthetische regulatorische Elemente wie Enhancer versprechen ein wirksames Instrument zu sein, um Genprodukte gezielt in bestimmte Zelltypen zu lenken und so Krankheiten zu behandeln, indem entweder nützliche Gene aktiviert oder abweichende Zellzustände gestoppt werden.
Seit 2022 haben künstliche Intelligenz und Transferlernstrategien zu einem besseren Verständnis der Merkmale regulatorischer DNA-Sequenzen, der Vorhersage und des Designs synthetischer Enhancer geführt. [ 70 ] [ 71 ]
Aufbauend auf Arbeiten in der Zellkultur [ 70 ] wurden synthetische Enhancer im Jahr 2023 erfolgreich auf ganze lebende Organismen angewendet. Mithilfe tiefer neuronaler Netze simulierten Wissenschaftler die Evolution von DNA-Sequenzen, um die Entstehung von Merkmalen zu analysieren, die der Enhancer-Funktion zugrunde liegen. Dies ermöglichte die Entwicklung und Herstellung einer Reihe funktionsfähiger synthetischer Enhancer für verschiedene Zelltypen des Fruchtfliegenhirns [ 13 ] . Ein zweiter Ansatz trainierte Modelle der künstlichen Intelligenz anhand von Einzelzell-DNA-Zugänglichkeitsdaten und übertrug die gelernten Modelle auf die Vorhersage von Enhancern für ausgewählte Gewebe im Fruchtfliegenembryo. Diese Enhancer-Vorhersagemodelle wurden verwendet, um synthetische Enhancer für das Nervensystem, das Gehirn, die Muskulatur, die Epidermis und den Darm zu entwickeln [ 12 ] .
Siehe auch
Referenzen
- ^ Blackwood EM, Kadonaga JT (Juli 1998). „Going the distance: a current view of enhancer action“. Science . 281 (5373): 60–63 . Bibcode : 1998Sci...281...60. doi : 10.1126 / science.281.5373.60 . PMID 9679020. S2CID 11666739 .
- ^ a b c d Pennacchio LA, Bickmore W, Dean A, Nobrega MA, Bejerano G (April 2013). „Enhancer: fünf wesentliche Fragen“ . Nature Reviews Genetics . 14 (4): 288–295 . doi : 10.1038/nrg3458 . PMC 4445073. PMID 23503198 .
- ^ Maston GA, Evans SK, Green MR (2006). „ Transkriptionelle regulatorische Elemente im menschlichen Genom“ . Annual Review of Genomics and Human Genetics . 7 : 29–59 . doi : 10.1146/annurev.genom.7.080505.115623 . PMID 16719718. S2CID 12346247 .
- ^ Kulaeva OI, Nizovtseva EV, Polikanov YS, Ulianov SV, Studitsky VM (Dezember 2012). „Distant activation of transcription: mechanisms of enhancer action“ . Molecular and Cellular Biology . 32 (24): 4892–4897 . doi : 10.1128/MCB.01127-12 . PMC 3510544. PMID 23045397 .
- ^ Burren OS, Rubio García A, Javierre BM, Rainbow DB, Cairns J, Cooper NJ, et al. (4. September 2017). „ Chromosomenkontakte in aktivierten T-Zellen identifizieren Kandidatengene für Autoimmunerkrankungen“ . Genome Biology . 18 (1): 165. doi : 10.1186/s13059-017-1285-0 . ISSN 1474-760X . PMC 5584004. PMID 28870212 .
- Mercola M, Wang XF, Olsen J, Calame K (August 1983). „Transkriptionelle Enhancer-Elemente im Locus der schweren Kette des Maus-Immunglobulins“. Science . 221 (4611): 663–665 . Bibcode : 1983Sci...221..663M . doi : 10.1126/science.6306772 . PMID 6306772 .
- ^ Banerji J, Olson L, Schaffner W (Juli 1983). „Ein lymphozytenspezifischer zellulärer Enhancer befindet sich stromabwärts der Joining-Region in Immunglobulin-Schwerkettengenen“. Cell . 33 ( 3): 729–740 . doi : 10.1016/0092-8674(83)90015-6 . PMID 6409418. S2CID 23981549 .
- ^ a b Gillies SD, Morrison SL, Oi VT, Tonegawa S (Juli 1983). „Ein gewebespezifisches Transkriptions-Enhancer-Element befindet sich im Hauptintron eines rearrangierten Immunglobulin-Schwerketten-Gens“. Cell . 33 ( 3): 717–728 . doi : 10.1016/0092-8674(83)90014-4 . PMID 6409417. S2CID 40313833 .
- ^ Hauptman G, Reichert MC, Abdal Rhida MA, Evans TA (Dezember 2022). „Charakterisierung von Enhancer-Fragmenten in Drosophila robo2 “ . Fly . 16 (1): 312–346 . bioRxiv 10.1101/2022.08.01.502399 . doi : 10.1080/ 19336934.2022.2126259 . PMC 9559326. PMID 36217698 .
- ^ Zhigulev A, Norberg Z, Cordier J, Spalinskas R, Bassereh H, Björn N, et al. (März 2024). „ Enhancer-Mutationen modulieren den Schweregrad der chemotherapieinduzierten Myelosuppression“ . Life Science Alliance . 7 (3) e202302244. doi : 10.26508/lsa.202302244 . PMC 10796589. PMID 38228368 .
- ^ de Almeida BP, Reiter F, Pagani M, Stark A (Mai 2022). „DeepSTARR sagt die Aktivität von Enhancern anhand der DNA-Sequenz voraus und ermöglicht das De-novo-Design synthetischer Enhancer“. Nature Genetics . 54 (5): 613–624 . doi : 10.1038/s41588-022-01048-5 . PMID 35551305 .
- ^ a b de Almeida BP, Schaub C, Pagani M, Secchia S, Furlong EE, Stark A (Februar 2024). „Gezieltes Design synthetischer Enhancer für ausgewählte Gewebe im Drosophila-Embryo“ . Nature . 626 (7997): 207–211 . Bibcode : 2024Natur.626..207D . doi : 10.1038/s41586-023-06905-9 . PMC 10830412. PMID 38086418 .
- ^ a b Taskiran II, Spanier KI, Dickmänken H, Kempynck N, Pančíková A, Ekşi EC, et al. (Februar 2024). „Zelltypspezifisches Design synthetischer Enhancer“ . Nature . 626 ( 7997): 212–220 . Bibcode : 2024Natur.626..212T . doi : 10.1038/s41586-023-06936-2 . PMC 10830415. PMID 38086419 .
- ^ Maston GA, Evans SK, Green MR (1. Januar 2006). „Transkriptionelle regulatorische Elemente im menschlichen Genom“ . Annual Review of Genomics and Human Genetics . 7 (1): 29–59 . doi : 10.1146/annurev.genom.7.080505.115623 . PMID 16719718. S2CID 12346247 .
- ^ Smemo S, Tena JJ, Kim KH, Gamazon ER, Sakabe NJ, Gómez-Marín C, et al. (März 2014). „Obesity-associated variants within FTO form long-range functional connections with IRX3“ . Nature . 507 (7492): 371–375 . Bibcode : 2014Natur.507..371S . doi : 10.1038 / nature13138 . PMC 4113484. PMID 24646999 .
- ^ Mercola M, Goverman J, Mirell C, Calame K (Januar 1985). „Der Immunglobulin-Schwerketten-Enhancer benötigt einen oder mehrere gewebespezifische Faktoren“. Science . 227 (4684): 266–270 . Bibcode : 1985Sci...227..266M . doi : 10.1126/science.3917575 . PMID 3917575 .
- ^ Scholer H, Haslinger A, Heguy A, Holtgreve H, Karin M (April 1986). „In-vivo-Wettbewerb zwischen einem Metallothionein-Regulationselement und dem SV40-Enhancer“. Science . 232 (4746): 76–80 . Bibcode : 1986Sci...232...76S . doi : 10.1126/science.3006253 . PMID 3006253 .
- ^ Kuras L, Borggrefe T, Kornberg RD (November 2003). „Assoziation des Mediator-Komplexes mit Enhancern aktiver Gene“ . Proceedings of the National Academy of Sciences of the United States of America . 100 (24): 13887–13891 . Bibcode : 2003PNAS..10013887K . doi : 10.1073/pnas.2036346100 . PMC 283516. PMID 14623974 .
- ^ Ramasamy S, Aljahani A, Karpinska MA, Cao TB, Velychko T, Cruz JN, et al. (Juli 2023). „Der Mediator-Komplex reguliert Enhancer-Promoter-Interaktionen“ . Nature Structural & Molecular Biology . 30 (7): 991–1000 . doi : 10.1038/s41594-023-01027-2 . PMC 10352134. PMID 37430065 .
- ^ Dong X, Navratilova P, Fredman D, Drivenes Ø, Becker TS, Lenhard B (März 2010). „Exonische Überreste der Genomverdopplung enthüllen die cis-regulatorische Funktion kodierender Exons“ . Nucleic Acids Research . 38 (4): 1071–1085 . doi : 10.1093/nar/gkp1124 . PMC 2831330. PMID 19969543 .
- ^ Birnbaum RY, Clowney EJ, Agamy O, Kim MJ, Zhao J, Yamanaka T, et al. (Juni 2012). „Codierende Exons fungieren als gewebespezifische Enhancer benachbarter Gene“ . Genome Research . 22 (6): 1059–1068 . doi : 10.1101/gr.133546.111 . PMC 3371700. PMID 22442009 .
- ^ Eichenlaub MP, Ettwiller L (November 2011). „De novo genesis of enhancers in vertebrates“ . PLOS Biology . 9 (11) e1001188. doi : 10.1371/journal.pbio.1001188 . PMC 3206014. PMID 22069375 .
- ^ Spilianakis CG, Lalioti MD, Town T, Lee GR, Flavell RA (Juni 2005). „Interchromosomale Assoziationen zwischen alternativ exprimierten Loci“. Nature . 435 ( 7042): 637–645 . Bibcode : 2005Natur.435..637S . doi : 10.1038/nature03574 . PMID 15880101. S2CID 1755326 .
- ^ Wang Z, Zang C, Cui K, Schones DE, Barski A, Peng W, et al. (September 2009). „Genomweite Kartierung von HATs und HDACs zeigt unterschiedliche Funktionen in aktiven und inaktiven Genen“ . Cell . 138 (5): 1019–1031 . doi : 10.1016 / j.cell.2009.06.049 . PMC 2750862. PMID 19698979 .
- ^ Heintzman ND, Hon GC, Hawkins RD, Kheradpour P, Stark A, Harp LF, et al. (Mai 2009). „Histonmodifikationen an menschlichen Enhancern spiegeln die globale zelltypspezifische Genexpression wider“ . Nature . 459 ( 7243): 108–112 . Bibcode : 2009Natur.459..108H . doi : 10.1038/nature07829 . PMC 2910248. PMID 19295514 .
- Visel A, Blow MJ, Li Z, Zhang T, Akiyama JA, Holt A, et al. (Februar 2009). „ChIP-seq sagt die gewebespezifische Aktivität von Enhancern präzise voraus“ . Nature . 457 ( 7231): 854–858 . Bibcode : 2009Natur.457..854V . doi : 10.1038/nature07730 . PMC 2745234. PMID 19212405 .
- Blow MJ, McCulley DJ, Li Z, Zhang T, Akiyama JA, Holt A, et al. (September 2010). „ChIP-Seq-Identifizierung schwach konservierter Herz-Enhancer“ . Nature Genetics . 42 (9): 806–810 . doi : 10.1038/ng.650 . PMC 3138496. PMID 20729851 .
- Haberle V, Stark A (Oktober 2018). „ Eukaryotische Kernpromotoren und die funktionelle Grundlage der Transkriptionsinitiierung“ . Nature Reviews Molecular Cell Biology . 19 (10): 621–637 . doi : 10.1038/s41580-018-0028-8 . PMC 6205604. PMID 29946135 .
- ^ Verheul TC, van Hijfte L, Perenthaler E, Barakat TS (2020). „The Why of YY1: Mechanisms of Transcriptional Regulation by Yin Yang 1“ . Frontiers in Cell and Developmental Biology . 8 592164. doi : 10.3389/ fcell.2020.592164 . PMC 7554316. PMID 33102493 .
- Spitz F, Furlong EE (September 2012). „Transkriptionsfaktoren: von der Enhancer-Bindung zur Entwicklungskontrolle“. Nature Reviews Genetics . 13 (9): 613–626 . doi : 10.1038/nrg3207 . PMID 22868264. S2CID 205485256 .
- ^ a b Beagan JA, Pastuzyn ED, Fernandez LR, Guo MH, Feng K, Titus KR, et al. (Juni 2020). „ Dreidimensionale Genomrestrukturierung über Zeitskalen der aktivitätsinduzierten neuronalen Genexpression“ . Nature Neuroscience . 23 (6): 707–717 . doi : 10.1038/s41593-020-0634-6 . PMC 7558717. PMID 32451484 .
- ^ a b Schoenfelder S, Fraser P (August 2019). „Langstrecken-Enhancer-Promoter-Kontakte in der Genexpressionskontrolle“. Nature Reviews Genetics . 20 (8): 437–455 . doi : 10.1038/s41576-019-0128-0 . PMID 31086298. S2CID 152283312 .
- ^ Weintraub AS, Li CH, Zamudio AV, Sigova AA, Hannett NM, Day DS, et al. (Dezember 2017). „YY1 ist ein Strukturregulator von Enhancer-Promoter-Schleifen“ . Cell . 171 ( 7): 1573–1588.e28. doi : 10.1016/j.cell.2017.11.008 . PMC 5785279. PMID 29224777 .
- ^ Lambert SA, Jolma A, Campitelli LF, Das PK, Yin Y, Albu M, et al. (Februar 2018). „Die menschlichen Transkriptionsfaktoren“ . Cell . 172 (4): 650–665 . doi : 10.1016/j.cell.2018.01.029 . PMID 29425488 .
- ^ Grossman SR, Engreitz J, Ray JP, Nguyen TH, Hacohen N, Lander ES (Juli 2018). „Positionsspezifität verschiedener Transkriptionsfaktorklassen innerhalb von Enhancern“ . Proceedings of the National Academy of Sciences of the United States of America . 115 (30): E7222– E7230 . Bibcode : 2018PNAS..115E7222G . doi : 10.1073/pnas.1804663115 . PMC 6065035. PMID 29987030 .
- ^ Allen BL, Taatjes DJ (März 2015). „Der Mediator-Komplex: ein zentraler Integrator der Transkription“ . Nature Reviews Molecular Cell Biology . 16 (3): 155–166 . doi : 10.1038/nrm3951 . PMC 4963239. PMID 25693131 .
- ^ Mikhaylichenko O, Bondarenko V, Harnett D, Schor IE, Males M, Viales RR, et al. (Januar 2018). „Der Grad der Enhancer- oder Promotoraktivität spiegelt sich in der Menge und Richtung der eRNA-Transkription wider.“ Genes & Development . 32 (1): 42–57 . doi : 10.1101/gad.308619.117 . PMC 5828394. PMID 29378788 .
- ^ Yao L, Liang J, Ozer A, Leung AK, Lis JT, Yu H (Juli 2022). „Ein Vergleich experimenteller Assays und analytischer Methoden zur genomweiten Identifizierung aktiver Enhancer“ . Nature Biotechnology . 40 (7): 1056–1065 . doi : 10.1038/s41587-022-01211-7 . PMC 9288987. PMID 35177836 .
- ^ Li QJ, Yang SH, Maeda Y, Sladek FM, Sharrocks AD, Martins-Green M (Januar 2003). „ MAP-Kinase-Phosphorylierungs-abhängige Aktivierung von Elk-1 führt zur Aktivierung des Koaktivators p300“ . The EMBO Journal . 22 (2): 281–291 . doi : 10.1093/emboj/cdg028 . PMC 140103. PMID 12514134 .
- ^ Carullo NV, Phillips III RA, Simon RC, Soto SA, Hinds JE, Salisbury AJ, et al. (September 2020). „Enhancer-RNAs sagen regulatorische Verbindungen zwischen Enhancern und Genen voraus und sind entscheidend für die Enhancer-Funktion in neuronalen Systemen“ . Nucleic Acids Research . 48 (17): 9550–9570 . doi : 10.1093/nar/gkaa671 . PMC 7515708. PMID 32810208 .
- ^ Arnosti DN, Kulkarni MM (April 2005). „Transkriptionelle Enhancer: Intelligente Enhancesome oder flexible Werbeflächen?“ ( PDF) . Journal of Cellular Biochemistry . 94 (5): 890–898 . doi : 10.1002/jcb.20352 . PMID 15696541. S2CID 32405464. Archiviert vom Original (PDF) am 21. Juli 2006. Abgerufen am 8. August 2019 .
- ^ Zhang J, Leung AK, Zhu Y, Yao L, Willis A, Pan X, et al. (3. November 2025). „Umfassende Evaluierung verschiedener massiv paralleler Reporter-Assays zur funktionellen Charakterisierung menschlicher Enhancer im gesamten Genom“ . Genome Biology . 26 (1): 378. doi : 10.1186/s13059-025-03828-8 . ISSN 1474-760X . PMC 12581240. PMID 41185025 .
- ^ McLean CY, Reno PL, Pollen AA, Bassan AI, Capellini TD, Guenther C, et al. (März 2011). „Menschenspezifischer Verlust regulatorischer DNA und die Evolution menschlicher Merkmale“ . Nature . 471 (7337): 216–219 . Bibcode : 2011Natur.471..216M . doi : 10.1038/ nature09774 . PMC 3071156. PMID 21390129 .
- ^ Barrett LW, Fletcher S, Wilton SD (November 2012). „Regulation der eukaryotischen Genexpression durch die untranslatierten Genregionen und andere nicht-kodierende Elemente“ . Cellular and Molecular Life Sciences . 69 (21): 3613–3634 . doi : 10.1007/s00018-012-0990-9 . PMC 3474909. PMID 22538991 .
- ^ Hartenstein V, Jan YN (Juni 1992). „Untersuchung der Drosophila-Embryogenese mit P-lacZ-Enhancer-Trap-Linien“. Roux ’s Archives of Developmental Biology . 201 (4): 194–220 . doi : 10.1007/BF00188752 . PMID 28305845. S2CID 25759655 .
- ^ Aughey GN, Estacio Gomez A, Thomson J, Yin H, Southall TD (Februar 2018). „CATaDa zeigt globale Umstrukturierung der Chromatinzugänglichkeit während der Stammzelldifferenzierung in vivo“ . eLife . 7 e32341. doi : 10.7554/eLife.32341 . PMC 5826290. PMID 29481322 .
- ^ Suryamohan K, Halfon MS (2014). „ Identifizierung transkriptioneller cis-regulatorischer Module in tierischen Genomen“ . Wiley Interdisciplinary Reviews Developmental Biology . 4 (2): 59–84 . doi : 10.1002/wdev.168 . PMC 4339228. PMID 25704908 .
- Visel A , Bristow J, Pennacchio LA (Februar 2007). „Enhancer identification through comparative genomics“ . Seminars in Cell & Developmental Biology . 18 (1): 140–152 . doi : 10.1016/j.semcdb.2006.12.014 . PMC 1855162. PMID 17276707 .
- ^ „Hinweise auf tiefgreifende regulatorische Ähnlichkeiten in frühen Entwicklungsprogrammen hochgradig divergenter Insekten“ . Genome Biology and Evolution. Archiviert vom Original am 10. Juli 2015.
- ^ Borok MJ, Tran DA, Ho MC, Drewell RA (Januar 2010). „Die regulatorischen Schalter der Entwicklung: Erkenntnisse aus der Enhancer-Evolution bei Drosophila“ . Development . 137 ( 1): 5–13 . doi : 10.1242/dev.036160 . PMC 2796927. PMID 20023155 .
- ^ Norris DP, Robertson EJ (Juni 1999). „Asymmetrische und knotenspezifische Expressionsmuster in Knoten werden durch zwei unterschiedliche cis-wirkende regulatorische Elemente gesteuert“ . Genes & Development . 13 (12): 1575–1588 . doi : 10.1101/gad.13.12.1575 . PMC 316799. PMID 10385626 .
- ^ Granier C, Gurchenkov V, Perea-Gomez A, Camus A, Ott S, Papanayotou C, et al. (Januar 2011). „Nodale cis-regulatorische Elemente enthüllen Heterogenität des Epiblasten und des primitiven Endoderms im peri-implantativen Maus-Embryo“ . Developmental Biology . 349 (2): 350–362 . doi : 10.1016/j.ydbio.2010.10.036 . PMID 21047506 .
- ^ Norris DP, Brennan J, Bikoff EK, Robertson EJ (Juli 2002). „Der Foxh1-abhängige autoregulatorische Enhancer kontrolliert den Spiegel der Nodal-Signale im Maus-Embryo“. Development . 129 ( 14): 3455–3468 . doi : 10.1242/dev.129.14.3455 . PMID 12091315. S2CID 24426844 .
- ^ Rojas A, Schachterle W, Xu SM, Martín F, Black BL (Oktober 2010). „Direkte transkriptionelle Regulation von Gata4 während der frühen Endodermspezifizierung wird durch die Bindung von FoxA2 an einen intronischen Enhancer kontrolliert“ . Developmental Biology . 346 (2): 346–355 . doi : 10.1016/j.ydbio.2010.07.032 . PMC 2945415. PMID 20692247 .
- ^ Perry MW, Boettiger AN, Bothma JP, Levine M (September 2010). „Schatten-Enhancer fördern die Robustheit der Gastrulation bei Drosophila“ . Current Biology . 20 (17): 1562–1567 . Bibcode : 2010CBio...20.1562P . doi : 10.1016/j.cub.2010.07.043 . PMC 4257487. PMID 20797865 .
- ^ Chan YF, Marks ME, Jones FC, Villarreal G, Shapiro MD, Brady SD, et al. (Januar 2010). „Adaptive Evolution der Beckenreduktion bei Stichlingen durch wiederholte Deletion eines Pitx1-Enhancers“ . Science . 327 ( 5963): 302–305 . Bibcode : 2010Sci...327..302C . doi : 10.1126/science.1182213 . PMC 3109066. PMID 20007865 .
- Werner T, Koshikawa S, Williams TM, Carroll SB (April 2010). „Generation of a novel wing colour pattern by the Wingless morphogen“. Nature . 464 ( 7292): 1143–1148 . Bibcode : 2010Natur.464.1143W . doi : 10.1038/nature08896 . PMID 20376004. S2CID 4407744 .
- Whyte WA, Orlando DA, Hnisz D, Abraham BJ, Lin CY, Kagey MH et al. (April 2013). „ Master-Transkriptionsfaktoren und Mediatoren etablieren Super-Enhancer an wichtigen Zellidentitätsgenen“ . Cell . 153 (2): 307–319 . doi : 10.1016/j.cell.2013.03.035 . PMC 3653129. PMID 23582322 .
- ^ Parker SC, Stitzel ML, Taylor DL, Orozco JM, Erdos MR, Akiyama JA, et al. (Oktober 2013). „Chromatin-Stretch-Enhancer-Zustände steuern die zellspezifische Genregulation und bergen Risikovarianten für menschliche Krankheiten“ . Proceedings of the National Academy of Sciences of the United States of America . 110 (44): 17921–17926 . Bibcode : 2013PNAS..11017921P . doi : 10.1073 / pnas.1317023110 . PMC 3816444. PMID 24127591 .
- ^ Brown JD, Lin CY, Duan Q, Griffin G, Federation A, Paranal RM, et al. (Oktober 2014). „NF-κB dirigiert die dynamische Bildung von Super-Enhancern bei Entzündungen und Atherogenese“ . Molecular Cell . 56 (2): 219–231 . doi : 10.1016/j.molcel.2014.08.024 . PMC 4224636. PMID 25263595 .
- ^ Schmidt SF, Larsen BD, Loft A, Nielsen R, Madsen JG, Mandrup S (September 2015). „Akute TNF-induzierte Repression von Zellidentitätsgenen wird durch NFκB-gesteuerte Umverteilung von Kofaktoren von Super-Enhancern vermittelt“ . Genome Research . 25 (9): 1281–1294 . doi : 10.1101/gr.188300.114 . PMC 4561488. PMID 26113076 .
- ^ Chatterjee B, Banoth B, Mukherjee T, Taye N, Vijayaragavan B, Chattopadhyay S, et al. (Dezember 2016). „Spätphasensynthese von IκBα isoliert den TLR4-aktivierten kanonischen NF-κB-Signalweg von der nicht-kanonischen NF-κB-Signalgebung in Makrophagen“ . Science Signaling . 9 (457): ra120. doi : 10.1126/scisignal.aaf1129 . PMC 5260935. PMID 27923915 .
- ^ Vahedi G, Kanno Y, Furumoto Y, Jiang K, Parker SC, Erdos MR, et al. (April 2015). „Super-Enhancer grenzen krankheitsassoziierte regulatorische Knotenpunkte in T-Zellen ab“ . Nature . 520 ( 7548): 558–562 . Bibcode : 2015Natur.520..558V . doi : 10.1038/nature14154 . PMC 4409450. PMID 25686607 .
- ^ Vlahopoulos SA, Cen O, Hengen N, Agan J, Moschovi M, Critselis E, et al. (August 2015). „Dynamisches aberrantes NF-κB fördert die Tumorentstehung: ein neues Modell unter Einbeziehung der Mikroumgebung“ . Cytokine & Growth Factor Reviews . 26 (4): 389–403 . doi : 10.1016/j.cytogfr.2015.06.001 . PMC 4526340. PMID 26119834 .
- ^ Zou Z, Huang B, Wu X, Zhang H, Qi J, Bradner J, et al. (Mai 2014). „Brd4 erhält die konstitutive Aktivität von NF-κB in Krebszellen durch Bindung an acetyliertes RelA aufrecht“ . Oncogene . 33 (18): 2395–2404 . doi : 10.1038/onc.2013.179 . PMC 3913736. PMID 23686307 .
- Grosschedl , R., und Birnstiel, ML (1980). „Spacer-DNA-Sequenzen stromaufwärts der TATAAATA-Sequenz sind essentiell für die Förderung der H2A-Histon-Gentranskription in vivo“ . Proceedings of the National Academy of Sciences USA . 77 (12): 7102–6 . Bibcode : 1980PNAS...77.7102G . doi : 10.1073/pnas.77.12.7102 . PMC 350449 .
{{cite journal}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - ^ P. Gruss, R. Dhar, G. Khoury (1981). „Simian virus 40 tandem repeated sequences as an element of the early promoter“ . Proceedings of the National Academy of Sciences . 78 (2): 943–947 . Bibcode : 1981PNAS...78..943G . doi : 10.1073/pnas.78.2.943 . PMC 319921. PMID 6262784 .
{{cite journal}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - ^ C. Benoist, P. Chambon (1981). „In vivo sequence requirements of the SV40 early promotor region“. Nature . 290 (5804): 304–310 . Bibcode : 1981Natur.290..304B . doi : 10.1038/290304a0 . PMID 6259538 .
- ^ J. Banerji, S. Rusconi, W. Schaffner (1981). „Die Expression eines Beta-Globin-Gens wird durch entfernte SV40-DNA-Sequenzen verstärkt“. Cell . 2 (1): 299–308 . doi : 10.1016/0092-8674(81)90413-x . PMID 6277502 .
{{cite journal}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - ^ a b de Almeida BP, Reiter F, Pagani M, Stark A (Mai 2022). „DeepSTARR sagt die Enhancer-Aktivität anhand der DNA-Sequenz voraus und ermöglicht das De-novo-Design synthetischer Enhancer“. Nature Genetics . 54 (5): 613–624 . doi : 10.1038/s41588-022-01048-5 . PMID 35551305 .
- ^ Avsec Ž, Weilert M, Shrikumar A, Krueger S, Alexandari A, Dalal K, et al. (März 2021). „ Basenauflösende Modelle der Transkriptionsfaktorbindung enthüllen eine weiche Motivsyntax“ . Nature Genetics . 53 (3): 354–366 . doi : 10.1038/s41588-021-00782-6 . PMC 8812996. PMID 33603233 .
Externe Links
- Enhancer+Elements,Genetic in den Medical Subject Headings (MeSH) der US National Library of Medicine
- TFSEARCH
- JASPAR
- ReMap
- ENCODE Threads Explorer: Entdeckung und Charakterisierung von Enhancern. Natur