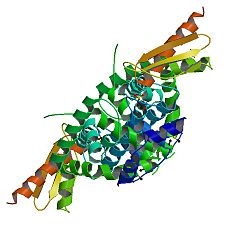
Das eosinophile kationische Protein (ECP), auch bekannt als Ribonuklease 3, ist ein basisches Protein, das sich in der primären Matrix der Eosinophilen befindet . [ 4 ] Beim Menschen wird das eosinophile kationische Protein durch das RNASE3 -Gen kodiert . [ 5 ]
ECP wird bei der Degranulation von Eosinophilen freigesetzt . Dieses Protein steht in Zusammenhang mit Entzündungen und Asthma, da in diesen Fällen erhöhte ECP-Konzentrationen im Körper auftreten. Es existieren drei glykosylierte Formen von ECP, wodurch sich dessen Molekulargewicht zwischen 18 und 22 kDa variiert. [ 6 ]
Funktion
Das eosinophile kationische Protein und das sequenzverwandte eosinophile Neurotoxin ( RNASE2 ) gehören beide zur Ribonuklease-A- Superfamilie. Beide Proteine besitzen neurotoxische , helminthotoxische und ribonukleolytische Aktivitäten. Das eosinophile kationische Protein ist in der Granulamatrix des Eosinophils lokalisiert . [ 7 ]
Ribonukleaseaktivität und Zytotoxizität
Die Ribonukleaseaktivität von ECP ist für die Zytotoxizität nicht essentiell. [ 8 ]
Wurden die beiden bekannten Aminosäurereste des aktiven Zentrums der Ribonuklease durch nicht-funktionelle Moleküle ersetzt (Lysin an Position 38 durch Arginin und Histidin an Position 128 durch Aspartat) [ 9 ] und mit dem Wildtyp-ECP verglichen, behielt das mutierte ECP seine Zytotoxizität, verlor aber seine Ribonukleaseaktivität. Das Experiment bestätigte, dass der Austausch der beiden Aminosäuren die Ribonukleaseaktivität von ECP hemmte. Die antiparasitäre Wirkung von ECP blieb jedoch erhalten. Auch die Produktion und der Transport von ECP in Bakterien wurden nicht verändert.
ECP ist ein starkes zytotoxisches Protein, das Zellen des Tracheaepithels von Meerschweinchen [ 10 ] , Leukämiezellen von Säugetieren [ 11 ] , Epidermiskarzinomzellen [ 10 ] und Brustkrebszellen [ 12 ] sowie nicht-säugetierische Zellen wie Parasiten, Bakterien und Viren abtöten kann. [ 13 ]
Reifes ECP ist zytotoxisch für humane Bronchialepithelzellen ( BEAS-2B ), indem es spezifisch an Heparansulfat-Proteoglykane (HSPGs) auf der Zelloberfläche bindet und anschließend endozytiert wird. [ 14 ]
ECP-induzierte Apoptose

Studien zeigen, dass ECP, zusammen mit anderen RNasen wie EDN, Apoptose in Zellen induzieren kann . Eine aktuelle Studie deutet darauf hin, dass ECP in HL-60- und HeLa-Zellen über eine Caspase-3-ähnliche Aktivität Zytotoxizität verursacht. [ 16 ] Demnach spielen zytotoxische RNasen eine wichtige Rolle beim Zelltod. Der Mechanismus der ECP-induzierten Apoptose ist jedoch noch nicht vollständig aufgeklärt. Neuere Studien haben gezeigt, dass Eosinophile den Tod von Epithelzellen über Apoptose und Nekrose auslösen können . [ 17 ]
ECP löst Apoptose durch Aktivierung von Caspase-8 über einen mitochondrienunabhängigen Signalweg aus. [ 15 ] Eine Zunahme der Chromatin-Kondensation, der Sub-G1-Population, der PARP-Spaltung und der DNA-Fragmentierung deutet darauf hin, dass ECP in humanen Bronchialepithelzellen (BEAS-2B) Apoptose induziert. [ 15 ]
Klinische Bedeutung
Eosinophile Granulozyten treten in großer Zahl an Entzündungsherden und als Reaktion auf bestimmte Parasiteninfektionen auf. Diese zytoplasmatischen Granula enthalten positiv geladene Proteine, die die Zellen charakterisieren. ECP ist eines der vier stark basischen Proteine, die bei der Degranulation aktivierter Eosinophiler in das umliegende Gewebe gelangen. Obwohl die zirkulierenden ECP-Spiegel zwischen Patienten stark variieren können, zeigen einige Studien, dass Serum-ECP-Messungen für die Überwachung vieler aktiver Entzündungskrankheiten nützlich sind. [ 18 ] Die ECP-Konzentrationen im Plasma und anderen Körperflüssigkeiten steigen während Entzündungsreaktionen an, die durch aktivierte Eosinophile gekennzeichnet sind. [ 19 ]
Die Serum-ECP-Konzentration ist zudem ein nützliches, objektives Messinstrument zur Beurteilung des Schweregrades von Asthma. Erhöhte ECP-Werte korrelieren mit dem Auftreten von Symptomen. Bei Patienten mit saisonalem Asthma spiegelte die ECP-Messung die Veränderungen der Krankheitsaktivität im Jahresverlauf wider. [ 20 ]
Es gibt mehrere Mechanismen, die in Kombination einen Asthmaanfall auslösen können , darunter spezifische IgE- Antikörper, aktivierte Entzündungszellen, neurogene Mechanismen, Hyperreagibilität und individuelle hormonelle Ungleichgewichte. Allergische Reaktionen in der Lunge verlaufen typischerweise in zwei Phasen. Die späte Phase tritt in der Regel einige Stunden nach der Exposition auf. Dabei reichern sich Eosinophile in den Bronchien an und setzen Granulaproteine frei, die zu einer Reizung der Bronchien führen. ECP ist zudem toxisch für Neuronen, einige Epithelzelllinien und isolierte Myokardzellen. [ 21 ] Dies könnte eine Ursache für juckende Hauterkrankungen sein.
Die Serum-ECP-Konzentrationen wurden auch mit der Aktivität der atopischen Dermatitis (AD) in Verbindung gebracht. ECP korreliert mit den Symptomen ( Lichenifikation , Schlafentzug , Erythem , Papeln , Pruritus und Exkoriationen ) der AD und auch mit dem klinischen Gesamtscore. [ 21 ]
Die Messung des Serum-ECP zur Beurteilung des Schweregrades von Asthma, zur Überwachung der Therapie und zur Anzeige des Schweregrades bestimmter entzündlicher Hauterkrankungen bietet einen Vorteil gegenüber subjektiven klinischen Messungen, die aufgrund der großen Variabilität der Beurteilungen durch den einzelnen Untersucher und den Patienten, insbesondere bei kleinen Kindern, zu Inkonsistenzen neigen.
Der normale Referenzbereich für Bluttests auf eosinophiles kationisches Protein liegt zwischen 2,3 und 16 μg/L. [ 22 ]
Siehe auch
Referenzen
- ^ a b c GRCh38: Ensembl Release 89: ENSG00000169397 – Ensembl , Mai 2017
- ^ „Human PubMed Reference:“ . National Center for Biotechnology Information, US National Library of Medicine .
- ^ „Maus PubMed-Referenz:“ . National Center for Biotechnology Information, US National Library of Medicine .
- ^ Boix E, Carreras E, Nikolovski Z, Cuchillo CM, Nogués MV (Juni 2001). „Identifizierung und Charakterisierung des menschlichen eosinophilen kationischen Proteins durch einen epitopspezifischen Antikörper“. J. Leukoc. Biol . 69 (6): 1027–35 . doi : 10.1189/jlb.69.6.1027 . PMID 11404391 . S2CID 11326107 .
- ^ Mastrianni DM, Eddy RL, Rosenberg HF, Corrette SE, Shows TB, Tenen DG, Ackerman SJ (Mai 1992). „Lokalisierung des humanen eosinophilen Charcot-Leyden-Kristallprotein-(Lysophospholipase)-Gens (CLC) auf Chromosom 19 und der humanen Ribonuklease-2-(eosinophil-abgeleitetes Neurotoxin)- und Ribonuklease-3-(eosinophiles kationisches Protein)-Gene (RNS2 und RNS3) auf Chromosom 14“. Genomics . 13 (1): 240–242 . doi : 10.1016/0888-7543(92)90237-M . PMID 1577491 .
- ^ Lee BioSolutions, Inc. http://www.leebio.com/eosinophil-cationic-protein-human-P359.html (Archiviert am 06.03.2012 im Internet Archive)
- ^ Hamann KJ, Ten RM, Loegering DA, Jenkins RB, Heise MT, Schad CR, Pease LR, Gleich GJ, Barker RL (August 1990). „Struktur und chromosomale Lokalisation der Gene für das humane eosinophile Neurotoxin und das eosinophile kationische Protein: Hinweise auf intronlose codierende Sequenzen in der Ribonuklease-Gen-Superfamilie“. Genomics . 7 (4): 535–46 . doi : 10.1016/0888-7543(90)90197-3 . PMID 2387583 .
- ^ Rosenberg HF (April 1995). „Rekombinantes humanes eosinophiles kationisches Protein. Ribonukleaseaktivität ist für die Zytotoxizität nicht essentiell . “ J. Biol. Chem . 270 (14): 7876–81 . doi : 10.1074/jbc.270.14.7876 . PMID 7713881 .
- ^ Lehrer RI, Szklarek D, Barton A, Ganz T, Hamann KJ, Gleich GJ (Juni 1989). „Antibakterielle Eigenschaften des basischen Hauptproteins und des kationischen Proteins der Eosinophilen“ . Journal of Immunology . 142 (12): 4428–34 . doi : 10.4049/jimmunol.142.12.4428 . PMID 2656865. S2CID 46456095 .
- ^ a b Motojima S, Frigas E, Loegering DA, Gleich GJ (März 1989). „Toxizität eosinophiler kationischer Proteine für das Tracheaepithel des Meerschweinchens in vitro“. Am. Rev. Respir. Dis . 139 (3): 801–5 . doi : 10.1164/ajrccm/139.3.801 . PMID 2923379 .
- ^ Carreras E, Boix E, Navarro S, Rosenberg HF, Cuchillo CM, Nogués MV (April 2005). „Oberflächenexponierte Aminosäuren des eosinophilen kationischen Proteins spielen eine entscheidende Rolle bei der Hemmung der Proliferation von Säugetierzellen“. Mol . Cell. Biochem . 272 ( 1–2 ): 1–7 . doi : 10.1007/s11010-005-4777-2 . PMID 16010966. S2CID 41675640 .
- ^ Ali S, Kaur J, Patel KD (Juli 2000). „Intercellular Cell Adhesion Molecule-1, Vascular Cell Adhesion Molecule-1, and Regulated on Activation Normal T Cell Expressed and Secreted Are Expressed by Human Breast Carcinoma Cells and Support Eosinophil Adhesion and Activation“ . Am. J. Pathol . 157 (1): 313–21 . doi : 10.1016 / S0002-9440(10)64542-7 . PMC 1850201. PMID 10880401 .
- ^ Venge P (Januar 2004). „Überwachung der allergischen Entzündung“ . Allergy . 59 (1): 26–32 . doi : 10.1046/j.1398-9995.2003.00386.x . PMID 14674929 .
- ^ Fan TC, Chang HT, Chen IW, Wang HY, Chang MD (Dezember 2007). „Eine Heparansulfat-vermittelte und Raft-abhängige Makropinozytose des eosinophilen kationischen Proteins“ . Traffic . 8 ( 12): 1778–95 . doi : 10.1111/j.1600-0854.2007.00650.x . PMID 17944807. S2CID 23093550 .
- ^ a b c Chang KC, Lo CW, Fan TC, Chang MD, Shu CW, Chang CH, Chung CT, Fang SL, Chao CC, Tsai JJ, Lai YK (2010). „TNF-α vermittelt die durch eosinophiles kationisches Protein induzierte Apoptose in BEAS-2B-Zellen“ . BMC Cell Biol . 11 : 6. doi : 10.1186/1471-2121-11-6 . PMC 2819994. PMID 20089176 .
- ^ Navarro S, Aleu J, Jiménez M, Boix E, Cuchillo CM, Nogués MV (Januar 2008). „Die Zytotoxizität des eosinophilen kationischen Proteins/Ribonuklease 3 auf eukaryotische Zelllinien erfolgt durch seine Aggregation an der Zellmembran . “ Cell. Mol. Life Sci . 65 (2): 324–337 . doi : 10.1007 / s00018-007-7499-7 . PMC 11131711. PMID 18087674. S2CID 30746145 .
- Trautmann A, Schmid-Grendelmeier P, Krüger K, Crameri R, Akdis M, Akkaya A, Bröcker EB, Blaser K, Akdis CA (Februar 2002). „T-Zellen und Eosinophile wirken bei der Induktion der Apoptose von Bronchialepithelzellen bei Asthma zusammen“ . The Journal of Allergy and Clinical Immunology . 109 (2): 329–337 . doi : 10.1067/mai.2002.121460 . PMID 11842305 .
- ^ Wardlaw AJ (August 1994). „Eosinophile in den 1990er Jahren: Neue Perspektiven auf ihre Rolle in Gesundheit und Krankheit“ . Postgrad Med J. 70 ( 826): 536–552 . doi : 10.1136/pgmj.70.826.536 . PMC 2397687. PMID 7937446 .
- ^ D'Amato G, Liccardi G, Russo M, Saggese M, D'Amato M (April 1996). „Messung der Serumspiegel des eosinophilen kationischen Proteins zur Überwachung von Patienten mit saisonaler, durch Parietaria-Pollen ausgelöster Atemwegsallergie (behandelt und unbehandelt mit spezifischer Immuntherapie)“. Allergy . 51 (4): 245–50 . doi : 10.1111/j.1398-9995.1996.tb00075.x . PMID 8792921 .
- ^ Tomassini M, Magrini L, De Petrillo G, Adriani E, Bonini S, Balsano F, Bonini S (Juni 1996). „Serumspiegel des eosinophilen kationischen Proteins bei allergischen Erkrankungen und natürlicher Allergenexposition“ . The Journal of Allergy and Clinical Immunology . 97 (6): 1350–5 . doi : 10.1016/S0091-6749(96)70204-X . PMID 8648032 .
- ^ a b Czech W, Krutmann J, Schöpf E, Kapp A (April 1992). „Serum-eosinophiles kationisches Protein (ECP) ist ein sensitiver Marker für die Krankheitsaktivität bei atopischer Dermatitis“. Br. J. Dermatol . 126 (4): 351–5 . doi : 10.1111 / j.1365-2133.1992.tb00677.x . PMID 1571256. S2CID 23425301 .
- ^ Referenzbereichsliste des Universitätsklinikums Uppsala („Laborationslista“). Art.-Nr. 40284 Sj74a. Ausgestellt am 22. April 2008.
Weiterführende Literatur
- Plager DA, Davis MD, Andrews AG, et al. (2009). „Eosinophile Ribonukleasen und ihre kutane Läsionsbildungsaktivität“ . Journal of Immunology . 183 (6): 4013–20 . doi : 10.4049/jimmunol.0900055 . PMC 2852253. PMID 19717523 .
- Nielsen LP, Peterson CG, Dahl R (2009). „Serum-Eosinophil-Granulaproteine sagen das Asthmarisiko bei allergischer Rhinitis voraus“ . Allergy . 64 ( 5): 733–7 . doi : 10.1111/j.1398-9995.2008.01869.x . PMID 19133919. S2CID 17857088 .
- Behnecke A, Mayr S, Schick B, et al. (2008). „Evaluation of ECP release from intact tissue biopsies from patients with nasal polyps“. Inflamm. Res . 57 (Suppl 1): S65–6. doi : 10.1007 / s00011-007-0632-0 . PMID 18345486. S2CID 28257312 .
- Eberlein B, Gulyas A, Schultz K, et al. (2009). „Vorteile des alpinen Bergklimas Bayerns bei Patienten mit allergischen Erkrankungen und chronisch-obstruktiver Lungenerkrankung: Ergebnisse der AURA*-Studie“. J Investig Allergol Clin Immunol . 19 (2): 159–61 . PMID 19476022 .
- Torrent M, Navarro S, Moussaoui M, et al. (2008). „Hochaffine Bindung des eosinophilen kationischen Proteins an Lipopolysaccharide und Peptidoglykane der Bakterienwand“. Biochemistry . 47 (11): 3544–55 . doi : 10.1021/bi702065b . PMID 18293932 .
- Parwez Q, Stemmler S, Epplen JT, Hoffjan S (2008). „Variationen in Genen, die für eosinophile Granulaproteine kodieren, bei Patienten mit atopischer Dermatitis aus Deutschland“ . J Negat Results Biomed . 7 : 9. doi : 10.1186/1477-5751-7-9 . PMC 2596079. PMID 19014520 .
- Zagai U, Lundahl J, Klominek J, et al. (2009). „Eosinophiles kationisches Protein stimuliert die Migration humaner Lungenfibroblasten in vitro“ . Scand. Journal of Immunology . 69 (4): 381–6 . doi : 10.1111/j.1365-3083.2009.02233.x . PMID 19284504 .
- Torrent M, de la Torre BG, Nogués VM, et al. (2009). „Bakterizide und membranschädigende Aktivitäten des eosinophilen kationischen Proteins bleiben größtenteils in einem N-terminalen Fragment erhalten“ ( PDF) . Biochem. J. 421 ( 3): 425–34 . doi : 10.1042/BJ20082330 . PMID 19450231. S2CID 15170520 .
- Fukuda T, Iwata M, Kitazoe M, et al. (2009). „Humanes eosinophiles kationisches Protein verstärkt die Stressfaserbildung in Balb/c 3T3-Fibroblasten und die Differenzierung neonataler Rattenkardiomyozyten“. Growth Factors . 27 (4): 228–36 . doi : 10.1080/08977190902987149 . PMID 19521893. S2CID 13245523 .
- Torrent M, Sánchez D, Buzán V, et al. (2009). „Vergleich des Membraninteraktionsmechanismus zweier antimikrobieller RNasen: RNase 3/ECP und RNase 7“ . Biochim. Biophys. Acta . 1788 (5): 1116–25 . doi : 10.1016/j.bbamem.2009.01.013 . PMID 19366593 .
- Domínguez-Ortega J, Pérez-Bedmar J, Rodríguez-Jiménez B, et al. (2009). „Eosinophile Ösophagitis aufgrund einer Profilin-Allergie“. J Investig Allergol Clin Immunol . 19 (4): 338– 9. PMID 19639743 .
- Fan TC, Fang SL, Hwang CS, et al. (2008). "Characterization of molecular interactions between eosinophil cationic protein and heparin". J. Biol. Chem. 283 (37): 25468–74. doi:10.1074/jbc.M803516200. PMID 18593710.
- Kang I, An XH, Oh YK, et al. (2010). "Identification of polymorphisms in the RNase3 gene and the association with allergic rhinitis". Eur Arch Otorhinolaryngol. 267 (3): 391–5. doi:10.1007/s00405-009-1103-8. PMID 19760211. S2CID 8311866.
- Yuksel H, Yilmaz O, Sogut A, et al. (2009). "Correlation of quality of life with clinical parameters and eosinophilic cation protein levels in children with allergic rhinoconjunctivitis". Int. Arch. Allergy Immunol. 148 (1): 18–22. doi:10.1159/000151501. PMID 18716399. S2CID 24634035.
- Rubin J, Zagai U, Blom K, et al. (2009). "The coding ECP 434(G>C) gene polymorphism determines the cytotoxicity of ECP but has minor effects on fibroblast-mediated gel contraction and no effect on RNase activity". Journal of Immunology. 183 (1): 445–51. doi:10.4049/jimmunol.0803912. PMID 19542456.
- Laurents DV, Bruix M, Jiménez MA, et al. (2009). "The (1)H, (13)C, (15)N resonance assignment, solution structure, and residue level stability of eosinophil cationic protein/RNase 3 determined by NMR spectroscopy". Biopolymers. 91 (12): 1018–28. doi:10.1002/bip.21152. PMID 19189375. S2CID 205493978.
- Peona V, De Amici M, Quaglini S, et al. (2010). "Serum eosinophilic cationic protein: is there a role in respiratory disorders?". J Asthma. 47 (2): 131–4. doi:10.3109/02770900903497170. PMID 20170318. S2CID 28187167.
- Shin SY, Choi SJ, Hur GY, et al. (2009). „Lokale Produktion von Gesamt-IgE und spezifischen Antikörpern gegen die Hausstaubmilbe im Adenoidgewebe“ ( PDF) . Pediatr Allergy Immunol . 20 (2): 134–41 . doi : 10.1111/j.1399-3038.2008.00756.x . PMID 18657051. S2CID 205415552. Archiviert vom Original (PDF) am 20.07.2018 . Abgerufen am 20.09.2019 .
- Woschnagg C, Rubin J, Venge P (2009). „Eosinophiles kationisches Protein (ECP) wird während der Sekretion prozessiert“ . Journal of Immunology . 183 (6): 3949–54 . doi : 10.4049/jimmunol.0900509 . PMID 19692640 .
Externe Links
- Eosinophil+Cationic+Protein in den Medical Subject Headings (MeSH) der US National Library of Medicine
- RNASE3+Protein,+Mensch in den Medical Subject Headings (MeSH) der US National Library of Medicine