Die Lepospondyli bilden eine vielfältige Gruppe früher Tetrapoden . Mit Ausnahme eines einzigen spät überlieferten Lepospondylen aus dem späten Perm Marokkos ( Diplocaulus minimus ) [ 6 ] lebten die Lepospondyli vom Viséum des frühen Karbons bis zum frühen Perm und waren geografisch auf das heutige Europa und Nordamerika beschränkt . [ 7 ] [ 2 ] Fünf Hauptgruppen der Lepospondyli sind bekannt: Adelospondyli , Aïstopoda , Lysorophia , Microsauria und Nectridea . Lepospondyli weisen eine große Vielfalt an Körperformen auf und umfassen Arten mit molch-, aal- oder schlangenähnlichen sowie eidechsenartigen Merkmalen. Einige Arten lebten im Wasser, andere im Sumpf oder an Land. Keiner der Lepospondyli war groß (die größte Gattung, der Diplocaulide Diplocaulus , erreichte eine Länge von einem Meter, die meisten waren jedoch deutlich kleiner). Man geht davon aus, dass sie spezialisierte ökologische Nischen bewohnten, die von den zahlreicheren Temnospondyli , die im Paläozoikum mit ihnen koexistierten, nicht besetzt waren. Die Lepospondyli wurden 1888 von Karl Alfred von Zittel benannt , der den Namen für einige Tetrapoden des Paläozoikums prägte , die bestimmte Merkmale in Chorda dorsalis und Zähnen aufwiesen . Lepospondyli wurden mitunter als Verwandte oder Vorfahren moderner Amphibien [ 8 ] [ 3 ] [ 4 ] oder der Amniota (der Gruppe, die Reptilien und Säugetiere umfasst) [ 9 ] angesehen. Es wurde vermutet, dass die Gruppe polyphyletisch ist , wobei die Aistopoda primitive Stammgruppen-Tetrapoden und die Recumbirostrane primitive Reptilien darstellen [ 10 ] .
Beschreibung
Alle Lepospondyli zeichnen sich durch einfache, spulenförmige Wirbel aus , die nicht aus Knorpel verknöcherten , sondern als knöcherne Zylinder um die Chorda dorsalis herum wuchsen. Darüber hinaus ist der obere Teil des Wirbels, der Neuralbogen, in der Regel mit dem Centrum (dem Hauptteil des Wirbels) verwachsen. [ 11 ]
Einstufung
Die Stellung der Lepospondyli innerhalb der Tetrapoda ist unklar, da die frühesten Lepospondyli bereits hochspezialisiert waren, als sie erstmals im Fossilienbestand auftauchten. Man nahm einst an, einige Lepospondyli seien mit den modernen Salamandern (Urodela) verwandt oder gar deren Vorfahren, nicht aber mit den anderen modernen Amphibien. Diese Ansicht gilt heute nicht mehr, und alle modernen Amphibien (Frösche, Salamander und Blindwühlen ) werden nun der Klade Lissamphibia zugeordnet . Lange Zeit galten die Lepospondyli neben den Lissamphibia und den Labyrinthodontia als eine der drei Unterklassen der Amphibien . [ 11 ] [ 12 ] [ 13 ] Die Aufspaltung der Labyrinthodonten in separate Gruppen wie Temnospondyli und Anthracosaurier hat jedoch Zweifel an diesen traditionellen Amphibienunterklassen aufkommen lassen.

Ähnlich wie bei den „Labyrinthodontia“ wurde in einigen Studien die These aufgestellt, dass die Lepospondyli eine künstliche ( polyphyletische ) Gruppe darstellen, deren Mitglieder teils eng mit ausgestorbenen Stammgruppen der Tetrapoden , teils enger mit modernen Amphibien oder Reptilien verwandt sind. [ 14 ] Frühe phylogenetische Analysen aus den 1980er und 1990er Jahren hielten häufig an der Vorstellung fest, dass die Lepospondyli paraphyletisch seien, wobei die Nectrideen nahe mit den Colosteiden und die Microsaurier nahe mit den Temnospondyli verwandt seien, die als Vorfahren der modernen Amphibien galten.
Eine 1995 von Robert Carroll veröffentlichte Arbeit argumentierte jedoch, dass die Lepospondyli eine monophyletische Gruppe bildeten, die näher mit den Reptilien verwandt sei. Carroll sah sie näher mit den Reptilien verwandt als die Seymouriamorpha , aber nicht so nah wie die Diadectomorpha . [ 15 ] Zahlreiche phylogenetische Analysen seit Carroll (1995) bestätigten seine Interpretation, darunter Laurin & Reisz (1997), [ 16 ] Anderson (2001), [ 17 ] und Ruta et al. (2003). [ 9 ] Einige wenige Forscher betrachten die Lepospondyli weiterhin als Vorfahren der Amphibien, gelangten aber zu diesem Schluss, ohne die Position der Lepospondyli im Vergleich zu den Seymouriamorpha und Diadectomorpha zu verändern. [ 4 ]
Die Klassifizierung der Lepospondyli und Tetrapoden ist weiterhin umstritten, und selbst neuere Studien haben Zweifel an der Monophylie der Lepospondyli geäußert. So wurde beispielsweise in einer 2007 veröffentlichten Arbeit vorgeschlagen, dass Adelospondyli zu den Stammgruppen der Tetrapoden gehören und eng mit den Colosteiden verwandt sind [ 5 ]. Eine 2017 veröffentlichte Arbeit über Lethiscus ordnet die Aïstopoda aufgrund ihres primitiven Hirnschädels der Stammgruppe der Tetrapoden zu [ 18 ] . Diese Studien unterscheiden sich hinsichtlich der internen und externen Verwandtschaftsverhältnisse der übrigen Lepospondyli-Taxa. Erstere ordnet die übrigen Lepospondyli in einen einzigen Kladus entlang der Stammgruppe der Amnioten ein. Letztere behandelt weder die Verwandtschaftsverhältnisse der Nectridea noch der Adelospondyli, sondern stuft die Microsaurier als frühe Amnioten ein und ordnet die Lysorophia den Microsauriern zu.
Wechselbeziehungen
Man unterscheidet üblicherweise fünf Hauptgruppen der Lepospondyli: Microsauria , eine artenreiche Gruppe, die oberflächlich betrachtet Eidechsen oder Salamandern ähnelt; Lysorophia , eine Gruppe mit länglichen Körpern und sehr kleinen Gliedmaßen; Aïstopoda , eine Gruppe gliedmaßenloser, extrem langgestreckter, schlangenartiger Formen; Adelospondyli , eine Gruppe vermutlich aquatischer Formen, die den Aïstopoda ähneln, aber einen kräftigeren Schädel besitzen; und Nectridea , eine weitere vielfältige Gruppe, die terrestrische und aquatische, molchartige Formen umfasst. Microsauria gilt im Allgemeinen als paraphyletisch ; anstatt eine monophyletische Gruppe zu sein, wurde sie als evolutionäre Stufe basaler („primitiver“) Lepospondyli betrachtet, obwohl zunehmend Einigkeit darüber herrscht , dass eine große Untergruppe der grabenden Microsaurier, die Recumbirostra , monophyletisch ist. Lysorophia gehört möglicherweise zum Recumbirostran-Clade und unterscheidet sich von anderen abgeleiteten Lepospondyli. Nectridea könnte ebenfalls paraphyletisch sein und eine Reihe anatomisch spezialisierterer Lepospondyli umfassen. [ 19 ] Der Name Holospondyli wurde für einen Clade vorgeschlagen, der Aïstopoden, Nectrideen und möglicherweise Adelospondyli einschließt, obwohl nicht alle neueren phylogenetischen Analysen diese Gruppierung stützen. Das folgende vereinfachte Kladogramm basiert auf einer Analyse von Tetrapoden und Stammgruppen-Tetrapoden, die von Ruta et al. im Jahr 2003 vorgestellt wurde: [ 9 ]
|
Position innerhalb der Tetrapoden
Die Lepospondyli-Hypothese zur Entstehung der modernen Amphibien besagt, dass Lissamphibien monophyletisch sind (d. h., sie bilden eine eigene Klade) und sich von lepospondylen Vorfahren entwickelt haben. Zwei Alternativen sind die Temnospondyli-Hypothese, nach der Lissamphibien innerhalb der Temnospondyli entstanden sind, und die Polyphylie-Hypothese, nach der Blindwühlen von Lepospondyli abstammen, während Frösche und Salamander (gemeinsam in der Ordnung Batrachia zusammengefasst ) sich von Temnospondyli entwickelten. Von den drei Hypothesen ist die Temnospondyli-Hypothese derzeit die am weitesten verbreitete unter Forschern. Starke Unterstützung für diese Verwandtschaft liefern zahlreiche anatomische Merkmale, die Lissamphibien und eine Gruppe paläozoischer Temnospondyli, die Dissorophoiden, gemeinsam haben . [ 20 ] Nach dieser Hypothese fallen die Lepospondyli entweder außerhalb der Kronengruppe Tetrapoda (der kleinsten Klade, die alle lebenden Tetrapoden umfasst, d. h. die kleinste Klade, die Lissamphibien und Amniota enthält) oder sind näher mit den Amnioten verwandt und somit Teil der Reptiliomorpha . [ 9 ] Einige phylogenetische Analysen stützen jedoch weiterhin die Lepospondyli-Hypothese. Die Analyse von Vallin und Laurin (2004) ergab, dass Lissamphibien am engsten mit Lysorophiern verwandt sind, gefolgt von Mikrosauriern. Pawley (2006) fand ebenfalls Lysorophier als die nächsten Verwandten der Lissamphibien, identifizierte aber Aïstopoden und Adelogyriniden anstelle von Mikrosauriern als die zweitnächsten Verwandten. Marjanović (2010) fand Holospondyli als die engste Verwandtengruppe der Lissamphibien, gefolgt von Lysorophiern. Nach dieser Hypothese wären die Lepospondyli die Kronengruppe der Tetrapoden und die Temnospondyli die Stammgruppe. [ 4 ]
Nachfolgend ein Kladogramm von Ruta et al. (2003), das die „Temnospondyli-Hypothese“ stützt und die Position der Lepospondyli innerhalb der Kronengruppe Tetrapoda zeigt: [ 9 ]
Galerie


 Hyloplesion , ein " Mikrosaurier "
 Brachydectes , ein Lysoropischer
 Adelospondylus , ein Adelospondyl
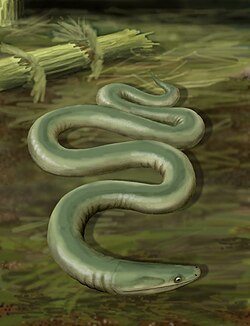 Oestocephalus , ein früher Aïstopod
 Phlegethontia , ein Aïstopod


Referenzen
- ^ Andrews, SM; Carroll, RL (1991). „Die Ordnung Adelospondyli: Lepospondyli-Amphibien des Karbons“. Transactions of the Royal Society of Edinburgh: Earth Sciences . 82 (3): 239–275 . doi : 10.1017/s0263593300005332 . S2CID 84460890 .
- ^ a b Marjanović, D. (2021). „Die Herstellung der Kalibrierungswurst am Beispiel der Rekalibrierung des Transkriptom-Zeitbaums von Kieferwirbeltieren“ . Frontiers in Genetics . 12. 521693. doi : 10.3389/fgene.2021.521693 . PMC 8149952. PMID 34054911 .
- ^ a b Marjanović, D.; Laurin, M. (2009). „Der Ursprung der modernen Amphibien: ein Kommentar“ (PDF) . Evolutionary Biology . 36 (3): 336–338 . doi : 10.1007/s11692-009-9065-8 . S2CID 12023942 .
- ^ a b c d Marjanović, D; Laurin, M (2013). „Der Ursprung der rezenten Amphibien: ein Überblick mit Schwerpunkt auf der „Lepospondyli-Hypothese“" . Geodiversitas . 35 : 207–272 . doi : 10.5252/g2013n1a8 . S2CID 67823991 .
- ^ a b Ruta, M.; Coates, M. I. (2007). „Dates, nodes and character conflict: addressing the lissamphibian origin problem“. Journal of Systematic Palaeontology . 5 (1): 69–122 . doi : 10.1017/S1477201906002008 . S2CID 86479890 .
- ^ Germain, D (2010). „Der marokkanische Diplocaulide: der letzte Lepospondyle, der einzige auf Gondwana“. Historical Biology . 122 ( 1–3 ): 4–39 . doi : 10.1080/08912961003779678 . S2CID 128605530 .
- ^ Carroll, RL (1988) Wirbeltierpaläontologie und Evolution , WH Freeman & Co.
- Vallin , G.; Laurin, M. (2004). „Schädelmorphologie und Verwandtschaftsverhältnisse von Microbrachis sowie eine Neubewertung der Phylogenie und Lebensweise der ersten Amphibien“. Journal of Vertebrate Paleontology . 24 : 56–72 . doi : 10.1671/5.1 . S2CID 26700362 .
- Marcello Ruta, Michael I. Coates und Donald LJ Quicke (2003). „ Frühe Tetrapoden-Verwandtschaftsverhältnisse neu betrachtet“ ( PDF) . Biological Reviews . 78 (2): 251–345 . doi : 10.1017/S1464793102006103 . PMID 12803423. S2CID 31298396. Archiviert vom Original (PDF) am 22.05.2008 . Abgerufen am 03.03.2012 .
- ^ Jason D. Pardo, Matt Szostakiwskyj, Per E. Ahlberg & Jason S. Anderson (2017) Verborgene morphologische Vielfalt bei frühen Tetrapoden. Nature (Online-Vorabveröffentlichung) doi:10.1038/nature22966>
- ^ a b Colbert 1969
- ^ Romer 1966
- ^ Carroll 1988
- ^ Benton 2000
- ^ Carroll, Robert L. (1995). „Probleme der phylogenetischen Analyse paläozoischer Choanate“ . Bulletin du Muséum National d'Histoire Naturelle, Abschnitt C. Serie 4. 17 ( 1– 4): 389– 445.
- ^ Laurin, Michel; Reisz, Robert R. (1997). „Kapitel 2: Eine neue Perspektive auf die Tetrapoden-Phylogenie“ . In: Sumida, S.; Martin, K. (Hrsg.). Ursprung der Amnioten – Der Übergang zum Landleben . London: Academic Press. S. 9–59 .
- ^ Anderson, Jason S. (März 2001). „Der phylogenetische Stamm: Maximale Einbeziehung von Taxa mit fehlenden Daten in einer Analyse der Lepospondyli (Vertebrata, Tetrapoda)“. Systematic Biology . 50 (2): 170–193 . CiteSeerX 10.1.1.871.5899 . doi : 10.1080/10635150151125833 . PMID 12116927 .
- ^ Pardo, Jason D.; Szostakiwskyj, Matt; Ahlberg, Per E.; Anderson, Jason S. (2017). „Verborgene morphologische Vielfalt bei frühen Tetrapoden“. Nature . 546 ( 7660): 642–645 . doi : 10.1038/nature22966 . hdl : 1880/113382 . PMID 28636600. S2CID 2478132 .
- ^ Carroll, RL (2012). „Die Bedeutung der Anerkennung unseres begrenzten Wissens über den Fossilienbestand für die Analyse phylogenetischer Beziehungen zwischen frühen Tetrapoden“. Fieldiana Life and Earth Sciences . 5 : 5–21 . doi : 10.3158/2158-5520-5.1.5 . S2CID 85114894 .
- ^ Sigurdsen, T.; Green, DM (2011). „Der Ursprung der modernen Amphibien: Eine Neubewertung“ . Zoological Journal of the Linnean Society . 162 (2): 457–469 . doi : 10.1111/j.1096-3642.2010.00683.x .
- Benton, MJ (2000), Wirbeltierpaläontologie , 2. Aufl. Blackwell Science Ltd.
- Benton, MJ (2004), Wirbeltierpaläontologie , 3. Aufl. Blackwell Science Ltd. Taxonomische Hierarchie
- Colbert, E H. (1969), Evolution der Wirbeltiere , John Wiley & Sons Inc (2. Aufl.)
- Laurin, Michel (1996) Landwirbeltiere - Stegocephalier: Tetrapoden und andere zehentragende Wirbeltiere
- Romer, AS, (1966) Wirbeltierpaläontologie University of Chicago Press, 1933; 3. Aufl. 1966.