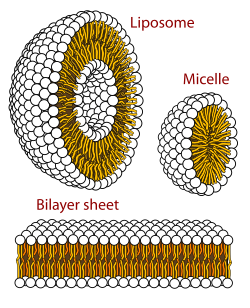
In der Biophysik und Kolloidchemie bezeichnet Polymorphismus die Fähigkeit von Lipiden , sich auf vielfältige Weise zu aggregieren und dabei Strukturen unterschiedlicher Form, sogenannte Phasen , zu bilden . Diese können in Form von Lipidmolekülkugeln ( Mizellen ), einander zugewandten Schichtpaaren ( lamellare Phase , in biologischen Systemen als Lipiddoppelschicht beobachtet ) , einer röhrenförmigen Anordnung ( hexagonale Phase ) oder verschiedener kubischer Phasen (bisher entdeckte sind Fd3m , Im3m , Ia3m , Pn3m und Pm3m ) auftreten. Auch komplexere Aggregationen wie rhomboedrische , tetragonale und orthorhombische Phasen wurden beobachtet .
Sie ist ein wichtiger Bestandteil der aktuellen akademischen Forschung auf den Gebieten der Membranbiophysik (Polymorphismus), der Biochemie (biologische Auswirkungen) und der organischen Chemie (Synthese).
Die Topologie eines Lipidsystems lässt sich mit verschiedenen Methoden bestimmen, wobei die Röntgenbeugung die zuverlässigste ist . Dabei wird ein Röntgenstrahl verwendet, der vom Präparat gestreut wird und ein Beugungsmuster in Form von Ringen erzeugt. Das Verhältnis der Abstände dieser Ringe vom Mittelpunkt gibt Aufschluss darüber, welche Phase(n) vorliegen.
Die Strukturphase der Aggregation wird durch das Verhältnis der vorhandenen Lipide, die Temperatur, den Hydratationsgrad, den Druck und die Ionenstärke (und -art) beeinflusst.
Hexagonale Phasen
Bei der Lipidpolymorphie können Lipidmembranen, wenn das Packungsverhältnis der Lipide größer oder kleiner als eins ist, zwei separate hexagonale Phasen oder nichtlamellare Phasen bilden, in denen sich je nach Umgebung, in die das Lipid eingebracht wird, lange, röhrenförmige Aggregate bilden.
Hexagonale I-Phase (H I )
Diese Phase ist in Detergenz-in-Wasser-Lösungen begünstigt und weist ein Packungsverhältnis von unter eins auf. Die Mizellenpopulation in einem Detergenz/Wasser-Gemisch kann mit steigendem Detergenz-Wasser-Verhältnis nicht unbegrenzt zunehmen. Bei geringen Wassermengen bilden Lipide, die normalerweise Mizellen bilden würden, größere Aggregate in Form von Mizellentubuli, um den hydrophoben Effekt zu gewährleisten. Diese Aggregate können als miteinander verschmolzene Mizellen betrachtet werden. Die polaren Kopfgruppen dieser Tubuli sind nach außen gerichtet, die hydrophoben Kohlenwasserstoffketten nach innen. Diese Phase tritt nur unter besonderen Bedingungen auf und ist höchstwahrscheinlich für biologische Membranen irrelevant.
Hexagonale II-Phase (H II )
Die Lipidmoleküle der HII-Phase sind im Vergleich zur oben beschriebenen hexagonalen I-Phase umgekehrt gepackt. In dieser Phase befinden sich die polaren Kopfgruppen innen und die hydrophoben Kohlenwasserstoffketten außen. Das Packungsverhältnis dieser Phase ist größer als eins [ 1 ] , was einer inversen Kegelpackung entspricht.
Es bilden sich ausgedehnte Anordnungen langer Röhren (ähnlich der hexagonalen I-Phase), die aufgrund der Anordnung der polaren Kopfgruppen die Form wässriger Kanäle annehmen. Diese Anordnungen können sich wie Rohre stapeln. Durch diese Anordnung kann eine begrenzte hydrophobe Oberfläche an der Außenseite der Anordnung entstehen, die mit Wasser in Kontakt steht. Die ansonsten energetisch günstige Packung stabilisiert diese Phase jedoch offenbar insgesamt. Es ist auch möglich, dass eine äußere Lipidmonoschicht die Oberfläche der Röhrenansammlung bedeckt und so die hydrophobe Oberfläche vor Wechselwirkungen mit der wässrigen Phase schützt.
Es wird angenommen, dass diese Phase durch Lipide in Lösung gebildet wird, um den hydrophoben Effekt auszugleichen. Die dichte Packung der Lipidkopfgruppen verringert deren Kontakt mit der wässrigen Phase. Dies wiederum reduziert die Menge an geordneten, aber ungebundenen Wassermolekülen. Zu den häufigsten Lipiden, die diese Phase bilden, gehört Phosphatidylethanolamin (PE), sofern es ungesättigte Kohlenwasserstoffketten aufweist. Auch Diphosphatidylglycerin (DPG, auch bekannt als Cardiolipin) kann in Gegenwart von Calcium diese Phase bilden.
Techniken zur Erkennung
Zur Bestimmung der jeweils vorliegenden Phase während Störungen des Lipids werden verschiedene Techniken eingesetzt. Zu diesen Störungen zählen pH-Wert-Änderungen, Temperaturänderungen, Druckänderungen, Volumenänderungen usw.
Die am häufigsten verwendete Methode zur Untersuchung der Phospholipidphasen ist die Phosphor- Kernspinresonanz (³¹P-NMR). Mit dieser Technik lassen sich unterschiedliche und charakteristische Pulverdiffraktionsmuster für lamellare, hexagonale und isotrope Phasen beobachten. Weitere Techniken, die eindeutige Beweise für die Existenz lamellarer und hexagonaler Phasen liefern, sind die Gefrierbruch-Elektronenmikroskopie, die Röntgenbeugung , die dynamische Differenzkalorimetrie (DSC) und die Deuterium-Kernspinresonanz (²H-NMR).

Darüber hinaus hat sich die Negativkontrast -Transmissionselektronenmikroskopie als nützliches Werkzeug zur Untersuchung des Phasenverhaltens und des Polymorphismus von Lipiddoppelschichten in lamellaren , mizellaren, unilamellaren Liposomen- und hexagonalen wässrigen Lipidstrukturen in wässrigen Dispersionen von Membranlipiden erwiesen . [ 2 ] Da der wasserlösliche Negativfarbstoff vom hydrophoben Teil (Fettsäureketten) der Lipidaggregate ausgeschlossen wird, färben sich die hydrophilen Kopfgruppen der Lipidaggregate dunkel und markieren deutlich die Umrisse der Lipidaggregate (siehe Abbildung).
Siehe auch
- Amphiphil
- Kritische Mizellenkonzentration
- Lipid
- Phasenverhalten der Lipiddoppelschicht
- Lyotropes Flüssigkristall
- Membranlipide
- Negativfärbung
Referenzen
- ^ Stuart, Marc & Boekema, Egbert. (2007). Zwei unterschiedliche Mechanismen des Übergangs von Vesikeln zu Mizellen und von Mizellen zu Vesikeln werden durch den Packungsparameter von Phospholipid-Detergenz-Systemen vermittelt, https://www.researchgate.net/publication/6124701_Two_distinct_mechanisms_of_vesicle-to-micelle_and_micelle-to-vesicle_transition_are_mediated_by_the_packing_parameter_of_phospholipid-detergent_systems#pf9
- ^ YashRoy RC (1994) Destabilisierung der lamellaren Dispersion von Thylakoidmembranlipiden durch Saccharose. Biochimica et Biophysica Acta , Band 1212(1), S. 129–133. https://www.researchgate.net/publication/15042978_Destabilisation_of_lamellar_dispersion_of_thylakoid_membrane_lipids_by_sucrose?ev=prf_pub
- J. M. Seddon, R. H. Templer. Polymorphismus von Lipid-Wasser-Systemen , aus dem Handbuch der Biologischen Physik, Band 1, hrsg. von R. Lipowsky und E. Sackmann. © 1995, Elsevier Science BV ISBN 0-444-81975-4
- Yeagle, P. (2005). Die Struktur biologischer Membranen (2. Aufl.). Vereinigte Staaten: CRC Press.
- Yeagle, P. (1993). Die Membranen der Zellen (2. Aufl.). Michigan: Academic Press.
- Gennis, RB (1989). Biomembranen: Molekulare Struktur und Funktion. Michigan: Springer-Verlag.


