Lebermoose sind eine Gruppe nicht-vaskulärer Landpflanzen, die die Abteilung Marchantiophyta ( / m ɑːr ˌ k æ n . ti . ˈ ɒ f . ə . t ə , - oʊ . ˈ f aɪ . t ə / bilden. ). Sie werden auch als Lebermoosebezeichnet . WieMooseundHornmoosebesitzen sie einengametophytendominantenLebenszyklus, in dem die Pflanzenzellen nur einen einzigen Satz genetischer Informationen tragen. Der Name der Abteilung leitet sich vom GattungsnamenMarchantiaJean Marchantnach seinem Vater benannt wurde. [ 4 ]
Man schätzt, dass es etwa 9000 Lebermoosarten gibt. [ 5 ] Einige der bekannteren Arten wachsen als abgeflachter, blattloser Thallus , die meisten Arten sind jedoch beblättert und ähneln in ihrer Form abgeflachten Moosen . Beblätterte Arten lassen sich anhand verschiedener Merkmale von den scheinbar ähnlichen Moosen unterscheiden, darunter die thallöse Struktur, ihre einzelligen Rhizoiden und das Vorhandensein einer Mittelrippe ( Costa ) in den Blättern. [ 6 ]
Lebermoose sind typischerweise klein, meist 2 bis 20 mm breit und einzelne Pflanzen weniger als 10 cm lang, weshalb sie oft übersehen werden. Bestimmte Arten können jedoch große Flächen auf Boden, Felsen, Bäumen oder anderen festen Untergründen bedecken. Sie sind weltweit in nahezu allen verfügbaren Lebensräumen verbreitet, am häufigsten in feuchten Gebieten, obwohl es auch Wüsten- und Arktisarten gibt. Einige Arten können in schattigen Gewächshäusern lästig oder in Gärten als Unkraut auftreten. [ 7 ]
Physikalische Eigenschaften
Beschreibung
Die meisten Lebermoose sind klein und messen 2 bis 20 Millimeter (0,08 bis 0,8 Zoll) in der Breite, wobei einzelne Pflanzen weniger als 10 Zentimeter (4 Zoll) lang werden [ 8 ] . Daher werden sie oft übersehen. Die bekanntesten Lebermoose bestehen aus einem niederliegenden, abgeflachten, bandförmigen oder verzweigten Gebilde, dem sogenannten Thallus (Pflanzenkörper); diese Lebermoose werden als thallöse Lebermoose bezeichnet . Die meisten Lebermoose bilden jedoch abgeflachte Stängel mit überlappenden Schuppen oder Blättern in zwei oder mehr Reihen aus, wobei sich die mittlere Reihe oft deutlich von den äußeren Reihen unterscheidet; diese werden als beblätterte Lebermoose oder Schuppenlebermoose bezeichnet . [ 9 ] [ 10 ] ( Beispiele finden Sie in der Galerie unten. )

Lebermoose lassen sich am zuverlässigsten von den scheinbar ähnlichen Laubmoosen durch ihre einzelligen Rhizoiden unterscheiden . [ 11 ] Andere Unterschiede sind nicht universell für alle Laubmoose und Lebermoose; [ 10 ] aber das Fehlen klar differenzierter Stängel und Blätter bei thallösen Arten oder das Vorhandensein tief gelappter oder segmentierter Blätter und dreireihiger Blätter bei beblätterten Arten [ 12 ] [ 13 ] sowie häufige dichotome Verzweigungen deuten allesamt darauf hin, dass es sich um ein Lebermoos handelt. Mit wenigen Ausnahmen durchlaufen alle Lebermoose eine polyplastidische Meiose , im Gegensatz zu Laubmoosen und Hornmoosen, die eine monoplastische Meiose aufweisen. [ 14 ] Anders als alle anderen Embryophyten enthalten die meisten Lebermoose einzigartige membrangebundene Ölkörper, die in mindestens einigen ihrer Zellen Isoprenoide enthalten; die Lipidtropfen im Zytoplasma aller anderen Pflanzen sind nicht umschlossen. [ 15 ] Aufgrund der großen Ähnlichkeit einiger Moose und beblätterter Lebermoose ist die eindeutige Bestimmung einiger Gruppen nur mit Hilfe der Mikroskopie oder eines erfahrenen Bryologen möglich .
Lebermoose besitzen, wie andere Bryophyten, einen gametophytendominanten Lebenszyklus, wobei der Sporophyt vom Gametophyten abhängig ist. [ 15 ] Die Sporophyten vieler Lebermoose sind nicht photosynthetisch aktiv, es gibt jedoch auch einige, die in unterschiedlichem Maße photosynthetisch sind. [ 16 ] Die Zellen einer typischen Lebermoospflanze enthalten jeweils nur einen einfachen Satz genetischer Information, sodass die Pflanzenzellen während des größten Teils ihres Lebenszyklus haploid sind . Dies steht im deutlichen Gegensatz zum Muster, das bei fast allen Tieren und Gefäßpflanzen zu beobachten ist. Bei den bekannteren Samenpflanzen wird die haploide Generation nur durch den winzigen Pollen und die Samenanlage repräsentiert , während die diploide Generation der bekannte Baum oder eine andere Pflanze ist. [ 17 ] Ein weiteres ungewöhnliches Merkmal des Lebermoos-Lebenszyklus ist die sehr kurze Lebensdauer der Sporophyten (d. h. des diploiden Körpers), die kurz nach der Sporenfreisetzung absterben. [ 18 ] Bei Moosen ist der Sporophyt beständiger, und bei Hornmoosen verbreitet der Sporophyt die Sporen über einen längeren Zeitraum. [ 19 ]
Lebenszyklus

Das Leben eines Lebermooses beginnt mit der Keimung einer haploiden Spore , aus der ein Protonema entsteht . Dieses besteht entweder aus einer Masse fadenförmiger Filamente oder einem abgeflachten Thallus. [ 20 ] [ 21 ] Das Protonema ist ein Übergangsstadium im Leben des Lebermooses. Aus ihm entwickelt sich die reife Gametophore ( Gametenträgerpflanze ), die die Geschlechtsorgane bildet. Die männlichen Organe heißen Antheridien ( Singular: Antheridium) und produzieren die Spermien. Antheridiengruppen sind von einer schützenden Zellschicht, dem Perigonium ( Plural: Perigonien), umgeben. Wie bei anderen Landpflanzen heißen die weiblichen Organe Archegonien ( Singular: Archegonium) und sind vom dünnen Perichaetum ( Plural: Perichaeta) geschützt. [ 10 ] Jedes Archegonium besitzt einen schlanken, hohlen Schlauch, den „Hals“, durch den die Spermien zur Eizelle schwimmen.
Lebermoosarten können zweihäusig (diözisch) oder einhäusig (monözisch) sein . Bei zweihäusigen Lebermoosen befinden sich die weiblichen und männlichen Geschlechtsorgane auf verschiedenen Gametophyten. Bei einhäusigen Lebermoosen hingegen befinden sich die beiden Fortpflanzungsorgane auf verschiedenen Zweigen derselben Pflanze. [ 22 ] In beiden Fällen müssen die Spermien von den Antheridien, wo sie produziert werden, zum Archegonium gelangen, wo sich die Eizellen befinden. Die Spermien der Lebermoose sind zweigeißelig , d. h. sie besitzen zwei schwanzartige Flagellen , die es ihnen ermöglichen, kurze Strecken zu schwimmen, [ 23 ] vorausgesetzt, es ist mindestens ein dünner Wasserfilm vorhanden. Ihre Fortbewegung kann durch das Aufspritzen von Regentropfen unterstützt werden. Darüber hinaus haben Forscher beobachtet, wie Lebermoose spermienhaltiges Wasser bis zu 15 cm weit durch die Luft „abfeuern“ und so die Befruchtung von weiblichen Pflanzen ermöglichen, die mehr als einen Meter entfernt wachsen. [ 24 ]
Wenn Spermien die Archegonien erreichen, findet die Befruchtung statt, die zur Bildung eines diploiden Sporophyten führt. Nach der Befruchtung entwickelt der unreife Sporophyt innerhalb des Archegoniums drei deutlich unterscheidbare Bereiche: (1) einen Fuß , der den Sporophyten verankert und Nährstoffe von der Mutterpflanze aufnimmt, (2) eine kugelförmige oder ellipsoide Kapsel , in der die Sporen für die Verbreitung an neue Standorte gebildet werden, und (3) eine Seta (Stiel), die zwischen den beiden anderen Bereichen liegt und diese verbindet. [ 23 ] Dem Sporophyten fehlt ein apikales Meristem , ein auxinempfindlicher Punkt der Abspaltung von anderen Landpflanzen im späten Silur / frühen Devon . [ 25 ] [ 26 ]
Sobald der Sporophyt alle drei Regionen entwickelt hat, verlängert sich die Seta, schiebt sich aus dem Archegonium heraus und sprengt es auf. Während der Fuß in der Mutterpflanze verankert bleibt, wird die Kapsel von der Seta nach außen gedrückt und in die Luft gestreckt. Innerhalb der Kapsel teilen sich die Zellen und bilden sowohl Elaterzellen als auch Sporenzellen. Die Elaterzellen sind federartig und drücken die Kapselwand auf, um sich beim Platzen der Kapsel zu verstreuen. Die Sporenzellen durchlaufen die Meiose und bilden haploide Sporen , die sich verbreiten. Damit kann der Lebenszyklus von neuem beginnen.
Ungeschlechtliche Fortpflanzung
Einige Lebermoose sind zur ungeschlechtlichen Vermehrung fähig ; bei Bryophyten im Allgemeinen „wäre es fast richtig zu sagen, dass vegetative Vermehrung die Regel und nicht die Ausnahme ist.“ [ 27 ] Bei Riccia beispielsweise entwickeln sich die jüngeren Spitzen der gegabelten Thalli zu separaten Individuen, wenn die älteren Teile absterben. [ 27 ]
Einige thallöse Lebermoose wie Marchantia polymorpha und Lunularia cruciata bilden kleine, scheibenförmige Brutkörper in flachen Bechern. [ 28 ] Marchantia- Brutkörper können durch Regen, der in die Becher spritzt, bis zu 120 cm weit verbreitet werden. [ 29 ] Bei Metzgeria wachsen die Brutkörper an den Rändern des Thallus. [ 30 ] Marchantia polymorpha ist ein häufiges Unkraut in Gewächshäusern und bedeckt oft die gesamte Oberfläche von Pflanzgefäßen; [ 31 ] : 230 Die Verbreitung durch Brutkörper ist der „primäre Mechanismus, durch den sich Lebermoose in einer Baumschule oder einem Gewächshaus ausbreiten“. [ 31 ] : 231
Symbiose
Thalloide Lebermoose beherbergen typischerweise symbiotische Glomeromyceten- Pilze, deren arbuskuläre (zilientragende) Wurzeln denen von Gefäßpflanzen ähneln. Arten der Familie Aneuraceae leben hingegen in Symbiose mit Basidiomyceten der Gattung Tulasnella , während beblätterte Lebermoose typischerweise symbiotische Basidiomyceten der Gattung Serendipita beherbergen . [ 32 ]
Ökologie
Heute sind Lebermoose in vielen Ökosystemen weltweit verbreitet, mit Ausnahme von Meeren, extrem trockenen Gebieten oder solchen, die starker direkter Sonneneinstrahlung ausgesetzt sind. [ 33 ] Wie die meisten Pflanzengruppen kommen sie am häufigsten (sowohl in Anzahl als auch Artenvielfalt) in feuchten Tropen vor. [ 34 ] Lebermoose wachsen bevorzugt im Halbschatten bis tiefen Schatten, obwohl Wüstenarten auch direkte Sonneneinstrahlung und Perioden vollständiger Austrocknung tolerieren können.
Einstufung
Evolution
Epiphytische thallöse Lebermoose entwickelten sich während der Trias bis zur Kreidezeit . [ 35 ]
Beziehung zu anderen Pflanzen
Lebermoose und Laubmoose weisen viele ähnliche Eigenschaften auf, lassen sich aber mit etwas Aufwand unterscheiden. Ein wesentlicher Unterschied besteht darin, dass das Rhizoid eines Lebermooses einzellig ist, während es bei Laubmoosen mehrzellig ist. Lebermoose besitzen häufig einen Thallus , der bei Laubmoosen nie vorkommt. Umgekehrt können Laubmoose eine Mittelrippe (Costa) aufweisen , die bei Lebermoosen fehlt. [ 6 ] Andere Unterschiede sind nicht universell für alle Laubmoose und Lebermoose, aber das Vorkommen von dreireihig angeordneten Blättern, das Vorhandensein tiefer Lappen oder segmentierter Blätter sowie das Fehlen einer klar abgegrenzten Stängel- und Blattstruktur deuten darauf hin, dass es sich um ein Lebermoos handelt. Lebermoose unterscheiden sich von Laubmoosen außerdem durch ihre einzigartigen, komplexen Ölkörper mit hohem Brechungsindex. [ 36 ]
Blattmoose lassen sich anhand verschiedener Merkmale von den scheinbar ähnlichen Moosen unterscheiden. Zu diesen Merkmalen zählen die thallöse Struktur, die einzelligen Rhizoiden und das Vorhandensein einer Mittelrippe (Costa) in den Blättern. [ 6 ] Lebermoose unterscheiden sich von Laubmoosen außerdem durch ihre einzigartigen, komplexen Ölkörper mit hohem Brechungsindex.
Traditionell wurden die Lebermoose zusammen mit anderen Bryophyten ( Moosen und Hornmoosen ) in der Abteilung Bryophyta zusammengefasst, innerhalb derer die Lebermoose die Klasse Hepaticae (auch Marchantiopsida genannt) bildeten . [ 10 ] [ 37 ] Etwas später erhielten die Lebermoose eine eigene Abteilung (Marchantiophyta), [ 38 ] da die Bryophyten als paraphyletisch galten . Die neuesten phylogenetischen Erkenntnisse deuten jedoch darauf hin, dass die Lebermoose wahrscheinlich Teil eines monophyletischen Taxons („Bryophyta sensu lato “ oder „Bryophyta Schimp.“) zusammen mit Moosen und Hornmoosen sind. [ 39 ] [ 40 ] [ 41 ] Daher wurde vorgeschlagen, die Lebermoose in eine Klasse namens Marchantiopsida einzuordnen. [ 42 ] Darüber hinaus gibt es starke phylogenetische Hinweise darauf, dass Lebermoose und Laubmoose eine monophyletische Untergruppe namens Setaphyta bilden . [ 43 ] [ 44 ] [ 45 ]
| 'Monophyletisches Bryophyten'-Modell | „Lebermoose plus Laubmoose–basales“ Modell | |||||
|---|---|---|---|---|---|---|
| ||||||
| Zwei der wahrscheinlichsten Modelle für die Evolution der Bryophyten. [ 45 ] | ||||||
Eine wichtige Schlussfolgerung aus diesen Phylogenien ist, dass die ursprünglichen Stomata in der Lebermoos-Linie verloren gegangen zu sein scheinen. [ 43 ] [ 40 ] Zu den frühesten Fossilien, die als Lebermoose gelten, gehören Kompressionsfossilien von Pallaviciniites aus dem Oberdevon von New York . [ 46 ] Diese Fossilien ähneln modernen Arten der Metzgeriales . [ 47 ] Ein weiteres devonisches Fossil namens Protosalvinia sieht ebenfalls wie ein Lebermoos aus, aber seine Verwandtschaft zu anderen Pflanzen ist noch unklar, sodass es möglicherweise nicht zu den Marchantiophyta gehört. Im Jahr 2007 wurden die ältesten bis dahin den Lebermoosen zugeordneten Fossilien veröffentlicht: Metzgeriothallus sharonae aus dem Givetium (Mitteldevon ) von New York , USA. [ 48 ] Im Jahr 2010 wurden jedoch in Argentinien fünf verschiedene Arten fossiler Lebermoossporen gefunden, die aus dem viel früheren mittleren Ordovizium vor etwa 470 Millionen Jahren stammen. [ 1 ] [ 49 ]
Interne Klassifizierung
Bryologen ordnen die Lebermoose der Abteilung Marchantiophyta zu . Dieser Abteilungsname leitet sich vom Namen der bekanntesten Lebermoosgattung Marchantia ab . [ 50 ] Neben dieser taxonomischen Bezeichnung werden die Lebermoose oft auch als Hepaticophyta bezeichnet. Dieser Name leitet sich von ihrem lateinischen Namen ab, da Botaniker ihre Artenbeschreibungen in Latein veröffentlichten. Diese Bezeichnung darf nicht mit der Blütenpflanzengattung Hepatica aus der Familie der Hahnenfußgewächse (Ranunculaceae) verwechselt werden . Zudem wird der Name Hepaticophyta in Lehrbüchern häufig fälschlicherweise als Hepatophyta geschrieben.
Obwohl es unter den Bryologen im Jahr 2004 keinen Konsens über die Klassifizierung der Lebermoose oberhalb der Familienebene gab, [ 51 ] können die Marchantiophyta in drei Klassen unterteilt werden: [ 52 ] [ 53 ] [ 54 ]
- Die Jungermanniopsida umfassen die beiden Ordnungen Metzgeriales (einfache Thalloiden) und Jungermanniales (beblätterte Lebermoose).
- Die Marchantiopsida umfassen die drei Ordnungen Marchantiales (Lebermoose mit komplexem Thallus) und Sphaerocarpales (Flaschenlebermoose) sowie die Blasiales (früher den Metzgeriales zugeordnet). [ 52 ] [ 55 ] Sie umfasst auch die problematische Gattung Monoclea , die mitunter in eine eigene Ordnung Monocleales gestellt wird. [ 56 ]
- Eine dritte Klasse, die Haplomitriopsida, wird neu als Schwestergruppe der übrigen Lebermoose anerkannt; [ 54 ] sie umfasst die Gattungen Haplomitrium , Treubia und Apotreubia .
| Forrest 2006 [ 52 ] | Cole, Hilger & Goffinet 2021 [ 57 ] | |||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
|
|
Eine aktualisierte Klassifizierung von Söderström et al. 2016 [ 58 ]
- Marchantiophyta Stotler & Crandall-Stotler 2000
- Haplomitriopsida Stotler & Crandall-Stotler 1977
- Calobryales Hamlin 1972
- Treubiales Schljakov 1972
- Marchantiopsida Cronquist, Takhtajan & Zimmermann 1966
- Blasiidae He-Nygrén et al. 2006
- Blasiales Stotler & Crandall-Stotler 2000
- Marchantiidae Engler 1893 sensu He-Nygrén et al. 2006
- Lunulariales Long 2006
- Marchantiales Limpricht 1877 (komplexe Thalloide)
- Neohodgsoniales Long 2006
- Sphaerocarpales Cavers 1910 (Flaschenlebermoose)
- Blasiidae He-Nygrén et al. 2006
- Jungermanniopsida Stotler & Crandall-Stotler 1977
- Jungermanniidae Engler 1893 (blättrige Lebermoose)
- Jungermanniales von Klinggräff 1858
- Porellales Schljakov 1972
- Ptilidiales Schljakov 1972
- Metzgeriidae Bartholomew-Began 1990
- Metzgeriales Chalaud 1930
- Pleuroziales Schljakov 1972
- Pelliidae He-Nygrén et al. 2006
- Fossombroniales Schljakov 1972
- Pallaviciniales Frey & Stech 2005
- Pelliales He-Nygrén et al. 2006
- Jungermanniidae Engler 1893 (blättrige Lebermoose)
- Haplomitriopsida Stotler & Crandall-Stotler 1977
Man schätzt, dass es etwa 9000 Lebermoosarten gibt, von denen mindestens 85 % zu den beblätterten Lebermoosen gehören. [ 3 ] [ 59 ] Die erste Lebermoos-Genomsequenz, die von Marchantia polymorpha , wurde 2017 veröffentlicht [ 60 ], obwohl bereits einige Gene identifiziert und charakterisiert worden waren. [ 61 ] Seitdem hat sich M. polymorpha zum Modellorganismus für molekularbiologische Studien an Lebermoosen entwickelt. [ 62 ]
Ausgestorbene Taxa
Aus dieser Gruppe sind mehrere fossile Gattungen bekannt , die keiner rezenten Klasse zugeordnet sind: [ 63 ]
- † Discites Harris 1931
- † Eohepatica Heard und Jones 1931
- † Jungermanniopsis Howe und Hollick 1922
- † Jungermanniten Göppert 1845
- † Schizolepidella Halle 1913
- † Thallomia Heard und Jones 1931
Wirtschaftliche Bedeutung
In der Antike nahm man an, dass Lebermoose Leberkrankheiten heilten , daher der Name. [ 64 ] Im Altenglischen bedeutet das Wort „Lebermoos“ wörtlich „ Leberpflanze“ . [ 65 ] Dies führte zur gebräuchlichen Bezeichnung der Pflanzengruppe als Lebermoose , abgeleitet vom lateinischen Wort „hēpaticus “ für „zur Leber gehörig“. (Eine nicht verwandte Blütenpflanze, Hepatica , wird manchmal ebenfalls als Lebermoos bezeichnet, da sie früher auch zur Behandlung von Leberkrankheiten eingesetzt wurde.) Der archaische Zusammenhang zwischen Pflanzenform und -funktion basiert auf einem Konzept, das als „Signaturenlehre“ bezeichnet wird . [ 66 ]
Lebermoose haben heute nur noch geringe direkte wirtschaftliche Bedeutung. Ihre größte Wirkung ist indirekt: Sie verringern die Erosion an Bachufern, speichern Wasser in tropischen Wäldern und tragen zur Bildung von Bodenkrusten in Wüsten und Polargebieten bei. Einige Arten werden jedoch direkt vom Menschen genutzt. So sind beispielsweise die Wassermoose Riccia fluitans , thallöse Lebermoose, die als Aquarienpflanzen verkauft werden . Ihre dünnen, schlanken Äste schwimmen auf der Wasseroberfläche und bieten Lebensraum für kleine Wirbellose und die Fische, die sich von ihnen ernähren.
Die Entwicklung der Bryophyten-Genomik eröffnet neue wirtschaftliche Möglichkeiten für die Pflanzengenomik. Dies ist auf ihren haploid-dominanten Lebenszyklus, ihre kurzen Generationszeiten und ihre kompakten Genome mit geringer Genredundanz zurückzuführen, während gleichzeitig viele wichtige Aspekte der Pflanzenbiologie, einschließlich der sexuellen und asexuellen Fortpflanzung, erhalten bleiben. Lebermoose lassen sich in Petrischalen kultivieren . Insbesondere ihre Brutkörper (Gemmae) liefern große Mengen an fertigen Klonen . Es existiert ein effizientes System zur genetischen Transformation , mit dem transgene Linien von *M. polymorpha* in etwa vier Wochen erzeugt werden können. Viele ursprünglich für Angiospermen entwickelte gentechnische Werkzeuge , darunter CRISPR- Systeme , funktionieren auch in Lebermoosen . Daher kann *M. polymorpha* ein schnelleres System sein, um pflanzengenetische Verfahren und synthetische Biologie zu testen, bevor man sich auf Angiospermen konzentriert. Auch die Kultivierung in Hydrokultursystemen und die Gewinnung hochwertiger rekombinanter Proteine könnten sich als praktikabel erweisen . [ 62 ]
Galerie
Eine kleine Bildersammlung, die die Struktur und Vielfalt der Lebermoose zeigt:
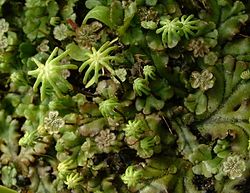 Marchantia polymorpha , mit Antheridien- und Archegonienstielen
 Das Archegonium von Porella
 Ein Sporophyt von Porella, der aus seinem Archegonium hervorgeht
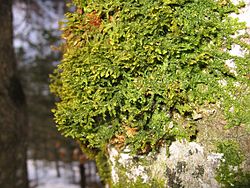 Porella platyphylla- Büschel wächst auf einem Baum
 Pellia epiphylla , wächst auf feuchtem Boden
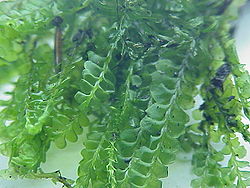 Plagiochila asplenioides , ein beblättertes Lebermoos
 Riccia fluitans , ein aquatisches Thallose-Leberblümchen
 Conocephalum conicum , ein großes thallöses Lebermoos
Siehe auch
Referenzen
- ^ a b Walker, Matt (12. Oktober 2010). „Fossilien der frühesten Landpflanzen in Argentinien entdeckt“ . BBC Earth . Abgerufen am 20. September 2025 .
- ^ Stotler, Raymond E.; Barbara J. Crandall-Stotler (1977). „Eine Checkliste der Lebermoose und Hornmoose Nordamerikas“. The Bryologist . 80 (3). American Bryological and Lichenological Society: 405–428 . doi : 10.2307/3242017 . JSTOR 3242017 .
- ^ a b Crandall-Stotler, Barbara; Stotler, Raymond E. (2000). „Morphologie und Klassifikation der Marchantiophyta“. In: A. Jonathan Shaw; Bernard Goffinet (Hrsg.). Bryophytenbiologie . Cambridge: Cambridge University Press. S. 21. ISBN 0-521-66097-1Die
- ^ Bowman, John L. (Februar 2016). „Eine kurze Geschichte der Marchantia von Griechenland bis zur Genomik“ . Plant and Cell Physiology . 57 (2): 210–229 . doi : 10.1093/pcp/pcv044 . ISSN 0032-0781 . PMID 25766905 .
- ^ „Lebermoos-Homepage | UNB“ . Archiviert vom Original am 24. Juli 2021. Abgerufen am 10. Juni 2020 .
- ^ a b c Gradstein, Robbert; Schäfer-Verwimp, Alfons; Da Costa, Denise Pinheiro (2005). „Die Leberblümchen (Marchantiophyta) des Bundesstaates Goiás, Brasilien“ . Revista de Biologia Neotropical/Journal of Neotropical Biology . 2 (2): 75–108 . Archiviert vom Original am 16. Januar 2022.
- Schuster , Rudolf M. (1992). Die Lebermoose und Anthocerota Nordamerikas . Band VI. Chicago: Field Museum of Natural History. S. 19. ISBN 0-914868-21-7Die
- ^ Schuster, Rudolf M. Die Leberblütler und Anthocerotae Nordamerikas , Bd. I, S. 243–244. (New York: Columbia University Press, 1966)
- ^ Kashyap, Shiv Ram. Lebermoose des westlichen Himalaya und der Punjab-Ebene , Bd. I, S. 1. (New Delhi: The Chronica Botanica, 1929)
- ^ a b c d Schofield, WB Einführung in die Bryologie , S. 135–140. (New York: Macmillan, 1985). ISBN 0-02-949660-8Die
- ^ Nehira, Kunito. „Sporenkeimung, Protonemataentwicklung und Sporenbildung“, S. 347 in Rudolf M. Schuster (Hrsg.), Neues Handbuch der Bryologie , Band I. (Nichinan, Miyazaki, Japan: Botanisches Laboratorium Hattori, 1983). ISBN 49381633045
{{isbn}}ISBN-Fehler ignoriert ( Link )Die - ^ Allison, KW & John Child. Die Lebermoose Neuseelands , S. 13–14. (Dunedin: University of Otago Press, 1975).
- ^ Conard, Henry S. und Paul L. Redfearn, Jr. How to Know the Mosses and Liverworts , überarbeitete Ausgabe, S. 12–23. (Dubuque, Iowa: William C. Brown Co., 1979) ISBN 0-697-04768-7
- Renzaglia , KS; Ashton, NW; Suh, DY (2023). „Sporogenese bei Physcomitrium patens: Intergenerationelle Zusammenarbeit und die Entwicklung der Sporenwand und -öffnung“ . Frontiers in Cell and Developmental Biology . 11 1165293. doi : 10.3389/fcell.2023.1165293 . PMC 10133578. PMID 37123413 .
- ^ a b Bold, HC; Alexopoulos, CJ & Delevoryas, T. (1987) Morphology of Plants and Fungi , 5. Aufl., S. 189. (New York: Harper-Collins). ISBN 0-06-040839-1Die
- ^ Glime, JM 2017. Photosynthese: Der Prozess. Kap. 11-1. In: Glime, JM Bryophytenökologie. Band 1. Physiologische Ökologie. E-Book, herausgegeben von der Michigan Technological University und der International Association of Bryologists. Letzte Aktualisierung: 18. Juli 2020. Verfügbar unter < http://digitalcommons.mtu.edu/bryophyte-ecology/ >.
- ^ Fosket, Donald E. Pflanzenwachstum und -entwicklung: Ein molekularer Ansatz , S. 27. (San Diego: Academic Press, 1994). ISBN 0-12-262430-0Die
- ^ Hicks, Marie L. Guide to the Liverworts of North Carolina , S. 10. (Durham: Duke University Press, 1992). ISBN 0-8223-1175-5Die
- ^ Simpson, Michael G. (2019). „Evolution und Diversität grüner und landlebender Pflanzen“. Plant Systematics . S. 55–74 . doi : 10.1016/b978-0-12-812628-8.50003-1 . ISBN 978-0-12-812628-8Die
- ^ Nehira, Kunito. „Sporenkeimung, Protonemataentwicklung und Sporenentwicklung“, S. 358–374 in Rudolf M. Schuster (Hrsg.), New Manual of Bryology , Band I. (Nichinan, Miyazaki, Japan: The Hattori Botanical Laboratory, 1983). ISBN 49381633045
{{isbn}}ISBN-Fehler ignoriert ( Link )Die - ^ Chopra, RN & PK Kumra. Biologie der Bryophyten , S. 1–38. (New York: John Wiley & Sons, 1988). ISBN 0-470-21359-0Die
- ^ Malcolm, Bill & Nancy Malcolm. Moose und andere Bryophyten: Ein illustriertes Glossar , S. 6 & 128. (Neuseeland: Micro-Optics Press, 2000). ISBN 0-473-06730-7Die
- ^ a b Campbell, Douglas H. Die Struktur und Entwicklung von Moosen und Farnen , S. 73–74. (London: The Macmillan Co., 1918)
- Pain , S. (22. Dezember 2010). „Botanische Ballistik: Die schnellsten Pflanzen der Natur“ . New Scientist . 208 (2792/3): 45–47 . doi : 10.1016/s0262-4079(10)63177-6 . Abgerufen am 11. Mai 2026 .
- Cooke, Todd J.; Poli, Dorothybelle; Cohen, Jerry D. (2004). „ Spielte Auxin eine entscheidende Rolle bei der Evolution neuer Körperbaupläne während der Radiation der Landpflanzen im späten Silur und frühen Devon?“ The Evolution of Plant Physiology . S. 85–107 . doi : 10.1016/b978-012339552-8/50006-8 . ISBN 978-0-12-339552-8Die
- ^ Friedman, William E.; Moore, Richard C.; Purugganan, Michael D. (2004). „Die Evolution der Pflanzenentwicklung“. Amerikanisches Journal für Botanik . 91 (10): 1726–1741 . Bibcode : 2004AmJB...91.1726F . doi : 10.3732/ajb.91.10.1726 . PMID 21652320 .
- ^ a b Lepp, Heino (15. April 2008). „Vegetative Vermehrung“ . Australische Bryophyten . Australian National Botanic Gardens . Abgerufen am 22. Dezember 2011 .
- ^ Smith, AJE (1989) Die Lebermoose Großbritanniens und Irlands , Cambridge University Press, Cambridge.
- ^ Equihua, C (1987). „Disseminacion de yemas en Marchantia polymorpha L. (Hepaticae)“ [Verbreitung von Eigelb in Marchantia polymorpha L. (Hepaticae)]. Kryptogamie, Bryologie, Lichénologie (auf Französisch). 8 (3): 199–217 . INIST 8356670 .
- ^ Lepp, Heino (28. Februar 2008). „Reproduktion & Verbreitung“ . Australische Bryophyten . Australian National Botanic Gardens . Abgerufen am 22. Dezember 2011 .
- ^ a b Newby, Adam; Altland, James E.; Gilliam, Charles H.; Wehtje, Glenn (Dezember 2006). „Nachauflauf-Lebermoosbekämpfung in Container-Baumschulpflanzen“. Journal of Environmental Horticulture . 24 (4): 230–236 . doi : 10.24266/0738-2898-24.4.230 .
- ^ Bidartondo, Martin I.; Duckett, Jeffrey G. (7. Februar 2010). „Konservative ökologische und evolutionäre Muster in Lebermoos-Pilz-Symbiosen“ . Proceedings of the Royal Society B: Biological Sciences . 277 (1680): 485–492 . Bibcode : 2010PBioS.277..485B . doi : 10.1098/rspb.2009.1458 . PMC 2842645. PMID 19812075 .
- ^ Schuster, Rudolf M. Die Leberblütler und Anthocerotae Nordamerikas , Bd. I, S. 243–249. (New York: Columbia University Press, 1966).
- ^ Pócs, Tamás. „Bryophyten des tropischen Waldes“, S. 59 in AJE Smith (Hrsg.) Bryophyte Ecology . (London: Chapman und Hall, 1982). ISBN 0-412-22340-6Die
- ^ Bechteler, Julia; Schäfer-Verwimp, Alfons; Glenny, David; Cargill, D. Christine; Maul, Karola; Schütz, Nicole; von Konrat, Matt; Quandt, Dietmar; Nebel, Martin (Dezember 2021). „Die Evolution und biogeografische Geschichte epiphytischer Thalloid-Leberblümchen“. Molekulare Phylogenetik und Evolution . 165 107298. Bibcode : 2021MolPE.16507298B . doi : 10.1016/j.ympev.2021.107298 . PMID 34464738 .
- ^ Romani, Facundo; Flores, Jorge R; Tolopka, Juan Ignacio; Suárez, Guillermo; He, Xiaolan; Moreno, Javier E (16. Juli 2022). Degola, Francesca (Hrsg.). „Lebermoos-Ölkörper: Diversität, Biochemie und molekulare Zellbiologie der frühesten sekretorischen Struktur von Landpflanzen“ . Journal of Experimental Botany . 73 (13): 4427–4439 . doi : 10.1093/jxb/erac134 . ISSN 0022-0957 . PMID 35394035 .
- ^ Crandall-Stotler, Barbara & Stotler, Raymond E. „Morphologie und Klassifikation der Marchantiophyta“. S. 36–38 in: A. Jonathan Shaw & Bernard Goffinet (Hrsg.), Bryophytenbiologie . (Cambridge: Cambridge University Press: 2000). ISBN 0-521-66097-1
- ^ Goffinet, Bernard. „Ursprung und phylogenetische Beziehungen von Moosen“. S. 124–149 in A. Jonathan Shaw & Bernard Goffinet (Hrsg.), Bryophyte Biology . (Cambridge: Cambridge University Press:!2000). ISBN 0-521-66097-1
- ^ Leebens-Mack, James H.; et al. (2019). „Eintausend Pflanzentranskriptome und die Phylogenomik grüner Pflanzen“ . Nature . 574 (7780): 679–685 . Bibcode : 2019Natur.574..679O . doi : 10.1038 / s41586-019-1693-2 . PMC 6872490. PMID 31645766 .
- ^ a b Harris, Brogan J.; et al. (2020). „Phylogenomische Belege für die Monophylie der Bryophyten und die reduktive Evolution der Stomata“. Current Biology . 30 (11): P2201–2012.E2. Bibcode : 2020CBio...30E2001H . doi : 10.1016/j.cub.2020.03.048 . hdl : 1983/fbf3f371-8085-4e76-9342-e3b326e69edd . PMID 32302587 .
- ^ Su, Danyan; et al. (2021). „Groß angelegte phylogenomische Analysen belegen die Monophylie der Bryophyten und den neoproterozoischen Ursprung der Landpflanzen“ . Molecular Biology and Evolution . 38 (8): 3332–3344 . doi : 10.1093/molbev/msab106 . PMC 8321542. PMID 33871608 .
- ^ de Sousa, Filipe; et al. (2019). „Phylogenien nukleärer Proteine stützen die Monophylie der drei Bryophyten-Gruppen (Bryophyta Schimp.).“ New Phytologist . 222 (1): 565–575 . Bibcode : 2019NewPh.222..565D . doi : 10.1111/nph.15587 . hdl : 1983/0b471d7e-ce54-4681-b791-1da305d9e53b . PMID 30411803 .
- ^ a b Puttick, Mark N.; et al. (März 2018). „Die Wechselbeziehungen der Landpflanzen und die Natur des ancestralen Embryophyten“. Current Biology . 28 (5): 733–745.e2. Bibcode : 2018CBio...28E.733P . doi : 10.1016/j.cub.2018.01.063 . hdl : 1983/ad32d4da-6cb3-4ed6-add2-2415f81b46da . PMID 29456145 .
- ^ Sousa, Filipe; et al. (2020). „Die mitochondriale Phylogenie der Landpflanzen stützt die Setaphyta unter Modellen mit heterogener Zusammensetzungssubstitution“ . PeerJ . 8 ( 4): e8995. doi : 10.7717/peerj.8995 . PMC 7194085. PMID 32377448 .
- ^ a b Cox, Cymon J. (2018). „Molekulare Phylogenetik der Landpflanzen: Ein Überblick mit Anmerkungen zur Bewertung von Inkongruenzen zwischen Phylogenien“. Critical Reviews in Plant Sciences . 37 ( 2–3 ): 113–127 . Bibcode : 2018CRvPS..37..113C . doi : 10.1080/07352689.2018.1482443 . hdl : 10400.1/14557 .
- ^ Taylor, Thomas N. & Edith L. Taylor. Die Biologie und Evolution fossiler Pflanzen , S. 139. (Englewood Cliffs, NJ: Prentice Hall, 1993). ISBN 0-13-651589-4Die
- ^ Oostendorp, Cora. Die Bryophyten des Paläozoikums und Mesozoikums , S. 70–71. ( Bryophytum Bibliotheca , Band 34, 1987). ISBN 3-443-62006-XDie
- ^ VanAller Hernick, L.; Landing, E.; Bartowski, KE (2008). „Die ältesten Lebermoose der Erde – Metzgeriothallus sharonae sp. nov. aus dem Mitteldevon (Givetium) des östlichen New York, USA“. Review of Palaeobotany and Palynology . 148 ( 2–4 ): 154–162 . Bibcode : 2008RPaPa.148..154H . doi : 10.1016/j.revpalbo.2007.09.002 .
- ^ Rubinstein, Lebenslauf; Gerrienne, P.; De La Puente, GS; Astini, RA; Steemans, P. (2010). „Frühe mittelordovizische Beweise für Landpflanzen in Argentinien (östliches Gondwana)“ . Neuer Phytologe . 188 (2): 365–369 . Bibcode : 2010NewPh.188..365R . doi : 10.1111/j.1469-8137.2010.03433.x . HDL : 11336/55341 . PMID 20731783 .
- ^ Crandall-Stotler, Barbara & Stotler, Raymond E. „Morphologie und Klassifikation der Marchantiophyta“. S. 63 in: A. Jonathan Shaw & Bernard Goffinet (Hrsg.), Bryophytenbiologie . (Cambridge: Cambridge University Press: 2000). ISBN 0-521-66097-1
- ^ Jones, EW (2004). Lebermoos- und Hornmoosflora Westafrikas . Scripta Botnica Belgica. Band 30. Meise: Nationaler Botanischer Garten (Belgien). S. 30. ISBN 90-72619-61-7Die
- Forrest , Laura L.; Davis, E. Christine; Long, David G.; Crandall-Stotler, Barbara J.; Clark, Alexandra; Hollingsworth, Michelle L. (2006). „Die Entschlüsselung der Evolutionsgeschichte der Lebermoose (Marchantiophyta): Multiple Taxa, Genome und Analysen“. The Bryologist . 109 ( 3 ): 303. doi : 10.1639/0007-2745(2006)109[303:UTEHOT]2.0.CO;2 .
- ^ He-Nygrén, Xiaolan; Juslén, Aino; Ahonen, Inkeri; Glenny, David; Piippo, Sinikka (2006). „Aufklärung der Evolutionsgeschichte von Leberblümchen (Marchantiophyta) – auf dem Weg zu einer natürlichen Klassifizierung“. Kladistik . 22 (1): 1– 31. doi : 10.1111/j.1096-0031.2006.00089.x . PMID 34892891 .
- ^ a b Renzaglia, Karen S.; Schuette, Scott; Duff, R. Joel; Ligrone, Roberto; Shaw, A. Jonathan; Mishler, Brent D.; Duckett, Jeffrey G. (2007). „Bryophytenphylogenie: Fortschritte an den molekularen und morphologischen Grenzen“. The Bryologist . 110 (2): 179. doi : 10.1639/0007-2745(2007)110[179:BPATMA]2.0.CO;2 .
- ^ Forrest, Laura L.; Barbara J. Crandall-Stotler (2004). „Eine Phylogenie der einfachen thallösen Lebermoose (Jungermanniopsida, Metzgeriidae) abgeleitet aus fünf Chloroplastengenen“. Monographien zur Systematischen Botanik . Molekulare Systematik der Bryophyten. 98. Missouri Botanical Garden Press: 119–140 .
- ^ Schuster, Rudolf M. Die Leberblütler und Anthocerotae Nordamerikas , Bd. VI, S. 26. (Chicago: Field Museum of Natural History, 1992). ISBN 0-914868-21-7Die
- ^ Cole, Theodor CH; Hilger, Hartmut H.; Goffinet, Bernard. „Bryophyten-Phylogenie-Poster: Systematik und Merkmale nichtvaskulärer Landpflanzen (Moose, Lebermoose, Hornmoose)“ . 2021. Abgerufen am 6. Dezember 2022 .
- ^ Söderström et al. (2016). „Weltweite Checkliste der Horn- und Lebermoose“ . PhytoKeys ( 59): 1–826 . Bibcode : 2016PhytK..59....1S . doi : 10.3897/phytokeys.59.6261 . PMC 4758082. PMID 26929706 .
- ^ Sadava, David; David M. Hillis; H. Craig Heller; May Berenbaum (2009). Life: The Science of Biology (9. Aufl.). New York: WH Freeman. S. 599. ISBN 978-1429246446Die
- ^ Bowman, John L.; Kohchi, Takayuki; viele andere (2017). „Einblicke in die Evolution von Landpflanzen aus dem Genom von Marchantia polymorpha“ . Cell . 171 (2): 287–304.e15. doi : 10.1016/j.cell.2017.09.030 . PMID 28985561. Abgerufen am 2. Juni 2026 .
- ^ Sierocka, I.; Kozlowski, L. P.; Bujnicki, J. M.; Jarmolowski, A.; Szweykowska-Kulinska, Z. (2014). „ Weibchenspezifische Genexpression im zweihäusigen Lebermoos Pellia endiviifolia ist entwicklungsabhängig reguliert und mit der Archegonienproduktion verbunden“ . BMC Plant Biology . 14 (1): 168. Bibcode : 2014BMCPB..14..168S . doi : 10.1186/1471-2229-14-168 . PMC 4074843. PMID 24939387 .
- ^ a b Frangedakis, Eftychios (2026). „Pflanzliche Synthetische Biologie im Aufwind: Bryophyten an Bord mit neuen Werkzeugen, Systemen und Möglichkeiten“ . ACS Synthetic Biology . 15 (5): 1699–1717 . doi : 10.1021/acssynbio.6c00092 . PMID 41984537. Abgerufen am 3. Juni 2026 .
- ^ „PBDB Taxon“ . paleobiodb.org . Abgerufen am 18. Januar 2025 .
- ^ Dittmer, Howard J. Phylogenie und Form im Pflanzenreich , S. 286. (Toronto: D. Van Nostrand Co., 1964)
- ^ Raven, PH, RF Evert & SE Eichhorn. Biologie der Pflanzen , 7. Aufl., S. 351. (New York: WH Freeman, 2005). ISBN 0-7167-1007-2Die
- ^ Stern, Kingsley R. Einführung in die Pflanzenbiologie , 5. Aufl., S. 338. (Dubuque, Iowa: Wm. C. Brown Publishers, 1991) ISBN 0-697-09947-4Die
Externe Links
 Medien zum Thema Marchantiophyta auf Wikimedia Commons
 Daten zu Marchantiophyta auf Wikispecies
- Lebermoosstruktur in Bildern
- LiToL: Die Zusammenstellung des Lebermoos-Stammbaums (Anmerkung: Für 500.000 Millionen Jahre lesen Sie bitte „vor 480 Millionen Jahren“).
- Wechselbeziehungen zwischen Laubmoosen, Lebermoosen und Hornmoosen
- Weitere Informationen zu Lebermoosen
- Lebermoose