
Die Myogenese ist die Bildung von Skelettmuskelgewebe , insbesondere während der Embryonalentwicklung . Muskelfasern entstehen im Allgemeinen durch die Verschmelzung von Vorläuferzellen , den Myoblasten , zu vielkernigen Fasern, den Myotuben . In der frühen Embryonalentwicklung können sich Myoblasten entweder vermehren oder zu Myotuben differenzieren . Was diese Entscheidung in vivo steuert, ist weitgehend unklar. In Zellkulturen vermehren sich die meisten Myoblasten, wenn ausreichend Fibroblasten-Wachstumsfaktor (FGF) oder ein anderer Wachstumsfaktor im umgebenden Medium vorhanden ist. Sobald der Wachstumsfaktor aufgebraucht ist, stellen die Myoblasten die Teilung ein und differenzieren sich terminal zu Myotuben.
Die Differenzierung von Myoblasten verläuft in mehreren Schritten. Im ersten Schritt verlassen die Zellen den Zellzyklus und beginnen, bestimmte Gene zu exprimieren. Im zweiten Schritt richten sich die Myoblasten zueinander aus. Studien haben gezeigt, dass selbst Myoblasten von Ratten und Hühnern einander erkennen und ausrichten können, was auf eine evolutionäre Konservierung der beteiligten Mechanismen hindeutet. [ 1 ] Im dritten Schritt kommt es zur eigentlichen Zellfusion . Hierbei ist die Anwesenheit von Calciumionen entscheidend. Die Fusion beim Menschen wird durch eine Reihe von Metalloproteinasen, die vom Gen ADAM12 kodiert werden , sowie durch verschiedene andere Proteine unterstützt . Die Fusion beinhaltet die Rekrutierung von Aktin an die Plasmamembran , gefolgt von der engen Aneinanderlagerung und der Bildung einer Pore, die sich anschließend rasch erweitert.
Zu den Genen und ihren Proteinprodukten, die während dieses Prozesses exprimiert werden, gehören: Myozyten-Enhancer-Faktoren , myogene regulatorische Faktoren und der Serum-Response-Faktor . Die Expression von Skelett -α-Aktin wird ebenfalls durch den Androgenrezeptor reguliert ; Steroide können dadurch die Myogenese regulieren. [ 2 ]
Überblick
Die Muskelentwicklung, auch Myogenese genannt, lässt sich in mehrere Stadien unterteilen (siehe unten). [ 3 ] Jedes Stadium ist mit verschiedenen genetischen Faktoren assoziiert, deren Fehlen zu Muskeldefekten führt.
Phasen
| Bühne | Assoziierte genetische Faktoren |
|---|---|
| Delamination | PAX3 , c-Met |
| Migration | c-met/ HGF , LBX1 |
| Proliferation | PAX3, c-Met, Mox2, MSX1 , Six1/4, Myf5 , MyoD |
| Bestimmung | Myf5 und MyoD |
| Differenzierung | Myogenin , MCF2 , Six1/4, MyoD, Myf6 |
| Spezifische Muskelbildung | Lbx1, Meox2 |
| Satellitenzellen | PAX7 |
Delamination

Assoziierte genetische Faktoren: PAX3- und c-Met- Mutationen. Mutationen im PAX3-Gen können zu einem Ausfall der c-Met-Expression führen. Eine solche Mutation hätte eine fehlende laterale Migration zur Folge.
PAX3 vermittelt die Transkription von c-Met und ist für die Aktivierung der MyoD-Expression verantwortlich. Eine der Funktionen von MyoD ist die Förderung der Regenerationsfähigkeit von Satellitenzellen (siehe unten). [ 3 ] PAX3 wird im Allgemeinen während der Embryonalentwicklung am stärksten exprimiert und in den fetalen Stadien in geringerem Maße. Es wird in migrierenden hypaxialen Zellen und Dermomyotomzellen exprimiert, jedoch nicht während der Entwicklung der Gesichtsmuskulatur . [ 3 ] Mutationen in Pax3 können verschiedene Komplikationen verursachen, darunter das Waardenburg-Syndrom Typ I und III sowie das kraniofaziale Taubheit-Hand-Syndrom . [ 3 ] Das Waardenburg-Syndrom ist häufig mit angeborenen Fehlbildungen des Darmtrakts und der Wirbelsäule sowie einer Scapula-Anhebung und anderen Symptomen assoziiert. Jedes Stadium ist mit verschiedenen genetischen Faktoren verbunden, deren Fehlen zu Muskeldefekten führt. [ 3 ]
Migration
Assoziierte genetische Faktoren: Mutationen in den Genen c-Met / HGF und LBX1 führen zu einem Mangel an Migrationsfähigkeit.
LBX1 ist verantwortlich für die Entwicklung und Organisation der Muskulatur im dorsalen Vordergliedmaßenbereich sowie für die Verlagerung dorsaler Muskeln in die Gliedmaße nach einer Delamination . [ 3 ] Ohne LBX1 bilden sich die Gliedmaßenmuskeln nicht richtig aus; Studien haben gezeigt, dass die Hintergliedmaßenmuskulatur durch diese Deletion stark beeinträchtigt wird, während sich infolge der ventralen Muskelmigration in den Vordergliedmaßenmuskeln lediglich Beugemuskeln ausbilden. [ 3 ]
c-Met ist ein Tyrosinkinase-Rezeptor , der für das Überleben und die Proliferation migrierender Myoblasten notwendig ist. Ein Mangel an c-Met stört die sekundäre Myogenese und verhindert – wie bei LBX1 – die Ausbildung der Extremitätenmuskulatur. [ 3 ] Es ist bekannt, dass c-Met neben der Migration auch eine wichtige Rolle bei der Delamination und Proliferation spielt. PAX3 wird für die Transkription von c-Met benötigt. [ 3 ]
Proliferation
Assoziierte genetische Faktoren: PAX3 , c-Met , Mox2 , MSX1 , Six, Myf5 und MyoD
Mox2 (auch MEOX-2 genannt) spielt eine wichtige Rolle bei der Induktion des Mesoderms und der regionalen Spezifizierung . [ 3 ] Eine Funktionsstörung von Mox2 verhindert die Proliferation myogener Vorläuferzellen und führt zu einer abnormalen Musterbildung der Gliedmaßenmuskulatur. [ 4 ] Studien haben insbesondere gezeigt, dass die Hintergliedmaßen stark verkleinert sind, während sich bestimmte Vordergliedmaßenmuskeln nicht ausbilden. [ 3 ]
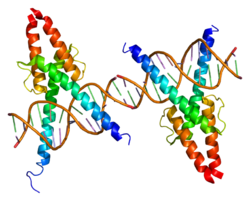
Myf5 ist für die korrekte Proliferation von Myoblasten erforderlich. [ 3 ] Studien haben gezeigt, dass die Muskelentwicklung von Mäusen in den Interkostal- und paraspinalen Regionen durch Inaktivierung von Myf-5 verzögert werden kann. [ 3 ] Myf5 gilt als das früheste exprimierte regulatorische Faktorgen in der Myogenese. Werden Myf-5 und MyoD beide inaktiviert, fehlt die Skelettmuskulatur vollständig. [ 3 ] Diese Ergebnisse verdeutlichen die Komplexität der Myogenese und die Bedeutung jedes einzelnen genetischen Faktors für eine korrekte Muskelentwicklung.
Bestimmung
Assoziierte genetische Faktoren: Myf5 und MyoD. Eine der wichtigsten Phasen der Myogenese erfordert die korrekte Funktion von Myf5 und MyoD, damit sich myogene Zellen normal entwickeln können. Mutationen in einem der beiden assoziierten genetischen Faktoren führen dazu, dass die Zellen nicht-muskuläre Phänotypen annehmen. [ 3 ]
Wie bereits erwähnt, ist die Kombination von Myf5 und MyoD entscheidend für den Erfolg der Myogenese. Sowohl MyoD als auch Myf5 gehören zur Familie der myogenen bHLH-Transkriptionsfaktoren (basische Helix-Loop-Helix-Proteine). [ 5 ] Zellen, die myogene bHLH-Transkriptionsfaktoren (einschließlich MyoD oder Myf5) produzieren, differenzieren sich zu Muskelzellen. [ 6 ] Folglich führt die gleichzeitige Deletion von Myf5 und MyoD zum vollständigen Ausbleiben der Skelettmuskelbildung . [ 6 ] Untersuchungen haben gezeigt, dass MyoD sein eigenes Gen direkt aktiviert; das bedeutet, dass das produzierte Protein an das MyoD -Gen bindet und so einen Zyklus der MyoD-Proteinproduktion in Gang setzt. [ 6 ] Die Expression von Myf5 wird unterdessen durch Sonic Hedgehog , Wnt1 und MyoD selbst reguliert . [ 3 ] Die Rolle von MyoD bei der Regulation von Myf5 verdeutlicht die entscheidende Wechselwirkung der beiden genetischen Faktoren. [ 3 ]
Der Serum-Response-Faktor ( SRF) ist für die Myogenese und die Muskelentwicklung notwendig. [ 7 ] Die Interaktion von SRF mit anderen Proteinen, wie z. B. Steroidhormonrezeptoren , kann zur Regulation des Muskelwachstums durch Steroide beitragen . [ 8 ]
Differenzierung
Assoziierte genetische Faktoren: Myogenin , Mcf2 , Six, MyoD und Myf6. Mutationen in diesen assoziierten genetischen Faktoren verhindern das Fortschreiten und die Reifung der Myozyten.

Myogenin (auch bekannt als Myf4) ist für die Fusion myogener Vorläuferzellen mit neuen oder bereits vorhandenen Muskelfasern erforderlich. [ 3 ] Im Allgemeinen verstärkt Myogenin die Expression von Genen, die bereits im Organismus exprimiert werden. Die Deletion von Myogenin führt zu einem nahezu vollständigen Verlust differenzierter Muskelfasern und einem starken Verlust an Skelettmuskelmasse in der lateralen/ventralen Körperwand. [ 3 ]

Myf-6 (auch bekannt als MRF4 oder Herculin) ist wichtig für die Myotubendifferenzierung und spezifisch für die Skelettmuskulatur. [ 3 ] Mutationen im Myf-6-Gen können Erkrankungen wie die zentronukleäre Myopathie und die Becker-Muskeldystrophie hervorrufen . [ 3 ]
Spezifische Muskelbildung
Assoziierte genetische Faktoren: LBX1 und Mox2. Bei der spezifischen Muskelbildung wirken sich Mutationen assoziierter genetischer Faktoren auf bestimmte Muskelregionen aus. Aufgrund seiner großen Bedeutung für die Verlagerung der dorsalen Muskulatur in die Extremität nach der Ablösung führt eine Mutation oder Deletion von Lbx1 zu Defekten der Streck- und Hinterbeinmuskulatur. [ 3 ] Wie im Abschnitt „Proliferation“ beschrieben, verursacht eine Deletion oder Mutation von Mox2 eine abnorme Musterbildung der Extremitätenmuskulatur. Die Folgen dieser abnormen Musterbildung sind eine starke Verkleinerung der Hinterbeine und das vollständige Fehlen der Vorderbeinmuskulatur. [ 3 ]
Satellitenzellen
Assoziierte genetische Faktoren: PAX7- Mutationen verhindern die Bildung von Satellitenzellen und damit das postnatale Muskelwachstum. [ 3 ]
Satellitenzellen werden als ruhende Myoblasten beschrieben und liegen in der Nähe des Sarkolemms der Muskelfasern . [ 3 ] Sie sind für die Muskelreparatur unerlässlich, besitzen jedoch nur ein sehr begrenztes Replikationsfähigkeit. Aktiviert durch Reize wie Verletzungen oder hohe mechanische Belastung, sind Satellitenzellen für die Muskelregeneration im erwachsenen Organismus notwendig. [ 3 ] Darüber hinaus können sich Satellitenzellen auch in Knochen- oder Fettzellen differenzieren. Somit spielen sie nicht nur bei der Muskelentwicklung, sondern auch bei der Muskelerhaltung im Erwachsenenalter eine wichtige Rolle. [ 3 ]
Skelettmuskulatur
Während der Embryogenese enthalten das Dermomyotom und/oder Myotom in den Somiten die myogenen Vorläuferzellen, aus denen sich die Skelettmuskulatur entwickelt. [ 9 ] Die Festlegung des Dermomyotoms und Myotoms wird durch ein Genregulationsnetzwerk reguliert, das unter anderem ein Mitglied der T-Box- Familie, TBX6, RIPPLY1 und MESP-BA umfasst. [ 10 ] Die Skelettmuskelbildung ist abhängig von der strengen Regulation verschiedener Gen-Subsets, um die myogenen Vorläuferzellen zu Muskelfasern zu differenzieren. Die basischen Helix-Loop-Helix (bHLH)-Transkriptionsfaktoren MyoD, Myf5, Myogenin und MRF4 sind für diese Entwicklung entscheidend. MyoD und Myf5 ermöglichen die Differenzierung der myogenen Vorläuferzellen zu Myoblasten, gefolgt von Myogenin, das die Myoblasten zu Myotuben differenziert. [ 9 ] MRF4 ist wichtig für die Blockierung der Transkription muskelspezifischer Promotoren, wodurch Skelettmuskel-Vorläuferzellen wachsen und sich vermehren können, bevor sie sich differenzieren.

Eine Reihe von Ereignissen trägt zur Spezifizierung von Muskelzellen im Somiten bei. Sowohl in den lateralen als auch in den medialen Bereichen des Somiten induzieren parakrine Faktoren Myotomzellen zur Produktion des MyoD-Proteins und führen so zu deren Entwicklung zu Muskelzellen. [ 11 ] Ein Transkriptionsfaktor ( TCF4 ) von Bindegewebsfibroblasten ist an der Regulation der Myogenese beteiligt. Er reguliert insbesondere den Typ der entstehenden Muskelfasern und deren Reifung. [ 3 ] Niedrige TCF4-Konzentrationen fördern sowohl die langsame als auch die schnelle Myogenese und somit insgesamt die Reifung des Muskelfasertyps. Dies verdeutlicht die enge Verbindung zwischen Muskel und Bindegewebe während der Embryonalentwicklung. [ 12 ]
Die Regulation der myogenen Differenzierung erfolgt über zwei Signalwege: den Phosphatidylinositol-3-Kinase /Akt-Signalweg und den Notch /Hes-Signalweg, die synergistisch die MyoD-Transkription unterdrücken. [ 5 ] Die O-Subfamilie der Forkhead-Proteine ( FOXO ) spielt eine entscheidende Rolle bei der Regulation der myogenen Differenzierung, da sie die Notch/Hes-Bindung stabilisiert. Untersuchungen haben gezeigt, dass die Deletion von FOXO1 in Mäusen die MyoD-Expression erhöht und die Verteilung von schnell- und langsamzuckenden Muskelfasern verändert. [ 5 ]
Muskelfusion
Primäre Muskelfasern entstehen aus primären Myoblasten und entwickeln sich tendenziell zu langsamen Muskelfasern. [ 3 ] Sekundäre Muskelfasern bilden sich dann um die primären Fasern herum, etwa zum Zeitpunkt der Innervation. Diese Muskelfasern entstehen aus sekundären Myoblasten und entwickeln sich üblicherweise zu schnellen Muskelfasern. Schließlich entstehen die später gebildeten Muskelfasern aus Satellitenzellen. [ 3 ]
Zwei für die Muskelfusion wichtige Gene sind Mef2 und der Transkriptionsfaktor Twist . Studien haben gezeigt, dass der Knockout von Mef2C bei Mäusen zu Muskeldefekten in der Entwicklung von Herz- und glatter Muskulatur, insbesondere in der Fusion, führt. [ 13 ] Das Twist-Gen spielt eine Rolle bei der Muskeldifferenzierung.
Das Gen SIX1 spielt eine entscheidende Rolle bei der Differenzierung der hypaxialen Muskulatur während der Myogenese. Bei Mäusen, denen dieses Gen fehlt, betrifft eine schwere Muskelhypoplasie den Großteil der Körpermuskulatur, insbesondere die hypaxiale Muskulatur. [ 14 ]
In Myoblasten wird PtdIns5P, das von der Lipidphosphatase MTM1 produziert wird, rasch durch die PI5P-4-Kinase α zu PI(4,5)P2 metabolisiert, welches sich an der Plasmamembran anreichert. Diese Anreicherung begünstigt die Bildung podosomenartiger Ausstülpungen, in denen das Fusogen Myomaker lokalisiert ist und eine entscheidende Rolle bei der räumlich-zeitlichen Regulation der Myoblastenfusion spielt. [ 15 ]
Proteinsynthese und Aktinheterogenität
Während der Myogenese werden drei Proteintypen gebildet. [ 4 ] Proteine der Klasse A sind am häufigsten und werden kontinuierlich während der gesamten Myogenese synthetisiert. Proteine der Klasse B werden während der Myogenese initiiert und kontinuierlich während der Entwicklung gebildet. Proteine der Klasse C werden zu spezifischen Zeitpunkten während der Entwicklung synthetisiert. Außerdem wurden während der Myogenese drei verschiedene Aktinformen identifiziert .
Sim2 , ein BHLH-Pas-Transkriptionsfaktor , hemmt die Transkription durch aktive Repression und zeigt während der embryonalen Entwicklung von Huhn und Maus eine erhöhte Expression in der ventralen Extremitätenmuskulatur. Dies erreicht er durch die Repression der MyoD-Transkription mittels Bindung an die Enhancer-Region und verhindert so eine vorzeitige Myogenese. [ 16 ]
Die Expression von Delta1 in Neuralleistenzellen ist über den Notch-Signalweg für die Muskeldifferenzierung der Somiten notwendig . Gewinn oder Verlust dieses Liganden in Neuralleistenzellen führt zu einer verzögerten bzw. vorzeitigen Myogenese. [ 17 ]
Techniken
Die Bedeutung des alternativen Spleißens wurde mittels Mikroarray-Analyse differenzierender C2C12- Myoblasten aufgeklärt . [ 18 ] Während der Myogenese von C2C12- Zellen treten 95 alternative Spleißereignisse auf . Daher ist alternatives Spleißen für die Myogenese notwendig.
Systemansatz
Der systembiologische Ansatz ist eine Methode zur Untersuchung der Myogenese, die verschiedene Techniken wie Hochdurchsatz-Screening- Verfahren, genomweite zellbasierte Assays und Bioinformatik nutzt , um unterschiedliche Faktoren eines Systems zu identifizieren. [ 9 ] Er wurde insbesondere zur Erforschung der Skelettmuskelentwicklung und zur Identifizierung ihres regulatorischen Netzwerks eingesetzt.
Systembiologische Ansätze mittels Hochdurchsatzsequenzierung und ChIP-Chip- Analyse waren entscheidend für die Aufklärung der Zielgene myogener regulatorischer Faktoren wie MyoD und Myogenin, ihrer Wechselwirkungen und der Wirkungsweise von MyoD bei der Veränderung des Epigenoms in Myoblasten und Myotuben. [ 9 ] Dies hat auch die Bedeutung von PAX3 für die Myogenese aufgezeigt und gezeigt, dass es das Überleben myogener Vorläuferzellen sichert. [ 9 ]
Dieser Ansatz, der auf einem zellbasierten Hochdurchsatz-Transfektionsassay und einer Ganzpräparat- In-situ-Hybridisierung basiert , wurde zur Identifizierung des myogenetischen Regulators RP58 und des Sehnendifferenzierungsgens Mohawk Homeobox verwendet. [ 9 ]
Referenzen
- ^ Yaffe, David; Feldman, Michael (1965). „Die Bildung hybrider mehrkerniger Muskelfasern aus Myoblasten unterschiedlicher genetischer Herkunft“. Developmental Biology . 11 (2): 300–317 . doi : 10.1016/0012-1606(65)90062-X . PMID 14332576 .
- Vlahopoulos S, Zimmer WE, Jenster G, Belaguli NS, Balk SP, Brinkmann AO, Lanz RB, Zoumpourlis VC, Schwartz RJ, et al. (2005). „Rekrutierung des Androgenrezeptors über den Serum-Response-Faktor erleichtert die Expression eines myogenen Gens“ . J Biol Chem . 280 (9): 7786–92 . doi : 10.1074/jbc.M413992200 . PMID 15623502 .
- Pestronk , Alan . „ Myogenesis & Muscle Regeneration “ . WU Neuromuscular . Washington University . Abgerufen am 16.03.2013 .
- ^ a b Harovltch, Sharon (1975). „Myogenese in primären Zellkulturen von Drosophila melanogaster: Proteinsynthese und Aktinheterogenität während der Entwicklung“. Cell . 66 ( 4): 1281–6 . doi : 10.1016/0092-8674(78)90210-6 . PMID 418880. S2CID 10811840 .
- ^ a b c Kitamura, Tadahiro; Kitamura YI; Funahashi Y; Shawber CJ; Castrillon DH; Kollipara R; DePinho RA; Kitajewski J; Accili D (4. September 2007). „Ein Foxo/Notch-Weg steuert die myogene Differenzierung und die Spezifikation des Fasertyps . “ Das Journal of Clinical Investigation . 117 (9): 2477–2485 . doi : 10.1172/JCI32054 . PMC 1950461 . PMID 17717603 .
- Maroto , M.; Reshef, R.; Münsterberg, A. E.; Koester, S.; Goulding, M.; Lassar, A. B. (4. April 1997). „ Ektopisches Pax -3 aktiviert die Expression von MyoD und Myf-5 im embryonalen Mesoderm und Nervengewebe“ . Cell . 89 (1): 139–148 . doi : 10.1016/S0092-8674(00)80190-7 . PMID 9094722 .
- ^ Li S, Czubryt MP, McAnally J, Bassel-Duby R, Richardson JA, Wiebel FF, Nordheim A, Olson EN (Januar 2005). „Requirement for serum response factor for skeletal muscle growth and maturation revealed by tissue-specific gene deletion in mice“ . Proc . Natl. Acad. Sci. USA . 102 (4): 1082–7 . Bibcode : 2005PNAS..102.1082L . doi : 10.1073/pnas.0409103102 . PMC 545866. PMID 15647354 .
- ^ Vlahopoulos S, Zimmer WE, Jenster G, Belaguli NS, Balk SP, Brinkmann AO, Lanz RB, Zoumpourlis VC, Schwartz RJ (März 2005). „Rekrutierung des Androgenrezeptors über den Serum-Response-Faktor erleichtert die Expression eines myogenen Gens“ . J. Biol. Chem . 280 (9): 7786–92 . doi : 10.1074/jbc.M413992200 . PMID 15623502 .
- ^ a b c d e f Ito, Yoshiaki (2012). „ Ein systemorientierter Ansatz zur Skelettmuskelbildung“ . International Journal of Genomics . 2012. Hindawi Publishing Organization: 1–7 . doi : 10.1155/2012/759407 . PMC 3443578. PMID 22991503 .
- Windner SE, Doris RA, Ferguson CM, Nelson AC, Valentin G, Tan H, Oates AC, Wardle FC, Devoto SH (2015). „Tbx6, Mesp-b und Ripply1 regulieren den Beginn der Skelettmuskelbildung im Zebrafisch“ . Development . 142 ( 6) dev.113431: 1159–68 . doi : 10.1242/dev.113431 . PMC 4360180. PMID 25725067 .
- ^ Maroto, M.; Reshef, R.; Münsterberg, A. E.; Koester, S.; Goulding, M.; Lassar, A. B. (4. April 1997). „Ektopisches Pax-3 aktiviert die Expression von MyoD und Myf-5 im embryonalen Mesoderm und Nervengewebe“ . Cell . 89 (1): 139–148 . doi : 10.1016/S0092-8674(00)80190-7 . PMID 9094722 .
- ^ Mathew, Sam J.; Hansen JM; Merrell AJ; Murphy MM; Lawson JA; Hutcheson DA; Hansen MS; Angus-Hill M; Kardon G (15. Januar 2011). „Bindegewebsfibroblasten und Tcf4 regulieren die Myogenese“ . Development . 138 ( 2): 371–384 . doi : 10.1242/dev.057463 . PMC 3005608. PMID 21177349 .
- ^ Baylies, Mary (2001). „Invertebraten-Myogenese: Ein Blick zurück in die Zukunft der Muskelentwicklung“. Current Opinion in Genetics & Development . 66 (4): 1281–6 . doi : 10.1016/s0959-437x(00)00214-8 . PMID 11448630 .
- ^ Laclef, Christine; Hamard G; Demignon J; Souil E; Houbron C; Maire P (14. Februar 2003). „Veränderte Myogenese bei Six1-defizienten Mäusen“. Development . 130 (10): 2239–2252 . doi : 10.1242/dev.00440 . PMID 12668636 .
- ^ Mansat, Mélanie; Kpotor, Afi Oportune; Chicanne, Gaëtan; et al. (04.06.2024). „MTM1-vermittelte Produktion von Phosphatidylinositol-5-phosphat fördert die Bildung podosomenartiger Ausstülpungen und reguliert so die Myoblastenfusion“ . Proc. Natl. Acad. Sci. USA . 121 (23) e2217971121. doi : 10.1073/pnas.2217971121 . PMC 11161799. PMID 38805272 .
- ^ Havis, Emmanuelle; Pascal Coumailleau; Aline Bonnet; Keren Wismut; Marie-Ange Bonnin; Randy Johnson; Chen-Min Fan; Frédéric Relaix; De-Li Shi; Delphine Duprez (16.03.2012). „Entwicklung und Stammzellen“ . Entwicklung . 139 (7): 1910–1920 . doi : 10.1242/dev.072561 . PMC 3347684 . PMID 22513369 .
- Rios , Anne; Serralbo, Olivier; Salgado, David; Marcelle, Christophe (15.06.2011). „Neurale Leiste reguliert Myogenese durch die vorübergehende Aktivierung von NOTCH“. Nature . 473 ( 7348): 532–535 . Bibcode : 2011Natur.473..532R . doi : 10.1038/nature09970 . PMID 21572437. S2CID 4380479 .
- ^ Bland, CS; Wang, David; Johnson, Castle; Burge, Cooper (Juli 2010). „Globale Regulation des alternativen Spleißens während der myogenen Differenzierung“ . Nucleic Acids Research . 38 (21): 7651–7664 . doi : 10.1093 / nar/gkq614 . hdl : 1721.1/66688 . PMC 2995044. PMID 20634200 .