Prolin (Symbol Pro oder P ) [ 4 ] ist eine organische Säure, die zu den proteinogenen Aminosäuren zählt (sie wird in der Biosynthese von Proteinen verwendet), obwohl sie keine Aminogruppe -NH enthält.2Es handelt sich vielmehr um ein sekundäres Amin . Der Stickstoff des sekundären Amins liegt unter biologischen Bedingungen protoniert (NH₂⁺ ) vor, während die Carboxylgruppe deprotoniert (−COO− ) ist . Die Seitenkette des α-Kohlenstoffs ist mit dem Stickstoff verbunden und bildet eine Pyrrolidinschleife , wodurch es zu den aliphatischen Aminosäuren zählt . Es ist für den Menschen nicht essentiell, d. h. der Körper kann es aus der nicht essentiellen Aminosäure L - Glutamat synthetisieren . Es wird durch alle Codons codiert , die mit CC beginnen (CCU, CCC, CCA und CCG).
Prolin ist die einzige proteinogene Aminosäure, die ein sekundäres Amin ist , da das Stickstoffatom sowohl an das α-Kohlenstoffatom als auch an eine Kette aus drei Kohlenstoffatomen gebunden ist, die zusammen einen Fünfring bilden.
Geschichte und Etymologie
Prolin wurde erstmals 1900 von Richard Willstätter isoliert , der die Aminosäure bei Untersuchungen von N- Methylprolin gewann und Prolin durch die Reaktion des Natriumsalzes von Diethylmalonat mit 1,3-Dibrompropan synthetisierte . Im darauffolgenden Jahr isolierte Emil Fischer Prolin aus Casein und den Zersetzungsprodukten von γ-Phthalimidopropylmalonsäureester [ 5 ] und veröffentlichte die Synthese von Prolin aus Phthalimidopropylmalonsäureester [ 6 ] .
Der Name Prolin leitet sich von Pyrrolidin ab , einem seiner Bestandteile. [ 7 ]
Biosynthese
Prolin wird biosynthetisch aus der Aminosäure L - Glutamat gebildet . Glutamat-5-semialdehyd entsteht zunächst durch Glutamat-5-Kinase (ATP-abhängig) und Glutamat-5-semialdehyd-Dehydrogenase (die NADH oder NADPH benötigt). Dieses kann dann entweder spontan zu 1-Pyrrolin-5-carbonsäure cyclisieren , welche durch Pyrrolin-5-carboxylat-Reduktase (unter Verwendung von NADH oder NADPH) zu Prolin reduziert wird, oder durch Ornithin-Aminotransferase in Ornithin umgewandelt werden , welches anschließend durch Ornithin-Cyclodeaminase zu Prolin cyclisiert wird. [ 8 ]

Biologische Aktivität
L -Prolin wirkt als schwacher Agonist des Glycinrezeptors sowie sowohl von NMDA- als auch von Nicht-NMDA-( AMPA / Kainat ) -ionotropen Glutamatrezeptoren . [ 9 ] [ 10 ] [ 11 ] Es wird als potenzielles endogenes Exzitotoxin diskutiert . [ 9 ] [ 10 ] [ 11 ] In Pflanzen ist die Prolinakkumulation eine häufige physiologische Reaktion auf verschiedene Stressfaktoren, aber auch Teil des Entwicklungsprogramms in generativen Geweben (z. B. Pollen ). [ 12 ] [ 13 ] [ 14 ] [ 15 ]
EPRS1 belädt sich mit Prolin, um es auf tRNA zu übertragen , die es während der Proteinübersetzung in die neu synthetisierte Peptidkette einbauen kann. [ 16 ]
EPRS1 wirkt in menschlichen Zellen als proviraler Faktor bei der Infektion mit Mammarenaviren, einschließlich LCMV , JUNV und LASV , und seine Hemmung mit der Verbindung Halofuginon , einem Prolyldomäneninhibitor, hebt die Virusinfektion vollständig auf, indem sie die Virusassemblierung und -knospung unterbricht. [ 17 ]
Eine prolinreiche Ernährung wurde in einer Studie aus dem Jahr 2022, die in einer begrenzten präklinischen Studie an Menschen und hauptsächlich an anderen Organismen getestet wurde, mit einem erhöhten Depressionsrisiko in Verbindung gebracht. Die Ergebnisse waren bei den anderen Organismen signifikant. [ 18 ]
Eigenschaften der Proteinstruktur
Die charakteristische zyklische Struktur der Prolin-Seitenkette verleiht Prolin im Vergleich zu anderen Aminosäuren eine außergewöhnliche Konformationsstabilität. Sie beeinflusst auch die Geschwindigkeit der Peptidbindung zwischen Prolin und anderen Aminosäuren. Liegt Prolin als Amid in einer Peptidbindung vor, ist sein Stickstoffatom nicht an ein Wasserstoffatom gebunden, sodass es nicht als Wasserstoffbrückendonator , sondern nur als Wasserstoffbrückenakzeptor fungieren kann.
Die Peptidbindung mit der einlaufenden Pro-tRNA <sup>Pro</sup> im Ribosom verläuft deutlich langsamer als mit anderen tRNAs, was ein allgemeines Merkmal von N -Alkylaminosäuren ist. [ 19 ] Auch die Peptidbindung zwischen einer einlaufenden tRNA und einer mit Prolin endenden Kette verläuft langsam; die Bildung von Prolin-Prolin-Bindungen ist dabei am langsamsten. [ 20 ]
Die außergewöhnliche Konformationsstabilität von Prolin beeinflusst die Sekundärstruktur von Proteinen in der Nähe eines Prolinrests und könnte die höhere Prävalenz von Prolin in den Proteinen thermophiler Organismen erklären. Die Proteinsekundärstruktur lässt sich anhand der Diederwinkel φ, ψ und ω des Proteinrückgrats beschreiben. Die zyklische Struktur der Prolin-Seitenkette fixiert den Winkel φ bei etwa −65°. [ 21 ]
Prolin wirkt als Strukturstörer innerhalb regulärer Sekundärstrukturelemente wie Alpha-Helices und Beta-Faltblättern ; dennoch findet man Prolin häufig als ersten Rest einer Alpha-Helix und auch in den Randsträngen von Beta-Faltblättern . Prolin kommt außerdem häufig in Schleifen (einer anderen Art von Sekundärstruktur) vor und trägt zur Bildung von Beta-Schleifen bei. Dies könnte die ungewöhnliche Tatsache erklären, dass Prolin trotz seiner rein aliphatischen Seitenkette üblicherweise lösungsmittelzugänglich ist .
Mehrere Prolin- und/oder Hydroxyprolinreste in Folge können eine Polyprolinhelix bilden , die vorherrschende Sekundärstruktur im Kollagen . Die Hydroxylierung von Prolin durch Prolylhydroxylase (oder die Anlagerung anderer elektronenziehender Substituenten wie Fluor ) erhöht die Konformationsstabilität von Kollagen signifikant. [ 22 ] Daher ist die Hydroxylierung von Prolin ein entscheidender biochemischer Prozess für den Erhalt des Bindegewebes höherer Organismen. Schwere Erkrankungen wie Skorbut können durch Defekte in dieser Hydroxylierung entstehen, z. B. durch Mutationen des Enzyms Prolylhydroxylase oder durch einen Mangel des notwendigen Cofaktors Ascorbat (Vitamin C) .
cis - trans- Isomerisierung
Peptidbindungen zu Prolin und anderen N- substituierten Aminosäuren (wie Sarkosin ) können sowohl in cis- als auch in trans- Konformation vorliegen. Die meisten Peptidbindungen liegen überwiegend in der trans- Konformation vor (typischerweise 99,9 % unter spannungsfreien Bedingungen), hauptsächlich weil das Amidwasserstoffatom ( trans- Isomer) eine geringere sterische Hinderung zum vorhergehenden Cα-Atom aufweist als das nachfolgende Cα - Atom ( cis- Isomer). Im Gegensatz dazu erfahren die cis- und trans- Isomere der X-Pro-Peptidbindung (wobei X für eine beliebige Aminosäure steht) sterische Wechselwirkungen mit der benachbarten Substitution und weisen eine deutlich geringere Energiedifferenz auf. Daher ist der Anteil der X-Pro-Peptidbindungen in der cis- Konformation unter spannungsfreien Bedingungen signifikant erhöht und liegt typischerweise im Bereich von 3–10 %. [ 23 ] Diese Werte hängen jedoch von der vorhergehenden Aminosäure ab, wobei Glycin [ 24 ] und aromatische [ 25 ] Reste zu erhöhten Anteilen des cis- Isomers führen. Für aromatische Prolin-Peptidbindungen wurden cis- Anteile von bis zu 40 % identifiziert. [ 26 ]
Aus kinetischer Sicht ist die cis - trans- Prolin -Isomerisierung ein sehr langsamer Prozess, der die Proteinfaltung behindern kann, indem er ein oder mehrere für die Faltung essentielle Prolinreste im nicht-nativen Isomer fixiert, insbesondere wenn das native Protein das cis- Isomer benötigt. Dies liegt daran, dass Prolinreste im Ribosom ausschließlich als trans -Isomer synthetisiert werden. Alle Organismen besitzen Prolyl-Isomerasen, die diese Isomerisierung katalysieren, und einige Bakterien verfügen über spezialisierte, ribosomal assoziierte Prolyl-Isomerasen. Allerdings sind nicht alle Proline für die Faltung essentiell, und die Proteinfaltung kann trotz des Vorhandenseins nicht-nativer Konformere vieler X-Pro-Peptidbindungen normal verlaufen.
Verwendung
Prolin und seine Derivate werden häufig als asymmetrische Katalysatoren in Prolin-Organokatalyse -Reaktionen eingesetzt. Die CBS-Reduktion und die Prolin-katalysierte Aldolkondensation sind prominente Beispiele.
Beim Brauen verbinden sich prolinreiche Proteine mit Polyphenolen und führen zu Trübungen. [ 27 ]
L -Prolin ist ein Osmoprotektivum und wird daher in vielen pharmazeutischen und biotechnologischen Anwendungen eingesetzt.
Das in der Pflanzenzellkultur verwendete Wachstumsmedium kann mit Prolin angereichert werden. Dies kann das Wachstum fördern, möglicherweise weil es der Pflanze hilft, die Belastungen der Zellkultur besser zu tolerieren. [ 28 ] Zur Rolle von Prolin in der Stressreaktion von Pflanzen siehe Abschnitt „Biologische Aktivität“ .
Spezialgebiete
Prolin ist neben Glycin eine der beiden Aminosäuren, die nicht dem typischen Ramachandran-Plot folgen . Aufgrund der Ringbildung am β-Kohlenstoffatom weisen die ψ- und φ- Winkel um die Peptidbindung einen geringeren Rotationsspielraum auf. Daher findet man Prolin häufig in den Schleifen von Proteinen, da seine freie Entropie (ΔS ) im Vergleich zu anderen Aminosäuren geringer ist und somit der Entropieunterschied zwischen gefalteter und ungefalteter Form kleiner ausfällt. Darüber hinaus kommt Prolin selten in α- und β-Faltblattstrukturen vor, da es deren Stabilität verringern würde, weil sein α-Stickstoff in der Seitenkette nur eine Stickstoffbindung ausbilden kann.
Prolin ist zudem die einzige Aminosäure, die bei der Reaktion mit Ninhydrin für chromatographische Anwendungen keine rot-violette Färbung annimmt . Stattdessen ergibt Prolin eine orange-gelbe Färbung.
Synthese
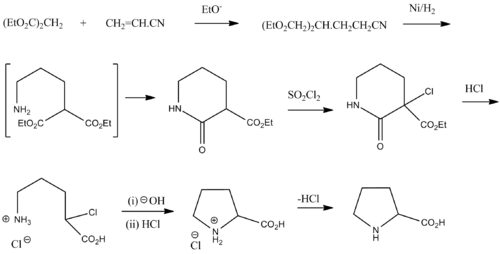
Racemisches Prolin kann aus Diethylmalonat und Acrylnitril synthetisiert werden : [ 29 ]
Siehe auch
Referenzen
- ^ „Prolin“ . PubChem . US National Library of Medicine. Archiviert vom Original am 16. Januar 2014. Abgerufen am 8. Mai 2018 .
- ^ Belitz HD, Grosch W, Schieberle P (15.01.2009). Lebensmittelchemie . Springer. P. 15. ISBN 978-3-540-69933-0Archiviert vom Original am 15.05.2016 .
- ^ Nelson DL, Cox MM. Principles of Biochemistry . New York: WH Freeman and Company.
- ^ „Nomenklatur und Symbolik für Aminosäuren und Peptide“ . Gemeinsame Kommission der IUPAC und IUB für Biochemische Nomenklatur. 1983. Archiviert vom Original am 9. Oktober 2008. Abgerufen am 5. März 2018 .
- ^ Plimmer RH (1912) [1908], Plimmer RH, Hopkins FG (Hrsg.), Die chemische Zusammensetzung der Proteine , Monographien zur Biochemie, Bd. Teil I. Analyse (2. Aufl.), London: Longmans, Green and Co., S. 130 , abgerufen am 20. September 2010
- ^ „Prolin“ . Aminosäuren-Leitfaden . Archiviert vom Original am 27.11.2015.
- ^ „Prolin“ . American Heritage Dictionary of the English Language, 4. Auflage . Archiviert vom Original am 15.09.2015 . Abgerufen am 06.12.2015 .
- ^ Lehninger AL, Nelson DL, Cox MM (2000). Principles of Biochemistry (3. Aufl.). New York: W. H. Freeman. ISBN 1-57259-153-6DieDie
- ^ a b Ion Channel Factsbook: Extracellular Ligand-Gated Channels . Academic Press. 16. November 1995. S. 126. ISBN 978-0-08-053519-7Archiviert vom Original am 26. April 2016 .
- ^ a b Henzi V, Reichling DB, Helm SW, MacDermott AB (April 1992). „L-Prolin aktiviert Glutamat- und Glycinrezeptoren in kultivierten Hinterhornneuronen der Ratte“ . Molecular Pharmacology . 41 (4): 793–801 . doi : 10.1016/S0026-895X(25)09065-0 . PMID 1349155 .
{{cite journal}}CS1-Wartung: Veralteter Archivierungsdienst ( Link ) - ^ a b Arslan OE (7. August 2014). Neuroanatomische Grundlagen der klinischen Neurologie (2. Aufl.). CRC Press. S. 309. ISBN 978-1-4398-4833-3Archiviert vom Original am 14. Mai 2016 .
- Verbruggen N, Hermans C (November 2008). „Prolinakkumulation in Pflanzen: ein Überblick“ ( PDF) . Amino Acids . 35 (4): 753–759 . doi : 10.1007/s00726-008-0061-6 . PMID 18379856. S2CID 21788988 .
- ^ Shrestha A, Fendel A, Nguyen TH, Adebabay A, Kullik AS, Benndorf J, et al. (September 2022). „Natürliche Diversität enthüllt die P5CS1-Regulation und ihre Rolle bei der Trockenstresstoleranz und Ertragsstabilität in Gerste“ . Plant, Cell & Environment . 45 (12): 3523–3536 . Bibcode : 2022PCEnv..45.3523S . doi : 10.1111 / pce.14445 . PMID 36130879. S2CID 252438394 .
- ^ Shrestha A, Cudjoe DK, Kamruzzaman M, Siddique S, Fiorani F, Léon J, Naz AA (Juni 2021). „Abscisinsäure-responsive Element-bindende Transkriptionsfaktoren tragen zur Prolinsynthese und Stressanpassung in Arabidopsis bei“. Journal of Plant Physiology . 261 153414. Bibcode : 2021JPPhy.26153414S . doi : 10.1016/j.jplph.2021.153414 . PMID 33895677. S2CID 233397785 .
- ^ Muzammil S, Shrestha A, Dadshani S, Pillen K, Siddique S, Léon J, Naz AA (Oktober 2018). „Ein ursprüngliches Allel der Pyrrolin-5-Carboxylat-Synthase 1 fördert die Prolinakkumulation und die Anpassung an Trockenheit in Kulturgerste“ . Plant Physiology . 178 (2): 771–782 . doi : 10.1104/pp.18.00169 . PMC 6181029. PMID 30131422 .
- ^ Witwit, Haydar; Ibanez, Pablo; Zhou, Ruifeng; Jackson, Nathaniel; Escobedo, Ruby; Cubitt, Beatrice; Khafaji, Roaa; Sattler, Rachel Y.; Martinez-Sobrido, Luis; de la Torre, Juan Carlos (04.02.2026). „Prolyl-tRNA-Synthetase ist für die Vermehrung des Mammarenavirus erforderlich“ . Viren . 18 (2): 202. doi : 10.3390/v18020202 . ISSN 1999-4915 .
- ^ Witwit, Haydar; Ibanez, Pablo; Zhou, Ruifeng; Jackson, Nathaniel; Escobedo, Ruby; Cubitt, Beatrice; Khafaji, Roaa; Sattler, Rachel Y.; Martinez-Sobrido, Luis; de la Torre, Juan Carlos (04.02.2026). „Prolyl-tRNA-Synthetase ist für die Vermehrung des Mammarenavirus erforderlich“ . Viren . 18 (2): 202. doi : 10.3390/v18020202 . ISSN 1999-4915 .
- ^ Mayneris-Perxachs J, Castells-Nobau A, Arnoriaga-Rodríguez M, Martin M, de la Vega-Correa L, Zapata C, et al. (Mai 2022). „Mikrobiota-Veränderungen im Prolinstoffwechsel wirken sich auf Depressionen aus“ . Zellstoffwechsel . 34 (5): 681–701.e10. doi : 10.1016/j.cmet.2022.04.001 . HDL : 10230/53513 . PMID 35508109 . S2CID 248528026 .
- Pavlov MY, Watts RE, Tan Z, Cornish VW, Ehrenberg M, Forster AC (Januar 2009). „Langsame Peptidbindungsbildung durch Prolin und andere N -Alkylaminosäuren während der Translation“ . Proceedings of the National Academy of Sciences of the United States of America . 106 (1): 50–54 . Bibcode : 2009PNAS..106...50P . doi : 10.1073 / pnas.0809211106 . PMC 2629218. PMID 19104062 . Die
- ^ Buskirk AR, Green R (Januar 2013). „Biochemie. Überwindung von Polyprolinpausen“ . Science . 339 ( 6115): 38–39 . Bibcode : 2013Sci...339...38B . doi : 10.1126/science.1233338 . PMC 3955122. PMID 23288527 .
- ^ Morris AL, MacArthur MW, Hutchinson EG, Thornton JM (April 1992). „ Stereochemische Qualität von Proteinstrukturkoordinaten“. Proteins . 12 (4): 345–364 . doi : 10.1002/prot.340120407 . PMID 1579569. S2CID 940786 .
- ^ Szpak P (2011). „Chemie und Ultrastruktur von Fischknochen: Implikationen für die Taphonomie und die Analyse stabiler Isotope“ . Journal of Archaeological Science . 38 (12): 3358–3372 . Bibcode : 2011JArSc..38.3358S . doi : 10.1016/j.jas.2011.07.022 . Archiviert vom Original am 18.01.2012.
- ^ Alderson TR, Lee JH, Charlier C, Ying J, Bax A (Januar 2018). „Neigung zur cis -Prolinbildung in ungefalteten Proteinen“ . ChemBioChem . 19 ( 1): 37–42 . doi : 10.1002/cbic.201700548 . PMC 5977977. PMID 29064600 .
- ^ Sarkar SK, Young PE, Sullivan CE, Torchia DA (August 1984). „Nachweis von cis- und trans -X–Pro-Peptidbindungen in Proteinen mittels 13C-NMR: Anwendung auf Kollagen“ . Proceedings of the National Academy of Sciences of the United States of America . 81 (15): 4800–4803 . Bibcode : 1984PNAS...81.4800S . doi : 10.1073 / pnas.81.15.4800 . PMC 391578. PMID 6589627 .
- ^ Thomas KM, Naduthambi D, Zondlo NJ (Februar 2006). „Elektronische Kontrolle der cis - trans- Isomerie von Amiden über die aromatisch-prolylische Wechselwirkung“. Journal of the American Chemical Society . 128 (7): 2216–2217 . doi : 10.1021/ja057901y . PMID 16478167 .
- ^ Gustafson CL, Parsley NC, Asimgil H, Lee HW, Ahlbach C, Michael AK, et al. (Mai 2017). „Ein langsamer Konformationswechsel in der BMAL1-Transaktivierungsdomäne moduliert den zirkadianen Rhythmus“ . Molecular Cell . 66 (4): 447–457.e7. doi : 10.1016/ j.molcel.2017.04.011 . PMC 5484534. PMID 28506462 .
- ^ Siebert KJ. „Haze and Foam“ . Cornell AgriTech . Archiviert vom Original am 11.07.2010 . Abgerufen am 13.07.2010 .Zugriff am 12. Juli 2010.
- ^ Pazuki A, Asghari J, Sohani MM, Pessarakli M, Aflaki F ( 2015). „Einfluss einiger organischer Stickstoffquellen und Antibiotika auf das Kalluswachstum von Indica-Reissorten“. Journal of Plant Nutrition . 38 (8): 1231–1240 . Bibcode : 2015JPlaN..38.1231P . doi : 10.1080/01904167.2014.983118 . S2CID 84495391 .
- ^ Vogel, Praktische Organische Chemie, 5. Auflage
Weiterführende Literatur
- Balbach J, Schmid FX (2000). „Prolinisomerisierung und ihre katalytische Rolle bei der Proteinfaltung“. In: Pain RH (Hrsg.). Mechanismen der Proteinfaltung (2. Aufl.). Oxford University Press. S. 212–249 . ISBN 978-0-19-963788-1DieDie