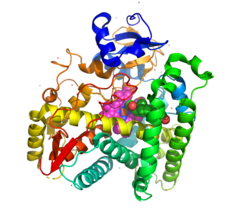
Die protonentranslozierende NAD(P) ⁺- Transhydrogenase (EC 7.1.1.1 ) ist ein Enzym , das die Translokation von Protonen katalysiert , die an die Redoxreaktion NADH + NADP⁺ + H⁺ (außen) → NAD⁺ + NADPH + H⁺ ( innen) gebunden sind .
EG-Nummer 7.1.1.1
EC 7 – Translokasen sind eine Gruppe von Enzymen mit der gemeinsamen Funktion, beim Transport eines Moleküls, typischerweise durch eine Membran, zu helfen.
EC 7.1 – Enzyme, die die Translokation von Hydronen (den positiven Kationen aller Wasserstoffisotope, z. B. Protonen, Deuteronen, Tritonen) katalysieren
EC 7.1.1 – Enzyme, die die Translokation von Hydronen katalysieren und mit Oxidoreduktase -Reaktionen in Verbindung stehen
EC 7.1.1.1 – Protonen-translozierende NAD(P) + Transhydrogenase. [ 1 ]
Reaktionsweg
Die Reaktion, die dieses Enzym katalysiert, ist
NADH + NADP ++ + H + außen => NAD ++ + NADPH + H + innen
Diese Redoxreaktion ist ein Transfer von Hydrid-Äquivalenten von NADH auf NADP +, gekoppelt an einen Protonentransport durch eine Membran. NADP + wird durch NADH zu NADPH reduziert, welches zu NAD + oxidiert wird . Diese Reduktion ist an den Protonentransport durch die Membran gekoppelt. [ 2 ] Dieser Prozess ist nicht notwendigerweise gekoppelt, tritt aber in der Natur gekoppelt auf. [ 2 ]
Bekannte Organismen und Fundorte
Die Transhydrogenase findet sich in den inneren Mitochondrienmembranen aller Wirbeltiere außer Fischen. Sie fehlt zwar in der Hefe Saccharomyces cerevisiae , kommt aber in Algen wie Acetabularia acetabulum sowie in der cytosolischen Membran vieler Bakterien, darunter Escherichia coli , vor . [ 3 ] In E. coli trägt das Enzym unter Standardwachstumsbedingungen zur Bereitstellung von 35–45 % des cytosolischen NADPH bei. [ 4 ] E. coli dient uns als Modellorganismus für die Untersuchung von Struktur und Funktion.
Beschreibung bekannter Kristallstrukturen/aktiver Zentren
Die Struktur der protonentranslozierenden NADP(+)-Transhydrogenase variiert zwischen verschiedenen Organismen. Die Enzymstrukturen weisen eine gemeinsame Architektur mit drei bekannten Domänen auf: dI, dII und dIII. Unterschiede zeigen sich jedoch in der genauen Struktur und Zusammensetzung dieser Domänen. [ 5 ] Beim Menschen besteht die Struktur aus einer einzigen Polypeptidkette, die alle drei Domänen bildet. Bakterien lassen sich in zwei Hauptgruppen unterteilen. Einige ähneln E. coli und besitzen zwei Untereinheiten, α und β. Andere Bakterien weisen eine ähnliche β-Untereinheit auf, während ihre α-Untereinheit in zwei Untereinheiten gespalten ist, sodass die Domäne dI ein eigenes Polypeptid bildet. [ 6 ] Diese drei Domänen bilden ein Heterotrimer, wobei sich dI und dIII im Zytosol befinden und mit dII verbunden sind. Das Heterotrimer bildet ein Dimer, wobei dI die Dimerisierungseinheit darstellt.
dII
Die Domäne II (dII) besteht aus etwa 400 Aminosäuren und durchspannt die Membran als Protonenkanal. Ihre Transmembrandomäne setzt sich aus 13 α-Helices zusammen . [ 6 ] Da sich beide Enden der dII-Domäne auf der cytosolischen Seite der Membran befinden, wäre eine gerade Anzahl von Helices strukturell sinnvoller. Die gängige Erklärung für die ungerade Anzahl von Helices in dII ist, dass die α- und β-Untereinheiten jeweils eine weitere Helix besitzen, die ihre C- und N-Termini verbindet. [ 2 ] dII weist zudem wenige konservierte Aminosäuren und kürzere Schleifen auf der periplasmatischen Seite der Transmembrandomäne auf, während die cytosolische Seite hochkonservierte und längere Schleifen besitzt. [ 2 ]
dI
Die Domäne dI ist etwa 400 Aminosäuren lang und ragt mit einer Bindungsstelle für NAD(H) in den cytosolischen Raum hinein. In ihrer dimerisierten Form (Homodimer) weist dI mehrere Subdomänen auf, darunter die Bindungsstelle für NAD(H). Zwei Subdomänen, dI1 und dI2, enthalten jeweils eine Rossmann-Faltung , die aus einem 6-strängigen parallelen β-Faltblatt besteht, das von α-Helices umgeben und durch zwei längere α-Helices verbunden ist. [ 6 ] Die C-Termini der beiden dI-Monomere bilden die Substratbindungsspalte für NAD(H). [ 6 ]
dIII
Die Domäne dIII ist etwa 200 Aminosäurereste lang und ragt in den cytosolischen Raum hinein, wo sie eine Bindungsstelle für NADP(H) aufweist. Ähnlich wie dI besitzt dIII eine Rossmann-Faltung. [ 7 ] Im vollständigen Heterotrimer erstreckt sich dIII vermutlich in die Spalte von dI, um die Substratbindungsstellen und die Substrate näher zusammenzubringen und so den Hydridionentransfer von NADH zu NADP<sup> + </sup> zu erleichtern . [ 7 ] Die hohe Affinität zu NADP(H) zeigt sich in der Schleife E, die als Deckel fungiert und eine stärkere Bindung des Liganden über Wasserstoffbrücken ermöglicht. [ 7 ] Zudem existiert ein Fingerprint-Motiv (Gly-X-Gly-XX-Ala/Val), das die Spezifität des Enzyms für die Bindung an das jeweilige Substrat erhöht und hochkonserviert ist. [ 7 ] Die Verbindung zwischen dIII und dII ist weniger starr und besteht aus einer Ansammlung kleinerer polarer Reste sowie einer Helix-D/Schleifen-D-Region, die sich senkrecht von der Rossmann-Faltung erstreckt. [ 7 ]
Struktur ist mit Funktion verbunden
Die Struktur dieses Enzyms ist eng mit seiner Funktion verknüpft. Die aus Alpha-Helices bestehende Transmembrandomäne von dII eignet sich hervorragend für seine Funktion als Protonenkanal durch eine Membran. Auch die Deckel- und Fingerabdruckmotive von dIII, die die Affinität zu NADP(H) erhöhen, sind Beispiele für die enge Verbindung zwischen Struktur und Funktion. Darüber hinaus zeigt die Passung des Stegs von dIII in die Spalte von dI, dass selbst die Struktur des dI/dIII-Dimers dazu beiträgt, die beiden Substrate für den Hydridtransfer näher zusammenzubringen.
Da dieses Enzym in verschiedenen Organismen vorkommt, können mehrere Orthologe dieses Enzyms untersucht werden. Ihre Strukturen sind nicht identisch, aber die meisten weisen eine hohe Ähnlichkeit auf und alle besitzen dieselbe Architektur und dieselben Domänen. [ 8 ] Dies alles zeigt, dass die Struktur dieses Enzyms eng mit seiner Rolle bei der Reduktion von NADP + zusammenhängt .
Enzymfunktionen in der Zelle
NADPH dient in vielen anabolen Reaktionen als Reduktionsmittel. Die Protonen-translozierende NAD(P) +- Transhydrogenase ist einer der Hauptwege, über die Zellen NADPH nach dessen Verbrauch regenerieren können. In E. coli trägt dieser Stoffwechselweg ebenso viel NADPH bei wie der Pentosephosphatweg, und beide waren unter Standardwachstumsbedingungen die Hauptproduzenten von NADPH. [ 4 ]
NADP(H) und NAD(H) tragen gleichermaßen, aber gegensätzlich zum Stoffwechsel bei, und dieses Enzym ist notwendig, um das Gleichgewicht zwischen beiden aufrechtzuerhalten. Da es sich um eine reversible Reaktion handelt, kann es auch einen Protonengradienten über eine Membran erzeugen und wird in bestimmten Organismen zu diesem Zweck genutzt.
„Es kann zur NADPH-Bildung für die Biosynthese und die Glutathionreduktion beitragen , den Fluss durch den Citratzyklus regulieren und, in umgekehrter Funktion bei einigen Wirbellosen, Reduktionskraft von NADPH auf NAD + übertragen , um eine anaerobe Atmungskette anzutreiben.“ – J. Baz Jackson, Sarah J. Peake und Scott A. White zur Rolle der protonentranslozierenden NAD(P) +- Transhydrogenase in der Zelle. [ 3 ]
Referenzen
- ^ Tipton K. „Neuigkeiten zur Enzymnomenklatur: Translokasen (EC 7): Eine neue EC-Klasse“ . ExplorEnz: Die primäre Quelle der IUBMB-Enzymliste . Abgerufen am 2. Oktober 2019 .
- Bizouarn T, Fjellström O, Meuller J, Axelsson M, Bergkvist A, Johansson C, et al . (April 2000). „ Protonentranslozierende Nicotinamid -Nukleotid-Transhydrogenase aus E. coli. Wirkungsmechanismus abgeleitet aus ihren strukturellen und katalytischen Eigenschaften“ . Biochimica et Biophysica Acta . 1457 (3): 211–228 . doi : 10.1016/S0005-2728(00)00103-1 . PMID 10773166 .
- ^ a b Jackson JB, Peake SJ, White SA (Dezember 1999). „Struktur und Mechanismus der protonentranslozierenden Transhydrogenase“. FEBS Letters . 464 ( 1–2 ): 1–8 . Bibcode : 1999FEBSL.464....1J . doi : 10.1016/ S0014-5793 (99)01644-0 . PMID 10611473. S2CID 45559290 .
- ^ a b Sauer U, Canonaco F, Heri S, Perrenoud A, Fischer E (Februar 2004). „Die löslichen und membrangebundenen Transhydrogenasen UdhA und PntAB haben unterschiedliche Funktionen im NADPH-Metabolismus von Escherichia coli . “ Das Journal of Biological Chemistry . 279 (8): 6613– 9. doi : 10.1074/jbc.M311657200 . PMID 14660605 .
- ^ Padayatti PS, Leung JH, Mahinthichaichan P, Tajkhorshid E, Ishchenko A, Cherezov V, et al. (Juli 2017). „Kritische Rolle von Wassermolekülen bei der Protonentranslokation durch die membrangebundene Transhydrogenase“ . Structure . 25 (7): 1111–1119.e3. Bibcode : 2017Struc..25.1111P . doi : 10.1016/j.str.2017.05.022 . PMC 5524145. PMID 28648609 .
- ^ a b c d Johansson T, Oswald C, Pedersen A, Törnroth S, Okvist M, Karlsson BG, et al. (September 2005). „Röntgenstruktur der Domäne I des protonenpumpenden Membranproteins Transhydrogenase aus Escherichia coli“. Journal of Molecular Biology . 352 (2): 299–312 . doi : 10.1016/J.JMB.2005.07.022 . PMID 16083909 .
- ^ a b c d e Jeeves M, Smith KJ, Quirk PG, Cotton NP, Jackson JB (August 2000). „Lösungsstruktur der NADP(H)-bindenden Komponente (dIII) der protonentranslozierenden Transhydrogenase aus Rhodospirillum rubrum“ . Biochimica et Biophysica Acta (BBA) - Bioenergetics . 1459 ( 2–3 ): 248–57 . doi : 10.1016/S0005-2728(00)00159-6 . PMID 11004437 .
- ^ Huxley L, Quirk PG, Cotton NP, White SA, Jackson JB (Januar 2011). „Die Spezifität der protonentranslozierenden Transhydrogenase für Nicotinamidnukleotide“ . Biochimica et Biophysica Acta (BBA) - Bioenergetics . 1807 (1): 85–94 . doi : 10.1016/J.BBABIO.2010.08.005 . PMID 20732298 .