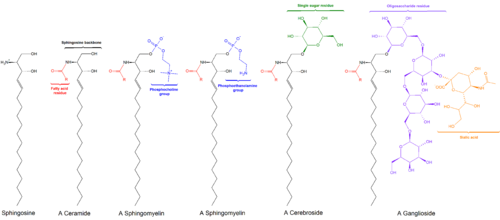
Sphingomyelin ( SM , / ˌsfɪŋɡoʊˈmaɪəlɪn / ) ist ein Sphingolipid , das in tierischen Zellmembranen vorkommt , insbesondere in der Myelinscheide , die einige Nervenzellaxone umgibt . Es besteht üblicherweise aus Phosphocholin und Ceramid oder einer Phosphoethanolamin- Kopfgruppe ; daher können Sphingomyeline auch als Sphingophospholipide klassifiziert werden. [ 1 ] [ 2 ] Beim Menschen macht SM etwa 85 % aller Sphingolipide aus und stellt typischerweise 10–20 Mol- % der Plasmamembranlipide dar .
Sphingomyelin wurde erstmals in den 1880er Jahren von dem deutschen Chemiker Johann L. W. Thudicum isoliert . [ 3 ] Die Struktur von Sphingomyelin wurde 1927 erstmals als N-Acyl-Sphingosin-1-phosphorylcholin beschrieben. [ 3 ] Der Sphingomyelin-Gehalt in Säugetieren liegt in den meisten Geweben zwischen 2 und 15 %, wobei höhere Konzentrationen in Nervengewebe, roten Blutkörperchen und der Augenlinse gefunden werden. Sphingomyelin spielt eine wichtige strukturelle und funktionelle Rolle in der Zelle. Es ist ein Bestandteil der Plasmamembran und an vielen Signalwegen beteiligt. Der Stoffwechsel von Sphingomyelin erzeugt zahlreiche Produkte, die wichtige Funktionen in der Zelle erfüllen. [ 3 ]
Physikalische Eigenschaften


Zusammensetzung
Sphingomyelin besteht aus einer Phosphocholin- Kopfgruppe, einem Sphingosinrest und einer Fettsäure . Es ist eines der wenigen Membranphospholipide, die nicht aus Glycerin synthetisiert werden. Sphingosin und Fettsäure können zusammen als Ceramid klassifiziert werden. Aufgrund dieser Zusammensetzung spielt Sphingomyelin eine wichtige Rolle in Signalwegen: Der Abbau und die Synthese von Sphingomyelin führen zur Bildung wichtiger sekundärer Botenstoffe für die Signaltransduktion.
Aus natürlichen Quellen wie Eiern oder Rinderhirn gewonnenes Sphingomyelin enthält Fettsäuren unterschiedlicher Kettenlänge. Sphingomyelin mit festgelegter Kettenlänge, wie beispielsweise Palmitoylsphingomyelin mit einer gesättigten 16-Acyl-Kette, ist kommerziell erhältlich. [ 4 ]
Eigenschaften
Idealerweise sind Sphingomyelinmoleküle zylinderförmig. Viele Sphingomyelinmoleküle weisen jedoch eine signifikante Kettenfehlanpassung auf (die Längen der beiden hydrophoben Ketten unterscheiden sich deutlich). [ 5 ] Die hydrophoben Ketten von Sphingomyelin sind tendenziell deutlich stärker gesättigt als die anderer Phospholipide. Die Hauptphasenübergangstemperatur von Sphingomyelinen ist mit etwa 37 °C ebenfalls höher als die Phasenübergangstemperatur ähnlicher Phospholipide. Dies kann zu lateraler Heterogenität in der Membran führen und Domänen in der Membran-Doppelschicht erzeugen. [ 5 ]
Sphingomyelin interagiert stark mit Cholesterin. Cholesterin kann den Phasenübergang von flüssig zu fest bei Phospholipiden verhindern. Da die Übergangstemperatur von Sphingomyelin im physiologischen Temperaturbereich liegt, kann Cholesterin eine wichtige Rolle im Phasenübergang von Sphingomyelin spielen. Sphingomyelin neigt außerdem stärker zur Ausbildung intermolekularer Wasserstoffbrückenbindungen als andere Phospholipide. [ 6 ]
Standort
Sphingomyelin wird im endoplasmatischen Retikulum (ER) synthetisiert, wo es in geringen Mengen vorkommt, sowie im trans- Golgi-Netzwerk. Es ist in der Plasmamembran angereichert , wobei die Konzentration auf der äußeren Membranschicht höher ist als auf der inneren. [ 7 ] Der Golgi-Apparat stellt eine Zwischenstellung zwischen ER und Plasmamembran dar, mit etwas höheren Konzentrationen auf der trans-Seite. [ 8 ]
Stoffwechsel
Synthese
Die Sphingomyelinsynthese beinhaltet die enzymatische Übertragung eines Phosphocholins von Phosphatidylcholin auf ein Ceramid. Der erste irreversible Schritt der Sphingomyelinsynthese ist die Kondensation von L-Serin und Palmitoyl-CoA . Diese Reaktion wird durch Serin-Palmitoyltransferase katalysiert . Das Reaktionsprodukt wird reduziert, wodurch Dihydrosphingosin entsteht. Das Dihydrosphingosin wird einer N-Acylierung und anschließenden Desaturierung unterzogen, wodurch ein Ceramid entsteht. Jede dieser Reaktionen findet an der cytosolischen Seite des endoplasmatischen Retikulums statt . Das Ceramid wird zum Golgi-Apparat transportiert , wo es in Sphingomyelin umgewandelt werden kann. Die Sphingomyelin-Synthase ist für die Bildung von Sphingomyelin aus Ceramid verantwortlich. Diacylglycerol entsteht als Nebenprodukt bei der Übertragung des Phosphocholins. [ 9 ]

Abbau
Der Abbau von Sphingomyelin initiiert zahlreiche universelle Signalwege. Es wird durch Sphingomyelinasen (Sphingomyelin-spezifische Phospholipasen vom Typ C) hydrolysiert. [ 7 ] Die Phosphocholin-Kopfgruppe wird in die wässrige Umgebung freigesetzt, während das Ceramid durch die Membran diffundiert.
Funktion
Membranen
Die Myelinscheide, die viele Nervenzellaxone umgibt und elektrisch isoliert, ist besonders reich an Sphingomyelin, was auf ihre Funktion als Isolator der Nervenfasern hindeutet. [ 2 ] Auch die Plasmamembran anderer Zellen ist reich an Sphingomyelin, das sich jedoch hauptsächlich im exoplasmatischen Blatt der Zellmembran befindet. Es gibt jedoch Hinweise darauf, dass sich auch im inneren Blatt der Membran ein Sphingomyelin-Pool befinden könnte. [ 10 ] [ 11 ] Darüber hinaus wurde neutrale Sphingomyelinase-2 – ein Enzym, das Sphingomyelin in Ceramid spaltet – ausschließlich im inneren Blatt lokalisiert gefunden, was die Annahme stützt, dass dort Sphingomyelin vorhanden sein könnte. [ 12 ]
Signalübertragung
Die Funktion von Sphingomyelin blieb lange unklar, bis seine Rolle in der Signaltransduktion entdeckt wurde . [ 13 ] Es wurde festgestellt, dass Sphingomyelin eine wichtige Rolle in zellulären Signalwegen spielt. Die Synthese von Sphingomyelin an der Plasmamembran durch die Sphingomyelin-Synthase 2 führt zur Bildung von Diacylglycerol, einem fettlöslichen sekundären Botenstoff, der Signalkaskaden durchlaufen kann. Darüber hinaus kann der Abbau von Sphingomyelin Ceramid freisetzen, das am apoptotischen Signalweg beteiligt ist.
Apoptose
Sphingomyelin spielt nachweislich eine Rolle bei der Zellapoptose , indem es zu Ceramid hydrolysiert wird . Studien aus den späten 1990er Jahren zeigten, dass Ceramid unter verschiedenen Bedingungen, die zur Apoptose führen, produziert wird. [ 14 ] Daraufhin wurde die Hypothese aufgestellt, dass die Sphingomyelinhydrolyse und die Ceramid-Signalgebung entscheidend für den Zelltod sind. Anfang der 2000er Jahre erschienen neue Studien, die eine neue Rolle der Sphingomyelinhydrolyse in der Apoptose definierten: Sie bestimmt nicht nur den Zeitpunkt, sondern auch die Art des Zelltods. [ 14 ] Weitere Experimente zeigten, dass die Ceramidproduktion die Geschwindigkeit und Form des Zelltods beeinflussen oder Blockaden in nachfolgenden Prozessen aufheben kann, wenn die Sphingomyelinhydrolyse früh genug im Signalweg erfolgt. [ 14 ]
Lipidflöße
Sphingomyelin und andere Sphingolipide sind mit Lipid-Mikrodomänen in der Plasmamembran, den sogenannten Lipid Rafts, assoziiert . Lipid Rafts zeichnen sich dadurch aus, dass die Lipidmoleküle in der geordneten Lipidphase vorliegen und somit im Vergleich zur übrigen Plasmamembran eine höhere Struktur und Steifigkeit aufweisen. In den Rafts ist die Kettenbeweglichkeit der Acylketten gering, die Moleküle selbst weisen jedoch eine hohe laterale Mobilität auf. Diese Ordnung ist teilweise auf die höhere Übergangstemperatur der Sphingolipide sowie auf deren Wechselwirkungen mit Cholesterin zurückzuführen. Cholesterin ist ein relativ kleines, unpolares Molekül, das den durch die großen Acylketten entstehenden Raum zwischen den Sphingolipiden ausfüllen kann. Lipid Rafts sind vermutlich an zahlreichen zellulären Prozessen beteiligt, wie z. B. Membransortierung und -transport, Signaltransduktion und Zellpolarisation. [ 15 ] Ein Überschuss an Sphingomyelin in Lipid Rafts kann zu Insulinresistenz führen . [ 16 ]
Aufgrund der spezifischen Lipidarten in diesen Mikrodomänen können Lipid Rafts bestimmte assoziierte Proteine akkumulieren und dadurch ihre speziellen Funktionen verstärken. Es wird vermutet, dass Lipid Rafts an der Kaskade der Zellapoptose beteiligt sind. [ 17 ]
Anomalien und damit verbundene Krankheiten
Bei der seltenen Erbkrankheit Niemann -Pick (Typ A und B) kann sich Sphingomyelin anreichern. Diese genetisch bedingte Erkrankung wird durch einen Mangel des lysosomalen Enzyms saure Sphingomyelinase verursacht . Dies führt zur Ansammlung von Sphingomyelin in Milz , Leber , Lunge , Knochenmark und Gehirn und verursacht irreversible neurologische Schäden. Von den beiden Sphingomyelinase- betroffenen Typen tritt Typ A im Säuglingsalter auf. Er ist gekennzeichnet durch Gelbsucht , eine vergrößerte Leber und schwere Hirnschäden. Kinder mit diesem Typ erreichen selten das 18. Lebensmonat. Typ B betrifft ebenfalls eine vergrößerte Leber und Milz und tritt meist im Vorpubertätsalter auf. Das Gehirn ist nicht betroffen. Die meisten Patienten weisen weniger als 1 % des normalen Enzymspiegels auf. Das hämolytische Protein Lysenin könnte ein wertvoller Marker für den Nachweis von Sphingomyelin in den Zellen von Patienten mit Niemann-Pick Typ A sein. [ 1 ]
Infolge der Autoimmunerkrankung Multiple Sklerose (MS) wird die Myelinscheide der Nervenzellen im Gehirn und Rückenmark abgebaut, was zu einem Verlust der Signalübertragungsfähigkeit führt. MS-Patienten weisen eine Hochregulation bestimmter Zytokine in der Zerebrospinalflüssigkeit auf, insbesondere des Tumornekrosefaktors alpha . Dies aktiviert die Sphingomyelinase, ein Enzym, das die Hydrolyse von Sphingomyelin zu Ceramid katalysiert; die Sphingomyelinase-Aktivität wurde in Verbindung mit zellulärer Apoptose beobachtet. [ 18 ]
Ein Überschuss an Sphingomyelin in der Erythrozytenmembran (wie bei Abetalipoproteinämie ) führt zu einer vermehrten Lipidablagerung im äußeren Blatt der Erythrozytenmembran . Dies resultiert in abnorm geformten Erythrozyten, den sogenannten Akanthozyten .
Weitere Bilder
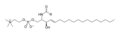
 Kugel-Stab-Modell von Sphingomyelin
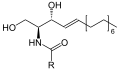
 Skelettformel von Sphingomyelin

Referenzen
- ^ a b Bruhn, Heike; Winkelmann, Julia; Andersen, Christian; Andrä, Jörg; Leippe, Matthias (2006-01-01). „Dissection of the mechanisms of cytolytic and antibacterial activity of lysenin, a defense protein of the annelid Eisenia fetida“ . Developmental & Comparative Immunology . 30 (7): 597–606 . doi : 10.1016/j.dci.2005.09.002 . ISSN 0145-305X . PMID 16386304 .
- ^ a b Donald J. Voet; Judith G. Voet; Charlotte W. Pratt (2008). „Lipide, Doppelschichten und Membranen“. Grundlagen der Biochemie, dritte Auflage . Wiley. S. 252. ISBN 978-0470-23396-2Die
- ^ a b c Ramstedt, B; Slotte, JP (30. Oktober 2002). „Membraneigenschaften von Sphingomyelinen“ . FEBS Letters . 531 (1): 33–7 . Bibcode : 2002FEBSL.531...33R . doi : 10.1016 / S0014-5793(02)03406-3 . PMID 12401199. S2CID 35378780 .

- ^ „Avanti Polar Lipids“ . Archiviert vom Original am 29.03.2014 . Abgerufen am 16.07.2013 .
- ^ a b Barenholz, Y; Thompson, TE (November 1999). „Sphingomyelin: biophysical aspects“. Chemistry and Physics of Lipids . 102 ( 1–2 ): 29–34 . doi : 10.1016/S0009-3084(99)00072-9 . PMID 11001558 .
- ^ Massey, John B. (9. Februar 2001). „Wechselwirkung von Ceramiden mit Phosphatidylcholin, Sphingomyelin und Sphingomyelin/Cholesterin-Doppelschichten“ . Biochimica et Biophysica Acta (BBA) - Biomembranes . 1510 ( 1–2 ): 167–84 . doi : 10.1016/S0005-2736(00)00344-8 . PMID 11342156 .
- ^ a b Testi, Roberto (Dezember 1996). „Sphingomyelin-Abbau und Zellschicksal“. Trends in Biochemical Sciences . 21 (12): 468–71 . doi : 10.1016/S0968-0004(96)10056-6 . PMID 9009829 .
- Brügger , B.; Sandhoff, R.; Wegehingel, S.; Gorgas, K.; Malsam, J.; Helms, J. B.; Lehmann, W. D.; Nickel, W.; Wieland, F. T. (30. Oktober 2000). „Nachweis der Trennung von Sphingomyelin und Cholesterin während der Bildung von COPI-beschichteten Vesikeln“ . The Journal of Cell Biology . 151 (3): 507–518 . doi : 10.1083/jcb.151.3.507 . PMC 2185577. PMID 11062253 .
- ^ Tafesse, FG; Ternes, P; Holthuis, JC (6. Oktober 2006). „Die multigene Sphingomyelin-Synthase-Familie“ . The Journal of Biological Chemistry . 281 (40): 29421–5 . doi : 10.1074/jbc.R600021200 . hdl : 1874/19992 . PMID 16905542 .
- ^ Linardic CM, Hannun YA (1994). „Identifizierung eines distinkten Sphingomyelin-Pools, der am Sphingomyelin-Zyklus beteiligt ist“ . J. Biol. Chem . 269 (38): 23530–7 . doi : 10.1016/S0021-9258(17)31548-X . PMID 8089120 .
- Zhang , P.; Liu, B.; Jenkins, GM; Hannun, YA; Obeid, LM (1997). „Expression of Neutral Sphingomyelinase Identifies a Distinct Pool of Sphingomyelin Involved in Apoptosis“ . Journal of Biological Chemistry . 272 (15): 9609–9612 . doi : 10.1074/jbc.272.15.9609 . PMID 9092485 .
- ^ Tani, M.; Hannun, YA (2007). „Analyse der Membrantopologie der neutralen Sphingomyelinase 2“ . FEBS Letters . 581 (7): 1323–1328 . Bibcode : 2007FEBSL.581.1323T . doi : 10.1016/j.febslet.2007.02.046 . PMC 1868537. PMID 17349629 .
- ^ Kolesnick (1994). „Signaltransduktion über den Sphingomyelin-Signalweg“. Mol Chem Neuropathol . 21 ( 2–3 ): 287–97 . doi : 10.1007/BF02815356 . PMID 8086039. S2CID 30521415 .
- ^ a b c Green, Douglas R. (10. Juli 2000). „Apoptose und Sphingomyelinhydrolyse. Die Kehrseite“ . The Journal of Cell Biology . 150 (1): F5–7. doi : 10.1083/jcb.150.1.F5 . PMC 2185551. PMID 10893276 .
- ^ Giocondi, MC; Boichot, S; Plénat, T; Le Grimellec, CC (August 2004). „Strukturelle Diversität von Sphingomyelin-Mikrodomänen“. Ultramicroscopy . 100 ( 3–4 ): 135–43 . doi : 10.1016/j.ultramic.2003.11.002 . PMID 15231303 .
- ^ Li, Z.; Zhang, H.; Liu, J.; Liang, C. P.; Li, Y.; Li, Y.; Teitelman, G.; Beyer, T.; Bui, H. H.; Peake, D. A.; Zhang, Y.; Sanders, P. E.; Kuo, M. S.; Park, T. S.; Cao, G.; Jiang, X. C. (Oktober 2011). „ Reduzierung von Sphingomyelin in der Plasmamembran erhöht die Insulinsensitivität“ . Molecular and Cellular Biology . 31 (20): 4205–18 . doi : 10.1128/MCB.05893-11 . PMC 3187286. PMID 21844222 .
- ^ Zhang, L.; Hellgren, L. I.; Xu, X. (3. Mai 2006). „Enzymatische Produktion von Ceramid aus Sphingomyelin“. Journal of Biotechnology . 123 (1): 93–105 . doi : 10.1016/j.jbiotec.2005.10.020 . PMID 16337303 .
- ^ Jana, A ; Pahan, K (Dezember 2010). „Sphingolipide bei Multipler Sklerose“ . Neuromolecular Medicine . 12 (4): 351–61 . doi : 10.1007/s12017-010-8128-4 . PMC 2987401. PMID 20607622 .
Externe Links
- Sphingomyeline in den Medical Subject Headings (MeSH) der US National Library of Medicine