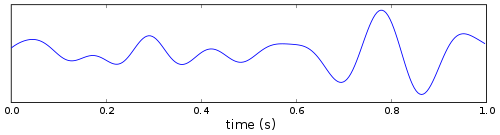
Theta-Wellen erzeugen den Theta-Rhythmus , eine neuronale Schwingung im Gehirn , die verschiedenen Aspekten von Kognition und Verhalten zugrunde liegt, darunter Lernen, Gedächtnis und räumliche Orientierung bei Menschen und vielen anderen Säugetieren. [ 1 ] [ 2 ] Er kann mit verschiedenen elektrophysiologischen Methoden, wie beispielsweise dem Elektroenzephalogramm (EEG), aufgezeichnet werden, entweder direkt im Gehirn oder mithilfe von auf der Kopfhaut angebrachten Elektroden.
Es wurden mindestens zwei Arten von Theta-Rhythmen beschrieben. Der hippocampale Theta-Rhythmus ist eine starke Oszillation, die im Hippocampus und anderen Hirnstrukturen bei Menschen und vielen anderen Säugetieren beobachtet werden kann. „Kortikale Theta-Rhythmen“ sind niederfrequente Komponenten des Oberflächen-EEGs, die üblicherweise beim Menschen abgeleitet werden. Theta-Rhythmen lassen sich mittels quantitativer Elektroenzephalographie (qEEG) und frei verfügbaren Tools wie EEGLAB oder der Neurophysiological Biomarker Toolbox (NBT) quantifizieren.
Bei Ratten lässt sich die Theta-Rhythmik im Hippocampus leicht beobachten, sie ist aber auch in zahlreichen anderen kortikalen und subkortikalen Hirnstrukturen nachweisbar. Hippocampale Theta-Wellen mit einer Frequenz von 6–10 Hz treten auf, wenn eine Ratte aktiv motorisch aktiv ist, beispielsweise beim Laufen oder Erkunden ihrer Umgebung durch Schnüffeln, sowie während des REM-Schlafs . [ 3 ] Theta-Wellen mit einer niedrigeren Frequenz, üblicherweise um 6–7 Hz, werden mitunter beobachtet, wenn eine Ratte bewegungslos, aber wach ist. Während Fressen, Putzen oder Schlafen zeigt das hippocampale EEG in der Regel ein nicht-rhythmisches Muster, die sogenannte große irreguläre Aktivität ( LIA) . Der hippocampale Theta-Rhythmus ist entscheidend von Projektionen aus dem medialen Septum abhängig , welches wiederum Input vom Hypothalamus und verschiedenen Hirnstammregionen erhält. Hippocampale Theta-Rhythmen unterscheiden sich bei anderen Spezies in einigen Aspekten von denen der Ratte. Bei Katzen und Kaninchen ist der Frequenzbereich niedriger (etwa 4–6 Hz), und Theta-Wellen sind weniger stark mit Bewegung assoziiert als bei Ratten. Bei Fledermäusen treten Theta-Wellen in kurzen Ausbrüchen im Zusammenhang mit der Echoortung auf .
Beim Menschen wurde ein Theta-Rhythmus im Hippocampus beobachtet und mit Gedächtnisbildung [ 4 , 5 ] sowie Navigation [ 6 ] in Verbindung gebracht. Wie bei Ratten zeigen auch Menschen während des REM-Schlafs eine Theta-Wellenaktivität im Hippocampus [ 7 ] . Ebenso weisen Menschen während des REM-Schlafs überwiegend kortikale Theta-Wellenaktivität auf [ 8 ] . Verstärkte Schläfrigkeit ist mit einer verringerten Alpha-Wellen- und einer erhöhten Theta-Wellen-Aktivität verbunden [8]. Meditation erhöht nachweislich die Theta - Aktivität [ 9 ] .
Die Funktion des hippocampalen Theta-Rhythmus ist noch nicht vollständig geklärt. Green und Arduini stellten in der ersten umfassenden Studie zu diesem Phänomen fest, dass hippocampale Theta-Wellen üblicherweise zusammen mit einer Desynchronisation des EEG im Neokortex auftreten und vermuteten einen Zusammenhang mit der Erregung. Vanderwolf und seine Kollegen, die den starken Zusammenhang zwischen Theta-Wellen und motorischem Verhalten beobachteten, argumentierten, dass Theta-Wellen mit sensomotorischen Verarbeitungsprozessen verknüpft sind. Eine andere Forschungsrichtung, angeführt von John O'Keefe, vermutet, dass Theta-Wellen Teil des Mechanismus sind, mit dem Tiere ihre Position in der Umwelt bestimmen. Eine weitere Theorie verknüpft den Theta-Rhythmus mit Lern- und Gedächtnismechanismen ( Hasselmo, 2005 ). Dieser Theorie zufolge könnten Theta-Wellen als Schalter zwischen Enkodierungs- und Abrufmechanismen fungieren, und experimentelle Daten an Nagetieren [ 10 ] und Menschen [ 11 ] stützen diese Annahme. Eine weitere Studie an Menschen zeigte, dass Theta-Oszillationen die Gedächtnisfunktion (Enkodierung oder Abruf) beeinflussen, wenn sie mit hochfrequenter Gamma-Aktivität im Hippocampus interagieren. [ 12 ] Diese Ergebnisse stützen die Annahme, dass Theta-Oszillationen in Wechselwirkung mit anderen oszillatorischen Rhythmen die Gedächtnisbildung und den Abruf von Erinnerungen unterstützen. Diese verschiedenen Theorien wurden inzwischen kombiniert, da gezeigt wurde, dass die Aktivitätsmuster sowohl die Navigation als auch das Gedächtnis unterstützen können. [ 13 ]
In EEG-Studien am Menschen bezeichnet der Begriff Theta Frequenzkomponenten im Bereich von 4–7 Hz, unabhängig von ihrer Quelle. Kortikale Theta-Wellen treten häufig bei Kleinkindern auf. [ 14 ] Bei älteren Kindern und Erwachsenen zeigen sie sich tendenziell in meditativen, schläfrigen, hypnotischen oder schlafenden Zuständen, jedoch nicht in den Tiefschlafphasen . Theta-Wellen aus dem mittleren Frontalkortex stehen in spezifischem Zusammenhang mit der kognitiven Kontrolle, und Veränderungen dieser Theta-Signale finden sich bei verschiedenen psychiatrischen und neurologischen Entwicklungsstörungen. [ 15 ]
Geschichte
Obwohl es bereits einige Hinweise gab, stammte die erste klare Beschreibung regelmäßiger langsamer Oszillationen im Hippocampus-EEG aus einer deutschsprachigen Arbeit von Jung und Kornmüller ( 1938 ). Sie konnten diese ersten Beobachtungen nicht weiterverfolgen, und erst 1954 lieferte eine sehr umfassende Studie von John D. Green und Arnaldo Arduini weitere Informationen. Diese Studie kartierte die grundlegenden Eigenschaften hippokampaler Oszillationen bei Katzen, Kaninchen und Affen ( Green und Arduini, 1954 ). Ihre Ergebnisse stießen auf großes Interesse, nicht zuletzt, weil sie die Hippocampusaktivität mit der Erregung in Verbindung brachten, die damals das wichtigste Thema der Neurowissenschaften war. Green und Arduini beschrieben eine inverse Beziehung zwischen hippokampalen und kortikalen Aktivitätsmustern: Hippokampale Rhythmik trat parallel zu desynchronisierter Aktivität im Kortex auf, während ein unregelmäßiges hippokampales Aktivitätsmuster mit dem Auftreten großer langsamer Wellen im kortikalen EEG korrelierte.
Im Laufe des folgenden Jahrzehnts wurden zahlreiche Experimente zur Pharmakologie und Physiologie der Theta-Wellen durchgeführt. Bereits 1965 konnte Charles Stumpf eine umfangreiche Übersichtsarbeit zum Thema „Wirkung von Medikamenten auf die elektrische Aktivität des Hippocampus“ verfassen, in der er Hunderte von Publikationen zitierte ( Stumpf, 1965 ). 1964 veröffentlichte John Green, der in dieser Zeit als führender Experte auf diesem Gebiet galt, eine umfassende und detaillierte Übersicht zur Elektrophysiologie des Hippocampus ( Green, 1964 ). Einen wesentlichen Beitrag leistete eine Forschergruppe in Wien, darunter Stumpf und Wolfgang Petsche. Sie wiesen die entscheidende Rolle des medialen Septums bei der Steuerung der elektrischen Aktivität des Hippocampus nach und erforschten einige der Wege, über die es seinen Einfluss ausübt.
Terminologie
Aufgrund eines historischen Zufalls wird der Begriff „Theta-Rhythmus“ heute für zwei unterschiedliche Phänomene verwendet: „hippocampales Theta“ und „menschliches kortikales Theta“ . Beides sind oszillatorische EEG-Muster, die außer dem Namen „Theta“ jedoch wenig gemeinsam haben.
In der ältesten EEG- Literatur aus den 1920er Jahren wurden griechische Buchstaben wie Alpha, Beta, Theta und Gamma verwendet, um EEG-Wellen in spezifische Frequenzbereiche einzuordnen. „Theta“ bezeichnete dabei im Allgemeinen einen Bereich von etwa 4–7 Zyklen pro Sekunde (Hz). In den 1930er- bis 1950er-Jahren wurde im Hippocampus von Katzen und Kaninchen ein sehr starkes rhythmisches Oszillationsmuster entdeckt ( Green & Arduini, 1954 ). Bei diesen Spezies lagen die hippocampalen Oszillationen überwiegend im Frequenzbereich von 4–6 Hz, weshalb sie als „Theta“-Oszillationen bezeichnet wurden. Später wurden hippocampale Oszillationen desselben Typs auch bei Ratten beobachtet; die Frequenz der hippocampalen EEG-Oszillationen bei Ratten lag jedoch im Durchschnitt bei etwa 8 Hz und fiel selten unter 6 Hz. Streng genommen hätte die hippocampale EEG-Oszillation der Ratte daher nicht als „Theta-Rhythmus“ bezeichnet werden dürfen. Der Begriff „Theta“ war jedoch bereits so stark mit hippokampalen Oszillationen assoziiert, dass er auch weiterhin für Ratten verwendet wurde. Im Laufe der Jahre hat diese Assoziation an Bedeutung gewonnen und die ursprüngliche Verbindung zu einem spezifischen Frequenzbereich überlagert, die ursprüngliche Bedeutung ist aber nach wie vor relevant.
Somit kann „Theta“ zweierlei bedeuten:
- Eine spezifische Art regelmäßiger Schwingungen, die im Hippocampus und mehreren anderen damit verbundenen Hirnregionen beobachtet werden.
- EEG-Oszillationen im Frequenzbereich von 4–7 Hz, unabhängig davon, wo im Gehirn sie auftreten oder welche funktionelle Bedeutung sie haben.
Die erste Bedeutung bezieht sich üblicherweise auf Studien mit Ratten oder Mäusen, die zweite hingegen auf Untersuchungen des menschlichen EEGs mittels auf der Kopfhaut befestigter Elektroden. Generell lässt sich nicht mit Sicherheit annehmen, dass beobachtete Theta-Wellen im menschlichen EEG mit dem „hippocampalen Theta-Rhythmus“ in Zusammenhang stehen. Das Kopfhaut-EEG wird fast ausschließlich von der Großhirnrinde generiert , und selbst wenn es in einen bestimmten Frequenzbereich fällt, bedeutet dies nicht zwangsläufig eine funktionelle Abhängigkeit vom Hippocampus.
Hippocampus

Aufgrund der hohen Dichte seiner neuronalen Schichten erzeugt der Hippocampus einige der stärksten EEG-Signale aller Hirnstrukturen. In manchen Situationen wird das EEG von regelmäßigen Wellen im Bereich von 4–10 Hz dominiert, die oft über viele Sekunden anhalten. Dieses EEG-Muster ist als hippokampaler Theta-Rhythmus bekannt . Es wird auch als rhythmische langsame Aktivität (RSA) bezeichnet, um es von der großen unregelmäßigen Aktivität (LIA) abzugrenzen , die das hippokampale EEG üblicherweise dominiert, wenn kein Theta-Rhythmus vorhanden ist.
Bei Ratten treten Theta-Wellen im Hippocampus hauptsächlich unter zwei Bedingungen auf: erstens beim Laufen, Gehen oder anderen aktiven Interaktionen mit der Umgebung; zweitens während des REM-Schlafs . [ 16 ] Die Frequenz der Theta-Wellen steigt mit der Laufgeschwindigkeit an, beginnend bei etwa 6,5 Hz und auf etwa 9 Hz bei höchsten Geschwindigkeiten. Höhere Frequenzen werden jedoch gelegentlich bei kurzen, schnellen Bewegungen wie Sprüngen über weite Lücken beobachtet. Bei größeren Tierarten sind die Theta-Frequenzen im Allgemeinen niedriger. Die Verhaltensabhängigkeit scheint zudem artspezifisch zu sein: Bei Katzen und Kaninchen werden Theta-Wellen häufig in Zuständen regungsloser Wachheit beobachtet. Dies wurde auch für Ratten beschrieben, allerdings nur bei Angstzuständen ( Sainsbury et al., 1987 ).
Theta-Rhythmen sind nicht allein auf den Hippocampus beschränkt. Bei Ratten lassen sie sich in vielen Hirnregionen beobachten, darunter nahezu allen, die stark mit dem Hippocampus interagieren. Die Entstehung dieses Rhythmus ist abhängig vom medialen Septum: Dieses projiziert in alle Regionen, die Theta-Rhythmus aufweisen, und seine Zerstörung führt zum Verschwinden der Theta-Aktivität im gesamten Gehirn ( Stewart & Fox, 1990 ).
Typ 1 und Typ 2
1975 schlugen Kramis, Bland und Vanderwolf vor, dass bei Ratten zwei unterschiedliche Typen des hippocampalen Theta-Rhythmus mit verschiedenen Verhaltens- und pharmakologischen Eigenschaften existieren ( Kramis et al., 1975 ). Typ 1 („atropinresistenter“) Theta-Rhythmus tritt ihrer Ansicht nach während der Fortbewegung und anderer Formen willkürlichen Verhaltens sowie im REM-Schlaf auf, hat eine Frequenz von üblicherweise etwa 8 Hz und wird durch das Anticholinergikum Atropin nicht beeinflusst . Typ 2 („atropinempfindlicher“) Theta-Rhythmus tritt während der Immobilität und unter Urethan- induzierter Anästhesie auf , hat eine Frequenz im Bereich von 4–7 Hz und wird durch die Gabe von Atropin unterdrückt. Zahlreiche spätere Untersuchungen bestätigten das allgemeine Konzept, dass der hippocampale Theta-Rhythmus in zwei Typen unterteilt werden kann, obwohl die genauen Eigenschaften der einzelnen Typen weiterhin umstritten sind. Theta-Wellen vom Typ 2 sind bei nicht anästhesierten Ratten vergleichsweise selten: Sie können kurzzeitig beobachtet werden, wenn sich ein Tier auf eine Bewegung vorbereitet, diese aber noch nicht ausgeführt hat. Über längere Zeiträume wurden sie jedoch nur bei Tieren beobachtet, die aufgrund der Anwesenheit eines Raubtiers wie einer Katze oder eines Frettchens in der Nähe in einem Zustand erstarrter Unbeweglichkeit verharren ( Sainsbury et al., 1987 ).
Zusammenhang mit dem Verhalten
Vanderwolf ( 1969 ) argumentierte überzeugend, dass das Auftreten von Theta-Wellen im Hippocampus-EEG anhand des Verhaltens eines Tieres vorhergesagt werden kann, nicht aber anhand der Gründe dafür. Aktive Bewegungen wie Laufen, Springen, Drücken von Hebeln oder exploratives Schnüffeln korrelieren zuverlässig mit Theta-Wellen; inaktive Zustände wie Fressen oder Fellpflege mit latenten interstitiellen Schwingungen (LIA). Spätere Studien zeigten, dass Theta-Wellen häufig mehrere hundert Millisekunden vor Bewegungsbeginn auftreten und eher mit der Bewegungsabsicht als mit der durch die Bewegung erzeugten Rückmeldung zusammenhängen ( Whishaw & Vanderwolf, 1973 ). Je schneller ein Tier läuft, desto höher ist die Theta-Frequenz. Bei Ratten führen die langsamsten Bewegungen zu Frequenzen um 6,5 Hz, die schnellsten zu Frequenzen um 9 Hz, wobei bei sehr kraftvollen Bewegungen wie weiten Sprüngen kurzzeitig auch schnellere Oszillationen beobachtet werden können.
Mechanismen
Zahlreiche Studien haben gezeigt, dass die mediale Septumregion eine zentrale Rolle bei der Generierung hippokampaler Theta-Oszillationen spielt ( Stewart & Fox, 1990 ). Läsionen der medialen Septumregion oder deren Inaktivierung durch Medikamente eliminieren sowohl Theta-Oszillationen vom Typ 1 als auch vom Typ 2. Unter bestimmten Bedingungen können theta-ähnliche Oszillationen in hippokampalen oder entorhinalen Zellen auch ohne septalen Input induziert werden, dies tritt jedoch nicht bei intakten, nicht medikamentös behandelten adulten Ratten auf. Die kritische Septumregion umfasst den medialen Septumkern und den vertikalen Schenkel des diagonalen Broca-Bandes . Der laterale Septumkern, ein wichtiger Empfänger hippokampaler Outputs, spielt wahrscheinlich keine essentielle Rolle bei der Generierung von Theta-Oszillationen.
Das mediale Septum projiziert in zahlreiche Hirnregionen, die eine Theta-Modulation aufweisen. Dazu gehören alle Teile des Hippocampus sowie der entorhinale, perirhinale und retrospleniale Cortex , die medialen und supramammillären Kerne des Hypothalamus, die anterioren Kerne des Thalamus, die Amygdala, der Colliculus inferior und verschiedene Hirnstammkerne ( Buzsáki, 2002 ). Einige dieser Projektionen sind cholinerg, die übrigen GABAerg oder glutamaterg. Es wird häufig argumentiert, dass cholinerge Rezeptoren nicht schnell genug reagieren, um an der Generierung von Theta-Wellen beteiligt zu sein, und dass daher GABAerge und/oder glutamaterge Signale (Ujfalussy und Kiss, 2006) die zentrale Rolle spielen müssen.
Ein zentrales Forschungsproblem besteht darin, den „Schrittmacher“ des Theta-Rhythmus zu identifizieren, also den Mechanismus, der die Schwingungsfrequenz bestimmt. Die Antwort ist noch nicht vollständig geklärt, aber es gibt Hinweise darauf, dass Theta-Rhythmus Typ 1 und Typ 2 von unterschiedlichen Schrittmachern abhängen. Beim Theta-Rhythmus Typ 2 scheint der Nucleus supramammillaris des Hypothalamus die Kontrolle auszuüben ( Kirk, 1998 ). Beim Theta-Rhythmus Typ 1 ist die Situation noch unklar, aber die am weitesten verbreitete Hypothese besagt, dass die Frequenz durch eine Rückkopplungsschleife bestimmt wird, an der das mediale Septum und der Hippocampus beteiligt sind ( Wang, 2002 ).
Verschiedene Arten von Hippocampus- und entorhinalen Neuronen können bei Stimulation Theta-Frequenz-Membranpotentialoszillationen erzeugen. Typischerweise handelt es sich dabei um natriumabhängige, spannungssensitive Oszillationen des Membranpotentials bei Spannungen nahe dem Aktionspotential ( Alonso & Llinás, 1989 ). Insbesondere scheinen diese Oszillationen in Neuronen des CA1-Feldes und des Gyrus dentatus auf einem Zusammenspiel von dendritischer Erregung über einen persistenten Natriumstrom ( I <sub>NaP</sub> ) und perisomatischer Hemmung zu beruhen ( Buzsáki, 2002 ).
Generatoren
EEG-Signale entstehen in der Regel durch synchronisierte synaptische Eingänge in die Dendriten von Neuronen, die in einer Schicht angeordnet sind. Der Hippocampus enthält mehrere Schichten sehr dicht gepackter Neuronen – den Gyrus dentatus und die CA3/CA1 / Subiculum-Schicht – und kann daher potenziell starke EEG-Signale generieren. Die grundlegende EEG-Theorie besagt, dass sich ein von einer Neuronenschicht generiertes EEG-Signal immer auf einer bestimmten Ebene phasenverschoben erfährt. Daher haben Theta-Wellen, die von Stellen ober- und unterhalb einer generierenden Schicht abgeleitet werden, entgegengesetzte Vorzeichen. Hinzu kommen weitere Komplikationen: Die Hippocampusschichten sind stark gekrümmt, und theta-modulierte Eingänge treffen über verschiedene Bahnen mit unterschiedlichen Phasenbeziehungen auf sie ein. All diese Faktoren führen dazu, dass sich Phase und Amplitude der Theta-Oszillationen in Abhängigkeit von der Position innerhalb des Hippocampus auf sehr komplexe Weise verändern. Die größten Theta-Wellen werden jedoch im Allgemeinen in der Nähe der Fissur registriert, die die CA1-Molekularschicht von der Molekularschicht des Gyrus dentatus trennt. Bei Ratten überschreiten diese Signale häufig eine Amplitude von 1 Millivolt . Theta-Wellen, die oberhalb des Hippocampus registriert werden, sind kleiner und weisen im Vergleich zu den Fissursignalen eine umgekehrte Polarität auf.
Die stärksten Theta-Wellen werden in der CA1-Schicht generiert, wobei der wichtigste Input vom entorhinalen Cortex über den direkten EC→CA1-Pfad stammt. Eine weitere wichtige Antriebskraft stellt die CA3→CA1-Projektion dar, die phasenverschoben zum entorhinalen Input ist und so zu einer allmählichen Phasenverschiebung mit zunehmender Tiefe innerhalb der CA1-Schicht führt ( Brankack et al. 1993 ). Auch der Gyrus dentatus generiert Theta-Wellen, die aufgrund ihrer deutlich geringeren Amplitude schwer von den CA1-Wellen zu unterscheiden sind. Es gibt jedoch Hinweise darauf, dass die Theta-Wellen des Gyrus dentatus üblicherweise um etwa 90 Grad phasenverschoben zu den CA1-Theta-Wellen sind. Direkte Projektionen vom Septum zu hippokampalen Interneuronen tragen ebenfalls zur Generierung von Theta-Wellen bei, ihr Einfluss ist jedoch deutlich geringer als der der entorhinalen Inputs (die ihrerseits vom Septum kontrolliert werden).
Forschungsergebnisse
Theta-Frequenzaktivität im Hippocampus manifestiert sich bei bestimmten Kurzzeitgedächtnisaufgaben ( Vertes, 2005 ). Studien legen nahe, dass diese Rhythmen den „Online“-Zustand des Hippocampus widerspiegeln; einen Zustand der Bereitschaft zur Verarbeitung eingehender Signale ( Buzsáki, 2002 ). Umgekehrt wurden Theta-Oszillationen bei Ratten mit verschiedenen willkürlichen Verhaltensweisen (Exploration, räumliche Navigation usw.) und Wachheitszuständen ( Gänsehaut usw.) in Zusammenhang gebracht ( Vanderwolf, 1969 ), was darauf hindeutet, dass sie die Integration sensorischer Informationen mit motorischen Aktionen widerspiegeln könnten (für einen Überblick siehe Bland & Oddie, 2001 ). Zahlreiche Belege deuten darauf hin, dass der Theta-Rhythmus wahrscheinlich am räumlichen Lernen und der Navigation beteiligt ist ( Buzsáki, 2005 ).
Theta-Rhythmen sind im Hippocampus und im entorhinalen Cortex von Nagetieren während Lern- und Gedächtnisprozessen sehr stark ausgeprägt und gelten als essenziell für die Induktion von Langzeitpotenzierung (LTP) , einem potenziellen zellulären Mechanismus des Lernens und des Gedächtnisses. Die Phasenpräzession entlang der Theta-Welle im Hippocampus ermöglicht es, neuronale Signale, die erwartete oder kürzlich vergangene Ereignisse repräsentieren, neben die aktuell stattfindenden Ereignisse innerhalb eines Theta-Zyklus zu platzieren und über mehrere Theta-Zyklen zu wiederholen. Dieser Mechanismus soll die LTP befähigen, die Verbindungen zwischen Neuronen des Hippocampus zu verstärken, die aufeinanderfolgende Elemente einer Gedächtnissequenz repräsentieren. [ 17 ] Tatsächlich wurde vorgeschlagen, dass die Stimulation mit der Theta-Frequenz optimal für die Induktion von hippocampaler LTP ist. [ 18 ] Ausgehend von Erkenntnissen aus elektrophysiologischen Studien, die zeigen, dass sowohl die synaptische Plastizität als auch die Stärke der Eingänge in die Hippocampusregion CA1 systematisch mit den laufenden Theta-Oszillationen variieren ( Hyman et al., 2003 ; Brankack et al., 1993 ), wurde vorgeschlagen, dass der Theta-Rhythmus dazu dient, die Perioden der Enkodierung aktueller sensorischer Reize und des Abrufs von durch aktuelle Reize ausgelösten episodischen Erinnerungen zu trennen, um Interferenzen zu vermeiden, die auftreten würden, wenn Enkodierung und Abruf gleichzeitig erfolgen würden.
Menschen und andere Primaten
Bei nicht-menschlichen Tieren werden EEG-Signale üblicherweise mithilfe von im Gehirn implantierten Elektroden aufgezeichnet; die meisten Theta-Studien verwendeten Elektroden, die im Hippocampus implantiert wurden. Da invasive Untersuchungen beim Menschen – außer bei bestimmten neurologischen Patienten – aus ethischen Gründen nicht vertretbar sind, wurden die meisten EEG-Studien mit auf die Kopfhaut geklebten Elektroden durchgeführt. Die von Kopfhautelektroden erfassten Signale sind vergleichsweise schwach und diffus und stammen fast ausschließlich aus der Großhirnrinde, da der Hippocampus zu klein und zu tief liegt, um erkennbare EEG-Signale von der Kopfhaut zu erzeugen. Menschliche EEG-Aufzeichnungen zeigen in einigen Situationen eine deutliche Theta-Rhythmik, aber aufgrund der technischen Schwierigkeiten war es bisher schwierig festzustellen, ob diese Signale mit den im Hippocampus aufgezeichneten Theta-Signalen anderer Spezies in Zusammenhang stehen.
Im Gegensatz zu Ratten, bei denen sich lange Theta-Oszillationen mithilfe von an mehreren Stellen implantierten Elektroden leicht beobachten lassen, war es bei Primaten schwierig, Theta-Oszillationen eindeutig nachzuweisen, selbst bei Verwendung intrakortikaler Elektroden. Green und Arduini ( 1954 ) berichteten in ihrer Pionierstudie zu Theta-Rhythmen lediglich von kurzen Ausbrüchen unregelmäßiger Theta-Wellen bei Affen. Andere Forscher berichteten über ähnliche Ergebnisse, obwohl Stewart und Fox ( 1991 ) einen deutlichen 7–9-Hz-Theta-Rhythmus im Hippocampus von Urethan-anästhesierten Makaken und Totenkopfäffchen beschrieben, der dem bei Urethan-anästhesierten Ratten beobachteten Theta-Rhythmus vom Typ 2 ähnelte.
Die meisten verfügbaren Informationen über Theta-Oszillationen im menschlichen Hippocampus stammen aus wenigen kleinen Studien an Epilepsiepatienten mit intrakraniell implantierten Elektroden im Rahmen eines Behandlungsplans. In der größten und systematischsten dieser Studien fanden Cantero et al. ( 2003 ) heraus, dass Oszillationen im Frequenzbereich von 4–7 Hz sowohl im Hippocampus als auch im Neokortex registriert werden konnten. Die hippocampalen Oszillationen traten im Zusammenhang mit dem REM-Schlaf und dem Übergang vom Schlaf zum Wachzustand auf und waren in kurzen Impulsen von meist weniger als einer Sekunde Dauer. Kortikale Theta-Oszillationen wurden sowohl beim Übergang vom Schlaf zum Wachzustand als auch in ruhigen Wachphasen beobachtet; die Autoren konnten jedoch keine Korrelation zwischen hippocampalen und kortikalen Theta-Wellen feststellen und schlussfolgerten, dass die beiden Prozesse wahrscheinlich durch unabhängige Mechanismen gesteuert werden.
Studien haben einen Zusammenhang zwischen Hypnose und verstärkter Theta-Frequenz-Aktivität sowie Veränderungen der Gamma-Frequenz-Aktivität gezeigt ( Jensen et al., 2015 ). Auch bei Menschen wurden erhöhte Theta-Wellen während der „ Gedankenlosigkeitsmeditation“ beobachtet . [ 19 ] [ 20 ]
Rolle beim Lernen und der kognitiven Kontrolle
Theta-Oszillationen spielen eine wichtige Rolle in verschiedenen kognitiven Prozessen, darunter Lernen und kognitive Kontrolle. Studien haben gezeigt, dass diese Oszillationen eng mit der Speicherung und dem Abruf von Erinnerungen, der Emotionsregulation und der Aufrechterhaltung kognitiver Aufgaben verbunden sind.
Theta-Aktivität wird mit der Enkodierung neuer Informationen und dem Abruf von Erinnerungen in Verbindung gebracht. Studien haben insbesondere gezeigt, dass erhöhte Theta-Oszillationen bei Aufgaben auftreten, die eine aktive Gedächtnisaktivierung erfordern. Beispielsweise wurde eine Theta-Phasenkopplung einzelner Neuronen bei räumlichen Gedächtnisaufgaben beobachtet, was darauf hindeutet, dass das Timing der neuronalen Aktivität im Verhältnis zu den Theta-Wellen für eine effektive Gedächtnisverarbeitung entscheidend ist. [ 21 ]
Im Kontext der kognitiven Kontrolle wird angenommen, dass Theta-Oszillationen die Aufrechterhaltung von Aufgabenregeln und Reiz-Aktions-Assoziationen widerspiegeln. Studien zeigen, dass während Aufgaben zur kognitiven Kontrolle eine erhöhte Theta-Amplitude in frontalen Hirnregionen beobachtet wird, die für Entscheidungsfindung und Verhaltensregulation entscheidend sind. Konkret wird angenommen, dass die Theta-Aktivität Mechanismen unterstützt, die es Individuen ermöglichen, ihr Verhalten an veränderte Umweltanforderungen und interne Ziele anzupassen. Dieses dynamische Zusammenspiel zwischen Theta-Oszillationen und Prozessen der kognitiven Kontrolle verdeutlicht, wie diese Hirnrhythmen zu einer effizienten Aufgabenbewältigung beitragen. [ 22 ] Darüber hinaus hat die nicht-invasive Hirnstimulation eine kausale Rolle von Theta-Oszillationen bei der Allokation kognitiver Ressourcen zur Antizipation kognitiver Konflikte durch Modulation der Phasen-Amplituden-Kopplung im präfrontalen Kortex , insbesondere im superioren frontalen Gyrus , aufgezeigt . [ 23 ]
Siehe auch
Gehirnwellen
- Delta-Welle — (0,1–4 Hz)
- Theta-Welle — (4–8 Hz)
- Alpha-Welle — (8–12 Hz)
- Mu-Welle — (7,5–12,5 Hz)
- SMR-Welle — (12,5–15,5 Hz)
- Beta-Welle — (16–31 Hz)
- Gammawelle — (32–100 Hz)
Referenzen
- ^ Seager, Matthew A.; Johnson, Lynn D.; Chabot, Elizabeth S.; Asaka, Yukiko; Berry, Stephen D. (05.02.2002). „Oszillatorische Hirnzustände und Lernen: Einfluss eines hippocampalen Theta-kontingenten Trainings“ . Proceedings of the National Academy of Sciences of the United States of America . 99 (3): 1616–20 . Bibcode : 2002PNAS...99.1616S . doi : 10.1073 / pnas.032662099 . PMC 122239. PMID 11818559 .
- ^ Winson, J. (14.07.1978). „Verlust des hippocampalen Theta-Rhythmus führt zu räumlichen Gedächtnisdefiziten bei der Ratte“. Science . 201 (4351): 160–163 . Bibcode : 1978Sci...201..160W . doi : 10.1126/science.663646 . PMID: 663646 .
- ^ Squire, Larry R. (17. Dezember 2012). Grundlagen der Neurowissenschaften (4. Aufl.). Amsterdam: Elsevier/Academic Press. S. 1038. ISBN 978-0-12-385871-9OCLC 830351091 .
- ^ Lega, Bradley C. (2011). „Theta - Oszillationen im menschlichen Hippocampus und die Bildung episodischer Erinnerungen“ . Hippocampus . 22 (4): 748–761 . doi : 10.1002/hipo.20937 . PMID 21538660. S2CID 13316799 .
- ^ Tesche, CD; Karhu, J. (18.01.2000). „Theta-Oszillationen als Indikator für die Aktivierung des menschlichen Hippocampus während einer Arbeitsgedächtnisaufgabe“ . Proceedings of the National Academy of Sciences . 97 (2): 919–924 . Bibcode : 2000PNAS...97..919T . doi : 10.1073/pnas.97.2.919 . PMC 15431. PMID 10639180 .
- ^ Ekstrom, Arne D. (2005). „Theta - Aktivität im menschlichen Hippocampus während virtueller Navigation“. Hippocampus . 15 (7): 881–889 . CiteSeerX 10.1.1.535.1693 . doi : 10.1002/hipo.20109 . PMID 16114040. S2CID 2402960 .
- ^ Lomas T, Ivtzan I, Fu CH (2015). „Eine systematische Übersichtsarbeit zur Neurophysiologie der Achtsamkeit anhand von EEG-Oszillationen“ ( PDF) . Neuroscience & Biobehavioral Reviews . 57 : 401–410 . doi : 10.1016/j.neubiorev.2015.09.018 . PMID 26441373. S2CID 7276590 .
- Hinterberger T, Schmidt S, Kamei T, Walach H (2014). „ Verminderte elektrophysiologische Aktivität repräsentiert den bewussten Zustand der Leere in der Meditation“ . Frontiers in Psychology . 5 : 99. doi : 10.3389/fpsyg.2014.00099 . PMC 3925830. PMID 24596562 .
- ^ Lee DJ, Kulubya E, Goldin P, Goodarzi A, Girgis F (2018). „ Übersicht über die neuronalen Oszillationen, die der Meditation zugrunde liegen“ . Frontiers in Neuroscience . 12, 178. doi : 10.3389/fnins.2018.00178 . PMC 5890111. PMID 29662434 .
- ^ Manns JR, Howard MW, Eichenbaum H (November 2007). „Graduelle Veränderungen der Hippocampusaktivität unterstützen das Erinnern der Reihenfolge von Ereignissen“ . Neuron . 56 ( 3): 530–40 . doi : 10.1016/j.neuron.2007.08.017 . PMC 2104541. PMID 17988635 .
- ^ Kerrén C, van Bree S, Griffiths BJ, Wimber M (November 2022). „Phasentrennung konkurrierender Erinnerungen entlang des Theta-Rhythmus des menschlichen Hippocampus“ . eLife . 11 e80633 . doi : 10.7554/eLife.80633 . PMC 9671495. PMID 36394367 .
- ^ Saint Amour di Chanaz L, Pérez-Bellido A, Wu „Die Gamma-Amplitude ist während der Kodierung und des Abrufs episodischer Erinnerungen beim Menschen mit entgegengesetzten Theta-Phasen-Zuständen des Hippocampus gekoppelt . “ Curr Biol . 33 (9): 1836–43.e6. doi : 10.1016/j.cub.2023.03.073 . PMID 37060906 .
- ^ Buzsáki, György; Moser, Edvard I. (2013). „Gedächtnis, Navigation und Theta - Rhythmus im hippokampal-entorhinalen System“ . Nature Neuroscience . 16 (2): 130–138 . doi : 10.1038/nn.3304 . PMC 4079500. PMID 23354386 .
- ^ OREKHOVA, E.; STROGANOVA, T.; POSIKERA, I.; ELAM, M. (Mai 2006). „EEG-Theta - Rhythmus bei Säuglingen und Vorschulkindern“ . Clinical Neurophysiology . 117 (5): 1047–62 . doi : 10.1016/j.clinph.2005.12.027 . PMID 16515883. S2CID 19204190 .
- ^ McLoughlin, Gráinne; Gyurkovics, Máté; Palmer, Jason; Makeig, Scott (2021). „Theta-Aktivität im mittleren Frontallappen bei psychiatrischen Erkrankungen: Ein Index kognitiver Vulnerabilitäten über verschiedene Störungen hinweg“ . Biological Psychiatry . 91 (2): 173–182 . doi : 10.1016/j.biopsych.2021.08.020 . PMID 34756560 .
- ^ Vanderwolf, C. H. (1. April 1969). „Elektrische Aktivität des Hippocampus und willkürliche Bewegungen bei der Ratte“. Elektroenzephalographie und Klinische Neurophysiologie . 26 (4): 407–418 . doi : 10.1016/0013-4694(69)90092-3 . PMID 4183562 .
- ^ Kovács KA (September 2020). „Episodische Erinnerungen: Wie kooperieren Hippocampus und entorhinale Ringattraktoren bei ihrer Entstehung?“ Frontiers in Systems Neuroscience . 14 559168: 68. doi : 10.3389 / fnsys.2020.559186 . PMC 7511719. PMID 33013334. S2CID 221567160 .
- ^ Larson, J.; Wong, D.; Lynch, G. (1986-03-19). „Gemusterte Stimulation im Theta-Frequenzbereich ist optimal für die Induktion von Langzeitpotenzierung im Hippocampus“. Brain Research . 368 (2): 347–350 . doi : 10.1016/0006-8993(86)90579-2 . PMID 3697730. S2CID 36572201 .
- „ Das Bemerkenswerte ist jedoch, dass, sobald die Meditierenden signalisierten, in einen Zustand geistiger Stille oder „gedankenloser Achtsamkeit“ eingetreten zu sein, eine andere Form der Gehirnwellenaktivität auftrat, nämlich „Theta-Wellen“, die sich spezifisch im vorderen und oberen Bereich des Gehirns in der Mittellinie konzentrierten.“ http://www.researchingmeditation.org/meditation-research-summary/brain-waves
- ^ Aftanas, LI; Golocheikine, SA (September 2001). „Theta- und niedrigere Alpha-Aktivität im anterioren und frontalen Mittelbereich des Menschen spiegeln einen emotional positiven Zustand und internalisierte Aufmerksamkeit wider: Eine hochauflösende EEG-Untersuchung der Meditation“. Neuroscience Letters . 310 (1): 57–60 . doi : 10.1016/S0304-3940(01)02094-8 . PMID 11524157. S2CID 26624762 .
- ^ Zheng, J.; Yebra, M.; Schjetnan, AGP (2024). „Theta-Phasenpräzession unterstützt die Gedächtnisbildung und den Abruf naturalistischer Erfahrungen beim Menschen“ . Nature Human Behaviour . 8 (12): 2423–2436 . doi : 10.1038/s41562-024-01983-9 . PMC 11659172. PMID 39363119 .
- ^ Pagnotta, Mattia F.; Riddle, Justin; D'Esposito, Mark (1. Mai 2024). „Multiplexed Levels of Cognitive Control through Delta and Theta Neural Oscillations“ . Journal of Cognitive Neuroscience . 36 (5): 916–935 . doi : 10.1162/jocn_a_02124 . PMC 11284805. PMID 38319885 .
- ^ Martínez-Molina, María Paz; Valdebenito-Oyarzo, Gabriela; Soto-Icaza, Patricia; Zamorano, Francisco; Figueroa-Vargas, Alejandra; Carvajal-Paredes, Patricio; Stecher, Ximena; Salinas, César; Valero-Cabré, Antoni; Polania, Rafael; Billeke, Pablo (2024). „Laterale präfrontale Theta-Oszillationen steuern kausal einen Rechenmechanismus, der der Konflikterwartung und -anpassung zugrunde liegt . “ Naturkommunikation . 15 (1): 9858. Bibcode : 2024NatCo..15.9858M . doi : 10.1038/s41467-024-54244-8 . PMC 11564697 . PMID 39543128 .
- Alonso, A.; Llinás , R. (1989). „Subthreshold Na + -dependent theta-like rhythmicity in entorhinal cortex layer II stellate cells“. Nature . 342 (6246): 175–177 . doi : 10.1038/342175a0 . PMID 2812013. S2CID 1892764 .
- Bland, BH; Oddie SD (2001). „Theta-Band-Oszillation und -Synchronisation in der Hippocampusformation und assoziierten Strukturen: Argumente für ihre Rolle bei der sensomotorischen Integration“. Behav Brain Res . 127 ( 1–2 ): 119–36 . doi : 10.1016/S0166-4328(01) 00358-8 . PMID 11718888. S2CID 21416029 .
- Brankack, J.; Stewart, M.; Fox, S. E. (1993). „Stromquellendichteanalyse des hippocampalen Theta-Rhythmus: Assoziierte anhaltende Potenziale und Kandidaten für synaptische Generatoren“. Brain Res . 615 (2): 310–327 . doi : 10.1016/0006-8993(93)90043-M . PMID 8364740. S2CID 33028662 .
- Buzsáki, G. (2002). „Theta - Oszillationen im Hippocampus“ . Neuron . 33 (3): 325–40 . doi : 10.1016/S0896-6273(02)00586-X . PMID 11832222. S2CID 15410690 .
- Buzsáki, G. (2005). „Theta-Rhythmus der Navigation: Verbindung zwischen Pfadintegration und Landmarkennavigation, episodischem und semantischem Gedächtnis“. Hippocampus . 15 (7): 827–40 . CiteSeerX 10.1.1.476.6199 . doi : 10.1002 / hipo.20113 . PMID 16149082. S2CID 15945649 .
- Cantero JL, Atienza M, Stickgold R, Kahana MJ, Madsen JR, Kocsis B (2003). „Schlafabhängige Theta-Oszillationen im menschlichen Hippocampus und Neocortex“ . J Neurosci . 23 (34): 10897–903 . doi : 10.1523/JNEUROSCI.23-34-10897.2003 . PMC 6740994. PMID 14645485 .
- Green, JD; Arduini A (1954). „Hippocampale Aktivität bei Erregung“. J Neurophysiol . 17 (6): 533–57 . doi : 10.1152/jn.1954.17.6.533 . PMID 13212425 .
- Green, JD (1964). „Der Hippocampus“. Physiol Rev. 44 ( 4): 561–608 . doi : 10.1152 / physrev.1964.44.4.561 . PMID 14221342. S2CID 39459563 .
- Hasselmo, ME (2005). „Welche Funktion hat der Theta-Rhythmus im Hippocampus? – Verknüpfung von Verhaltensdaten mit phasischen Eigenschaften von Feldpotentialen und Einzelzellableitungen“. Hippocampus . 15 ( 7): 936–49 . CiteSeerX 10.1.1.483.5818 . doi : 10.1002/hipo.20116 . PMID 16158423. S2CID 3084737 .
- Hasselmo, ME; Eichenbaum H (2005). „Hippocampale Mechanismen für den kontextabhängigen Abruf von Episoden“ . Neural Networks . 18 (9): 1172–90 . doi : 10.1016/j.neunet.2005.08.007 . PMC 2253492. PMID 16263240 .
- Hyman, JM; Wyble, BP; Goyal, V; Rossi, CA; Hasselmo, ME (17. Dezember 2003). „ Stimulation der CA1-Region des Hippocampus bei sich verhaltenden Ratten führt zu LTP bei Stimulation im Theta-Peak und zu LTD bei Stimulation im Theta-Tal“ . J Neurosci . 23 (37): 11725–31 . doi : 10.1523/JNEUROSCI.23-37-11725.2003 . PMC 6740943. PMID 14684874 .
- Jensen MP, Adachi T, Hakimian S (2015). „Hirnschwingungen, Hypnose und Hypnotisierbarkeit“ . The American Journal of Clinical Hypnosis (Übersicht). 57 (3): 230–53 . doi : 10.1080/00029157.2014.976786 . PMC 4361031. PMID 25792761 .
- Kirk IJ (1998). „Frequenzmodulation der hippocampalen Theta-Wellen durch den Nucleus supramammillaris und andere hypothalamo-hippocampale Interaktionen: Mechanismen und funktionelle Implikationen“. Neurosci Biobehav Rev. 22 ( 2): 291–302 . doi : 10.1016/S0149-7634(97)00015-8 . PMID 9579319. S2CID 24866170 .
- Kramis R, Vanderwolf CH, Bland BH (1975). „Zwei Arten rhythmischer langsamer Aktivität im Hippocampus von Kaninchen und Ratte: Beziehungen zum Verhalten und Wirkungen von Atropin, Diethylether, Urethan und Pentobarbital“. Exp Neurol . 49 (1 Pt 1): 58–85 . doi : 10.1016/0014-4886(75) 90195-8 . PMID 1183532. S2CID 2343829 .
- Jung, R; Kornmüller AE (1938). „Eine Methodik der Ableitung früherer Potentialschwankungen aus subkortikalen Hirngebieten“. Arch Psychiat Nervenkr . 109 : 1–30 . doi : 10.1007/BF02157817 . S2CID 27345807 .
- Sainsbury, RS; Heynen A; Montoya CP (1987). „Verhaltenskorrelate der hippocampalen Theta-Aktivität Typ 2 bei der Ratte“. Physiol Behav . 39 (4): 513–9 . doi : 10.1016/0031-9384(87)90382-9 . PMID 3575499. S2CID 316806 .
- Stewart M, Fox SE (1990). „Bestimmen Septumneuronen den Theta-Rhythmus des Hippocampus?“ Trends Neurosci . 13 (5): 163–168 . doi : 10.1016/0166-2236(90)90040-H . PMID 1693232. S2CID 28101789 .
- Stewart M, Fox SE (1991). „Hippocampale Theta-Aktivität bei Affen“. Brain Res . 538 (1): 59–63 . doi : 10.1016/0006-8993(91) 90376-7 . PMID 2018932. S2CID 46642661 .
- Stumpf, C. (1965). „Wirkung von Medikamenten auf die elektrische Aktivität des Hippocampus“. International Review of Neurobiology . Band 8. S. 77–138 . doi : 10.1016/S0074-7742(08)60756-4 . ISBN 978-0-12-366808-0PMID 4954552 .
- Vertes, RP (2005). „Hippocampaler Theta-Rhythmus: ein Marker für das Kurzzeitgedächtnis“. Hippocampus . 15 (7): 923–35 . doi : 10.1002/hipo.20118 . PMID 16149083. S2CID 12052570 .
- Wang XJ (2002) . „Schrittmacherneuronen für den Theta-Rhythmus und ihre Synchronisation in der septohippocampalen reziproken Schleife“. J Neurophysiol . 87 (2): 889–900 . doi : 10.1152/jn.00135.2001 . PMID 11826054. S2CID 1221208 .
- Whishaw IQ, Vanderwolf CH (1973). „Hippocampales EEG und Verhalten: Veränderungen in Amplitude und Frequenz der RSA (Theta-Rhythmus) in Verbindung mit spontanen und erlernten Bewegungsmustern bei Ratten und Katzen“. Behav Biol . 8 (4): 461–84 . doi : 10.1016/S0091-6773(73)80041-0 . PMID 4350255 .