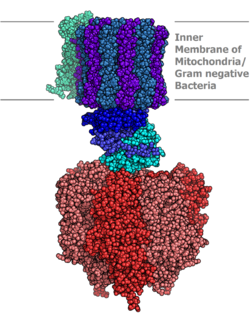
Der Translokon (auch Translokator oder Translokationskanal genannt ) ist ein Oberbegriff für einen Proteinkanal in biologischen Membranen, der Polypeptide durch die Membran transportiert oder in die Lipiddoppelschicht einfügt. [ 1 ] Diese Struktur ist ein Schlüsselelement des Proteintransportwegs in allen Organismen, von Bakterien über Archaeen bis hin zu Eukaryoten.
Bei Eukaryoten bezeichnet der Begriff Translokon meist den Komplex, der neu synthetisierte Polypeptide mit einer Zielsequenz aus dem Zytosol in den Innenraum (Zisternen oder Lumen) des endoplasmatischen Retikulums (ER) transportiert. Dieser Translokationsprozess erfordert, dass das Protein eine hydrophobe Lipiddoppelschicht durchquert . Derselbe Komplex wird auch verwendet, um neu synthetisierte Proteine in die Membran selbst zu integrieren ( Membranproteine ). Bei Prokaryoten transportiert ein ähnlicher Proteinkomplex Polypeptide durch die (innere) Plasmamembran oder integriert Membranproteine. [ 2 ] In beiden Fällen besteht der Proteinkomplex aus Sec-Proteinen (Sec: sekretorisch), wobei das heterotrimere Sec61 den Kanal bildet. [ 3 ] Bei Prokaryoten ist der homologe Kanalkomplex als SecYEG bekannt. [ 4 ]
Struktur und Komponenten
Der Translokon besteht typischerweise aus integralen Membranproteinen, die einen engen Kanal bilden, der gerade breit genug ist, damit eine ungefaltete Polypeptidkette hindurchpassen kann. Die Kernstruktur des Translokons variiert je nach System:
- Sicherheitssystem
- Prokaryoten : SecYEG-Komplex
- Eukaryoten : Sec61αβγ-Komplex
- TAT-System ( Twin-Arginine Translocation )
- TatA-, TatB- und TatC-Komplex, spezialisiert auf vollständig gefaltete Proteine
- YidC-System
- Fügt Membranproteine ein, ohne den Sec-Weg zu durchlaufen
Translokone besitzen oft ein „seitliche Tor“, das es hydrophoben Segmenten (Transmembrandomänen) ermöglicht, direkt in die Lipiddoppelschicht auszutreten.
Zentralkanal
Die Struktur dieses Kanals im inaktiven Zustand wurde in Archaeen mittels Röntgenkristallographie bestimmt.
In Zellen ist der Translokonkanal ein dreiteiliger Proteinkomplex, der bei Prokaryoten als SecYEG und bei Eukaryoten als Sec61 bekannt ist. [ 5 ] Er besteht aus den Untereinheiten SecY, SecE und SecG, wobei SecY die Hauptpore bildet. Die Struktur dieses Kanals im Ruhezustand wurde mittels Röntgenkristallographie in Archaeen aufgeklärt . [ 4 ]
In einigen Fällen verbindet sich das Kerntrimer mit vier weiteren Proteinen zu einem größeren, siebenteiligen (heptameren) Komplex, der für den Transport bestimmter Polypeptide in das endoplasmatische Retikulum (ER) verantwortlich ist. [ 6 ]
Der Kanal weist von der Seite betrachtet eine charakteristische Sanduhrform mit einem Trichter an beiden Enden auf. Der nach außen gerichtete Trichter ist durch einen kleinen, aus einer Alpha-Helix bestehenden „Pfropfen“ verschlossen . In der Mitte der Membran befindet sich ein Ring aus sechs hydrophoben Aminosäuren, deren Seitenketten nach innen gerichtet sind und eine selektive Barriere bilden. Bei Beginn der Proteintranslokation schiebt sich der Pfropfen zur Seite, und die neue Polypeptidkette gelangt vom zytoplasmatischen Trichter durch den Porenring und durch den gegenüberliegenden Trichter nach außen. Bei Membranproteinen treten hydrophobe Bereiche durch eine seitliche Öffnung, das sogenannte laterale Tor, in die umgebende Lipidschicht ein und bilden dort Segmente, die die Membran durchspannen. [ 4 ]
Assoziiertes Protein
In Bakterien bildet SecYEG einen Komplex mit SecDF, YajC und YidC. [ 7 ] [ 8 ] In Eukaryoten bildet Sec61 einen Komplex mit dem Oligosaccharyltransferase- Komplex, dem TRAP-Komplex und dem Membranprotein TRAM (möglicherweise ein Chaperon). Für weitere Komponenten, wie den Signalpeptidase- Komplex und den SRP-Rezeptor, ist unklar, inwieweit sie nur vorübergehend mit dem Translokon-Komplex assoziieren. [ 9 ]
Translokationsmechanismus
Der Translokationskanal ermöglicht den Transport von Peptiden in beide Richtungen und benötigt daher zusätzliche Komponenten, um das Peptid in die richtige Richtung zu lenken. Es gibt zwei Haupttypen der Translokation: die cotranslationale , die während der Proteinsynthese am Ribosom stattfindet, und die posttranslationale , die nach der Fertigstellung des Proteins erfolgt. Beide Prozesse kommen in Eukaryoten und Bakterien vor, die Mechanismen unterscheiden sich jedoch. In Eukaryoten werden Proteine mithilfe von BiP und anderen Transportkomplexen transportiert, während in Bakterien die SecA- ATPase die Energie liefert, um das Peptid durch den Kanal zu befördern. [ 10 ]
Cotranslationale Translokation

Bei der cotranslationalen Translokation arbeitet der Translokon mit dem Ribosom zusammen , sodass eine wachsende Proteinkette direkt vom Ribosom in den Translokonkanal transportiert wird. In Eukaryoten beginnt dieser Prozess, wenn ein Signalerkennungspartikel (SRP) eine kurze Signalsequenz am Anfang des Proteins erkennt. Das SRP pausiert die Proteinsynthese und lenkt das Ribosom zum SRP-Rezeptor am endoplasmatischen Retikulum (ER). Sobald das Ribosom gebunden ist, wird das SRP freigesetzt und die Proteinsynthese fortgesetzt. Das neue Protein wird in ungefalteter Form durch den Sec61-Kanal transportiert, manchmal mithilfe eines Mechanismus, der als Brownsche Ratsche bekannt ist . Nach der vollständigen Proteinsynthese spaltet eine Signalpeptidase die kurze Signalsequenz ab und gibt das fertige Protein in das Innere des ER frei. [ 11 ] [ 12 ] [ 13 ]
Der ER-Translokon ist eine Gruppe von miteinander verbundenen Proteinkomplexen, darunter Sec61 (der Kanal), der TRAP-Komplex und der Oligosaccharyltransferase (OST)-Komplex, der Zuckermoleküle an das neue Protein anheften kann, wenn dieses in das ER eintritt.
Bakterien nutzen ein ähnliches SRP-System sowie ein Chaperon namens YidC, das mit dem TRAM-Protein in Eukaryoten vergleichbar ist. [ 14 ] [ 10 ]
Der Translokon kann Membranproteine auch in der korrekten Orientierung in die ER-Membran einfügen. Dies beruht auf der Erkennung hydrophober Abschnitte der Proteinsequenz , die zu Transmembranhelices werden . Diese Helices werden vom Translokon durch eine Kombination aus Stopp-Transfer- und Signalsequenzen positioniert, wobei sich der Verschluss des Kanals öffnet und schließt, um sie korrekt in der Membran zu platzieren. [ 10 ]
Posttranslationale Translokation
Bei Eukaryoten beruht die posttranslationale Translokation auf BiP und anderen Helferkomplexen, darunter dem in die Membran eingebetteten Proteinkomplex SEC62/SEC63. Dabei unterstützt Sec63 BiP beim Abbau von ATP, wodurch BiP die Energie erhält, um an das neue Protein zu binden und es durch den Kanal zu „ziehen“. Dieser Zugvorgang wird von mehreren BiP-Molekülen wiederholt, bis sich das gesamte Protein im Zielkompartiment befindet. [ 10 ]
Bei Bakterien übernimmt SecA eine ähnliche Funktion. SecA ist ein ATP-betriebener „Schiebemotor“, der gelegentlich vom SecDF-Komplex auf der gegenüberliegenden Seite unterstützt wird, der das Protein durchziehen kann. [ 15 ] SecA nutzt einen „Schiebe- und Gleitmechanismus“: Im ATP-gebundenen Zustand schiebt es mithilfe einer Zwei-Helix-Fingerstruktur einen Abschnitt des Proteins in den Kanal. Nach der Spaltung von ATP in ADP gibt SecA seinen Halt frei, sodass das Protein leicht in beide Richtungen gleiten kann. Anschließend greift SecA den nächsten Abschnitt des Proteins und wiederholt den Zyklus, bis die gesamte Kette den Kanal passiert hat. [ 10 ]
Der ER-Retrotranslokon
Translokatoren können auch Polypeptide (wie zum Beispiel beschädigte Proteine, die für Proteasomen bestimmt sind ) aus dem Zisternenraum des endoplasmatischen Retikulums ins Zytosol transportieren. ER-Proteine werden im Zytosol durch das 26S- Proteasom abgebaut , ein Prozess, der als ER-assoziierter Proteinabbau bekannt ist , und müssen daher über einen geeigneten Kanal transportiert werden. Dieser Retrotranslokon ist noch immer rätselhaft.
Man ging zunächst davon aus, dass der Sec61-Kanal für diesen retrograden Transport verantwortlich ist, was impliziert, dass der Transport durch Sec61 nicht immer unidirektional, sondern auch bidirektional sein kann. [ 16 ] Die Struktur von Sec61 stützt diese Ansicht jedoch nicht, und es wurden mehrere verschiedene Proteine vorgeschlagen, die für den Transport vom ER-Lumen ins Zytosol verantwortlich sind. [ 17 ]
Translocon-Qualitätskontrolle
Translokone können durch translationsgehemmte oder falsch gefaltete Proteine, die mit dem Komplex interagieren, blockiert werden. Dies ist eine der Ursachen für Funktionsstörungen von Translokonen; beispielsweise kann es bei der kotranslationalen Translokation (CTT) zu einer Blockierung des Translokons durch translationsgehemmte ER-Zielproteine kommen. [ 18 ] Eine Blockierung des Translokons während der posttranslationalen Translokation (PTT) kann auftreten, wenn Proteine nicht korrekt gefaltet sind oder Aggregate bilden, bevor sie vollständig transloziert sind. [ 19 ] [ 20 ] [ 21 ]
Die Qualitätskontrollmechanismen des Translokons in der Zelle stellen die Translokonfunktion wieder her, indem sie verstopfte Translokonkanäle während der Proteintranslokation freimachen. [ 20 ] Das Ubiquitin-Proteasom-System (UPS) ist einer von mehreren Abbaumechanismen im Rahmen der Translokon-Qualitätskontrolle (TQC). Dieser Prozess umfasst das Targeting verstopfter Proteine durch Anheftung von Ubiquitin- Enzymen zum Abbau durch das Proteasom. [ 22 ]
Siehe auch
Referenzen
- ^ Johnson AE, van Waes MA (1999). „Der Translokon: ein dynamisches Tor an der ER-Membran“. Annual Review of Cell and Developmental Biology . 15 : 799–842 . doi : 10.1146/annurev.cellbio.15.1.799 . PMID 10611978 .
- ^ Gold VA, Duong F, Collinson I (2007). „ Struktur und Funktion des bakteriellen Sec-Translokons“ . Molecular Membrane Biology . 24 ( 5–6 ): 387–94 . doi : 10.1080/09687680701416570 . PMID 17710643. S2CID 83946219 .
- ^ Deshaies RJ, Sanders SL, Feldheim DA, Schekman R (Februar 1991). „Assemblierung von Hefe-Sec-Proteinen , die an der Translokation in das endoplasmatische Retikulum beteiligt sind, in einen membrangebundenen Multisubunit-Komplex“. Nature . 349 (6312): 806–808 . Bibcode : 1991Natur.349..806D . doi : 10.1038/349806a0 . PMID 2000150. S2CID 31383053 .
- Van den Berg B, Clemons WM, Collinson I, Modis Y, Hartmann E, Harrison SC, Rapoport TA (Januar 2004). „Röntgenstruktur eines Proteinkanals“. Nature . 427 (6969): 36–44 . Bibcode : 2004Natur.427 ...36B . doi : 10.1038/ nature02218 . PMID 14661030. S2CID 4360143 .
- ^ Chang Z (2016-01-01). „Biogenese sekretorischer Proteine“. In: Bradshaw RA, Stahl PD (Hrsg.). Encyclopedia of Cell Biology . Waltham: Academic Press. S. 535–544 . doi : 10.1016/b978-0-12-394447-4.10065-3 . ISBN 978-0-12-394796-3Die
- Meyer, Hellmuth-Alexander; Grau, Harald; Kraft, Regine; Kostka, Susanne; Prehn, Siegfried; Kalies, Kai-Uwe; Hartmann, Enno (Mai 2000). „ Mammalian Sec61 Is Associated with Sec62 and Sec63“ . Journal of Biological Chemistry . 275 (19): 14550–14557 . doi : 10.1074/jbc.275.19.14550 . ISSN 0021-9258 . PMID 10799540 .
- ^ Duong F, Wickner W (Mai 1997). „Unterschiedliche katalytische Rollen der SecYE-, SecG- und SecDFyajC-Untereinheiten des Präprotein-Translokase-Holoenzyms“ . The EMBO Journal . 16 (10): 2756–68 . doi : 10.1093/emboj/16.10.2756 . PMC 1169885. PMID 9184221 .
- ^ Scotti PA, Urbanus ML, Brunner J, de Gier JW, von Heijne G, van der Does C, et al. (Februar 2000). „YidC, das Escherichia coli-Homolog des mitochondrialen Oxa1p, ist ein Bestandteil der Sec-Translokase“ . Das EMBO Journal . 19 (4): 542– 9. doi : 10.1093/emboj/19.4.542 . PMC 305592 . PMID 10675323 .
- Pfeffer S, Dudek J, Gogala M, Schorr S, Linxweiler J, Lang S et al. (2014). „Struktur des Oligosaccharyltransferase-Komplexes von Säugetieren im nativen ER-Protein-Translokon“ . Nature Communications . 5 (5): 3072. Bibcode : 2014NatCo...5.3072P . doi : 10.1038/ncomms4072 . PMID 24407213 .
- ^ a b c d e Osborne AR, Rapoport TA, van den Berg B (2005). „Proteintranslokation durch den Sec61/SecY-Kanal“. Annual Review of Cell and Developmental Biology . 21 : 529–50 . doi : 10.1146/annurev.cellbio.21.012704.133214 . PMID 16212506 .
- ^ Simon SM, Blobel G (Mai 1991). „Ein proteinleitender Kanal im endoplasmatischen Retikulum“. Cell . 65 (3): 371–80 . doi : 10.1016/0092-8674(91) 90455-8 . PMID 1902142. S2CID 33241198 .
- ^ Simon SM, Blobel G (Mai 1992). „Signalpeptide öffnen Proteinkanäle in E. coli“. Cell . 69 (4): 677–84 . doi : 10.1016/0092-8674(92)90231- z . PMID 1375130. S2CID 24540393 .
- ^ Cross, Benedict CS; Sinning, Irmgard; Luirink, Joen; High, Stephen (April 2009). „Transport von Proteinen zum Export aus dem Zytosol“ . Nature Reviews Molecular Cell Biology . 10 (4): 255–264 . doi : 10.1038/nrm2657 . ISSN 1471-0080 . PMID 19305415 .
- ^ Zhu L, Kaback HR, Dalbey RE (September 2013). „YidC-Protein, ein molekulares Chaperon für die Faltung des LacY-Proteins über die SecYEG-Proteinmaschinerie“ . The Journal of Biological Chemistry . 288 (39): 28180–94 . doi : 10.1074/jbc.M113.491613 . PMC 3784728. PMID 23928306 .
- ^ Lycklama A, Nijeholt JA, Driessen AJ (April 2012). „Die bakterielle Sec-Translokase: Struktur und Mechanismus“ . Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 367 (1592): 1016–28 . doi : 10.1098/rstb.2011.0201 . PMC 3297432. PMID 22411975 .
- ^ Römisch K (Dezember 1999). „Surfen am Sec61-Kanal: Bidirektionale Proteintranslokation durch die ER-Membran“. Journal of Cell Science . 112 (Pt 23) (23): 4185–91 . doi : 10.1242/jcs.112.23.4185 . PMID 10564637 .
- ^ Hampton RY, Sommer T (August 2012). „Finding the will and the way of ERAD substrate retrotranslocation“. Current Opinion in Cell Biology . 24 (4): 460–6 . doi : 10.1016/j.ceb.2012.05.010 . PMID 22854296 .
- Crowder, Justin J.; Geigges, Marco; Gibson, Ryan T.; Fults, Eric S.; Buchanan, Bryce W.; Sachs, Nadine; Schink, Andrea; Kreft, Stefan G.; Rubenstein, Eric M. (Juli 2015). „ Rkr1/Ltn1 - Ubiquitin-Ligase-vermittelter Abbau von translationell blockierten Proteinen des endoplasmatischen Retikulums“ . Journal of Biological Chemistry . 290 (30): 18454–18466 . doi : 10.1074/jbc.M115.663559 . PMC 4513105. PMID 26055716 .
- ^ Ast, Tslil; Michaelis, Susan; Schuldiner , Maya (Januar 2016). „Die Protease Ste24 löst verstopfte Translokons“ . Cell . 164 ( 1–2 ): 103–114 . doi : 10.1016/j.cell.2015.11.053 . PMC 4715265. PMID 26771486 .
- Runnebohm , Avery M.; Richards, Kyle A.; Irelan, Courtney Broshar; Turk, Samantha M.; Vitali, Halie E.; Indovina, Christopher J.; Rubenstein, Eric M. (November 2020). „ Überlappende Funktion von Hrd1 und Ste24 in der Translokon - Qualitätskontrolle ermöglicht robuste Kanalüberwachung“ . Journal of Biological Chemistry . 295 (47): 16113–16120 . doi : 10.1074/jbc.AC120.016191 . PMC 7681017. PMID 33033070 .
- ^ Kayatekin, Can; Amasino, Audra; Gaglia, Giorgio; Flannick, Jason; Bonner, Julia M.; Fanning, Saranna; Narayan, Priyanka; Barrasa, M. Inmaculada; Pincus, David; Landgraf, Dirk; Nelson, Justin; Hesse, William R.; Costanzo, Michael; Myers, Chad L.; Boone, Charles (März 2018). „Translocon Declogger Ste24 schützt vor IAPP-Oligomer-induzierter Proteotoxizität“ . Zelle . 173 (1): 62–73.e9. doi : 10.1016/j.cell.2018.02.026 . PMC 5945206 .
- ^ Hiller, Mark M.; Finger, Andreas; Schweiger, Markus; Wolf, Dieter H. (20.09.1996). „ER-Abbau eines fehlgefalteten luminalen Proteins über den cytosolischen Ubiquitin-Proteasom-Weg“ . Science . 273 (5282): 1725–1728 . doi : 10.1126/science.273.5282.1725 . PMID 8781238 .