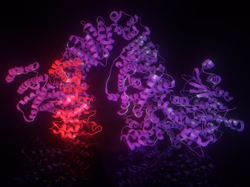
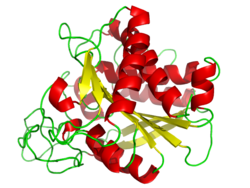
In der Biochemie und Pharmakologie bezeichnet man als allosterischen Regulator (oder allosterischen Modulator ) eine Substanz, die an eine vom aktiven Zentrum verschiedene Stelle eines Enzyms oder Rezeptors bindet und dadurch eine Konformationsänderung bewirkt, die die Aktivität des Proteins verändert und dessen Funktion entweder verstärkt oder hemmt. Im Gegensatz dazu werden Substanzen, die direkt an das aktive Zentrum eines Enzyms oder die Bindungsstelle des endogenen Liganden eines Rezeptors binden, als orthosterische Regulatoren oder Modulatoren bezeichnet.
Die Bindungsstelle des Effektors wird als allosterische oder regulatorische Bindungsstelle bezeichnet . Allosterische Bindungsstellen ermöglichen die Bindung von Effektoren an das Protein, was häufig zu einer Konformationsänderung und/oder einer Veränderung der Proteindynamik führt . [ 1 ] [ 2 ] Effektoren, die die Aktivität des Proteins erhöhen, werden als allosterische Aktivatoren bezeichnet , während solche, die die Proteinaktivität verringern, als allosterische Inhibitoren bezeichnet werden .
Allosterische Regulationen sind ein natürliches Beispiel für Regelkreise, wie etwa Rückkopplungen von nachgeschalteten Produkten oder Vorwärtskopplungen von vorgeschalteten Substraten. Die Allosterie über größere Entfernungen ist besonders wichtig für die Zellsignalisierung . [ 3 ] Die allosterische Regulation ist auch für die Fähigkeit der Zelle , die Enzymaktivität anzupassen, von großer Bedeutung .
Der Begriff Allosterie stammt aus dem Altgriechischen: allos ( ἄλλος ), „anders“, und stereos ( στερεός ), „fest (Objekt)“. Er bezieht sich darauf, dass die regulatorische Domäne eines allosterischen Proteins räumlich von seinem aktiven Zentrum getrennt ist. Allosterie steht im Gegensatz zur Substratpräsentation , die für die Aktivierung eines Enzyms keine Konformationsänderung erfordert. Der Begriff Orthosterie stammt aus dem Altgriechischen: orthós ( ὀρθός ) bedeutet „gerade“, „aufrecht“, „richtig“ oder „korrekt“.
Ortho- vs. allosterische Inhibitoren
Orthosterisch
- Bindungsstelle: Orthosterische Inhibitoren binden direkt an das aktive Zentrum des Enzyms, wo normalerweise das Substrat bindet.
- Wirkungsmechanismus: Durch die Besetzung des aktiven Zentrums verhindern diese Inhibitoren die Bindung des Substrats und blockieren dadurch direkt die katalytische Aktivität des Enzyms.
- Kompetitive Hemmung: Die meisten orthosterischen Inhibitoren konkurrieren mit dem Substrat um das aktive Zentrum, was bedeutet, dass ihre Wirksamkeit bei steigender Substratkonzentration abnehmen kann.
allosterisch
- Bindungsstelle: Allosterische Inhibitoren binden an eine Stelle des Enzyms, die sich vom aktiven Zentrum unterscheidet und getrennt ist; diese Stelle wird als allosterische Bindungsstelle bezeichnet.
- Wirkmechanismus: Die Bindung an das allosterische Zentrum induziert eine Konformationsänderung des Enzyms, die entweder die Affinität des aktiven Zentrums zum Substrat verringern oder die katalytische Aktivität des Enzyms verändern kann. Diese indirekte Beeinträchtigung kann die Enzymfunktion selbst bei Vorhandensein des Substrats hemmen.
- Nicht-kompetitive Hemmung: Allosterische Inhibitoren weisen häufig eine nicht-kompetitive Hemmung auf, was bedeutet, dass ihre hemmende Wirkung nicht von der Substratkonzentration abhängt.
Modelle

Viele allosterische Effekte lassen sich durch das von Monod , Wyman und Changeux [ 4 ] vorgeschlagene konzertierte MWC-Modell oder durch das von Koshland , Nemethy und Filmer [ 5 ] beschriebene sequentielle Modell (auch bekannt als KNF-Modell) erklären. Beide Modelle postulieren , dass Proteinuntereinheiten in einer von zwei Konformationen vorliegen : gespannt (T) oder entspannt (R). Entspannte Untereinheiten binden Substrat leichter als solche im gespannten Zustand. Die beiden Modelle unterscheiden sich hauptsächlich in ihren Annahmen zur Untereinheiteninteraktion und der Präexistenz beider Zustände. Für Proteine, deren Untereinheiten in mehr als zwei Konformationen vorliegen , kann das von Cuendet, Weinstein und LeVine [ 6 ] beschriebene Allosterie-Landschaftsmodell verwendet werden. Die allosterische Regulation kann durch die Evolution großräumiger, energiearmer Konformationsänderungen erleichtert werden, wodurch allosterische Fernwechselwirkungen zwischen weit entfernten Bindungsstellen ermöglicht werden. [ 7 ]
Abgestimmtes Modell
Das konzertierte Modell der Allosterie, auch Symmetriemodell oder MWC-Modell genannt , postuliert, dass Enzymuntereinheiten so miteinander verbunden sind, dass eine Konformationsänderung einer Untereinheit zwangsläufig alle anderen Untereinheiten beeinflusst. Demnach müssen alle Untereinheiten in derselben Konformation vorliegen. Das Modell besagt weiterhin, dass in Abwesenheit eines Liganden (Substrat oder anderer Liganden) das Gleichgewicht einen der Konformationszustände T oder R begünstigt. Durch die Bindung eines Liganden (des allosterischen Effektors oder Liganden) an eine vom aktiven Zentrum verschiedene Stelle kann das Gleichgewicht in den Zustand R oder T verschoben werden.
Sequentielles Modell
Das sequentielle Modell der allosterischen Regulation besagt, dass die Untereinheiten nicht so miteinander verbunden sind, dass eine Konformationsänderung in einer Untereinheit eine ähnliche Änderung in den anderen induziert. Daher müssen nicht alle Enzymuntereinheiten dieselbe Konformation aufweisen. Darüber hinaus legt das sequentielle Modell fest, dass Substratmoleküle über einen induzierten Anpassungsprozess binden . Dieser induzierte Anpassungsprozess überführt zwar eine Untereinheit vom gespannten in den entspannten Zustand, überträgt die Konformationsänderung aber nicht auf benachbarte Untereinheiten. Stattdessen verändert die Substratbindung an eine Untereinheit die Struktur anderer Untereinheiten nur geringfügig, sodass deren Bindungsstellen empfänglicher für das Substrat werden. Zusammenfassend:
- Die Untereinheiten müssen nicht in der gleichen Konformation vorliegen.
- Substratmoleküle binden über ein induziertes Anpassungsprotokoll
- Konformationsänderungen werden nicht auf alle Untereinheiten übertragen.
Morpheein-Modell
Das Morpheein- Modell der allosterischen Regulation ist ein dissoziatives, konzertiertes Modell. [ 8 ]
Morpheein ist eine homo-oligomere Struktur, die als Ensemble physiologisch bedeutsamer und funktionell unterschiedlicher alternierender quartärer Komplexe vorliegen kann. Übergänge zwischen diesen Komplexen beinhalten die Dissoziation des Oligomers, eine Konformationsänderung im dissoziierten Zustand und die Reassemblierung zu einem anderen Oligomer. Der notwendige Dissoziationsschritt unterscheidet das Morpheein-Modell der allosterischen Regulation von den klassischen MWC- und KNF-Modellen.
Porphobilinogen-Synthase (PBGS) ist der Prototyp des Morpheeins.
Ensemble-Modelle
Ensemble-Modelle der allosterischen Regulation beschreiben das statistische Ensemble eines allosterischen Systems als Funktion seiner potenziellen Energie und verknüpfen spezifische statistische Messungen der Allosterie mit spezifischen Energietermen in der Energiefunktion (z. B. einer intermolekularen Salzbrücke zwischen zwei Domänen). [ 9 ] Ensemble-Modelle wie das Ensemble-allosterische Modell [ 10 ] und das allosterische Ising-Modell [ 11 ] gehen davon aus, dass jede Domäne des Systems, ähnlich dem MWC-Modell, zwei Zustände annehmen kann. Das von Cuendet, Weinstein und LeVine [ 6 ] eingeführte Allosterie-Landschaftsmodell erlaubt eine beliebige Anzahl von Zuständen pro Domäne. Der Beitrag einer spezifischen molekularen Wechselwirkung zu einer gegebenen allosterischen Kopplung lässt sich mithilfe strenger Regeln abschätzen. Molekulardynamik -Simulationen können verwendet werden, um das statistische Ensemble eines Systems zu bestimmen und es anschließend mit dem Allosterie-Landschaftsmodell zu analysieren.
allosterische Modulation
Die allosterische Modulation wird in der Biochemie und Pharmakologie eingesetzt, um die Aktivität von Molekülen und Enzymen zu verändern. Im Vergleich dazu bindet ein typisches Medikament an das aktive Zentrum eines Enzyms und verhindert so die Substratbindung, was zu einer verminderten Enzymaktivität führt. Bei der allosterischen Modulation bindet ein Effektor an eine allosterische Stelle (auch regulatorische Stelle genannt) eines Enzyms und verändert dessen Aktivität. Allosterische Modulatoren sind so konzipiert, dass sie an die allosterische Stelle binden und eine Konformationsänderung des Enzyms, insbesondere eine Veränderung der Form des aktiven Zentrums, bewirken, wodurch sich dessen Aktivität ändert. Im Gegensatz zu typischen Medikamenten sind Modulatoren keine kompetitiven Inhibitoren . Sie können die Enzymaktivität erhöhen (aktivieren) oder verringern (hemmen). Die allosterische Modulation ermöglicht die gezielte Steuerung der Wirkungen spezifischer Enzymaktivitäten; daher sind allosterische Modulatoren in der Pharmakologie sehr wirksam. [ 12 ] In einem biologischen System kann es schwierig sein, die allosterische Modulation von der Modulation durch Substratpräsentation zu unterscheiden .
Energieerfassungsmodell
Ein Beispiel für dieses Modell ist die Pyruvatkinase von Mycobacterium tuberculosis , einem Bakterium , das perfekt an das Leben in den Makrophagen des Menschen angepasst ist. Die Bindungsstellen des Enzyms dienen der Kommunikation zwischen verschiedenen Substraten, insbesondere zwischen AMP und G6P . Solche Bindungsstellen fungieren auch als Sensormechanismus für die Enzymaktivität. [ 13 ]
Positive Modulation
Positive allosterische Modulation (auch allosterische Aktivierung genannt ) tritt auf, wenn die Bindung eines Liganden die Affinität anderer Bindungsstellen erhöht. Ein Beispiel hierfür ist die Bindung von Sauerstoffmolekülen an Hämoglobin , wobei Sauerstoff sowohl physiologischer Ligand als auch Modulator (oder Effektor) ist. Die allosterische oder „andere“ Stelle ist hier die entsprechende Bindungsstelle einer anderen Proteinuntereinheit . Die Bindung von Sauerstoff an eine Untereinheit induziert eine Konformationsänderung in dieser Untereinheit, die mit den übrigen Bindungsstellen interagiert und deren Sauerstoffaffinität erhöht. Diese Art der allosterischen Modulation wird auch als homotrope Allosterie oder Kooperativität bezeichnet, da sie die allosterische Wechselwirkung zwischen äquivalenten Stellen in einem oligomeren Protein beschreibt. Ein weiteres Beispiel für allosterische Aktivierung findet sich in der cytosolischen IMP-GMP-spezifischen 5'-Nukleotidase II (cN-II), bei der die Affinität zum Substrat GMP durch die Bindung von GTP an der Dimerschnittstelle erhöht wird. Da die beiden Standorte nicht gleichwertig sind, handelt es sich bei dieser Art der Kooperativität um Heterotropie.
Negative Modulation
Negative allosterische Modulation (auch allosterische Hemmung genannt ) tritt auf, wenn die Bindung eines Liganden die Affinität eines Liganden an anderen Bindungsstellen verringert. Bindet beispielsweise 2,3-BPG an eine allosterische Stelle des Hämoglobins, sinkt die Sauerstoffaffinität aller Untereinheiten.
Direkte Thrombininhibitoren sind ein hervorragendes Beispiel für negative allosterische Modulation. Es wurden allosterische Thrombininhibitoren entdeckt, die potenziell als Antikoagulanzien eingesetzt werden könnten.
Ein weiteres Beispiel ist Strychnin , ein krampfauslösendes Gift, das als allosterischer Inhibitor des Glycinrezeptors wirkt . Glycin ist ein wichtiger postsynaptischer inhibitorischer Neurotransmitter im Rückenmark und Hirnstamm von Säugetieren . Strychnin wirkt allosterisch an einer separaten Bindungsstelle des Glycinrezeptors; d. h., seine Bindung verringert die Affinität des Glycinrezeptors für Glycin. Dadurch hemmt Strychnin die Wirkung eines inhibitorischen Transmitters und führt zu Krämpfen.
Ein weiteres Beispiel für negative allosterische Modulation findet sich zwischen ATP und dem Enzym Phosphofructokinase innerhalb der negativen Rückkopplungsschleife , die die Glykolyse reguliert . Phosphofructokinase ( PFK ) katalysiert den dritten Schritt der Glykolyse: die Phosphorylierung von Fructose-6-phosphat zu Fructose-1,6-bisphosphat . Hohe ATP- Konzentrationen in der Zelle können PFK allosterisch hemmen . Bei hohen ATP-Konzentrationen bindet ATP an eine allosterische Stelle der Phosphofructokinase und verändert dadurch deren dreidimensionale Struktur. Diese Veränderung führt zu einer verminderten Affinität des Enzyms zu Substrat ( Fructose-6-phosphat und ATP ) am aktiven Zentrum, wodurch es inaktiv wird. Dies bewirkt, dass die Glykolyse bei hohen ATP-Konzentrationen zum Erliegen kommt, wodurch der Blutzuckerspiegel gesenkt und ein ausgeglichener zellulärer ATP-Spiegel aufrechterhalten wird. Auf diese Weise fungiert ATP als negativer allosterischer Modulator für PFK, obwohl es gleichzeitig auch ein Substrat des Enzyms ist.
Typen
Homotrop
Ein homotroper allosterischer Modulator ist sowohl Substrat für sein Zielprotein als auch ein regulatorisches Molekül, das die Aktivität des Proteins reguliert. Typischerweise wirkt er als Aktivator des Proteins. [ 14 ] Beispielsweise sind O₂ und CO homotrope allosterische Modulatoren von Hämoglobin. Ebenso führt bei der IMP/GMP-spezifischen 5'-Nukleotidase die Bindung eines GMP-Moleküls an eine einzelne Untereinheit des tetrameren Enzyms zu einer erhöhten Affinität der nachfolgenden Untereinheiten zu GMP, was sich in sigmoidalen Substrat-Geschwindigkeits-Diagrammen zeigt. [ 14 ]
Heterotrop
Ein heterotroper allosterischer Modulator ist ein regulatorisches Molekül, das nicht das Substrat des Enzyms ist. Er kann entweder als Aktivator oder als Inhibitor des Enzyms wirken. Beispielsweise sind H⁺ , CO₂ und 2,3 -Bisphosphoglycerat heterotrope allosterische Modulatoren von Hämoglobin. [ 15 ] Auch bei der IMP/GMP-spezifischen 5'-Nukleotidase führt die Bindung eines GTP-Moleküls an der Dimerschnittstelle des tetrameren Enzyms zu einer erhöhten Affinität für das Substrat GMP am aktiven Zentrum, was auf eine heterotrope allosterische Aktivierung vom K-Typ hindeutet. [ 14 ]
Wie bereits ausführlich dargelegt, können einige allosterische Proteine sowohl durch ihre Substrate als auch durch andere Moleküle reguliert werden. Solche Proteine sind zu homotropen und heterotropen Wechselwirkungen fähig. [ 14 ]
Essentielle Aktivatoren
Manche allosterische Aktivatoren werden als „essentielle“ oder „obligate“ Aktivatoren bezeichnet, da die Aktivität des Zielenzyms in ihrer Abwesenheit sehr gering oder vernachlässigbar ist, wie beispielsweise bei der Aktivität von N-Acetylglutamat auf die Carbamoylphosphatsynthetase I. [ 16 ] [ 17 ]
Nicht-regulatorische Allosterie
Eine nicht-regulatorische allosterische Bindungsstelle ist jede nicht-regulatorische Komponente eines Enzyms (oder eines beliebigen Proteins), die selbst keine Aminosäure ist. Beispielsweise benötigen viele Enzyme die Bindung von Natrium, um ihre korrekte Funktion zu gewährleisten. Das Natrium fungiert jedoch nicht notwendigerweise als regulatorische Untereinheit; es ist stets vorhanden, und es sind keine biologischen Prozesse bekannt, die Natrium hinzufügen oder entfernen, um die Enzymaktivität zu regulieren. Nicht-regulatorische allosterische Bindungsstellen können neben Natrium auch andere Ionen (Calcium, Magnesium, Zink) sowie andere chemische Verbindungen und möglicherweise Vitamine umfassen.
Pharmakologie
Die allosterische Modulation eines Rezeptors beruht auf der Bindung allosterischer Modulatoren an einer anderen Stelle (einer „ regulatorischen Stelle “) als die des endogenen Liganden (einer „ aktiven Stelle “). Dadurch werden die Wirkungen des endogenen Liganden verstärkt oder gehemmt. Normalerweise bewirkt dies eine Konformationsänderung des Rezeptormoleküls, was zu einer veränderten Bindungsaffinität des Liganden führt. Auf diese Weise moduliert ein allosterischer Ligand die Aktivierung des Rezeptors durch seinen primären orthosterischen Liganden und kann als Dimmer in einem Stromkreis betrachtet werden, der die Intensität der Reaktion reguliert.
Der GABA <sub>A</sub> -Rezeptor besitzt beispielsweise zwei aktive Bindungsstellen für den Neurotransmitter Gamma-Aminobuttersäure (GABA), aber auch regulatorische Bindungsstellen für Benzodiazepine und Allgemeinanästhetika . Jede dieser regulatorischen Bindungsstellen kann eine positive allosterische Modulation bewirken und so die Wirkung von GABA verstärken . Diazepam wirkt als positiver allosterischer Modulator an der Benzodiazepin-Bindungsstelle, und sein Antidot Flumazenil ist ein Rezeptorantagonist .
Neuere Beispiele für Medikamente, die ihre Zielstrukturen allosterisch modulieren, sind das Kalzium-imitierende Cinacalcet und das HIV-Medikament Maraviroc .
Allosterische Bindungsstellen als Angriffspunkte für Medikamente
Allosterische Proteine sind an vielen Erkrankungen beteiligt und spielen dabei eine zentrale Rolle [18, 19 ] . Allosterische Bindungsstellen könnten ein neuartiges Angriffsziel für Medikamente darstellen . Die Verwendung allosterischer Modulatoren als bevorzugte Therapeutika bietet gegenüber klassischen orthosterischen Liganden eine Reihe von Vorteilen. Beispielsweise waren allosterische Bindungsstellen von G-Protein-gekoppelten Rezeptoren (GPCRs) nicht dem gleichen evolutionären Druck zur Bindung eines endogenen Liganden ausgesetzt wie orthosterische Bindungsstellen und weisen daher eine größere Diversität auf [ 20 ] . Daher kann durch die gezielte Beeinflussung allosterischer Bindungsstellen eine höhere GPCR-Selektivität erzielt werden [ 20 ] . Dies ist besonders vorteilhaft für GPCRs, bei denen eine selektive orthosterische Therapie aufgrund der Sequenzkonservierung der orthosterischen Bindungsstelle über verschiedene Rezeptorsubtypen hinweg schwierig war [ 21 ] . Zudem weisen diese Modulatoren ein geringeres toxisches Potenzial auf, da Modulatoren mit begrenzter Kooperativität unabhängig von der verabreichten Dosis eine maximale Wirkung erzielen. [ 20 ] Eine weitere Art der pharmakologischen Selektivität, die für allosterische Modulatoren einzigartig ist, beruht auf Kooperativität. Ein allosterischer Modulator kann an allen Subtypen eines bestimmten Rezeptors, außer dem interessierenden Subtyp, neutrale Kooperativität mit einem orthosterischen Liganden aufweisen; dies wird als „absolute Subtypselektivität“ bezeichnet. [ 21 ] Besitzt ein allosterischer Modulator keine nennenswerte Wirksamkeit, kann er gegenüber orthosterischen Liganden einen weiteren wichtigen therapeutischen Vorteil bieten: die Fähigkeit, Gewebereaktionen selektiv zu verstärken oder abzuschwächen, und zwar nur in Anwesenheit des endogenen Agonisten. [ 21 ] Oligomerspezifische Bindungsstellen für kleine Moleküle sind Angriffspunkte für medizinisch relevante Morpheeine . [ 22 ]
Synthetische allosterische Systeme
Es gibt zahlreiche synthetische Verbindungen mit mehreren nichtkovalenten Bindungsstellen, die bei Besetzung einer Stelle Konformationsänderungen zeigen. Die Kooperativität zwischen einzelnen Bindungsbeiträgen in solchen supramolekularen Systemen ist positiv, wenn die Besetzung einer Bindungsstelle die Affinität ΔG an einer zweiten Stelle erhöht, und negativ, wenn die Affinität nicht erhöht wird. Die meisten synthetischen allosterischen Komplexe beruhen auf einer Konformationsreorganisation nach Bindung eines Effektorliganden, die dann entweder zu einer verstärkten oder abgeschwächten Assoziation eines zweiten Liganden an einer anderen Bindungsstelle führt. [ 23 ] [ 24 ] [ 25 ] Die Konformationskopplung zwischen mehreren Bindungsstellen ist in künstlichen Systemen üblicherweise viel größer als in Proteinen mit ihrer in der Regel höheren Flexibilität. Der Parameter, der die Effizienz bestimmt (gemessen durch das Verhältnis der Gleichgewichtskonstanten Krel = KA(E)/KA in Gegenwart und Abwesenheit eines Effektors E), ist die Konformationsenergie, die benötigt wird, um eine geschlossene oder gespannte Konformation für die Bindung eines Liganden A einzunehmen. [ 26 ]
In vielen multivalenten supramolekularen Systemen [ 27 ] kann es zu direkten Wechselwirkungen zwischen gebundenen Liganden kommen, die zu einer hohen Kooperativität führen können. Am häufigsten findet sich eine solche direkte Wechselwirkung zwischen Ionen in Rezeptoren für Ionenpaare. [ 28 ] [ 29 ] Diese Kooperativität wird oft auch als Allosterie bezeichnet, obwohl hier Konformationsänderungen nicht zwangsläufig Bindungsereignisse auslösen.
Online-Ressourcen
Allosterische Datenbank
Allosterie ist ein direkter und effizienter Mechanismus zur Regulation der Funktion biologischer Makromoleküle. Sie entsteht durch die Bindung eines Liganden an eine allosterische Stelle, die sich topografisch von der orthosterischen Stelle unterscheidet. Aufgrund der oft hohen Rezeptorselektivität und der geringeren zielbasierten Toxizität wird der allosterischen Regulation eine zunehmende Bedeutung in der Wirkstoffforschung und im Bioengineering zugeschrieben. Die AlloSteric Database (ASD) [ 30 ] bietet eine zentrale Ressource für die Darstellung, Suche und Analyse von Struktur, Funktion und zugehörigen Annotationen allosterischer Moleküle. Aktuell enthält die ASD allosterische Proteine aus über 100 Spezies sowie Modulatoren in drei Kategorien (Aktivatoren, Inhibitoren und Regulatoren). Jedes Protein ist mit einer detaillierten Beschreibung der Allosterie, des biologischen Prozesses und der damit verbundenen Krankheiten annotiert, und jeder Modulator mit Angaben zur Bindungsaffinität, den physikochemischen Eigenschaften und dem therapeutischen Bereich. Die Integration der Informationen allosterischer Proteine in die ASD sollte die Vorhersage der Allosterie für unbekannte Proteine ermöglichen, gefolgt von einer experimentellen Validierung. Darüber hinaus können die in ASD kuratierten Modulatoren genutzt werden, um potenzielle allosterische Ziele für eine Abfrageverbindung zu untersuchen und Chemikern bei der Umsetzung von Strukturmodifikationen für die Entwicklung neuartiger allosterischer Wirkstoffe zu helfen.
Allosterische Reste und ihre Vorhersage
Nicht alle Proteinreste spielen eine gleich wichtige Rolle in der allosterischen Regulation. Die Identifizierung von Resten, die für die Allosterie essenziell sind (sogenannte „allosterische Reste“), stand im Mittelpunkt zahlreicher Studien, insbesondere im letzten Jahrzehnt. [ 31 ] [ 32 ] [ 33 ] [ 34 ] [ 35 ] [ 36 ] [ 37 ] [ 38 ] Dieses wachsende Interesse ist zum Teil auf ihre allgemeine Bedeutung in der Proteinforschung zurückzuführen, aber auch darauf, dass allosterische Reste in biomedizinischen Kontexten genutzt werden können . Pharmakologisch wichtige Proteine mit schwer zugänglichen Zielstrukturen können von Ansätzen profitieren, bei denen alternativ leichter erreichbare Reste anvisiert werden, die die primäre Zielstruktur allosterisch regulieren können. [ 39 ] Diese Reste lassen sich grob in oberflächen- und inner-allosterische Aminosäuren einteilen. Allosterische Stellen an der Oberfläche spielen im Allgemeinen regulatorische Rollen, die sich grundlegend von denen im Inneren unterscheiden; Oberflächenreste können als Rezeptoren oder Effektorstellen bei der allosterischen Signalübertragung dienen, während solche im Zellinneren der Übertragung solcher Signale dienen können. [ 40 ] [ 41 ]
Siehe auch
- ASD-Datenbank
- Anharmonizität
- kompetitive Hemmung
- Kooperative Bindung
- Enzymkinetik
- Proteindynamik
- Rezeptortheorie
Referenzen
- ^ Cooper A, Dryden DT (Oktober 1984). „Allosterie ohne Konformationsänderung. Ein plausibles Modell“. European Biophysics Journal . 11 (2): 103–109 . doi : 10.1007/BF00276625 . PMID 6544679. S2CID 12591175 .
- ^ Liu J, Nussinov R (Juni 2016). „Allosterie: Ein Überblick über ihre Geschichte, Konzepte, Methoden und Anwendungen“ . PLOS Computational Biology . 12 (6) e1004966. Bibcode : 2016PLSCB..12E4966L . doi : 10.1371/ journal.pcbi.1004966 . PMC 4890769. PMID 27253437. S2CID 3610740 .
- ^ Bu Z, Callaway DJ (2011). „Proteine bewegen sich! Proteindynamik und allosterische Fernwirkungen in der Zellsignalisierung“. Protein Structure and Diseases . Advances in Protein Chemistry and Structural Biology. Band 83. S. 163–221 . doi : 10.1016/B978-0-12-381262-9.00005-7 . ISBN 978-0-12-381262-9PMID 21570668 .
- ^ Monod J, Wyman J, Changeux JP (Mai 1965). „Zur Natur allosterischer Übergänge: Ein plausibles Modell“. Journal of Molecular Biology . 12 : 88–118 . doi : 10.1016/s0022-2836(65)80285-6 . PMID 14343300 .
- ^ Koshland DE, Némethy G, Filmer D (Januar 1966). „Vergleich experimenteller Bindungsdaten und theoretischer Modelle in Proteinen mit Untereinheiten“. Biochemistry . 5 (1): 365–85 . doi : 10.1021/bi00865a047 . PMID 5938952 .
- ^ a b Cuendet MA, Weinstein H, LeVine MV (Dezember 2016). „Die Allosterielandschaft: Quantifizierung thermodynamischer Kopplungen in biomolekularen Systemen“ . Journal of Chemical Theory and Computation . 12 (12): 5758–5767 . doi : 10.1021/acs.jctc.6b00841 . PMC 5156960. PMID 27766843 .
- ^ Eckmann JP, Rougemont J, Tlusty T (30. Juli 2019). „Kolloquium: Proteine: Die Physik amorpher, sich entwickelnder Materie“ . Reviews of Modern Physics . 91 (3) 031001. arXiv : 1907.13371 . Bibcode : 2019RvMP...91c1001E . doi : 10.1103/RevModPhys.91.031001 . ISSN 0034-6861 . S2CID 199001124 .
- ^ Jaffe EK (September 2005). „Morpheeine – ein neues Strukturparadigma für die allosterische Regulation“. Trends in Biochemical Sciences . 30 (9): 490–7 . doi : 10.1016/j.tibs.2005.07.003 . PMID 16023348 .
- ^ Motlagh HN, Wrabl JO, Li J, Hilser VJ (April 2014). „The ensemble nature of allostry“ . Nature . 508 (7496): 331–9 . Bibcode : 2014Natur.508..331M . doi : 10.1038 / nature13001 . PMC 4224315. PMID 24740064 .
- ^ Hilser VJ, Wrabl JO, Motlagh HN (2012). „Strukturelle und energetische Grundlagen der Allosterie“ . Annual Review of Biophysics . 41 : 585–609 . doi : 10.1146/annurev - biophys-050511-102319 . PMC 3935618. PMID 22577828 .
- ^ LeVine MV, Weinstein H (Mai 2015). „Zielsetzung für Allosterie: Anwendung des Ising-Modells zum Verständnis von Informationsverarbeitung und -übertragung in allosterischen biomolekularen Systemen“ . Entropy . 17 ( 5): 2895–2918 . Bibcode : 2015Entrp..17.2895L . doi : 10.3390/e17052895 . PMC 4652859. PMID 26594108 .
- ^ Abdel-Magid AF (Februar 2015). „Allosterische Modulatoren: ein neues Konzept in der Arzneimittelforschung“ . ACS Medicinal Chemistry Letters . 6 (2): 104–107 . doi : 10.1021/ml5005365 . PMC 4329591. PMID 25699154 .
- ^ Zhong W, Cui L, Goh BC, Cai Q, Ho P, Chionh YH, et al. (Dezember 2017). „Allosterische Pyruvatkinase-basierte „Logikgatter“ erfasst synergistisch Energie- und Zuckerspiegel in Mycobacterium tuberculosis“ . Nature Communications . 8 (1) 1986. Bibcode : 2017NatCo...8.1986Z . doi : 10.1038 / s41467-017-02086-y . PMC 5719368. PMID 29215013 .
- ^ a b c d Srinivasan B, Forouhar F, Shukla A, Sampangi C, Kulkarni S, Abashidze M, et al. (März 2014). „Allosterische Regulation und Substrataktivierung in der zytosolischen Nukleotidase II aus Legionella pneumophila“ . Das FEBS Journal . 281 (6): 1613–1628 . doi : 10.1111/febs.12727 . PMC 3982195 . PMID 24456211 .
- ^ Edelstein SJ (1975). „Kooperative Wechselwirkungen des Hämoglobins“. Annual Review of Biochemistry . 44 : 209–32 . doi : 10.1146/annurev.bi.44.070175.001233 . PMID 237460 .
- ^ Shi D, Allewell NM, Tuchman M (Juni 2015). „Die N-Acetylglutamat-Synthase-Familie: Strukturen, Funktion und Mechanismen“ . International Journal of Molecular Sciences . 16 (6): 13004–22 . doi : 10.3390/ijms160613004 . PMC 4490483. PMID 26068232 .
- ^ de Cima S, Polo LM, Díez-Fernández C, Martínez AI, Cervera J, Fita I, et al. (November 2015). „Struktur der menschlichen Carbamoylphosphat-Synthetase: Entschlüsselung des Ein-/Ausschalters der menschlichen Ureagenese“ . Wissenschaftliche Berichte . 5 (1) 16950. Bibcode : 2015NatSR...516950D . doi : 10.1038/srep16950 . PMC 4655335 . PMID 26592762 .
- ^ Nussinov R, Tsai C (2013). „Allosterie bei Krankheiten und in der Arzneimittelforschung“ . Cell . 153 (2): 293–305 . doi : 10.1016/j.cell.2013.03.034 . PMID 23582321 .
- ^ Abrusan G, Ascher DB, Inouye M (2022). „Bekannte allosterische Proteine spielen eine zentrale Rolle bei genetischen Erkrankungen“ . PLOS Computational Biology . 18 (2) e1009806. arXiv : 2107.04318 . Bibcode : 2022PLSCB..18E9806A . doi : 10.1371/journal.pcbi.1009806 . PMID 10138267 .
- ^ a b c Christopoulos A, May LT, Avlani VA, Sexton PM (November 2004). „Allosterie von G-Protein-gekoppelten Rezeptoren: Das Versprechen und das/die Problem(e)“. Biochemical Society Transactions . 32 (Pt 5): 873–7 . doi : 10.1042/BST0320873 . PMID 15494038 .
- ^ a b c May LT, Leach K, Sexton PM, Christopoulos A (2007). „Allosterische Modulation von G-Protein-gekoppelten Rezeptoren“. Annual Review of Pharmacology and Toxicology . 47 : 1–51 . doi : 10.1146/annurev.pharmtox.47.120505.105159 . PMID 17009927 .
- ^ Jaffe EK (2010). „Morpheeine – Ein neuer Weg zur allosterischen Wirkstoffforschung!“ . The Open Conference Proceedings Journal . 1 : 1–6 . doi : 10.2174/2210289201001010001 . PMC 3107518 . PMID 21643557 .
- ^ Takeuchi M, Ikeda M, Sugasaki A, Shinkai S (November 2001). „Molekulares Design künstlicher Molekül- und Ionenerkennungssysteme mit allosterischen Gastreaktionen“. Accounts of Chemical Research . 34 (11): 865–73 . doi : 10.1021/ar0000410 . PMID 11714258 .
- ^ Kremer C, Lützen A (Mai 2013). „Künstliche allosterische Rezeptoren“. Chemistry: A European Journal . 19 (20): 6162–96 . Bibcode : 2013ChEuJ..19.6162K . doi : 10.1002/chem.201203814 . PMID 23463705 .
- ^ Kovbasyuk L, Krämer R (Juni 2004). „Allosterische supramolekulare Rezeptoren und Katalysatoren“. Chemical Reviews . 104 (6): 3161–87 . doi : 10.1021/cr030673a . PMID 15186190 .
- ^ Schneider HJ (September 2016). „Effizienzparameter in künstlichen allosterischen Systemen“. Organic & Biomolecular Chemistry . 14 (34): 7994–8001 . doi : 10.1039/c6ob01303a . PMID 27431438 .
- ^ Badjić JD, Nelson A, Cantrill SJ, Turnbull WB, Stoddart JF (September 2005). „Multivalenz und Kooperativität in der supramolekularen Chemie“. Accounts of Chemical Research . 38 (9): 723–32 . doi : 10.1021/ar040223k . PMID 16171315 .
- ^ Kim SK, Sessler JL (Oktober 2010). „Ionenpaar-Rezeptoren“ . Chemical Society Reviews . 39 (10): 3784–809 . doi : 10.1039/c002694h . PMC 3016456. PMID 20737073 .
- ^ McConnell AJ, Beer PD (Mai 2012). „Heteroditopische Rezeptoren zur Ionenpaarerkennung“. Angewandte Chemie . 51 (21): 5052–61 . Bibcode : 2012ACIE...51.5052M . doi : 10.1002/anie.201107244 . PMID 22419667 .
- ^ Huang Z, Zhu L, Cao Y, Wu G, Liu X, Chen Y, et al. (Januar 2011). „ASD: Eine umfassende Datenbank allosterischer Proteine und Modulatoren“ . Nucleic Acids Research . 39 (Datenbankausgabe): D663–9. doi : 10.1093/nar/ gkq1022 . PMC 3013650. PMID 21051350 .
- ^ Panjkovich A, Daura X (Oktober 2012). „Nutzung der Proteinflexibilität zur Vorhersage der Lage allosterischer Stellen“ . BMC Bioinformatics . 13, 273. doi : 10.1186 /1471-2105-13-273 . PMC 3562710. PMID 23095452 .
- ^ Süel GM, Lockless SW, Wall MA, Ranganathan R (Januar 2003). „Evolutionär konservierte Netzwerke von Aminosäureresten vermitteln allosterische Kommunikation in Proteinen“. Nature Structural Biology . 10 (1): 59–69 . doi : 10.1038/nsb881 . PMID 12483203. S2CID 67749580 .
- ^ Mitternacht S, Berezovsky IN (September 2011). „Bindungshebelwirkung als molekulare Grundlage der allosterischen Regulation“ . PLOS Computational Biology . 7 (9) e1002148. Bibcode : 2011PLSCB...7E2148M . doi : 10.1371/ journal.pcbi.1002148 . PMC 3174156. PMID 21935347 .
- Gasper PM, Fuglestad B, Komives EA, Markwick PR, McCammon JA (Dezember 2012). „Allosterische Netzwerke in Thrombin unterscheiden prokoagulatorische vs. antikoagulatorische Aktivitäten“ . Proceedings of the National Academy of Sciences of the United States of America . 109 (52): 21216–22 . Bibcode : 2012PNAS..10921216G . doi : 10.1073 /pnas.1218414109 . PMC 3535651. PMID 23197839 .
- ^ Ghosh A, Vishveshwara S (November 2008). „Variationen in Clique- und Community-Mustern in Proteinstrukturen während allosterischer Kommunikation: Untersuchung dynamisch äquilibrierter Strukturen von Methionyl-tRNA-Synthetase-Komplexen“. Biochemistry . 47 (44): 11398–407 . doi : 10.1021/bi8007559 . PMID 18842003 .
- ^ Sethi A, Eargle J, Black AA, Luthey-Schulten Z (April 2009). „Dynamische Netzwerke in tRNA:Protein-Komplexen“ . Proceedings of the National Academy of Sciences of the United States of America . 106 (16): 6620–5 . Bibcode : 2009PNAS..106.6620S . doi : 10.1073/pnas.0810961106 . PMC 2672494. PMID 19351898 .
- ^ Vanwart AT, Eargle J, Luthey-Schulten Z, Amaro RE (August 2012). „Exploring residue component contributions to dynamical network models of allostry“ . Journal of Chemical Theory and Computation . 8 (8): 2949–2961 . doi : 10.1021/ct300377a . PMC 3489502. PMID 23139645 .
- ^ Rivalta I, Sultan MM, Lee NS, Manley GA, Loria JP, Batista VS (Mai 2012). „Allosterische Wege in der Imidazolglycerinphosphatsynthase“ . Proceedings of the National Academy of Sciences of the United States of America . 109 (22): E1428–36. doi : 10.1073/pnas.1120536109 . PMC 3365145. PMID 22586084 .
- ^ Negre CF, Morzan UN, Hendrickson HP, Pal R, Lisi GP, Loria JP, et al. (Dezember 2018). „Eigenvektor-Zentralität zur Charakterisierung allosterischer Proteinwege“ . Proceedings of the National Academy of Sciences of the United States of America . 115 ( 52): E12201– E12208. arXiv : 1706.02327 . Bibcode : 2018PNAS..11512201N . doi : 10.1073/pnas.1810452115 . PMC 6310864. PMID 30530700 .
- ^ Clarke D, Sethi A, Li S, Kumar S, Chang RW, Chen J, et al. (Mai 2016). „Identifizierung allosterischer Hotspots mithilfe von Dynamikanalysen: Anwendung im inter- und intraspezifischen Naturschutz“ . Structure . 24 (5): 826–837 . doi : 10.1016/j.str.2016.03.008 . PMC 4883016. PMID 27066750 .
- ^ Dutta S, Eckmann JP, Libchaber A, Tlusty T (Mai 2018). „Grüne Funktion korrelierter Gene in einem minimalen mechanischen Modell der Proteinevolution“ . Proceedings of the National Academy of Sciences of the United States of America . 115 (20): E4559– E4568 . arXiv : 1801.03681 . Bibcode : 2018PNAS..115E4559D . doi : 10.1073/pnas.1716215115 . PMC 5960285. PMID 29712824 .
Externe Links
- Sofortiger Einblick in ein Klassifizierungssystem für Proteinallosteriemechanismen der Royal Society of Chemistry