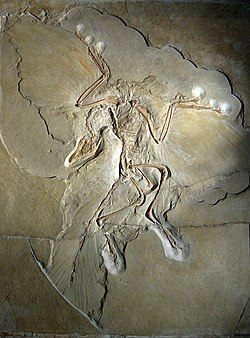

Die Evolution der Vögel begann im Jura . Die frühesten Vögel stammen von einer Gruppe theropoder Dinosaurier namens Paraves ab . [ 1 ] Vögel bilden die biologische Klasse Aves. Über ein Jahrhundert lang galt der kleine Theropode Archaeopteryx lithographica aus dem späten Jura als der früheste Vogel. Moderne Stammbäume ordnen Vögel der Dinosauriergruppe Theropoda zu . Nach heutigem Konsens bilden Aves und ihre Schwestergruppe, die Ordnung Crocodilia , die einzigen lebenden Vertreter der Archosauria , einer noch nicht klassifizierten Reptiliengruppe . Vier verschiedene Vogellinien überlebten das Massenaussterben an der Kreide-Paläogen-Grenze vor 66 Millionen Jahren und brachten Strauße und ihre Verwandten ( Palaeognathae ), Wasservögel ( Anseriformes ), bodenlebende Hühnervögel ( Galliformes ) und die „modernen Vögel“ ( Neoaves ) hervor.
Phylogenetisch werden die Aves üblicherweise als alle Nachkommen des jüngsten gemeinsamen Vorfahren einer bestimmten modernen Vogelart (wie beispielsweise des Haussperlings , Passer domesticus ) und entweder Archaeopteryx [ 2 ] oder einer prähistorischen Art, die näher mit den Neornithes verwandt ist (um die Probleme zu vermeiden, die durch die unklaren Verwandtschaftsverhältnisse von Archaeopteryx zu anderen Theropoden entstehen), definiert. [ 3 ] Wird die letztgenannte Klassifizierung verwendet, wird die größere Gruppe als Avialae bezeichnet. Derzeit wird die Verwandtschaft zwischen nicht-avianen Dinosauriern, Archaeopteryx und modernen Vögeln noch diskutiert. [ 4 ] [ 5 ]
Ursprünge
Es gibt deutliche Hinweise darauf, dass Vögel aus den Theropoden- Dinosauriern hervorgegangen sind, insbesondere darauf, dass sie zu den Maniraptora gehören , einer Gruppe von Theropoden, zu der unter anderem Dromaeosaurier und Oviraptoriden zählen. [ 6 ] Mit der Entdeckung weiterer nicht-avialer Theropoden, die eng mit Vögeln verwandt sind, verschwimmt die ehemals klare Unterscheidung zwischen Nicht-Vögeln und Vögeln. Dies wurde bereits im 19. Jahrhundert von Thomas Huxley festgestellt :
Wir mussten die Definition der Klasse der Vögel erweitern, um auch Vögel mit Zähnen sowie Vögel mit pfotenartigen Vordergliedmaßen und langen Schwänzen einzuschließen. Es gibt keine Hinweise darauf, dass Compsognathus Federn besaß; falls doch, wäre es in der Tat schwer zu sagen, ob er als reptilienartiger Vogel oder als aviäres Reptil zu bezeichnen wäre. [ 7 ]

Funde in Nordostchina ( Provinz Liaoning ) belegen, dass viele kleine Theropoden-Dinosaurier tatsächlich Federn besaßen , darunter der Compsognathide Sinosauropteryx und der Microraptor- Dromaeosauride Sinornithosaurus . Dies trug zur Unklarheit bei der Abgrenzung zwischen Vögeln und Reptilien bei. [ 8 ] Cryptovolans , ein 2002 entdeckter Dromaeosauride (möglicherweise ein jüngeres Synonym von Microraptor ), war zum aktiven Flug fähig und besaß einen Brustbeinkamm sowie Rippen mit Hakenfortsätzen . Cryptovolans erscheint als besserer „Vogel“ denn Archaeopteryx , dem einige dieser Merkmale moderner Vögel fehlen. Da einige basale Vertreter der Dromaeosauridae , darunter Microraptor , zum aktiven Flug fähig waren, vermuten einige Paläontologen, dass die Dromaeosauriden von einem flugfähigen Vorfahren abstammen und die größeren Vertreter erst später flugunfähig wurden, analog zum Verlust der Flugfähigkeit bei modernen Urzeitvögeln wie dem Strauß . [ 9 ] Die Entdeckung weiterer basaler Dromaeosauriden, die möglicherweise zum aktiven Flug fähig waren, wie beispielsweise Xiaotingia , liefert weitere Belege für die Theorie, dass der Flug in der Vogellinie zuerst von frühen Dromaeosauriden entwickelt wurde und nicht erst später von den Vögeln , wie zuvor angenommen. [ 10 ]
Obwohl Ornithischier (Vogelbeckendinosaurier) die gleiche Hüftstruktur wie Vögel aufweisen , stammen Vögel, wenn die Theorie des Dinosaurierursprungs zutrifft, tatsächlich von Saurischiern (Echsenbeckendinosauriern) ab. Sie entwickelten ihre Hüftstruktur somit unabhängig voneinander . Tatsächlich entstand eine vogelähnliche Hüftstruktur ein drittes Mal bei einer besonderen Gruppe von Theropoden, den Therizinosauridae .
Eine alternative Theorie zum Ursprung der Vögel bei den Dinosauriern, die von einigen Wissenschaftlern, insbesondere Larry Martin und Alan Feduccia , vertreten wird, besagt, dass Vögel (einschließlich der Maniraptoren, der „Dinosaurier“) sich aus frühen Archosauriern wie Longisquama entwickelten . [ 11 ] Diese Theorie wird von den meisten anderen Paläontologen und Experten für Federentwicklung und -evolution angezweifelt. [ 12 ]
Mesozoische Vögel
Der basale Vogel Archaeopteryx aus dem Jura ist als eines der ersten „ fehlenden Bindeglieder “ bekannt, die Ende des 19. Jahrhunderts zur Unterstützung der Evolutionstheorie gefunden wurden . Obwohl er nicht als direkter Vorfahre der modernen Vögel gilt, vermittelt er ein recht gutes Bild davon, wie sich der Flug entwickelte und wie der allererste Vogel ausgesehen haben könnte. Möglicherweise wurde er von Protoavis texensis übertroffen , doch der fragmentarische Zustand dieses Fossils lässt erhebliche Zweifel daran aufkommen, ob es sich dabei tatsächlich um einen Vogelvorfahren handelte. Das Skelett aller frühen Vogelkandidaten entspricht im Wesentlichen dem eines kleinen Theropoden-Dinosauriers mit langen, krallenbewehrten Händen, obwohl die hervorragende Erhaltung des Solnhofener Plattenkalks zeigt , dass Archaeopteryx mit Federn bedeckt war und Flügel besaß. [ 7 ] Auch wenn Archaeopteryx und seine Verwandten möglicherweise keine besonders guten Flieger waren, so waren sie doch zumindest fähige Gleiter und ebneten damit den Weg für die Evolution des fliegenden Lebens.

Der evolutionäre Trend bei Vögeln bestand in der Reduktion anatomischer Elemente zur Gewichtseinsparung. Als erstes verschwand der knöcherne Schwanz, der zu einem Pygostyl reduziert wurde , dessen Funktion von Federn übernommen wurde. Confuciusornis ist ein Beispiel für diese Entwicklung. Er behielt seine Krallenfinger, möglicherweise zum Klettern, und besaß einen Pygostylschwanz, der jedoch länger war als bei modernen Vögeln. Eine große Vogelgruppe, die Enantiornithes , entwickelte sich in ökologischen Nischen, die denen moderner Vögel ähnelten, und blühte während des gesamten Mesozoikums auf. Obwohl ihre Flügel denen vieler moderner Vogelgruppen ähnelten, behielten sie die Krallenflügel und in den meisten Fällen eine Schnauze mit Zähnen anstelle eines Schnabels. Dem Verlust des langen Schwanzes folgte eine rasche Evolution ihrer Beine, die sich zu äußerst vielseitigen und anpassungsfähigen Werkzeugen entwickelten und neue ökologische Nischen erschlossen. [ 13 ]
In der Kreidezeit entstanden modernere Vögel mit einem steiferen Brustkorb, der durch einen Kiel und Schultern einen kraftvollen Aufwärtsschlag ermöglichte – unerlässlich für den anhaltenden, aktiven Flug. Eine weitere Verbesserung war das Auftreten eines Daumens (Alula) , der die Kontrolle bei der Landung und im Flug bei niedrigen Geschwindigkeiten verbesserte. Sie besaßen außerdem ein weiterentwickeltes Pygostyl mit einem pflugscharenförmigen Ende. Ein frühes Beispiel ist Yanornis . Viele waren Küstenvögel und ähnelten auffallend modernen Watvögeln wie Ichthyornis oder Enten wie Gansus . Einige entwickelten sich zu schwimmenden Jägern, wie die Hesperornithiformes – eine Gruppe flugunfähiger Taucher, die Lappentauchern und Seetauchern ähnelten . Obwohl sie in den meisten Aspekten modern waren, behielten die meisten dieser Vögel die typischen reptilienartigen Zähne und scharfen Krallen an den Vorderpfoten.
Die modernen zahnlosen Vögel entwickelten sich in der Kreidezeit aus ihren bezahnten Vorfahren. [ 14 ] Die früheren Urvögel, insbesondere die Enantiornithes, gediehen und diversifizierten sich parallel zu den Flugsauriern während dieser geologischen Periode, bis sie durch das K-T-Massenaussterben ausstarben . Fast alle Gruppen der zahnlosen Neornithes starben ebenfalls frühzeitig aus. Die überlebenden Vogellinien waren die vergleichsweise primitiven Palaeognathae ( Strauß und seine Verwandten), die Wasservögel ( Enten ) , die Landvögel und die hochfliegenden Neoaves .
Radiation moderner Vögel
Die modernen Vögel entstanden vermutlich am Ende der Unterkreide oder am Beginn der Oberkreide . [ 15 ] [ 16 ] Man unterscheidet zwischen den Urkiefervögeln (Paleognathia) und den Neukiefervögeln (Neognatha) . Zu den Urkiefervögeln gehören die Steißhühner (hühnerähnliche Vögel, die nur in Mittel- und Südamerika vorkommen) und die Laufvögel (Ratites ), die heute fast ausschließlich auf der Südhalbkugel anzutreffen sind. Die Laufvögel sind große, flugunfähige Vögel und umfassen Strauße , Nandus , Kasuare , Kiwis und Emus . Die Laufvögel bilden eine paraphyletische (künstliche) Gruppe, da die Steißhühner zu ihrem evolutionären Zweig gehören und wahrscheinlich die Fähigkeit zum selbstständigen Fliegen verloren haben. Dies ist ein Beispiel für konvergente Evolution . [ 17 ] [ 18 ] Allerdings ist die Beweislage hinsichtlich ihrer Evolution noch immer uneindeutig, teils weil es keine unstrittigen Fossilien aus dem Mesozoikum gibt, teils weil ihre phylogenetischen Beziehungen noch immer ungewiss sind.
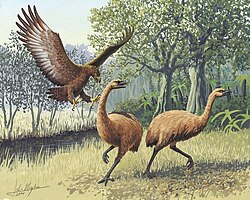
Die basale Divergenz innerhalb der Neognathes liegt zwischen Galloanserae und Neoaves .
Der Zeitpunkt der Aufspaltung dieser Hauptgruppen ist umstritten. Es herrscht Einigkeit darüber, dass die modernen Vögel ihren Ursprung in der Kreidezeit haben und dass die Trennung zwischen Galloanserae und Neoaves vor dem Massenaussterben an der Kreide-Paläogen-Grenze stattfand . Uneinigkeit besteht jedoch darüber, ob die Radiation der übrigen Neognathen vor oder nach diesem Ereignis erfolgte. [ 19 ] Diese Uneinigkeit beruht teilweise auf widersprüchlichen Befunden: Molekulare Datierungen deuten auf eine Radiation in der Kreidezeit hin, während Fossilienfunde eine Radiation im Paläogen nahelegen . Jüngste Versuche, die molekularen und fossilen Befunde in Einklang zu bringen, datieren den letzten gemeinsamen Vorfahren der modernen Vögel auf 95 Millionen Jahre und die Trennung zwischen Galloanserae und Neoaves auf 85 Millionen Jahre. [ 15 ] Bemerkenswerterweise zeigen diese Studien, dass die rasche Vermehrung von Linien in Neoaves mit dem Aussterbeereignis an der Kreide-Paläogen-Grenze zusammenzufallen scheint , was darauf hindeutet, dass ökologische Möglichkeiten nach dem Massenaussterben eine Rolle bei der Anregung der Diversifizierung spielten.
Eine andere aktuelle Genomstudie legt hingegen nahe, dass sich die Galloanserae und Neoaves um die Grenze zwischen früher und später Kreidezeit (vor 100,5 Millionen Jahren) trennten, während sich die Paläognathen und Neognathen sogar noch früher (vor etwa 130 Millionen Jahren) abspalteten. Die meisten terrestrischen Neoavian-Ordnungen entwickelten sich demnach im Laufe der späten Kreidezeit allmählich voneinander, etwa zeitgleich mit der Radiation der Blütenpflanzen . Dies deutet darauf hin, dass die Mehrheit aller terrestrischen Vogelordnungen mit den nicht-aviären Dinosauriern koexistierte und das K-Pg-Massenaussterben überlebte. Im Gegensatz dazu fanden die meisten bedeutenden Radiationen der Seevögel und Watvögel (sowie der Paläognathen, trotz ihres hohen Alters) erst nach dem K-Pg-Massenaussterben und vorwiegend nach dem Paläozän/Eozän-Temperaturmaximum statt . Dies steht im Widerspruch zu früheren Studien, die eine sehr rasche Radiation der Vogelordnungen erst nach dem K-Pg-Massenaussterben feststellten. [ 20 ] [ 21 ] Die Ergebnisse dieser Studie wurden von anderen Forschern aufgrund fehlender Fossilienfunde, die ihre Schlussfolgerungen stützen würden, angezweifelt. [ 22 ]
Die Vögel, die das Massenaussterben am Ende der Kreidezeit überlebten, waren wahrscheinlich bodenlebend (und nicht baumbewohnend) und konnten so trotz der weltweiten Zerstörung der Wälder fortbestehen. [ 23 ] [ 24 ]
Eine Analyse der zeitlichen Veränderung der Diversifizierungsraten zeigte zudem einen möglichen Einfluss des Klimas auf die evolutionäre Diversifizierung bei Vögeln, wobei die Entstehung neuer Abstammungslinien in Perioden globaler Abkühlung beschleunigt wird. [ 15 ] Dies kann darauf zurückzuführen sein, dass die Abkühlung des Klimas tropische Biome fragmentiert und eine weitverbreitete allopatrische Artbildung hervorruft , sowie auf die Diversifizierung einiger Abstammungslinien in den sich ausdehnenden ariden und kühlen Biomen . [ 15 ]
Die Evolution der Vogelschädel verlangsamte sich nach dem Massenaussterben an der Kreide-Paläogen-Grenze im Vergleich zur Evolution ihrer Dinosaurier- Vorfahren, anstatt sich, wie oft angenommen, zu beschleunigen und so die Vielfalt der Schädelformen moderner Vögel zu erklären. [ 25 ] [ 26 ]
Klassifizierung moderner Arten
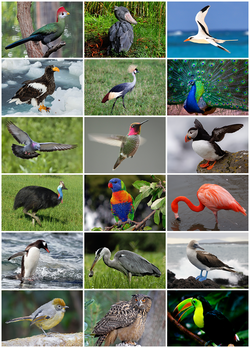
Die phylogenetische Klassifizierung der Vögel ist ein kontroverses Thema. Sibley & Ahlquists „ Phylogeny and Classification of Birds “ (1990) gilt als Standardwerk zur Vogelklassifizierung (obwohl es häufig diskutiert und fortlaufend überarbeitet wird). Zahlreiche Belege deuten darauf hin, dass die meisten modernen Vogelordnungen gut abgegrenzte Kladen bilden . Wissenschaftler sind sich jedoch nicht über die genauen Verwandtschaftsverhältnisse zwischen den Hauptkladen einig. Erkenntnisse aus der Anatomie moderner Vögel, Fossilien und DNA wurden zur Klärung dieser Frage herangezogen, doch ein eindeutiger Konsens konnte bisher nicht erzielt werden.
Strukturelle Merkmale und Fossilienfunde lieferten Systematikern in der Vergangenheit ausreichend Daten, um Hypothesen zu den phylogenetischen Verwandtschaftsverhältnissen der Vögel aufzustellen. Ungenauigkeiten dieser Methoden sind der Hauptgrund für die mangelnde Kenntnis der Ordnungen und Familien der Vögel. Fortschritte in der computergestützten DNA-Sequenzierung und Phylogenetik haben eine präzisere Methode zur Klassifizierung von Vogelarten ermöglicht – obwohl die DNA-Analyse ihre Grenzen hat und noch immer Fragen offen sind. [ 27 ]
Aktuelle evolutionäre Trends bei Vögeln
Evolution verläuft im Allgemeinen viel zu langsam, als dass sie für den Menschen wahrnehmbar wäre. Allerdings sterben Vogelarten derzeit in einem weitaus höheren Tempo aus, als es durch Artbildung oder andere Formen der Entstehung neuer Arten möglich wäre. Das Verschwinden einer Population, Unterart oder Art bedeutet den endgültigen Verlust einer Vielzahl von Genen.
Ein weiteres Problem mit evolutionären Implikationen ist die vermutete Zunahme von Hybridisierung . Diese könnte durch menschliche Eingriffe in Lebensräume entstehen, die es verwandten, allopatrischen Arten ermöglichen, sich in ihren Verbreitungsgebieten zu überschneiden. Die Fragmentierung von Wäldern kann ausgedehnte offene Flächen schaffen und ehemals isolierte Gebiete miteinander verbinden. Populationen, die lange genug isoliert waren, um sich deutlich auseinanderzuentwickeln, aber nicht lange genug, um keine fruchtbaren Nachkommen mehr zeugen zu können, könnten sich nun so stark miteinander vermischen, dass die Integrität der ursprünglichen Arten gefährdet ist. Beispielsweise könnten die vielen in Nordwest-Südamerika vorkommenden Hybridkolibris eine Bedrohung für den Erhalt der jeweiligen Arten darstellen. [ 28 ]
Mehrere Vogelarten wurden in Gefangenschaft gezüchtet, um Variationen wildlebender Arten zu erzeugen. Bei einigen Vögeln beschränkt sich dies auf Farbvariationen, während andere auf größere Eier- oder Fleischproduktion, Flugunfähigkeit oder andere Merkmale gezüchtet werden.
In December 2019 the results of a joint study by Chicago's Field Museum and the University of Michigan into changes in the morphology of birds were published in Ecology Letters. The study uses bodies of birds which died as a result of colliding with buildings in Chicago, Illinois, since 1978. The sample is made up of over 70,000 specimens from 52 species and spans the period from 1978 to 2016. The study shows that the length of birds' lower leg bones (an indicator of body sizes) shortened by an average of 2.4% and their wings lengthened by 1.3%. The findings of the study suggest the morphological changes are the result of climate change, demonstrating an example of evolutionary change following Bergmann's rule.[29][30][31]
See also
References
- ^Wilford, John Noble (28 March 2016). "'Dinosaurs Among Us' Retraces an Evolutionary Path". The New York Times. Retrieved 28 March 2016.
- ^Padian, K.; Chiappe, L.M. (1997). "Bird origins". In Currie, P.J.; Padian, K. (eds.). Encyclopedia of Dinosaurs. San Diego, CA: Academic Press. pp. 41–96. ISBN 978-0-12-226810-6.
- ^Gauthier, J. (1986). "Saurischian monophyly and the origin of birds". In Padian, K. (ed.). The Origin of Birds and the Evolution of Flight. Memoirs of the California Academy of Sciences. Vol. 8. pp. 1–55.
- ^Sereno, P.C. (2005). "The logical basis of phylogenetic taxonomy". Systematic Biology. 54: 595–619.
- ^Gauthier, Jacques; de Queiroz, Kevin (2001). Gauthier, Jacques; Gall, Lawrence F. (eds.). Feathered dinosaurs, flying dinosaurs, crown dinosaurs and the names "aves"(PDF). New Perspectives on the Origin and Early Evolution of Birds: International Symposium in Honor of John H.Ostrom. New Haven, CT: Peabody Museum of Natural History, Yale University. pp. 7–41. ISBN 0-912532-57-2 – via researchgate.net.
- Hou , L.; Martin, M.; Zhou, Z.; Feduccia, A. (1996). „Frühe adaptive Radiation der Vögel: Belege aus Fossilien aus Nordostchina“. Science . 274 (5290): 1164–1167 . Bibcode : 1996Sci...274.1164H . doi : 10.1126/science.274.5290.1164 . PMID 8895459. S2CID 30639866 .
- ^ a b Huxley, TH (1876): Lectures on Evolution. New York Tribune . Extra. Nr. 36. In: Collected Essays IV: S. 46–138 ( Originaltext mit Abbildungen)
- ^ Norell, M & Ellison M (2005) Unearthing the Dragon, The Great Feathered Dinosaur Discovery Pi Press, New York, ISBN 0-13-186266-9
- ^ Paul, Gregory S. (2002). Dinosaurier der Lüfte: Die Evolution und der Verlust des Fluges bei Dinosauriern und Vögeln. Baltimore: Johns Hopkins University Press. 472 S.
- ^ Senter, P.; Kirkland, JI; Deblieux, DD; Madsen, S.; Toth, N. (2012). Dodson, Peter (Hrsg.). „Neue Dromaeosauriden (Dinosauria: Theropoda) aus der Unterkreide von Utah und die Evolution des Dromaeosauridenschwanzes“ . PLOS ONE . 7 (5) e36790. Bibcode : 2012PLoSO...736790S . doi : 10.1371/journal.pone.0036790 . PMC 3352940. PMID 22615813 .
- ^ Feduccia, A.; Lingham-Soliar, T.; Hinchliffe, J. R. (2005). „Gab es gefiederte Dinosaurier? Eine Überprüfung der Hypothese anhand neontologischer und paläontologischer Befunde“. Journal of Morphology . 266 (2): 125–166 . doi : 10.1002/jmor.10382 . PMID 16217748. S2CID 15079072 .
- ^ Prum, R (2003). „Sind die aktuellen Kritiken am theropoden Ursprung der Vögel wissenschaftlich? Erwiderung auf Feduccia 2002“. Auk . 120 (2): 550– 561. doi : 10.1642/0004-8038(2003)120[0550:ACCOTT]2.0.CO;2 .
- ^ Kürzere Schwänze verschafften frühen Vögeln einen Vorteil
- ^ Hope, Sylvia (2002). „Die mesozoische Radiation der Neornithes“. In: Chiappe, Luis M.; Witmer, Lawrence M. (Hrsg.). Mesozoische Vögel: Über den Köpfen der Dinosaurier . University of California Press. S. 339–388 . ISBN 978-0-520-20094-4Die
- ^ a b c d Claramunt, S.; Cracraft, J. (2015). „Ein neuer Stammbaum enthüllt den Einfluss der Erdgeschichte auf die Evolution moderner Vögel“ . Science Advances . 1. doi : 10.1126/sciadv.1501005 . PMC 4730849 .
- ^ Brocklehurst, N., & Field, DJ (2024). Tip dating and Bayes factors provide insight into the divergences of crown bird clades across the end-Cretaceous mass extinction . Proceedings of the Royal Society B , 291(2016), 20232618.
- ^ Harshman, John; Braun, Edward L.; Braun, Michael J.; Huddleston, Christopher J.; Bowie, Rauri CK; Chojnowski, Jena L.; Hackett, Shannon J.; Han, Kin-Lan; Kimball, Rebecca T. (09.09.2008). „Phylogenomische Evidenz für mehrfachen Flugverlust bei Laufvögeln“ . Proceedings of the National Academy of Sciences . 105 ( 36 ) : 13462–13467 . Bibcode : 2008PNAS..10513462H . doi : 10.1073/pnas.0803242105 . ISSN 0027-8424 . PMC 2533212. PMID 18765814 .
- ^ Phillips, MJ; et al. (2010). „Tinamous und Moa vergesellschaften sich: Mitochondriale Genomsequenzanalyse enthüllt unabhängigen Verlust der Flugfähigkeit bei Laufvögeln“ . Systematic Biology . 59 (1): 90–107 . doi : 10.1093/sysbio/syp079 . PMID 20525622 .
- ^ Ericson, PGP; Anderson, CL; Britton, T; Elzanowski, A; Johansson, US; Kallersjo, M; Ohlson, JI; Parsons, TJ; Zuccon, D; et al. (2006). „Diversifizierung der Neoaves: Integration von molekularen Sequenzdaten und Fossilien“ . Biology Letters . 2 (4): 543–547 . doi : 10.1098/rsbl.2006.0523 . PMC 1834003. PMID 17148284 .
- Wu , Shaoyuan; Rheindt, Frank E.; Zhang, Jin; Wang, Jiajia; Zhang, Lei; Quan, Cheng; Li, Zhiheng; Wang, Min; Wu, Feixiang; Qu, Yanhua; Edwards, Scott V.; Zhou, Zhonghe; Liu, Liang (2024-02-20). „Genome, Fossilien und der gleichzeitige Aufstieg moderner Vögel und Blütenpflanzen in der späten Kreidezeit“ . Proceedings of the National Academy of Sciences . 121 (8). doi : 10.1073/pnas.2319696121 . ISSN 0027-8424 . PMC 10895254 .
- ^ Yirka, Bob; Phys.org. „Neue Studie legt nahe, dass sich Vögel lange vor dem Aussterben der Dinosaurier zu diversifizieren begannen . “ phys.org . Abgerufen am 16.02.2024 .
- ^ Zimmer, Carl (12.02.2024). „Ein Asteroid hat die Dinosaurier ausgelöscht. Hat er den Vögeln geholfen, sich zu erholen?“ The New York Times . ISSN 0362-4331 . Abgerufen am 16.02.2024 .
- ^ Field, Daniel J.; Bercovici, Antoine; Berv, Jacob S.; Dunn, Regan; Fastovsky, David E.; Lyson, Tyler R.; Vajda, Vivi; Gauthier, Jacques A. (2018). „Frühe Evolution moderner Vögel, strukturiert durch den globalen Waldkollaps am Ende der Kreidezeit“ . Current Biology . 28 (11): 1825–1831.e2. doi : 10.1016/j.cub.2018.04.062 . PMID 29804807 .
- ^ Mayr, Gerald (2016). Avian Evolution . Wiley. doi : 10.1002/9781119020677 . ISBN 978-1-119-02067-7Die
- ^ Wong, Kate. „Wie Vögel ihre unglaubliche Vielfalt entwickelten“ . Scientific American . Abgerufen am 6. September 2020 .
- ^ Felice, Ryan N.; Watanabe, Akinobu; Cuff, Andrew R.; Hanson, Michael; Bhullar, Bhart-Anjan S.; Rayfield, Emily R.; Witmer, Lawrence M.; Norell, Mark A.; Goswami, Anjali (18. August 2020). „Verlangsamte Evolution des Dinosaurierschädels mit dem Ursprung der Vögel“ . PLOS Biology . 18 (8) e3000801. doi : 10.1371/journal.pbio.3000801 . ISSN 1545-7885 . PMC 7437466. PMID 32810126 .
 Text und Bilder sind unter einer Creative Commons Attribution 4.0 International Lizenz verfügbar .
- ^ „Vögel – Klassifizierung“ . Encyclopedia Britannica . Abgerufen am 14.03.2021 .
- ^ Fjeldså, Jon; Niels Krabbe. (1990). Vögel der Hochanden: Ein Bestimmungsbuch für die Vögel der gemäßigten Zone der Anden und Patagoniens, Südamerikas . Apollo Books. ISBN 978-87-88757-16-3Die
- ^ Vlamis, Kelsey (4. Dezember 2019). „Vögel schrumpfen aufgrund der Klimaerwärmung“ . BBC News . Abgerufen am 5. Dezember 2019 .
- ^ „Nordamerikanische Vögel schrumpfen, wahrscheinlich als Folge des Klimawandels“ . Audubon . 4. Dezember 2019. Abgerufen am 5. Dezember 2019 .
- Weeks, Brian C.; Willard, David E.; Zimova, Marketa; Ellis, Aspen A.; Witynski, Max L.; Hennen, Mary; Winger, Benjamin M. (2019). „Gemeinsame morphologische Folgen der globalen Erwärmung bei nordamerikanischen Zugvögeln“. Ecology Letters . 23 (2): 316–325 . doi : 10.1111/ele.13434 . hdl : 2027.42 / 153188 . ISSN 1461-0248 . PMID 31800170. S2CID 208620935 .
Weiterführende Literatur
- Jarvis, Erich D.; Mirarab, Siavash; Aberer, Andre J.; Li, Bo; Houde, Peter; et al. (2014). „ Genomweite Analysen entschlüsseln frühe Zweige im Stammbaum der modernen Vögel“ . Science . 346 (6215): 1320–1331 . doi : 10.1126/science.1253451 . PMC 4405904. PMID 25504713 .
- N. Adam Smith; Luis M. Chiappe; Julia A. Clarke; Scott V. Edwards; Sterling J. Nesbitt; Mark A. Norell; Thomas A. Stidham; Alan Turner; Marcel van Tuinen; Jakob Vinther; Xing Xu (2015). „Rhetorik vs. Realität: Ein Kommentar zu Bird Origins Anew von A. Feduccia“. Auk . 132 (2): 467–480 . doi : 10.1642/AUK-14-203.1 . hdl : 2152/43319 . S2CID 85772056 .
- Xing Xu, Zhonghe Zhou, Robert Dudley, Susan Mackem, Cheng-Ming Chuong , Gregory M. Erickson und David J. Varricchio (12. Dezember 2014). „Ein integrativer Ansatz zum Verständnis der Vogelursprünge“ . Science . 346 (6215) 1253293. doi : 10.1126/science.1253293 . PMID 25504729. S2CID 24228777 .
- Futuyma, Douglas J. (2024). Wie Vögel sich entwickeln: Was die Wissenschaft über ihren Ursprung, ihr Leben und ihre Vielfalt enthüllt . Princeton: Princeton University Press . ISBN 978-0-691-26463-9Die
- Brusatte, Stephan, Die Geschichte der Vögel: Eine neue Geschichte von ihren Dinosaurierursprüngen bis zur Gegenwart, 28. April 2026