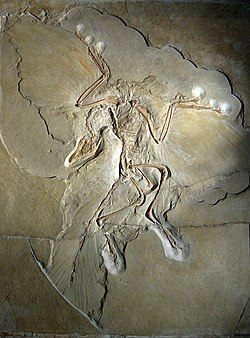
Confuciusornis ist eine Gattung basaler , krähengroßer , avialer Theropode aus der Unterkreidezeit der Yixian- und Jiufotang-Formation in China, die vor 125 bis 120 Millionen Jahren lebte. Wie moderne Vögel besaß Confuciusornis einen zahnlosen Schnabel. Nähere und spätere Verwandte moderner Vögel wie Hesperornis und Ichthyornis waren jedoch bezahnt, was darauf hindeutet, dass der Zahnverlustbei Confuciusornis und den heutigen Vögeln konvergent auftrat . Er galt lange als der älteste bekannte Vogel mit Schnabel [ 2 ] , doch dieser Titel gebührt heute dem älteren Verwandten Eoconfuciusornis [ 3 ] .Benannt wurde er nach dem chinesischen Moralphilosophen Konfuzius (551–479 v. Chr.). Confuciusornis ist eines der häufigsten Wirbeltiere der Yixian-Formation, und es wurden mehrere hundert vollständige Exemplare gefunden [ 4 ] .
Geschichte der Entdeckung

Im November 1993 besuchten die chinesischen Paläontologen Hou Lianhai und Hu Yoaming vom Institut für Wirbeltierpaläontologie und Paläoanthropologie (IVPP) in Peking den Fossiliensammler Zhang He in seinem Haus in Jinzhou . Dort zeigte er ihnen ein fossiles Vogelexemplar, das er auf einem Flohmarkt erworben hatte. Im Dezember erfuhr Hou von einem zweiten Exemplar, das von einem Bauern namens Yang Yushan entdeckt worden war. Beide Exemplare wurden am selben Fundort in Shangyuan, Beipiao, entdeckt . [ 5 ] [ 6 ] 1995 wurden diese beiden Exemplare sowie ein drittes von Hou und Kollegen als neue Vogelgattung und -art, Confuciusornis sanctus , beschrieben. Der Gattungsname setzt sich aus dem Namen des Philosophen Konfuzius und dem griechischen Wort ὄρνις ( ornis ), „Vogel“, zusammen. Der Artname bedeutet im Lateinischen „der Heilige“ und ist eine Übersetzung des chinesischen Wortes 圣贤 ( shèngxián) , „Weiser“, in Anlehnung an Konfuzius. Das erste gefundene Exemplar wurde als Holotypus festgelegt und unter der Exemplarnummer IVPP V10918 katalogisiert; es besteht aus einem Teilskelett mit Schädel und Teilen der Vordergliedmaße. Von den beiden anderen Skeletten umfasst eines ( Paratypus , IVPP V10895) ein vollständiges Becken und eine Hintergliedmaße, das andere (Paratypus, IVPP V10919–10925) eine fragmentarische Hintergliedmaße sowie sechs Federabdrücke, die beidseitig am Schienbein befestigt sind . [ 7 ] Bald stellte man fest, dass die beiden Paratypus-Exemplare ausschließlich Knochen enthalten, die im Holotypus nicht vorkommen, und dass diese fehlende Übereinstimmung ihre Zuordnung zu dieser Art spekulativ macht. [ 8 ] Erst die Entdeckung einer großen Anzahl gut erhaltener Exemplare kurz darauf bestätigte, dass die Exemplare tatsächlich eine einzige Art repräsentieren. [ 9 ] : 16
Zusammen mit dem etwa zeitgleich entdeckten frühen Säugetier Zhangheotherium galt Confuciusornis als die bedeutendste Fossilienentdeckung der Jehol-Biota , die in den folgenden Jahrzehnten den wichtigsten Nachweis mesozoischer Vögel weltweit liefern sollte. [ 10 ] : 5–6 [ 11 ] Ende der 1990er-Jahre hielt man Confuciusornis sowohl für den ältesten Schnabelvogel als auch für den frühesten Vogel nach Archaeopteryx . Er galt zudem als nur geringfügig jünger als Archaeopteryx – die Yixian-Formation , die Gesteinseinheit, in der die meisten Confuciusornis- Exemplare gefunden wurden, wurde damals dem späten Jura ( Tithonium ) zugeordnet . Obwohl bereits 1992 zwei Vogelgattungen, Sinornis und Cathayornis , aus der Jehol-Fauna beschrieben worden waren, basierten diese Beschreibungen lediglich auf fragmentarischen Überresten und stammten aus der jüngeren Jiufotang-Formation , die als frühkretazisch galt . [ 12 ] [ 7 ] [ 11 ] Später wurden beide Formationen in die Unterkreide ( Barremium bis Aptium , vor 131–120 Millionen Jahren) datiert. [ 13 ]
1995 begannen Bauern in der Nähe des Dorfes Sihetun in Beipiao mit der Fossiliensuche. Das Gebiet sollte sich zu einer der ergiebigsten Fundstellen der Jehol-Fauna entwickeln. Ab 1997 führte das IVPP an dieser Fundstelle groß angelegte professionelle Ausgrabungen durch. Zu den geborgenen Fossilien gehören mehrere hundert Exemplare von Confuciusornis . [ 5 ] [ 11 ] Seitdem wurden zahlreiche weitere Fundstellen mit Fossilien der Jehol-Fauna entdeckt, die sich über ein großes Gebiet erstrecken, darunter Liaoning, Hebei und die Innere Mongolei. [ 10 ] :7 Aufgrund der großen Menge, des guten Erhaltungszustands und des kommerziellen Wertes der Fossilien brachten die Ausgrabungen der Bauern eine ungewöhnlich hohe Anzahl an Funden hervor. [ 11 ] [ 6 ] Obwohl ein Teil dieser Fossilien in die Sammlungen chinesischer Forschungseinrichtungen gelangte, wurden vermutlich weitere außer Landes geschmuggelt. [ 12 ] Im Jahr 1999 wurde geschätzt, dass das Nationale Geologische Museum Chinas in Peking fast 100 Exemplare von Confuciusornis beherbergte , [ 9 ] 16 und im Jahr 2010 soll das Shandong Tianyu Museum of Nature 536 Exemplare des Vogels besessen haben. [ 14 ] Die meisten Exemplare befinden sich jedoch in Privatbesitz und stehen daher für Forschungszwecke nicht zur Verfügung. [ 15 ]
Zeitweise wurden vierzig Individuen auf einer Fläche von etwa 100 m² entdeckt . Dies wird damit erklärt, dass ganze Vogelschwärme gleichzeitig durch Asche, Hitze oder giftige Gase infolge der Vulkanausbrüche getötet wurden , die zur Ablagerung des Tuffsteins führten , in dem die Fossilien gefunden wurden, als Seesediment . [ 16 ]
Weitere Arten und Synonyme
Seit der Beschreibung von Confuciusornis sanctus wurden fünf weitere Arten formell benannt und beschrieben. Wie bei vielen anderen fossilen Gattungen ist die Abgrenzung der Arten schwierig, da sich die Unterschiede zwischen den Arten oft nicht ohne Weiteres von der Variation innerhalb einer Art unterscheiden lassen. [ 10 ] : 50 Im Fall von Confuciusornis ist nur C. sanctus allgemein anerkannt.
- Confuciusornis chuonzhous wurde 1997 von Hou anhand des Exemplars IVPP V10919, ursprünglich ein Paratypus von C. sanctus , benannt . Der Artname bezieht sich auf Chuanzhou, eine alte Bezeichnung für Beipiao . [ 17 ] C. chuonzhous gilt heute allgemein als Synonym von C. sanctus . [ 18 ]
- Confuciusornis suniae , benannt von Hou in derselben Publikation von 1997, basiert auf dem Exemplar IVPP V11308. Der Artname ehrt Frau Sun, die Ehefrau von Shikuan Liang, die das Fossil dem IVPP schenkte. [ 17 ] C. suniae wird heute üblicherweise als Synonym von C. sanctus betrachtet . [ 18 ]
- Confuciusornis dui wurde 1999 von Hou und Kollegen benannt. Der Artname ehrt den Sammler Du Wengya, der das Exemplar gespendet hat. Das Holotypus-Exemplar (IVPP V11553) ist ein nahezu vollständiges Skelett eines adulten Tieres, das ein Paar langer Schwanzfedern und den Abdruck des Hornschnabels enthält. Ein zweites Exemplar, der Paratypus IVPP 11521, ist fragmentarisch und umfasst einige Wirbel und Rippen, Schwanz, Brustbein und Becken sowie Oberschenkelknochen. Laut Hou und Kollegen war C. dui kleiner und schlanker als die meisten anderen Confuciusornis- Exemplare. Der Holotypus war etwa 15 % kleiner als der Holotypus von C. sanctus und etwa 30 % kleiner als größere Exemplare dieser Art. Die Kieferspitzen waren spitzer als bei C. sanctus , und dem Unterkiefer fehlte der für letztere Art charakteristische Kiel an der Unterseite. Weitere Unterschiede zur Typusart finden sich im Postcranium: Die Kralle am ersten Zeh war nicht wie bei C. sanctus vergrößert . Das Sternum war länglicher und wies anatomische Unterschiede auf, und das untere Segment der Hintergliedmaße (der Tarsometatarsus) war kürzer als das Pygostyl des Schwanzes. [ 19 ] Eine statistische Analyse von Marguán-Lobon et al. aus dem Jahr 2011 ergab keine signifikanten Unterschiede zu Exemplaren der kleinsten Größenklasse von C. sanctus , was darauf hindeutet, dass die vermuteten Unterschiede individuelle Variationen innerhalb einer einzigen Art darstellen. Allerdings konnten die Autoren den Holotypus von C. dui , der möglicherweise verloren gegangen ist, nicht wiederfinden und mussten sich daher für ihre Messungen auf einen Abguss dieses Exemplars stützen. Eine erneute Untersuchung der C.-dui- Exemplare wäre erforderlich, um die Gültigkeit der Art zu überprüfen. [ 20 ]
- Confuciusornis feducciai wurde 2009 von Zhang Fucheng und Kollegen benannt; der Artname ehrt den Ornithologen Alan Feduccia . Der Holotypus, D2454, wurde in Sihetun entdeckt und wird im Naturkundemuseum Dalian aufbewahrt. Laut Zhang und Kollegen unterschied sich C. feducciai von anderen Confuciusornis- Arten durch seine größere Körpergröße, die Skelettproportionen und eine Reihe morphologischer Merkmale. Die Vordergliedmaße war 15 % länger als die Hintergliedmaße, während sie bei C. sanctus gleich lang waren . Am oberen Ende des Oberarmknochens fehlte die für andere Confuciusornis -Exemplare charakteristische große Öffnung (Foramen) . Die erste Phalanx des ersten Zehs war schlanker. Weitere Unterschiede zeigten sich in der V-förmigen Gabelbein (Gabelbein), dem breiteren als langen Brustbein (Sternum) und dem im Vergleich zum Schambein (Pubis) längeren Sitzbein (Ischium). [ 21 ] Marguán-Lobon und Kollegen argumentierten 2011, dass diese Diagnose problematisch sei. Die große Öffnung im Oberarmknochen, die im linken Oberarmknochen offenbar fehlte, war im rechten Oberarmknochen des Holotypus deutlich vorhanden. Darüber hinaus ergab ihre statistische Analyse, dass das Exemplar innerhalb der Variationsbreite von C. sanctus liegt . Die Autoren schlugen daher vor, dass C. feducciai identisch (ein jüngeres Synonym) mit C. sanctus ist . [ 20 ]
- Confuciusornis jianchangensis wurde 2010 von Li Li und Kollegen anhand des in Toudaoyingzi gefundenen Exemplars PMOL-AB00114 beschrieben . Im Gegensatz zu den meisten anderen Arten, die aus der Yixian-Formation stammen , kommt C. jianchangensis in der Jiufotang-Formation vor . [ 22 ]
Im Jahr 2002 benannte Hou die Gattung Jinzhouornis , doch Chiappe et al. (2018) und Wang et al. (2018) zeigten anhand von Morphometrie und der Untersuchung bekannter Exemplare der Gattung Confuciusornithiformes, dass diese Gattung ein jüngeres Synonym von Confuciusornis ist. [ 15 ] [ 23 ]
Beschreibung
Größe

Confuciusornis war etwa so groß wie eine heutige Krähe , mit einer Gesamtlänge von 50 Zentimetern [ 24 ] und einer Flügelspannweite von bis zu 70 Zentimetern. Sein Körpergewicht wurde auf bis zu 0,5 Kilogramm [ 25 ] oder nur 0,2 Kilogramm [26] geschätzt. C. feducciai war etwa ein Drittel länger als durchschnittliche Exemplare von C. sanctus . [ 21 ]
Unterscheidungsmerkmale
Confuciusornis weist eine Mischung aus basalen und abgeleiteten Merkmalen auf. Im Vergleich zu Archaeopteryx war er insofern „fortgeschrittener“ oder abgeleitet, als er einen kurzen Schwanz mit Pygostyl (einem Knochen aus mehreren kurzen, verschmolzenen Schwanzwirbeln) und ein knöchernes Brustbein besaß . Gleichzeitig war er im Vergleich zu modernen Vögeln basaler oder „primitiver“, da er große Krallen an den Vordergliedmaßen, einen primitiven Schädel mit geschlossener Augenhöhle und ein relativ kleines Brustbein aufwies. Anfänglich wurde die Anzahl der basalen Merkmale übertrieben: Hou nahm 1995 an, dass ein langer Schwanz vorhanden gewesen sei, und hielt Rillen in den Kieferknochen fälschlicherweise für kleine, degenerierte Zähne. [ 27 ]
Schädel

Die Schädelmorphologie von Confuciusornis war aufgrund des stark beschädigten und deformierten Zustands der Fossilien schwer zu bestimmen. Der Schädel war in Seitenansicht annähernd dreieckig, und der zahnlose Schnabel war robust und spitz. Die Kiefervorderseite wies tiefe Nerven- und Gefäßöffnungen sowie Furchen auf, die mit der keratinhaltigen Rhamphotheca (hornbedeckter Schnabel) in Verbindung standen. Der Schädel war recht robust, mit tiefen Kiefern, insbesondere dem Unterkiefer. Der Tomialkamm des Oberkiefers (eine knöcherne Stütze für die Schneidekante des Kiefers) verlief über seine gesamte Länge gerade. Die Prämaxillae (vordere Knochen des Oberkiefers) waren im vorderen Bereich der Schnauze größtenteils miteinander verwachsen, an der Spitze jedoch durch eine V-förmige Einkerbung getrennt. Die Stirnfortsätze, die von den Zwischenkieferknochen nach hinten ragten, waren dünn und reichten wie bei modernen Vögeln über die Augenhöhlen hinaus, im Gegensatz zu Archaeopteryx und anderen Urvögeln ohne Pygostyl, bei denen diese Fortsätze vor den Augenhöhlen endeten. Oberkieferknochen (Maxilla) und Zwischenkieferknochen waren durch eine schräge Naht miteinander verbunden, und der Oberkieferknochen besaß einen ausgeprägten Gaumenfortsatz. Das Nasenbein war kleiner als bei den meisten Vögeln und wies einen schlanken Fortsatz auf, der nach unten zur Oberkieferhöhle gerichtet war. Die Augenhöhle war groß, rund und enthielt Skleralplatten (die knöcherne Stütze im Inneren des Auges). Ein halbmondförmiges Element, das die Vorderwand der Augenhöhle bildete, könnte ein Siebbein-Tränen-Komplex ähnlich dem der Tauben sein , doch die genaue Funktion dieser Knochen ist aufgrund des schlechten Erhaltungszustands und der großen Variabilität dieser Region bei modernen Vögeln unklar. Die äußeren Nasenöffnungen (knöcherne Nasenlöcher) waren annähernd dreieckig und lagen weit von der Schnauzenspitze entfernt. Ihre Begrenzungen bildeten die Zwischenkieferknochen (Prämaxillae) oben, der Oberkieferknochen (Maxillae) unten und die Nasenwand hinten. [ 28 ] [ 9 ] [ 29 ]

Nur wenige Exemplare weisen erhaltene Schädelnähte auf, doch ein Exemplar zeigt, dass die frontoparietale Naht den Schädel direkt hinter dem Processus postorbitalis und der hintersten Orbitawand kreuzte. Dies ähnelte Archaeopteryx und Enaliornis , während sie bei modernen Vögeln nach hinten abknickt und das Schädeldach deutlich weiter hinten kreuzt, wodurch das Stirnbein von Confuciusornis im Vergleich zu dem moderner Vögel klein erscheint. Ein markanter Supraorbitalwulst bildete den oberen Rand der Orbita und setzte sich als Processus postorbitalis fort, der markante, seitlich nach außen ragende Kämme aufwies und so den Orbitarand erweiterte. Das Schuppenbein war vollständig in die Schädelwand integriert, sodass seine genauen Grenzen nicht mehr bestimmbar sind, was auch für adulte moderne Vögel gilt. Verschiedene Interpretationen wurden zur Morphologie und Identität der Knochen in der Schläfenregion hinter den Orbitae vorgeschlagen, doch lassen sich diese Fragen mit den verfügbaren Fossilien möglicherweise nicht klären. Confuciusornis galt Ende der 1990er Jahre als erster bekannter Vogel mit einem ursprünglichen diapsiden Schädel (mit zwei Schläfenfenstern auf jeder Seite). 2018 kamen Elzanowski und Kollegen jedoch zu dem Schluss, dass die Konfiguration in der Schläfenregion der Confuciusornithiden für ihre Gruppe autapomorph ist (ein einzigartiges Merkmal, das sich sekundär entwickelt hat und nicht von einem ursprünglichen Zustand erhalten geblieben ist). Das Quadratbein und das hintere Ende des Jochbeins waren in einem komplexen Gerüst verbunden, das das Schuppenbein mit dem unteren Ende des Postorbitalfortsatzes verband. Dieses Gerüst bestand aus zwei Knochenbrücken, dem Schläfenbein und der Orbitozygomatikalverbindung. Dadurch erschien die Schläfenöffnung ähnlich wie bei diapsiden Schädeln geteilt, obwohl diese Struktur mit Brücken über der Fossa temporalis bei modernen Vögeln vergleichbar ist. [ 28 ] [ 9 ] [ 19 ]
Der Unterkiefer ist einer der am besten erhaltenen Teile des Schädels. Er war robust, insbesondere im vorderen Drittel seiner Länge. Der Tomialkamm verlief über seine gesamte Länge gerade, und eine Kerbe markierte die scharfe Spitze des Unterkiefers. In der Seitenansicht wirkte der Unterkiefer speerförmig, da sein Unterrand im vorderen Drittel seiner Länge von der Spitze nach unten und hinten abfiel (der Kiefer war zudem an einer Stelle ein Drittel von der Spitze entfernt am tiefsten). Der Symphysenbereich (die Verbindungsstelle der beiden Unterkieferhälften) des Dentale war sehr robust. Der Unterrand bildete auf Höhe des vorderen Randes des Nasenlochs einen Winkel, der die Ausdehnung der Schnabelmuskulatur nach hinten anzeigt. Das Dentale besaß drei Fortsätze, die sich nach hinten in weiter hinten liegende Knochen des Unterkiefers erstreckten. Das Gelenkbein am hinteren Ende des Unterkiefers war vollständig mit dem Surangulare und dem Präartikulare verwachsen. Der Unterkiefer erstreckte sich nach hinten über die Cotyla (die mit dem Condylus des Oberkiefers verbunden war) hinaus, und dieser Abschnitt ähnelte daher einem retroartikulären Fortsatz, wie er bei anderen Taxa vorkommt. Das Surangulare umschloss zwei Unterkieferfenster. Der hinterste Teil des Surangulare wies ein kleines Foramen auf, das sich an derselben Stelle befand wie ähnliche Öffnungen in den Unterkiefern von Nicht-Vogel-Theropoden und modernen Vögeln. Das Splenial war dreizackig (wie bei einigen modernen Vögeln, aber anders als das einfache Splenial von Archaeopteryx ), und sein Unterrand folgte dem Unterrand des Unterkiefers. Es gab ein großes rostrales Unterkieferfenster und dahinter ein kleines, abgerundetes caudales Fenster. [ 28 ] [ 9 ] [ 29 ]
Obwohl nur fünf Exemplare Teile der Hornschicht des Schnabels erhalten haben, zeigen diese, dass es Unterschiede zwischen den Arten gegeben haben muss, die im Skelett nicht erkennbar sind. Der Holotypus von C. dui bewahrt den Umriss eines nach oben gebogenen Schnabels, der sich zur Spitze hin stark verjüngt, während ein Exemplar von C. sanctus (IVPP V12352) einen nahezu geraden Oberrand und eine leicht nach unten gebogene Spitze aufweist. [ 30 ] Zwei weitere Exemplare (STM13-133 und STM13-162), die zu einer unbestimmten Art gehören, wurden 2020 beschrieben; das erstere legt nahe, dass der Schnabel beider Kiefer – anders als bei modernen Vögeln – aus zwei separaten Elementen bestand, die sich in der Mittellinie trafen, wobei zwischen ihnen am Oberkiefer Federn wuchsen. Ebenfalls anders als bei modernen Vögeln deuten diese Exemplare darauf hin, dass sich der Oberschnabel aufgrund von Foramina nach hinten auf den Oberkiefer erstreckte. [ 31 ]
Postkraniales Skelett

Die verschiedenen Exemplare weisen eine variable Anzahl an Halswirbeln auf, einige acht, andere neun. Der erste Wirbel, der Atlas, trug an der Unterseite einen schwach ausgeprägten Kiel. Der nächste, der Axis, hatte einen verbreiterten Dornfortsatz an der Oberseite und war seitlich von einer länglichen Furche durchzogen. Die übrigen Halswirbel besaßen alle eher niedrige Dornfortsätze. Es gibt keine eindeutigen Hinweise auf eine Pneumatisierung in Form von inneren Lufträumen in den Halswirbelkörpern. Die vorderen Gelenkflächen der Halswirbel waren sattelförmig. Ihre Unterseiten waren eingeschnürt. [ 9 ]
Es gab mindestens zwölf Rückenwirbel. Diese waren amphiplatisch, an beiden Enden abgeflacht und wiesen relativ kleine Zwischenwirbellöcher (Foramina intervertebralia) auf , die die Zwischenräume zwischen Wirbelkörper und Wirbelbogen bilden . Ihre Dornfortsätze waren hoch und in Seitenansicht schmal. Ihre seitlichen Fortsätze ragten horizontal hervor und waren an der hinteren Unterseite tief eingeschnitten. Auch die Seiten der Rückenwirbel wiesen tiefe, ovale Einschnitte auf. [ 9 ]
Sieben Sakralwirbel waren zu einem Synsakrum verschmolzen . Der vordere Sakralwirbel wies eine runde und konkave vordere Gelenkfläche auf. Die Wirbelkörper der vorderen Hälfte des Synsakrums waren seitlich, ähnlich wie die hinteren Wirbel, ausgehöhlt. Kräftige Seitenfortsätze verbanden das Synsakrum mit den Darmbeinen des Beckens. [ 9 ]
Obwohl frühere Beschreibungen vier oder fünf „freie“, nicht verschmolzene Schwanzwirbel zählten, berichtete Chiappe et al. 1999 von sieben. Diese wiesen runde und leicht konkave vordere Gelenkflächen auf. Ihre Dornfortsätze waren hoch und quer abgeflacht. Die seitlichen Fortsätze waren robust und ragten horizontal zur Seite. Ihre Gelenkfortsätze waren relativ lang. Der letzte dieser Wirbel hatte ein rechteckiges Profil. Sein Neuralbogen besaß kurze, schräg nach oben und zur Seite gerichtete Fortsätze. Der Schwanz endete in einem Pygostyl, einer vollständigen Verschmelzung der letzten Wirbel. Deren Anzahl ist ungewiss. Das Pygostyl war etwa 40 % länger als der vordere Teil des Schwanzes. An seiner Unterseite trug das Pygostyl einen gut entwickelten, von vorn nach hinten verlaufenden Kiel. Seine Oberseite war von einer langen Furche zwischen markanten Graten eingeschnitten. [ 9 ]

Confuciusornis besaß einen außergewöhnlich großen Oberarmknochen (Humerus). Nahe dem Schulterende befand sich ein markanter Deltopectoralis-Kamm. Charakteristisch für Confuciusornis war, dass dieser Crista deltopectoralis von einer ovalen Öffnung durchbrochen war, die möglicherweise das Gewicht des Knochens verringerte oder die Ansatzfläche der Flugmuskulatur vergrößerte. Das Gabelbein (Furcula) war, ähnlich wie bei Archaeopteryx , ein einfacher, gebogener Steg ohne spitzen Fortsatz am hinteren Ende, das Hypocleidium . Das Brustbein war relativ breit und wies einen niedrigen Kiel auf , der am hinteren Ende erhöht war. Dieser knöcherne Kiel könnte einen größeren, knorpeligen Kiel für die vergrößerte Brustmuskulatur verankert haben . [ 9 ] Die Schulterblätter (Scapulae) waren mit den strebenartigen Rabenbeinen (Os coracoidea) verwachsen und bildeten möglicherweise eine stabile Basis für den Ansatz der Flügelmuskulatur. Die Schultergelenksstellung war seitlich, nicht wie bei modernen Vögeln nach oben abgewinkelt; dies bedeutet, dass Confuciusornis seine Flügel nicht hoch über den Rücken heben konnte. Laut einer Studie von Phil Senter aus dem Jahr 2006 war das Gelenk sogar stark nach unten gerichtet, sodass der Oberarmknochen nicht über die Horizontale gehoben werden konnte. Dadurch war Confuciusornis nicht in der Lage, den für den Flügelschlag notwendigen Aufwärtsschlag auszuführen ; dasselbe hätte auch für Archaeopteryx gegolten . [ 32 ]
Das Handgelenk von Confuciusornis zeigt eine Verschmelzung, die einen Karpometakarpus bildet . Der zweite und dritte Mittelhandknochen waren ebenfalls teilweise verwachsen, der erste jedoch nicht, sodass sich die Finger frei zueinander bewegen konnten. Der zweite Mittelhandknochen, der die Schwungfedern stützte, war sehr kräftig gebaut; sein Finger trug eine kleine Kralle. Die Kralle des ersten Fingers hingegen war sehr groß und gebogen. [ 9 ] Der stummelartige dritte Mittelhandknochen, der die Federkiele stützte , war vermutlich vom Handfleisch umschlossen. [ 33 ] Die Formel der Fingerphalangen lautete 2-3-4-0-0. [ 9 ]

Das Becken war mit dem Kreuzbein verbunden, das aus sieben Sakralwirbeln bestand . Das Schambein war stark nach hinten gerichtet. Die Sitzbeine waren links und rechts nicht miteinander verwachsen. Der Oberschenkelknochen war gerade; das Schienbein nur geringfügig länger. Die Mittelfußknochen waren relativ kurz und miteinander sowie mit den unteren Sprunggelenksknochen zu einem Tarsometatarsus verwachsen . Ein rudimentärer fünfter Mittelfußknochen war vorhanden. Der erste Mittelfußknochen war am unteren Schaft des zweiten befestigt und stützte die Großzehe ( Hallux) , die nach hinten zeigte. Die Formel der Zehenphalangen war 2-3-4-5-0. Die Proportionen der Zehen deuten darauf hin, dass sie sowohl zum Gehen als auch zum Sitzen dienten, während die großen Krallen des Daumens und des dritten Fingers wahrscheinlich zum Klettern eingesetzt wurden. [ 9 ]
Federn und Weichgewebe

Die Flügelfedern von Confuciusornis waren lang und wirkten modern. Die Handschwingen eines 0,5 Kilogramm schweren Exemplars erreichten eine Länge von 20,7 Zentimetern. Die fünf längsten Handschwingen ( remiges primarii ) waren mehr als 3 Zentimeter lang.+Die Handschwingen waren etwa halb so lang wie die Hand und im Vergleich zu denen aller lebenden Vögel relativ länger, während die Armschwingen des Unterarms im Vergleich dazu eher kurz waren. [ 25 ] Die äußerste Handschwinge war deutlich kürzer als die zweitäußerste, wodurch ein relativ runder, breiter Flügel entstand. Seine Flügelform entspricht keiner bestimmten Form, die bei lebenden Vögeln vorkommt. [ 33 ] Die Handschwingen waren unterschiedlich stark asymmetrisch, insbesondere die äußersten. Es ist unklar, ob der Oberarm Armschwingen trug. Bei einigen Exemplaren sind Deckfedern erhalten, die den oberen Teil der Flügel bedecken, und bei anderen Exemplaren sind die Konturfedern des Körpers erhalten. [ 9 ]
Im Gegensatz zu einigen höher entwickelten Vögeln fehlte Confuciusornis ein Alula , ein sogenannter „Bastardflügel“. Bei modernen Vögeln wird dieser durch Federn gebildet, die am ersten Finger der Hand verankert sind. Bei Confuciusornis scheint dieser Finger jedoch federlos und unabhängig vom Flügelkörper gewesen zu sein . [ 9 ] Laut Dieter Stefan Peters könnte der dritte Finger, um den fehlenden Alula auszugleichen, unterhalb des Hauptflügels ein separates Flügelchen gebildet haben, das wie die Landeklappen eines Flugzeugs funktionierte. [ 34 ] Trotz der relativ hochentwickelten und langen Flügelfedern wiesen die Unterarmknochen keinerlei Anzeichen von Federkielen ( Papillae ulnares ) oder knöchernen Ansatzpunkten für die Federbänder auf. [ 9 ]
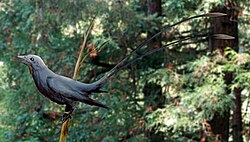
Viele Exemplare weisen ein Paar langer, schmaler Schwanzfedern auf, die länger waren als der gesamte übrige Körper. Anders als die Federn der meisten modernen Vögel waren diese Federn nicht über den größten Teil ihrer Länge in einen Mittelschaft und Äste unterteilt. Vielmehr bildeten sie ein bandartiges, etwa sechs Millimeter breites Blatt. Erst im letzten Viertel der Feder, zur abgerundeten Spitze hin, differenzierte sie sich in einen Mittelschaft mit ineinandergreifenden Ästen. Vielen Individuen von Confuciusornis fehlten sogar diese beiden Schwanzfedern, möglicherweise aufgrund von Geschlechtsdimorphismus . Der restliche Schwanz um den Pygostyl war mit kurzen, nicht aerodynamischen Federbüscheln bedeckt, die den Konturfedern des Körpers ähnelten, und nicht mit dem für moderne Vögel typischen Federfächer. [ 9 ]
Die Laserfluoreszenz zweier Confuciusornis- Exemplare lieferte weitere Details zur Weichteilanatomie. Das Propatagium von Confuciusornis war groß, vermutlich relativ dick und erstreckte sich wie bei modernen Vögeln von der Schulter bis zum Handgelenk; auch die Ausdehnung des Postpatagiums ähnelt der moderner Vögel. Netzartige Schuppen bedeckten die Fußunterseite, und die Phalangen und Metatarsalknochen trugen große, fleischige Polster, während die Interphalangealpolster entweder klein waren oder gänzlich fehlten. [ 33 ]
Federmuster

Anfang 2010 untersuchte eine Gruppe von Wissenschaftlern unter der Leitung von Zhang Fucheng Fossilien mit erhaltenen Melanosomen ( Farbstofforganellen ). Mithilfe eines Elektronenmikroskops entdeckten sie Melanosomen in einem Fossil von Confuciusornis sanctus , IVPP V13171. Sie berichteten von zwei Melanosomentypen: Eumelanosomen und Phäomelanosomen . Dies deutete darauf hin, dass Confuciusornis Grau-, Rotbraun- und Schwarztöne aufwies, möglicherweise ähnlich dem heutigen Zebrafinken . Es war zudem das erste Mal, dass in einem frühen Vogelfossil erhaltene Phäomelanosomen nachgewiesen wurden. [ 35 ] Ein zweites Forschungsteam konnte diese Spuren von Phäomelanosomen jedoch nicht finden. Ihre Studie aus dem Jahr 2011 stellte außerdem einen Zusammenhang zwischen dem Vorhandensein bestimmter Metalle, wie Kupfer , und erhaltenem Melanin fest . Anhand von Fossilienabdrücken von Melanosomen und dem Nachweis von Metallen in den Federn rekonstruierte ein zweites Wissenschaftlerteam Confuciusornis mit dunkel gefärbten Körper- und Oberflügelfedern. In den meisten Flügelfedern fanden sie jedoch weder Melanosomen noch Metalle. Sie vermuteten, dass die Flügel von Confuciusornis weiß oder möglicherweise mit Carotinoidpigmenten gefärbt gewesen wären. Die langen Schwanzfedern der männlichen Exemplare wären ebenfalls über ihre gesamte Länge dunkel gewesen. [ 36 ]
Eine 2018 durchgeführte Untersuchung des Exemplars CUGB P1401 wies auf starke Fleckenbildung an den Flügeln, der Kehle und dem Kamm von Confuciusornis hin . [ 37 ]
Einstufung
Hou ordnete Confuciusornis 1995 den Confuciusornithidae zu . Zunächst nahm er an, es gehöre zu den Enantiornithes und sei das Schwestertaxon von Gobipteryx . Später erkannte er, dass Confuciusornis kein Enantiornithe war, schloss aber, es sei das Schwestertaxon der Enantiornithes innerhalb der größeren Sauriurae . [ 12 ] Dies wurde von Chiappe stark kritisiert, der die Sauriurae als paraphyletisch betrachtete , da es nicht genügend gemeinsame Merkmale gab, die auf eine enge Verwandtschaft zwischen den Confuciusornithidae und den Enantiornithes hindeuteten. [ 38 ] Im Jahr 2001 schlug Ji Qiang eine alternative Position als Schwestertaxon der Ornithothoraces vor . [ 39 ]
Im Jahr 2002 wurde Jis Hypothese durch eine kladistische Analyse von Chiappe bestätigt, der eine neue Gruppe definierte: die Pygostylia , deren Confuciusornis definitionsgemäß das basalste Mitglied ist. [ 40 ] Mehrere Merkmale von Confuciusornis belegen seine Stellung in der Vogelevolution; er besitzt einen „primitiveren“ Schädel als Archaeopteryx , ist aber der erste bekannte Vogel, der den langen Schwanz von Archaeopteryx verlor und verschmolzene Schwanzwirbel, ein Pygostyl , entwickelte . [ 41 ] Eine umstrittene Studie kam zu dem Schluss, dass Confuciusornis enger mit Microraptor und anderen Dromaeosauriden verwandt sein könnte als mit Archaeopteryx , [ 42 ] diese Studie wurde jedoch aus methodischen Gründen kritisiert.
Die gegenwärtige Standardinterpretation der phylogenetischen Stellung von Confuciusornis lässt sich in diesem Kladogramm darstellen :
| Aves |
| ||||||||||||||||||||||||||||||||||||
Ein naher Verwandter, der Konfuziusornithide Changchengornis hengdaoziensis , lebte ebenfalls in der Yixian-Formation. Changchengornis besaß, wie einige höher entwickelte Enantiornithiden , auch paarige, lange Schwanzfedern . Bewegliche Schwanzfächer traten jedoch nur bei Ornithuromorpha und möglicherweise beim Enantiornithiden Shanweiniao auf . [ 42 ] [ 43 ]
Paläobiologie
Die großen, fleischigen Zehenballen , die kleinen Zwischenzehenballen , das Vorhandensein ausschließlich netzartiger Schuppen an der Fußunterseite (was die Flexibilität erhöht) und die gebogenen Fußkrallen von Confuciusornis sind allesamt Merkmale, die sie mit modernen baumbewohnenden Singvögeln teilen, was darauf hindeutet, dass Confuciusornis möglicherweise eine ähnliche Lebensweise hatte. [ 33 ]
Vergleiche zwischen den die Augen stützenden Skleralringen von Confuciusornis und modernen Vögeln und anderen Reptilien deuten darauf hin, dass es möglicherweise tagaktiv war , ähnlich wie die meisten modernen Vögel. [ 44 ]
Flug

Man ging traditionell davon aus, dass Confuciusornis aufgrund seiner extrem langen Flügel mit stark asymmetrischem Gefieder ein fähiger Flieger war. Weitere Anpassungen für verbesserte Flugfähigkeiten umfassen: ein verknöchertes Handgelenk, einen kurzen Schwanz, ein verknöchertes Brustbein mit zentralem Kiel, ein strebenartiges Rabenbein, einen großen Deltopektoralkamm, eine kräftige Elle (Unterarmknochen) und einen vergrößerten zweiten Mittelhandknochen. [ 45 ] Der Brustbeinkiel und der Deltopektoralkamm (der einen kraftvolleren Aufschlag ermöglicht) sind Anpassungen an den Flügelschlag moderner Vögel, was darauf hindeutet, dass Confuciusornis möglicherweise dazu fähig war. Allerdings könnte sein Flugstil aufgrund der Unfähigkeit, seinen Arm hinter den Körper zu drehen, anders gewesen sein, und sein relativ kleiner Brustbeinkiel deutet darauf hin, dass er wahrscheinlich nicht zu längeren Flugzeiten fähig war. [ 33 ]
Es wurden verschiedene gegenteilige Behauptungen bezüglich der Flugfähigkeit von Confuciusornis aufgestellt . Die erste bezog sich auf Schwierigkeiten beim Erreichen einer steilen Flugbahn aufgrund der begrenzten Flügelamplitude. Laut Senters Interpretation der Schultergelenkposition wäre ein normaler Aufschlag unmöglich gewesen, was den Flügelschlagflug gänzlich ausschloss. [ 46 ] Weniger radikal ist die Annahme, dass der Musculus pectoralis minor aufgrund des fehlenden Kiels im Brustbein und des hohen Acrocoracoids nicht als M. supracoracoideus fungieren konnte , der den Oberarmknochen über eine durch das Foramen triosseum verlaufende Sehne anhebt . Dies, zusammen mit einem durch die laterale Position des Schultergelenks bedingten begrenzten Aufschlag, hätte das Erreichen von Höhe erschwert. Einige Autoren schlugen daher vor, dass Confuciusornis seine großen Daumenkrallen zum Klettern an Baumstämmen nutzte. Martin nahm an, dass es seinen Rumpf fast senkrecht wie ein Eichhörnchen aufrichten konnte. [ 27 ] Daniel Hembree räumte zwar ein, dass Baumklettern wahrscheinlich war, wies aber darauf hin, dass das Hinterteil in vertikaler Position offenbar nicht mehr als 25° relativ zum Oberschenkelknochen angehoben wurde, wie die Lage des Antitrochanters im Hüftgelenk zeigt. [ 47 ] Dieter S. Peters hielt es für sehr unwahrscheinlich, dass Confuciusornis auf Baumstämme kletterte, da das Einwärtsdrehen der Daumenkralle den sehr langen Flügel nach vorne strecken würde, genau in den Weg von hinderlichen Ästen. Peters sieht Confuciusornis zwar als fähig zum Flügelschlagflug, aber spezialisiert auf den Segelflug. [ 34 ]

Auch die Festigkeit der Federn ist umstritten. Robert Nudds und Gareth Dyke veröffentlichten 2010 eine Studie, in der sie argumentierten, dass die Federachsen (zentrale Schäfte) der Handschwingen sowohl bei Confuciusornis als auch bei Archaeopteryx zu dünn und schwach waren, um während des für den Flug notwendigen Kraftschlags stabil zu bleiben. Sie kamen zu dem Schluss, dass Confuciusornis höchstens Gleitflug beherrschte , was auch mit den ungewöhnlichen Anpassungen an seinen Oberarmknochen übereinstimmt, und seine Flügel wahrscheinlich eher zum Fallschirmspringen nutzte, wodurch die Fallgeschwindigkeit bei einem Sturz von einem Baum begrenzt wurde. [ 25 ] Gregory S. Paul widersprach dieser Studie jedoch. Er argumentierte, dass Nudds und Dyke das Gewicht dieser frühen Vögel überschätzt hätten und dass genauere Gewichtsschätzungen einen aktiven Flug selbst mit relativ schmalen Federachsen ermöglichten. Nudds und Dyke gingen von einem Gewicht von 500 Gramm für Confuciusornis aus , so viel wie die heutige Krickente . Paul argumentierte, dass ein realistischeres Körpergewicht von etwa 180 Gramm vorliege, also weniger als das einer Taube. Er merkte außerdem an, dass Confuciusornis häufig in großen Ansammlungen in Seesedimenten gefunden wird, ohne dass Anzeichen für einen ausgedehnten postmortalen Transport vorliegen, und dass es höchst ungewöhnlich wäre, gleitende Tiere in solch großer Zahl in tiefem Wasser anzutreffen. Vielmehr deuten diese Funde darauf hin, dass Confuciusornis in großen Schwärmen über die Seeoberfläche zog – ein Lebensraum, der mit einem fliegenden Tier übereinstimmt. [ 26 ] Mehrere Forscher stellten die Korrektheit der Rachis-Messungen in Frage und gaben an, dass die von ihnen untersuchten Exemplare eine Schaftdicke von 2,1–2,3 Millimetern (0,083–0,091 Zoll) aufwiesen, verglichen mit den von Nudds und Dyke berichteten 1,2 Millimetern (0,047 Zoll). [ 14 ] Nudd und Dyke entgegneten, dass – abgesehen vom Gewicht – allein diese größere Schaftdicke den Flügelschlagflug ermöglichen würde; sie räumten jedoch die Möglichkeit ein, dass in dem chinesischen Fossilmaterial zwei Arten mit unterschiedlichem Rachis-Durchmesser vorhanden sein könnten. [ 48 ]
Falk et al. argumentierten 2016 anhand von Laserfluoreszenz-Untersuchungen an zwei weichteilerhaltenden Präparaten für die Flugfähigkeit von Confuciusornis . Sie stellten fest, dass die Flügelachsen von Confuciusornis – entgegen den Behauptungen von Nudds und Dyke – relativ robust waren und eine maximale Breite von über 1,5 mm aufwiesen. Die Flügelform ist entweder mit Vögeln, die in dichten Wäldern leben, oder mit Gleitvögeln vereinbar; erstere passt zu seinem Lebensraum, der dicht bewaldet war [ 49 ] und mehr Manövrierfähigkeit und Stabilität als Geschwindigkeit erforderte. Das große Propatagium erzeugte einen beträchtlichen Auftrieb, während das ebenfalls große Postpatagium eine große Ansatzfläche für die Federkiele bot , wodurch diese ein gerades Tragflügelprofil bildeten . All dies deutet stark darauf hin, dass Confuciusornis zum aktiven Flug fähig war, wenn auch nur für kurze Zeit. [ 33 ]
Schwanzfedern

Viele Exemplare von Confuciusornis weisen ein einzelnes Paar langer, bandartiger Schwanzfedern auf, ähnlich denen einiger heutiger Paradiesvögel . [ 50 ] Exemplare, denen diese Federn fehlen, besitzen ansonsten hervorragend erhaltene Federn am restlichen Körper, was darauf hindeutet, dass ihr Fehlen nicht allein auf einen schlechten Erhaltungszustand zurückzuführen ist. [ 9 ] Larry Martin und Kollegen gaben 1998 an, dass lange Schwanzfedern bei etwa 5 bis 10 % der damals bekannten Exemplare vorkommen. [ 27 ] Eine Analyse von Jesús Marugán-Lobón und Kollegen aus dem Jahr 2011 ergab, dass von 130 Exemplaren 18 % lange Schwanzfedern aufwiesen, 28 % nicht, während bei den verbleibenden 54 % der Erhaltungszustand nicht ausreichte, um deren Vorhandensein oder Fehlen festzustellen. [ 20 ] Die biologische Bedeutung dieses Musters wird kontrovers diskutiert. [ 20 ] Martin und Kollegen vermuteten, dass das Muster auf einen Geschlechtsdimorphismus hindeuten könnte , wobei die bandartigen Federn nur bei einem Geschlecht (wahrscheinlich den Männchen) vorkommen und von diesen im Balzverhalten eingesetzt werden. [ 27 ] Diese Interpretation wurde von den meisten nachfolgenden Studien übernommen. [ 51 ] Chiappe und Kollegen argumentierten 1999, dass der Geschlechtsdimorphismus zwar nicht die einzige, aber die plausibelste Erklärung sei, und wiesen darauf hin, dass bei modernen Vögeln die Länge der Schmuckfedern häufig zwischen den Geschlechtern variiert. [ 9 ]

Kontroversen entstanden durch die Beobachtung, dass die bekannten Exemplare von Confuciusornis in eine kleine und eine große Gruppe unterteilt werden können, diese bimodale Verteilung jedoch nicht mit dem Vorhandensein langer Schwanzfedern zusammenhängt. Chiappe und Kollegen argumentierten 2008, dass diese Größenverteilung durch ein dinosaurierähnliches Wachstumsmuster erklärt werden könne (siehe Abschnitt Wachstum ) und dass Geschlechtsdimorphismus die wahrscheinlichste Erklärung für das Vorhandensein bzw. Fehlen langer Schwanzfedern sei. [ 15 ] Winfried und Dieter Peters entgegneten 2009 jedoch, dass wahrscheinlich beide Geschlechter lange Schwanzfedern besessen hätten, wie es bei den meisten modernen Vögeln mit ähnlichem Federkleid der Fall sei. Ein Geschlecht wäre jedoch größer gewesen als das andere (Geschlechtsdimorphismus). Diese Forscher vermuteten weiterhin, dass die Größenverteilung und die langen Schwanzfedern bei Confuciusornis derjenigen der heutigen Fasanenblatthühnchen ( Hydrophasianus chirurgus ) ähneln, einem Wasservogel, bei dem das Weibchen am größten ist und adulte Individuen beider Geschlechter lange Schwänze besitzen, allerdings nur während der Brutzeit. Confuciusornis unterscheidet sich von den Blatthühnchen dadurch, dass lange Schwanzfedern bei Exemplaren aller Größen vorkommen, sogar bei einigen der kleinsten bekannten Exemplare. Dies deutet darauf hin, dass die langen Schwanzfedern möglicherweise gar keine Funktion in der Fortpflanzung hatten. [ 52 ]
Es wurden mehrere alternative Hypothesen zur Erklärung des häufigen Fehlens langer Schwanzfedern vorgeschlagen. In ihrer Studie von 1999 diskutierten Chiappe und Kollegen die Möglichkeit, dass Individuen während der Mauser starben und daher keine Schwanzfedern besaßen . Obwohl direkte Beweise für die Mauser bei frühen Vögeln fehlen, deutet das Fehlen von Federabrieb bei Confuciusornis- Exemplaren darauf hin, dass sich das Gefieder periodisch erneuerte. Wie bei modernen Vögeln könnten mausernde und nicht-mausernde Individuen nebeneinander gelebt haben, und Männchen und Weibchen könnten sich zu unterschiedlichen Zeiten im Jahr gemausert haben, was das gleichzeitige Vorkommen von Exemplaren mit und ohne lange Schwanzfedern erklären könnte. [ 9 ] Peters und Petters hingegen vermuteten, dass Confuciusornis die Federn als Verteidigungsmechanismus abgeworfen haben könnte, eine Methode, die auch von einigen heute noch existierenden Arten angewendet wird. Ein solcher Federverlust wäre durch den Stress ausgelöst worden, der durch die Vulkanausbrüche verursacht wurde, die die Tiere begruben, was dazu führte, dass viele Exemplare diese Federn nicht mehr besaßen. [ 52 ] In einer 2011 veröffentlichten Arbeit gaben Jesús Marugán-Lobón und Kollegen an, dass sogar die Existenz zweier getrennter Arten, eine mit und eine ohne lange Schwanzfedern, in Betracht gezogen werden müsse. Diese Möglichkeit wäre jedoch derzeit unbegründet, da keine weiteren anatomischen Unterschiede zwischen diesen möglichen Arten erkennbar sind. [ 20 ]
Reproduktion
Im Jahr 2007 erwähnte Gary Kaiser ein Skelett von Confuciusornis , das in der Nähe des rechten Fußes ein Ei konservierte – das erste mögliche Ei dieser Gattung. Das Skelett stammt von der kurzschwänzigen Form und könnte daher ein Weibchen darstellen. Das Ei könnte nach dem Tod des mutmaßlichen Weibchens aus dem Körper gefallen sein, obwohl nicht ausgeschlossen werden kann, dass diese Verbindung eines adulten Tieres mit einem Ei rein zufällig war. Das Ei ist rundlich und misst 17 mm im Durchmesser, etwas kleiner als der Kopf des Tieres; laut Kaiser hätte es genau durch den Beckenkanal des Vogels gepasst. [ 53 ] : 244–245 [ 54 ] Bei Dinosauriern und mesozoischen Vögeln war die Breite des Beckenkanals durch die Verbindung der unteren Enden der Schambeine begrenzt, wodurch eine V-förmige Knochenöffnung entstand, durch die die Eier passen mussten. Bei modernen Vögeln ist diese Verbindung der Schambeine aufgehoben, was vermutlich größere Eier ermöglicht. In einer 2010 veröffentlichten Studie zeigten Gareth Dyke und Kaiser, dass die Breite des Confuciusornis- Eis tatsächlich geringer war als bei einem modernen Vogel ähnlicher Größe zu erwarten wäre. [ 54 ] In einem 2016 erschienenen Buch gaben Luis Chiappe und Meng Qingjin an, dass die Öffnung eines großen Exemplars (DNHM-D 2454) auf einen maximalen Eidurchmesser von 23 Millimetern (0,91 Zoll) schließen lässt. Bei modernen Vögeln finden sich verhältnismäßig große Eier häufig bei Arten, deren Jungvögel vollständig von ihren Eltern abhängig sind ( Altrizialie ), während kleinere Eier oft bei Arten vorkommen, deren Jungvögel bereits entwickelter und selbstständiger sind ( Nestflüchter ). Da das geschätzte Ei des Exemplars etwa 30 % kleiner gewesen wäre als bei einem modernen Nesthocker zu erwarten, ist es wahrscheinlich, dass Confuciusornis ein Nestflüchter war. [ 10 ] Eine Studie von Charles Deeming und Gerald Mayr aus dem Jahr 2018 untersuchte die Größe des Beckenkanals verschiedener mesozoischer Vögel, darunter auch Confuciusornis , um die Eigröße abzuschätzen. Sie kamen zu dem Schluss, dass die Eier mesozoischer Vögel im Allgemeinen im Verhältnis zur Körpermasse klein gewesen wären. Die Forscher vermuten weiterhin, dass eine vogelähnliche Kontaktbrut (das gemeinsame Brüten der Eier) für nicht-aviäre Dinosaurier und mesozoische Vögel, einschließlich Confuciusornis , nicht möglich war, da diese Tiere im Verhältnis zur Größe ihrer Eier zu schwer gewesen wären. [ 55 ] Kaiser argumentierte 2007, dass Confuciusornis wahrscheinlich nicht in einem offenen Nest brütete, sondern Baumspalten als Schutz nutzte und dass die geringe Größe des einzigen bekannten Eis auf große Gelege hindeutet. [ 53 ] : 246 Im Gegensatz dazu argumentierten David Varricchio und Frankie Jackson in einer 2016 veröffentlichten Studie, dass sich das Nestbauen über dem Boden erst viel später, innerhalb der Neornithes, entwickelte und dass mesozoische Vögel ihre Eier, wie bei nicht-aviären Dinosauriern, entweder ganz oder teilweise im Boden vergraben hätten. [ 56 ]
Wachstum
Das Wachstum lässt sich anhand der inneren Knochenstruktur rekonstruieren. Die erste derartige Studie an Confuciusornis , die 1998 von Fucheng Zhang und Kollegen vorgestellt wurde, analysierte einen Oberschenkelknochen im Querschnitt mittels Rasterelektronenmikroskopie . Da der Knochen gut vaskularisiert war (viele Blutgefäße enthielt) und nur einen einzigen Wachstumsring aufwies , schlossen die Autoren, dass das Wachstum, wie bei modernen Vögeln, schnell und kontinuierlich verlaufen sein musste und dass Confuciusornis endotherm gewesen sein musste . [ 57 ] Zhang und Kollegen bestätigten diese Annahme in einer späteren Arbeit und stellten fest, dass die Knochenstruktur zwar nicht der eines modernen ektothermen Alligators , aber der des gefiederten, nicht-aviären Dinosauriers Beipiaosaurus ähnelte . [ 58 ] Diese Autoren nahmen jedoch an, dass sich die Endothermie bei Confuciusornis unabhängig von der bei modernen Vögeln entwickelt hatte. [ 57 ] Dies stimmte mit früheren Arbeiten von Anusuya Chinsamy und Kollegen überein, die bei anderen mesozoischen Vögeln, die evolutionär weiter entwickelt sind als Confuciusornis, deutliche Wachstumsstörungen und eine geringe Vaskularisierung beschrieben . Beide Merkmale deuten auf langsames Wachstum hin, was laut Chinsamy und Kollegen auf einen niedrigen Stoffwechsel schließen lässt. Die vollständige Endothermie hätte sich demnach erst spät in der Evolutionslinie zu den modernen Vögeln entwickelt. [ 59 ] Diese Ansicht wurde durch nachfolgende Studien in Frage gestellt, die darauf hinwiesen, dass langsames Knochenwachstum nicht zwangsläufig ein Indikator für einen niedrigen Stoffwechsel ist und im Fall mesozoischer Vögel eher eine Folge der für die frühe Evolution der Vögel charakteristischen Verkleinerung des Körpers war. [ 60 ] [ 61 ] Eine umfassendere Studie, basierend auf Dünnschnitten von Knochen, wurde 2003 von Armand de Ricqlès und Kollegen veröffentlicht . Anhand von 80 Dünnschnitten eines adulten Confuciusornis- Exemplars bestätigte diese Studie die von Zhang und Kollegen vorgeschlagenen hohen Wachstumsraten. Das schnell wachsende fibrolamelläre Knochengewebe ähnelte dem von nicht-aviären Theropoden, und das untersuchte Individuum erreichte wahrscheinlich in deutlich weniger als 20 Wochen seine endgültige Größe. Die geringe Körpergröße wurde nicht primär durch verlangsamtes Wachstum, sondern durch eine Verkürzung der Phase des schnellen Wachstums erreicht. Die für Confuciusornis geschätzte Wachstumsrate ist immer noch niedriger als das für moderne Vögel charakteristische extrem schnelle Wachstum (6–8 Wochen), was darauf hindeutet , dass dieses Wachstum sekundär erst später in der Vogelevolution beschleunigt wurde.61 ]
Im Jahr 2008 führten Chiappe und Kollegen eine statistische Analyse anhand von 106 Exemplaren durch, um den Zusammenhang zwischen Körpergröße und dem Vorhandensein langer Schwanzfedern zu untersuchen. Die Population zeigte eine deutliche bimodale Größenverteilung mit zwei ausgeprägten Gewichtsklassen . Es bestand jedoch keine Korrelation zwischen Größe und dem Vorhandensein langer Schwanzfedern. Daraus wurde geschlossen, dass sich die Geschlechter entweder nicht in der Größe unterschieden oder beide Geschlechter lange Federn besaßen. Der erste Fall wurde als wahrscheinlicher erachtet, wodurch die Größenverteilung weiterhin ungeklärt blieb. Es wurde die Hypothese aufgestellt, dass die kleineren Tiere sehr junge Individuen waren, die großen Tiere ausgewachsene Tiere und die Seltenheit von Individuen mittlerer Größe darauf zurückzuführen ist, dass Confuciusornis kurz vor Erreichen der Geschlechtsreife einen Wachstumsschub durchlief. Die geringe Körpergröße in dieser Phase hätte verhindert, dass viele Tiere fossilisiert wurden. Dieses anfänglich langsame Wachstum, gefolgt von einem Wachstumsschub, hätte zu einer S-förmigen Wachstumskurve geführt , ähnlich derjenigen, die für nicht-aviäre Dinosaurier angenommen wird. Ein derart ausgedehntes, dinosaurierartiges Wachstum steht im Widerspruch zu den früheren histologischen Befunden von de Ricqlès, die auf ein deutlich kürzeres, vogelartiges Wachstum hindeuten. Alternativ könnte die beobachtete Größenverteilung auch durch das Vorhandensein mehrerer Arten erklärt werden, obwohl keine anatomischen Merkmale vorliegen, die mit diesen potenziellen Arten korrelieren könnten. Sie ließe sich auch durch die Annahme einer durch natürliche Ausrottung bedingten Sterblichkeitsgemeinschaft erklären, in der die Sterblichkeitsrate (und damit die Anzahl der erhaltenen Fossilien) bei jungen und sehr alten Individuen am höchsten ist. [ 15 ]
Die Idee eines dinosaurierähnlichen Wachstumsmodus wurde 2008 von Winfried und Dieter Peters kritisiert. Sie argumentierten, dass die Körpergröße der kleineren Größenklasse zu groß sei, um das jüngste Wachstumsstadium darzustellen. Durch die Analyse eines erweiterten Datensatzes identifizierten diese Forscher eine dritte Größenklasse, die angeblich dieses jüngste Wachstumsstadium repräsentierte. Da es höchst unwahrscheinlich sei, dass Confuciusornis zwei deutlich ausgeprägte Wachstumsschübe aufwies – ein Merkmal, das bei bekannten Amnioten nicht beobachtet wurde –, schlussfolgerten sie, dass die beiden größeren Größenklassen die beiden Geschlechter und nicht Wachstumsstadien (sexueller Größendimorphismus) repräsentierten. Die langen Schwanzfedern wären bei beiden Geschlechtern vorgekommen, wobei eines das größte gewesen wäre. Diese Interpretation stimmt mit einem vogelähnlichen Wachstumsmodus überein, wie er in früheren histologischen Studien nahegelegt wurde. Sie stimmt auch mit Vergleichen zu modernen Vögeln überein, bei denen lange Schwanzfedern typischerweise nicht geschlechtsspezifisch sind. Das Fehlen langer Schwanzfedern bei vielen Exemplaren wurde auf stressbedingten Federabwurf vor dem Tod zurückgeführt. [ 52 ]
Chiappe und Kollegen verteidigten ihre Ergebnisse in einem Kommentar aus dem Jahr 2010 und argumentierten, dass die angenommene kurze, vogelähnliche Wachstumsphase unwahrscheinlich sei. Die von De Ricqlès im Jahr 2003 vorgelegte Berechnung einer Wachstumsphase von weniger als 20 Wochen basierte auf der Annahme, dass die Knochendurchmesser um 10 μm pro Tag zunahmen, was subjektiv ist. Vielmehr zeigt die Histologie das Vorhandensein verschiedener Gewebetypen im Knochen, die unterschiedlich schnell wuchsen, sowie Wachstumspausen, die durch die Linien des Wachstumsstillstands angezeigt werden. Daher müssen die Wachstumsphasen länger gewesen sein als bei modernen Vögeln und wahrscheinlich mehrere Jahre gedauert haben, wie es auch beim heutigen Kiwi der Fall ist . [ 62 ] [ 63 ] Die beobachtete Größenverteilung lässt sich daher plausibel durch die Annahme eines dinosaurierähnlichen Wachstums erklären. [ 62 ] [ 64 ] In einer 2010 veröffentlichten Antwort bemängelten Peters und Peters, dass Chiappe und Kollegen ihr Hauptargument, den Größenunterschied zwischen der kleineren Größenklasse und den vermuteten Jungtieren, nicht kommentiert hätten. Dieser Unterschied entspricht einer Größenordnung und wäre am ehesten mit einem Geschlechtsdimorphismus vereinbar. [ 64 ] Marugán-Lobón und Kollegen untersuchten anhand einer nochmals vergrößerten Stichprobe von 130 Exemplaren die Zusammenhänge zwischen dem Vorhandensein bzw. Fehlen langer Schwanzfedern und der Länge verschiedener langer Knochen der Arme und Gliedmaßen. Sie bestätigten zwar, dass die Schwanzfedern nicht mit der Körpergröße korrelieren, stellten aber fest, dass ihr Vorhandensein mit unterschiedlichen Proportionen der Vorder- im Vergleich zu den Hintergliedmaßen einhergeht. Die Autoren schlussfolgerten, dass die Bedeutung der beobachteten Verteilungen sowohl der Schwanzfedern als auch der Körpergröße weiterhin umstritten ist. [ 20 ]
Chiappe und Kollegen kamen in ihrer Studie von 2008 zu dem Schluss, dass das Wachstum der Gliedmaßenknochen nahezu isometrisch verläuft , d. h., die Skelettproportionen verändern sich während des Wachstums nicht. [ 15 ] Peters und Peters widersprachen dieser Schlussfolgerung 2009 und beobachteten, dass die Flügelknochen bei sehr kleinen Individuen, wie beispielsweise modernen Hühnern , tendenziell proportional länger sind und somit allometrisch wachsen . [ 52 ] Chiappe und Kollegen entgegneten 2010 in ihrem Kommentar, dass proportionale Variationen über den gesamten Größenbereich hinweg vorhanden seien und dass das Vorliegen von Allometrie durch die von Peters und Peters präsentierten Analysen nicht schlüssig belegt sei. [ 62 ]
Möglicherweise Markknochen
Eine histologische Studie von Anusuya Chinsamy und Kollegen aus dem Jahr 2013 wies Markknochen in den langen Knochen eines kurzschwänzigen Exemplars (DNHM-D1874) nach, während drei langschwänzige Exemplare keinen Markknochen aufwiesen. Bei modernen Vögeln bildet sich Markknochen nur vorübergehend bei Weibchen, wo er als Kalziumreservoir für die Eischalenbildung dient. Daher vermuteten die Autoren, dass es sich bei den kurzschwänzigen Exemplaren um Weibchen und bei den langschwänzigen um Männchen handelte. Das weibliche Exemplar hatte seine schnelle Wachstumsphase bereits abgeschlossen, war aber dennoch deutlich kleiner als die maximale Größe, die Exemplare der Gattung Confuciusornis erreichten . Mindestens zwei Wachstumsstreifen (jährlich entstehende Wachstumsstreifen) konnten identifiziert werden, was auf ein über mehrere Jahre andauerndes Wachstum hindeutet; das untersuchte Weibchen wäre demnach im dritten Lebensjahr gewesen. Lange Schwanzfedern wurden bei kleinen Individuen nachgewiesen, wobei das kleinste nur etwa 23 % der Masse der größten Exemplare aufwies. Unter der Annahme, dass das Vorhandensein von Schwanzfedern auf Geschlechtsreife hinweist, schlussfolgerten die Autoren, dass diese – anders als bei Vögeln, aber ähnlich wie bei nicht-avianen Dinosauriern – deutlich vor Erreichen der endgültigen Größe eingetreten sein muss. [ 51 ] In einer Studie aus dem Jahr 2018 stellten Jingmai O’Connor und Kollegen die Identifizierung von Markknochen in Frage. Sie argumentierten, dass der vermeintliche Markknochen nur in der Vordergliedmaße gefunden wurde, während er bei modernen Vögeln hauptsächlich in der Hintergliedmaße vorkommt. Zudem sei das fragliche Gewebe nur in kleinen Fragmenten erhalten, was seine Interpretation erschwere. Dennoch gelang es den Autoren, Markknochen in der Hintergliedmaße eines Enantiornithinen, einer abgeleiteten Gruppe mesozoischer Vögel, zu identifizieren. Wie im Fall des Confuciusornis- Exemplars erreichte auch dieses vermeintliche Weibchen nicht seine endgültige Größe, was die in früheren Studien vermutete dinosaurierähnliche Wachstumsweise basaler Vögel stützt. [ 65 ]
Diät

1999 vermuteten der chinesische Paläontologe Lianhai Hou und seine Kollegen, dass Confuciusornis wahrscheinlich ein Pflanzenfresser war, obwohl noch kein Mageninhalt bekannt war. Sie wiesen darauf hin, dass der Schnabel nach oben gebogen und nicht räuberisch war. [ 19 ] Die Paläontologen Dieter S. Peters und Ji Qiang stellten 1999 die Hypothese auf, dass der Vogel seine Beute schwimmend fing, indem er mit seinem relativ weichen Schnabel unter Wasser nach ihr suchte, obwohl keine Schwimmhäute zwischen den Zehen erhalten geblieben sind. Mehrere rezente Vogelarten wurden als moderne Analoga zu Confuciusornis angeführt und geben Aufschluss über dessen mögliche Lebensweise. Peters hielt einen Vergleich mit dem Weißschwanz-Tropikvogel ( Phaeton lepturus ) für am besten geeignet , einem Fischermarder, der ebenfalls einen langen Schwanz und schmale Flügel besitzt und sogar häufig in der Nähe von Vulkanen nistet. [ 34 ]
Der polnische Paläontologe Andrzej Elżanowski hielt es 2002 für unwahrscheinlich, dass ein langflügeliger und kurzbeiniger Vogel wie Confuciusornis in Baumkronen nach Nahrung suchte. Stattdessen vermutete er, dass er im Flug jagte und seine Beute vom Wasser oder vom Boden erbeutete. Hinweise darauf lieferten die Kombination aus langen Flügeln, die anscheinend zum Segelfliegen geeignet sind, Beinproportionen (langer Oberschenkelknochen, kurzer Fuß), die denen von Fregattvögeln und Eisvögeln ähneln , ein nach hinten geöffnetes Hinterhauptloch, ein zahnloser Schnabel, der dem des Kookaburras ähnelte, aber kürzer war , sowie das Fehlen von Anpassungen an das Schwimmen. Er räumte jedoch ein, dass Confuciusornis möglicherweise schwimmen konnte, da er möglicherweise über dem Wasser nach Nahrung suchte. [ 66 ]
Im Jahr 2003 stellten die chinesischen Paläontologen Zhonghe Zhou und Fucheng Zhang fest, dass, obwohl über seine Ernährung nichts bekannt sei, seine robusten und zahnlosen Kiefer darauf hindeuteten, dass es sich von Samen ernährt haben könnte, und merkten an, dass Jeholornis direkte Beweise für eine solche Ernährung bewahrt habe. [ 67 ]
Im Jahr 2006 beschrieben Johan Dalsätt und Kollegen ein Exemplar von C. sanctus ( IVPP V13313) aus den Jiufotang-Schichten, das sieben bis neun Wirbel und mehrere Rippen eines kleinen Fisches, vermutlich Jinanichthys , enthält . Diese Fischknochen bilden ein dichtes Bündel von etwa 6 mm Durchmesser, das mit dem siebten und achten Halswirbel des Vogels in Kontakt steht. Der Zustand des Fisches deutet darauf hin, dass er entweder als Gewölle ausgewürgt oder im Kropf gespeichert wurde. In der Gesteinsplatte sind keine weiteren Fischreste vorhanden. Obwohl unbekannt ist, wie häufig Fische in der Ernährung von Confuciusornis vorkamen , spricht dieser Fund gegen eine rein pflanzliche Ernährung. Die Forscher wiesen darauf hin, dass bisher keine Exemplare mit Gastrolithen (Magensteinen) gefunden wurden, die Vögel zur Verdauung von Pflanzenfasern verschlucken. Stattdessen vermuten sie, dass es sich um einen Allesfresser handelte, ähnlich wie beispielsweise Krähen. [ 68 ]
Andrei Sinowjew nahm an, es fange Fische im Flug. [ 69 ]
Der Schädel war relativ unbeweglich und besaß nicht die Kinetik moderner Vögel, die ihre Schnauze relativ zum Hinterkopf anheben können. Diese Unbeweglichkeit wurde durch das Vorhandensein eines dreistrahligen Postorbitalknochens verursacht , der die Augenhöhle von der unteren Schläfenöffnung trennte, wie bei basalen Theropoden- Dinosauriern, und durch die bis zu den Stirnbeinen reichenden Prämaxillen der Schnauze , wodurch die Nasenbeine an die Seiten der Schnauze gedrängt wurden. [ 9 ]
Paläoumwelt und Paläoökologie

Confuciusornis wurde in der Yixian- und der Jiufotang-Formation entdeckt und gehört zur Jehol-Biota . [ 68 ] Tuffstein macht aufgrund häufiger Vulkanausbrüche , die in der Yixian-Formation etwas häufiger auftraten, einen beträchtlichen Teil des Gesteins in beiden Formationen aus. Schiefer und Tonstein sind ebenfalls wichtige Bestandteile. Mithilfe der <sup> 40 </sup>Ar- und <sup>39</sup> Ar-Isotope konnte der Tuffstein detailliert datiert werden. Dies ergab ein Alter von etwa 125 bis 120 Millionen Jahren für die Yixian-Formation und etwa 120,3 Millionen Jahren für die Jiufotang-Formation. [ 13 ] Die Fossilien wurden durch Überschwemmungen und vulkanische Ablagerungen begraben. Diese Art der Konservierung führte zu sehr flachen, fast zweidimensionalen Fossilien. [ 70 ] Die vulkanischen Schichten ermöglichten die Erhaltung verschiedener Weichteile, wie beispielsweise detaillierter Federabdrücke. Eine Studie aus dem Jahr 2010, die Sauerstoffisotope in Reptilienknochen der Formation untersuchte, ergab, dass viele Formationen Ostasiens, darunter auch die Yixian-Formation, ein kühl- gemäßigtes Klima aufwiesen . Die mittlere Lufttemperatur der Yixian-Formation wurde auf 10 °C ± 4 °C geschätzt. Fossilien von Xenoxylon , einer Holzart, die aus gemäßigten Gebieten jener Zeit bekannt ist, wurden in der gesamten Region gefunden. Zudem fehlen wärmebedürftige Reptilien wie Krokodile . [ 71 ]
Der Großteil der Jehol-Flora wurde in der unteren Yixian-Formation entdeckt. Diese Flora umfasst die meisten Gruppen mesozoischer Pflanzen, darunter Moose , Bärlappgewächse , Schachtelhalme , Farne , Samenfarne , Czekanowskiales , Ginkgos , Cycadeen , Gnetales , Nadelbäume und einige wenige Blütenpflanzen . Zur Fauna der Jehol-Biota gehören Ostrakoden , Schnecken , Muscheln , Insekten , Fische , Salamander , [ 70 ] Säugetiere , Eidechsen , Choristoderen , Flugsaurier und Dinosaurier (einschließlich Vögel). [ 13 ] Diese Fossilien sind außergewöhnlich gut erhalten. Dinosaurierfossilien weisen häufig Filamente und Federabdrücke und mitunter sogar Pigmentierungen auf, wie beispielsweise bei Microraptor (einem Luftjäger der Jiufotang-Formation), [ 72 ] Psittacosaurus (einem kleinen Ceratopsier, der in beiden Formationen weit verbreitet war), [ 73 ] und Sinosauropteryx (einem Compsognathiden und einem der ersten Dinosaurier, die in der Yixian-Formation gefunden wurden). [ 74 ] Weitere gefiederte Dinosaurier der Jehol-Biota sind der große Compsognathide Sinocalliopteryx gigas , von dem ein Exemplar mit Knochen von Confuciusornis im Bauchraum entdeckt wurde , [ 75 ] der kleine pflanzenfressende Oviraptorosaurier Caudipteryx [ 13 ] und der große Tyrannosauroid Yutyrannus , alle aus der Yixian- Formation . [ 76 ] Die Vögel von Jehol sind durch mehr als 20 Gattungen vertreten, darunter basale Avialae (wie Confucisornis , Jeholornis und Sapeornis ), abgeleitetere Enantiornithes (wie Eoenantiornis , Longirostravis , Sinornis , Boluochia und Longipteryx ) und noch weiter abgeleiteteOrnithurinen (wie Liaoningornis , Yixianornis und Yanornis ). [ 13 ]
Siehe auch
Referenzen
- ^ Wang R, Hu D, Zhang M, Wang S, Zhao Q, Sullivan C, Xu X (2022). „Ein neuer Confuciusornithiden-Vogel mit sekundärer Epiphysenverknöcherung offenbart phylogenetische Veränderungen im Flugmodus der Confuciusornithiden“ . Communications Biology . 5 (1) 1398. doi : 10.1038/s42003-022-04316-6 . PMC 9772404. PMID 36543908 .
- ^ Ivanov, M., Hrdlickova, S. & Gregorova, R. (2001) Die vollständige Enzyklopädie der Fossilien. Rebo Publishers, Niederlande. S. 312
- ^ Xiaoting Zheng; Jingmai K. O'Connor; Xiaoli Wang; Yanhong Pan; Yan Wang; Min Wang; Zhonghe Zhou (2017). „Außergewöhnliche Weichteilerhaltung in einem neuen Exemplar von Eoconfuciusornis und ihre biologischen Implikationen“ . National Science Review . 4 (3): 441–452 . doi : 10.1093/nsr/nwx004 .
- Xu , X.; Norell, M. A. (2006). „Nicht-aviäre Dinosaurierfossilien aus der Jehol-Gruppe der Unterkreide im westlichen Liaoning, China“. Geological Journal . 41 ( 3–4 ): 419–437 . Bibcode : 2006GeolJ..41..419X . doi : 10.1002/gj.1044 . S2CID 32369205 .
- ^ a b Zhonghe, Zhou; Lianhai, Hou (2002). „Die Entdeckung und Erforschung mesozoischer Vögel in China“. In: Luis M. Chiappe; Lawrence M. Witmer (Hrsg.). Mesozoische Vögel: Über den Köpfen der Dinosaurier . Berkeley/Los Angeles/London: University of California Press. S. 160–183 . ISBN 0-520-20094-2Die
- ^ a b Zhou, Z. (1995). „Die Entdeckung von Vögeln aus der frühen Kreidezeit in China“. Acta Palaeornithologica . 181 : 9– 22.
- ^ a b Hou, L.; Zhou, Z.; Gu, Y.; Zhang, H. (1995). " Confuciusornis sanctus , ein neuer Sauriervogel aus dem späten Jura Chinas". Chinese Science Bulletin . 40 (18): 1545–1551 .
- ^ Chiappe, Luis M. (1995). „Die ersten 85 Millionen Jahre der Vogelevolution“. Nature . 378 (6555): 349–355 . Bibcode : 1995Natur.378..349C . doi : 10.1038/378349a0 . S2CID 4245171 .
- ^ a b c d e f g h i j k l m n o p q r s t u Chiappe , Luis M., Shu-An, Ji, Qiang, Ji, Norell, Mark A. (1999) "Anatomie und Systematik der Confuciusornithidae (Theropoda:Aves) aus dem späten Mesozoikum Nordostchinas" "Bulletin of the American Museum of Natural History Nr. 242 89 S.
- ^ a b c d Chiappe, Luis M.; Qingjin, Meng (2016). Birds of Stone: Chinese Avian Fossils from the Age of Dinosaurs . JHU Press. ISBN 978-1-4214-2024-0Die
- ^ a b c d Wang, X.-L.; Zhou, Z.-H. (2008). „Mesozoisches Pompeji“ . In: Chang, M.-M.; Chen, P.-J.; Wang, Y.-Q.; Wang, Y.; Miao, D.-S. (Hrsg.). Die Jehol-Fossilien: Die Entstehung gefiederter Dinosaurier, Schnabelvögel und Blütenpflanzen (2. Aufl.). Amsterdam: Academic Press. S. 19–38 . ISBN 978-0-12-374173-8Die
- ^ a b c Zhou, Z; Hou, L. (1998). " Confuciusornis and the early evolution of birds". Vertebrata PalAsiatica . 36 (2): 136– 146.
- Zhou, Z. (2006). „ Evolutionäre Radiation der Jehol-Biota: chronologische und ökologische Perspektiven“ . Geological Journal . 41 ( 3–4 ) : 377–393 . Bibcode : 2006GeolJ..41..377Z . doi : 10.1002/gj.1045 .
- ^ a b Zheng, X.; Xu, X.; Zhou, Z.; Miao, D.; Zhang, F. (2010). „Kommentar zu „Schmale Primärfederachsen bei Confuciusornis und Archaeopteryx deuten auf schlechte Flugfähigkeit hin“ . Science . 330 (6002): 320, Antwort des Autors 320. Bibcode : 2010Sci...330..320Z . doi : 10.1126/science.1193223 . PMID 20947746 .
- ^ a b c d e Chiappe, LM; Marugan-Lobon, J.; Ji, S.; Zhou, Z. (2008). „ Lebensgeschichte eines basalen Vogels: Morphometrie des frühkretazischen Confuciusornis “ . Biology Letters . 4 (6): 719–723 . doi : 10.1098/rsbl.2008.0409 . PMC 2614169. PMID 18832054 .
- ^ Wang X, Zhang F, Xu X, Wang Y, Gu G (2000). „Taphonomie und Massensterben von Confuciusornis und gefiederten Dinosauriern an den Fundstätten Sihetun und Zhangjiagou im westlichen Liaoning, China“. Vertebrata PalAsiatica . 38 (Suppl.): 32.
- ^ a b Hou, L. (1997). Mesozoische Vögel Chinas (PDF) (in Chinesisch). Übersetzt von Downs, W. Phoenix Valley Provincial Aviary of Taiwan. Archiviert (PDF) vom Original am 10.03.2021 . Abgerufen am 19.12.2018 .
- ^ a b Li, D.; Sulliven, C.; Zhou, Z.; Zhang, Z. (2010). „Basale Vögel Chinas: ein kurzer Überblick“. Chinese Birds . 1 (2): 83–96 . Bibcode : 2010AvRes...1...83L . doi : 10.5122/cbirds.2010.0002 . S2CID 84976296 .
- ^ a b c Hou, L.; Martin, LD; Zhou, Z.; Feduccia, A.; Zhang, F. (1999). „Ein diapsider Schädel bei einer neuen Art des Urvogels Confuciusornis “. Nature . 399 (6737): 679–682 . Bibcode : 1999Natur.399..679H . doi : 10.1038/21411 . S2CID 4402195 .
- ^ a b c d e f Marugán-Lobón, Jesús; Chiappe, Luis M.; Ji, Shu'an; Zhou, Zhonghe; Chunling, Gao; Hu, Dongyu; Meng, Qinjing (2011). „Quantitative Muster morphologischer Variation im Blinddarmskelett des frühen Kreidevogels Confuciusornis“. Zeitschrift für Systematische Paläontologie . 9 (1): 91– 101. Bibcode : 2011JSPal...9...91M . doi : 10.1080/14772019.2010.517786 . S2CID 85269014 .
- Zhang , Z.; Gao, C.; Meng, Q.; Liu, J.; Hou, L.; Zheng, G. (2009). „Diversifizierung einer Vogelgattung der frühen Kreidezeit: Belege aus einer neuen Art von Confuciusornis aus China“. Journal of Ornithology . 150 (4): 783–790 . Bibcode : 2009JOrni.150..783Z . doi : 10.1007/s10336-009-0399-x . S2CID 21418230 .
- ^ Li, L. (2010). „[Chinesisch] [Eine neue Art von Confuciusornis aus der Unterkreide von Jianchung, Liaoning, China]“. Global Geology . 29 (2): 183–187 .
- ^ Wang, M.; O'Connor, J.; Zhou, ZH (20. Januar 2019). „Eine taxonomische Revision der Confuciusornithiformes (Aves: Pygostylia)“ . Vertebrata PalAsiatica . 57 (1): 1–37 . doi : 10.19615/j.cnki.1000-3118.180530 . Archiviert vom Original am 14. Juli 2022. Abgerufen am 14. Juli 2022 .
- Holtz , Thomas R. Jr.; Rey, Luis V. (2007). Dinosaurier: Die umfassendste und aktuellste Enzyklopädie für Dinosaurier-Fans jeden Alters . New York: Random House. ISBN 978-0-375-82419-7Die
- Nudds , RL ; Dyke, GJ (2010). „ Schmale Primärfederachsen bei Confuciusornis und Archaeopteryx deuten auf geringe Flugfähigkeit hin“. Science . 328 ( 5980 ): 887–9 . Bibcode : 2010Sci...328..887N . doi : 10.1126/science.1188895 . PMID 20466930. S2CID 12340187 .
- ^ a b Paul, GS (2010). „Kommentar zu ‚Schmale Primärfederachsen bei Confuciusornis und Archaeopteryx deuten auf schlechte Flugfähigkeit hin.‘“" . Science . 330 (6002): 320. Bibcode : 2010Sci...330..320P . doi : 10.1126/science.1192963 . PMID 20947747 .
- Martin, L. D .; Zhou, Z.; Hou, L.; Feduccia, A. (1998). „ Confuciusornis sanctus im Vergleich zu Archaeopteryx lithographica “. Naturwissenschaften . 85 ( 6 ): 286–289 . Bibcode : 1998NW.....85..286M . doi : 10.1007/ s001140050501 . S2CID 10934480 .
- ^ a b c Elzanowski, Andrzej; Peters, D. Stefan; Mayr, Gerald (2018). „Schädelmorphologie der Vögel der frühen Kreidezeit“. Journal of Vertebrate Paleontology . 38 (2) e1439832. doi : 10.1080/02724634.2018.1439832 . S2CID 90118265 .
- ^ a b Mesozoische Vögel: Über den Köpfen der Dinosaurier . University of California Press. 05.12.2002. S. 160–183 . ISBN 978-0-520-20094-4Die
- Falk , A.; O'Connor, J.; Wang, M.; Zhou, Z. (2019). „Zur Erhaltung des Schnabels bei Confuciusornis (Aves: Pygostylia)“ . Diversity . 11 (11): 212. Bibcode : 2019Diver..11..212F . doi : 10.3390/d11110212 .
- Zheng , X.; O'Connor, J.; Wang, Y.; Wang, X.; Yin, X.; Zhang, X.; Zhou, Z. (2020). „Neue Erkenntnisse zum Keratinschnabel von Confuciusornis (Aves: Pygostylia) anhand zweier neuer Exemplare“ . Frontiers in Earth Science . 8, 367. Bibcode : 2020FrEaS...8..367Z . doi : 10.3389/feart.2020.00367 . S2CID: 221713024 .
- ^ Senter, P. (2006). „Schulterblattorientierung bei Theropoden und basalen Vögeln und der Ursprung des Flügelschlags“ (PDF) . Acta Palaeontologica Polonica . 51 (2): 305–313 . Archiviert vom Original (PDF) am 26.06.2007 . Abgerufen am 22.08.2006 .
- Falk , AR; Kaye, TG; Zhou, Z.; Burnham, DA (2016). „ Laserfluoreszenz beleuchtet das Weichgewebe und die Lebensweise des frühkretazischen Vogels Confuciusornis“ . PLOS ONE . 11 ( 12 ) e0167284. Bibcode : 2016PLoSO..1167284F . doi : 10.1371/journal.pone.0167284 . PMC 5156344. PMID 27973609 .
- ^ a b c Peters, DS; Ji, Q. (1999). „Musste Confuciusornis klettern?“ J. Ornithol . 140 (1): 41– 50. Bibcode : 1999JOrn..140...41P . doi : 10.1007/BF02462087 . S2CID 9489758 .
- ^ Zhang, Fucheng; Kearns, Stuart L.; Orr, Patrick J.; Benton, Michael J.; Zhou, Zhonghe; Johnson, Diane; Xu, Xing; Wang, Xiaolin (2010). „Fossilisierte Melanosomen und die Farbe von Dinosauriern und Vögeln der Kreidezeit“ ( PDF) . Nature . 463 (7284): 1075–8 . Bibcode : 2010Natur.463.1075Z . doi : 10.1038/nature08740 . PMID 20107440. S2CID 205219587. Archiviert (PDF) vom Original am 2. Februar 2014. Abgerufen am 7. Dezember 2019 .
- ^ Wogelius, RA; Manning, PL; Barden, HE; Edwards, NP; Webb, SM; Sellers, WI; Taylor, KG; Larson, PL; Dodson, P; You, H; Da-qing, L.; Bergmann, U. (2011). „ Spurenmetalle als Biomarker für das Eumelanin-Pigment im Fossilienbestand“ . Science . 333 (6049): 1622–1626 . Bibcode : 2011Sci...333.1622W . doi : 10.1126/science.1205748 . PMID 21719643. S2CID 206534048 .
- ^ Li, Quanguo; Clarke, Julia A.; Gao, Ke-Qin; Peteya, Jennifer A.; Shawkey, Matthew D. (2018-11-02). „ Aufwendige Federzeichnung bei einem Vogel der Kreidezeit“ . PeerJ . 6 e5831. doi : 10.7717/peerj.5831 . ISSN 2167-8359 . PMC 6216952. PMID 30405969 .
- ^ Chiappe, L. (1997). „Der chinesische Frühvogel Confuciusornis und der paraphyletische Status der Sauriurae“. Journal of Vertebrate Paleontology . 17 (3): 1–93 . doi : 10.1080/02724634.1997.10011028 .
- ^ Ji, Q. (2001). [Chinesisch] „Neue Fortschritte in der Erforschung des Urvogels Confuciusornis “. Geological Science and Technology Information . 20 : 30–34 .
- ^ L. M. Chiappe (2002) „Basale Vogelphylogenie: Probleme und Lösungen“. In: L. M. Chiappe und L. M. Witmer (Hrsg.), Mesozoische Vögel: Über den Köpfen der Dinosaurier . University of California Press, Berkeley, S. 448–472.
- ^ Clarke, Julia A., Norell, Mark A. (2002) „Die Morphologie und phylogenetische Stellung von Apsaravis ukhaana aus der späten Kreidezeit der Mongolei“ . American Museum Novitates , Nr. 3387, American Museum of Natural History, New York, NY 10024.
- ^ a b Clarke, JA; Zhou, Z; Zhang, F (2006). „Einblicke in die Evolution des Vogelflugs anhand einer neuen Klade frühkretazischer Ornithurinen aus China und der Morphologie von Yixianornis grabaui “ . Journal of Anatomy . 208 (3): 287–308 . doi : 10.1111 / j.1469-7580.2006.00534.x . PMC 2100246. PMID 16533313 .
- O'Connor , Jingmai K.; Wang, Xuri; Chiappe, Luis M.; Gao, Chunling; Meng, Qingjin; Cheng, Xiaodong; Liu, Jinyuan (2009). „Phylogenetische Unterstützung für eine spezialisierte Klade kreidezeitlicher Enantiornithes-Vögel mit Informationen einer neuen Art“. Journal of Vertebrate Paleontology . 29 (1): 188–204 . Bibcode : 2009JVPal..29..188O . doi : 10.1080/02724634.2009.10010371 . JSTOR 20491078. S2CID 196607241 .
- Schmitz , L.; Motani, R. (2011). „Nachtaktivität bei Dinosauriern, abgeleitet aus der Morphologie des Skleralrings und der Orbita“. Science . 332 ( 6030): 705–708 . Bibcode : 2011Sci...332..705S . doi : 10.1126/science.1200043 . PMID 21493820. S2CID 33253407 .
- ^ Zhou Z. und Farlow, J.O. (2001) „Flugfähigkeit und -gewohnheiten von Confuciusornis “. In: Gauthier und Gall (Hrsg.). Neue Perspektiven auf den Ursprung und die frühe Evolution der Vögel: Tagungsband des internationalen Symposiums zu Ehren von John H. Ostrom . Peabody Museum of Natural History. Yale University, New Haven. S. 237–254.
- ^ „Senter, 2006 von Felipe Elias - Issuu“ . issuu.com . 24. Januar 2010. Abgerufen am 25. März 2022 .
- ^ Hembree, D. (1999). „Neubewertung der Körperhaltung und der Krallen von Confuciusornis “. Journal of Vertebrate Paleontology . 19 : 50A. doi : 10.1080/02724634.1999.10011202 .
- ^ Nudds, RL; Dyke G. (2010). „Antwort auf Kommentare zu „Schmale Primärfederachsen bei Confuciusornis und Archaeopteryx deuten auf schlechte Flugfähigkeit hin“ . Science . 330 (6002): 320. Bibcode : 2010Sci...330..320N . doi : 10.1126/science.1193474 .
- ^ Zhou, Z.; Barrett, PM; Hilton, J. (2003). „Ein außergewöhnlich gut erhaltenes Ökosystem der Unterkreide“. Nature . 421 (6925): 807–814 . Bibcode : 2003Natur.421..807Z . doi : 10.1038/nature01420 . PMID 12594504. S2CID 4412725 .
- ^ Knell, Robert J.; Naish, Darren; Tomkins, Joseph L.; Hone, David W. E. (2013). „Sexuelle Selektion bei prähistorischen Tieren: Nachweis und Implikationen“. Trends in Ecology & Evolution . 28 (1): 38–47 . Bibcode : 2013TEcoE..28...38K . doi : 10.1016/j.tree.2012.07.015 . PMID 22954658 .
- ^ a b Chinsamy, A.; Chiappe, LM; Marugán-Lobón, JS; Chunling, G.; Fengjiao, Z. (2013). „Geschlechtsidentifikation des mesozoischen Vogels Confuciusornis sanctus “ . Naturkommunikation . 4 1381. Bibcode : 2013NatCo...4.1381C . doi : 10.1038/ncomms2377 . PMID 23340421 .
- Peters, Winfried S.; Peters, Dieter Stefan (2009). „ Lebensgeschichte , Geschlechtsdimorphismus und ‚Zierfedern‘ beim mesozoischen Vogel Confuciusornis sanctus “ . Biology Letters . 5 ( 6): 817–820 . doi : 10.1098/rsbl.2009.0574 . PMC 2828012. PMID 19776067 .
- ^ a b Kaiser, Gary W. (2010). Der innere Vogel: Anatomie und Evolution . UBC Press. ISBN 978-0-7748-1344-0Die
- ^ a b Dyke, Gareth J.; Kaiser, Gary W. (2010). „Eine entwicklungsbedingte Einschränkung überwinden: Eigröße und Vogelevolution“ . Records of the Australian Museum . 62 (1): 207–216 . doi : 10.3853/j.0067-1975.62.2010.1547 .
- ^ Charles Deeming, D.; Mayr, Gerald (2018). „Beckenmorphologie deutet darauf hin, dass frühe mesozoische Vögel zu schwer waren, um ihre Eier durch Kontaktbrüten zu bebrüten“ ( PDF) . Journal of Evolutionary Biology . 31 (5): 701–709 . doi : 10.1111/jeb.13256 . PMID 29485191. S2CID 3588317. Archiviert vom Original (PDF) am 2. Juni 2020. Abgerufen am 10. Januar 2021 .
- ^ Varricchio, David J.; Jackson, Frankie D. (2016). „Fortpflanzung bei mesozoischen Vögeln und Evolution des modernen Fortpflanzungsmodus der Vögel“ . The Auk . 133 (4): 654–684 . doi : 10.1642/AUK-15-216.1 .
- ^ a b Zhang, F.; Hou, L.; Ouyang, L. (1998). „Osteologische Mikrostruktur von Confuciusornis : Vorläufiger Bericht“. Vertebrata PalAsiatica . 36 : 126–135 .
- ^ Zhang, F.-C.; Xu, X.; Lü, J.; Ouyang, L. (1999). „Einige mikrostrukturelle Unterschiede zwischen Confuciusornis , Alligator und einem kleinen Theropoden-Dinosaurier und ihre Implikationen“. Paleoworld : 296–308 .
- ^ Chinsamy, Anusuya; Chiappe, Luis M.; Dodson, Peter (1994). „Wachstumsringe bei mesozoischen Vögeln“. Nature . 368 (6468): 196–197 . Bibcode : 1994Natur.368..196C . doi : 10.1038/368196a0 . S2CID 4331331 .
- ^ Padian, Kevin; de Ricqlès, Armand J.; Horner, John R. (2001). „Dinosaurier-Wachstumsraten und Vogelursprung“. Nature . 412 ( 6845): 405–408 . Bibcode : 2001Natur.412..405P . doi : 10.1038/35086500 . ISSN 1476-4687 . PMID 11473307. S2CID 4335246 .
- ^ ein b Ricqlès, De; Padian, K.; Horner, JR; Alamm, ET; Myhrvold, N. (2003). „Osteohistologie von Confuciusornis sanctus (Theropoda: Aves)“. Zeitschrift für Wirbeltierpaläontologie . 23 (2): 373– 386. doi : 10.1671/0272-4634(2003)023[0373:oocsta]2.0.co;2 . S2CID 84936431 .
- ^ a b c Chiappe, LM; Marugán-Lobón, J.; Chinsamy, A. (2010). „Paläobiologie des Kreidezeitvogels Confuciusornis : Ein Kommentar zu Peters & Peters (2009)“ . Biology Letters . 6 (4): 529–530 . doi : 10.1098/rsbl.2009.1057 . PMC 2936210. PMID 20236961 .
- ^ Bourdon, Estelle; Castanet, Jacques; De Ricqlès, Armand; Scofield, Paul; Tennyson, Alan; Lamrous, Hayat; Cubo, Jorge (2009). „Knochenwachstumsmarken belegen verlängertes Wachstum beim Neuseeländischen Kiwi (Aves, Apterygidae)“ . Biology Letters . 5 (5): 639–642 . doi : 10.1098 / rsbl.2009.0310 . PMC 2781955. PMID 19515655 .
- ^ a b Peters, Winfried S.; Peters, Dieter Stefan (2010). „Sexual size dimorphism is the most consistent explanation for the body size spectrum of Confuciusornis sanctus “ . Biology Letters . 6 (4): –20100173. doi : 10.1098/rsbl.2010.0173 . PMC 2936223 .
- ^ O'Connor, Jingmai; Erickson, Gregory M.; Norell, Mark; Bailleul, Alida M.; Hu, Han; Zhou, Zhonghe (2018). „Markknochen in einem Enantiornithes-Vogel der frühen Kreidezeit und Diskussion über seine Identifizierung in Fossilien“ . Nature Communications . 9 (1): 5169. Bibcode : 2018NatCo...9.5169O . doi : 10.1038/s41467-018-07621- z . PMC 6281594. PMID 30518763 .
- ^ Elzanowski, A. (2002) „Biologie basaler Vögel und der Ursprung des Vogelflugs“. In: Zhou Z., Zhang F. (Hrsg.) Tagungsband des 5. Symposiums der Gesellschaft für Vogelpaläontologie und Evolution, Peking, 1.–4. Juni 2000. Science, Peking, S. 211–226.
- ^ Zhou, Z.; Zhang, F. (2003). „Anatomie des Urvogels Sapeornis chaoyangensis aus der Unterkreide von Liaoning, China“. Canadian Journal of Earth Sciences . 40 (5): 731–747 . Bibcode : 2003CaJES..40..731Z . doi : 10.1139/e03-011 .
- ^ a b Dalsätt, J.; Zhou, Z.; Zhang, F.; Ericson, PGP (2006). „Nahrungsreste in Confuciusornis sanctus deuten auf eine Fischernährung hin“. Naturwissenschaften . 93 (9): 444– 6. Bibcode : 2006NW.....93..444D . doi : 10.1007/s00114-006-0125-y . PMID 16741705 . S2CID 14377499 .
- ^ Zinoviev, AV (2009). „Ein Versuch zur Rekonstruktion der Lebensweise der Confuciusornithiden (Aves, Confuciusornithiformes)“. Paleontological Journal . 43 (4): 444–452 . Bibcode : 2009PalJ...43..444Z . doi : 10.1134/S0031030109040145 . S2CID 85359766 .
- Rogers , Christopher S.; Hone, David W. E.; McNamara, Maria E.; Zhao, Qi; Orr, Patrick J.; Kearns, Stuart L.; Benton, J. Michael (2015). „ Das chinesische Pompeji? Tod und Vernichtung der Dinosaurier in der frühen Kreidezeit von Lujiatun, Nordostchina“ . Palaeogeography, Palaeoclimatology, Palaeoecology . 427 : 89–99 . Bibcode : 2015PPP...427...89R . doi : 10.1016/j.palaeo.2015.03.037 .
- Amiot , R.; Wang, X.; Zhou, Z.; Xiaolin Wang, X.; Buffetaut, E.; Lécuyer, C.; Ding, Z.; Fluteau, F.; Hibino, T.; Kusuhashi, N.; Mo, J.; Suteethorn, V.; Yuanqing Wang, Y.; Xu, X.; Zhang, F. (2011). „Sauerstoffisotope ostasiatischer Dinosaurier belegen außergewöhnlich kalte Klimate der frühen Kreidezeit“ . Proceedings of the National Academy of Sciences . 108 (13): 5179–5183 . Bibcode : 2011PNAS..108.5179A . doi : 10.1073/pnas.1011369108 . PMC 3069172 . PMID 21393569 .
- ^ Li, Q.; Gao, K.-Q.; Meng, Q.; Clarke, JA; Shawkey, MD; D'Alba, L.; Pei, R.; Ellision, M.; Norell, MA; Vinther, J. (2012). „Rekonstruktion des Mikroraptors und die Entwicklung des schillernden Gefieders“. Wissenschaft . 335 (6073): 1215–1219 . Bibcode : 2012Sci...335.1215L . doi : 10.1126/science.1213780 . PMID 22403389 . S2CID 206537426 .
- Vinther , Jakob; Nicholls, Robert; Lautenschlager, Stephen; Pittman, Michael; Kaye, Thomas G.; Rayfield, Emily; Mayr, Gerard; Cuthill, Innes C. (2016). „3D-Tarnung bei einem ornithischischen Dinosaurier“ . Current Biology . 26 (18): 2456–2462 . Bibcode : 2016CBio...26.2456V . doi : 10.1016 / j.cub.2016.06.065 . PMC 5049543. PMID 27641767 .
- ^ Smithwick, FM; Nicholls, R.; Cuthill, IC; Vinther, J. (2017). „Gegenschattierung und Streifen im Theropoden-Dinosaurier Sinosauropteryx enthüllen heterogene Lebensräume in der Jehol-Biota der frühen Kreidezeit“ . Current Biology . 27 (21): 3337–3343.e2. Bibcode : 2017CBio...27E3337S . doi : 10.1016/j.cub.2017.09.032 . hdl : 1983/8ee95b15-5793-42ad-8e57-da6524635349 . PMID 29107548 .
- Xing , L.; Bell, P. R.; Persons, W. S. (2012). „IV, Ji S., Miyashita T., Burns M. E. et al. (2012) Abdominal Contents from Two Large Early Cretaceous Compsognathids (Dinosauria: Theropoda) Demonstrate Feeding on Confuciusornithids and Dromaeosaurids“ . PLOS ONE . 7 (8) : e44012. doi : 10.1371/journal.pone.0044012 . PMC 3430630. PMID 22952855 .
- Xu , X.; Wang, K.; Zhang, K.; Ma, Q.; Xing, L.; Sullivan, C.; Hu, D.; Cheng, S.; Wang, S.; et al. (2012). „Ein gigantischer gefiederter Dinosaurier aus der Unterkreide Chinas“ ( PDF) . Nature . 484 (7392): 92–95 . Bibcode : 2012Natur.484...92X . doi : 10.1038/nature10906 . PMID 22481363. S2CID 29689629. Archiviert vom Original (PDF) am 17. April 2012.
Externe Links
- Gut erhaltenes Fossil aus der Jiufotang-Formation, das Confuciusornis zugeordnet wird