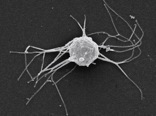
Capsaspora ist eine monotypische Gattung von Protisten, die nur die Art Capsaspora owczarzaki umfasst. C. owczarzaki ist ein einzelliger Eukaryot, der als einer der nächsten einzelligen Verwandten der Tiere eine Schlüsselposition in der Phylogenie für das Verständnis des Ursprungs der Vielzelligkeit der Tiere einnimmt. Zusammen mit Ministeria vibrans gehört er zum Filasterea- Klade. Dieser amöboide Protist war entscheidend für die Aufklärung der Natur des einzelligen Vorfahren der Tiere, der sich als deutlich komplexer erwiesen hat als bisher angenommen. [ 3 ] [ 4 ] [ 5 ]
Beschreibung
C. owczarzaki wurde ursprünglich als amöbenartiger „Symbiont“ der Süßwasserschnecke Biomphalaria glabrata beschrieben . [ 6 ] [ 7 ] Die Amöben wurden aus der Hämolymphe von Schnecken gewonnen, die ursprünglich in Puerto Rico gesammelt wurden.
Der Lebenszyklus von C. owczarzaki umfasst drei verschiedene Stadien mit drei verschiedenen Zelltypen, wie 2017 beschrieben wurde [ 8 ]. Unter Kulturbedingungen kriechen die Filopodienzellen von C. owczarzaki am Substrat haftend und vermehren sich aktiv bis zum Ende der exponentiellen Wachstumsphase. Anschließend lösen sich die Zellen ab, ziehen die verzweigten Filopodien zurück und verkapseln sich. Während dieser zystischen Phase findet keine Zellteilung statt. Alternativ können sich die Amöben durch unbekannte Faktoren aktiv zusammenlagern und eine vielzellige, aggregative Struktur bilden. Dabei sezernieren sie ein unstrukturiertes extrazelluläres Material, das den direkten Zell-zu-Zell-Kontakt zu verhindern scheint.
C. owczarzaki- Zellen im Filopodienstadium wurden als 3 bis 5 μm große Amöben mit einem Kern von 1/3 bis 1/2 des Zelldurchmessers (mit zentralem Nukleolus), langen, verzweigten Filopodien, Mitochondrien mit abgeflachten Cristae, zahlreichen Phagosomen, Lipidvakuolen, Glykogenkörnern und einem Golgi-Apparat beschrieben. [ 6 ] [ 7 ] Zystenzellen messen 4 bis 5 μm und besitzen eine Doppelwand : die äußere Wand ist dünn, unregelmäßig und locker anliegend, die innere dicker und glatt. [ 9 ]
Taxonomie

C. owczarzaki gehört zusammen mit Ministeria vibrans zum Filasterea- Klade. [ 10 ] [ 2 ] Diese Gruppe ist die Schwestergruppe eines Klades, der Metazoa und Choanoflagellata umfasst , welche zusammen die Filozoa bilden . [ 10 ] [ 2 ] [ 11 ] C. owczarzaki wurde ursprünglich als Nucleariide beschrieben . [ 7 ] Spätere molekulare ribosomale Phylogenien ordneten C. owczarzaki jedoch näher an den Tieren als den übrigen Nucleariiden ein. [ 12 ] [ 13 ] [ 14 ] Schließlich zeigte eine Multigen-Phylogenieanalyse mit mehreren Opisthokonten eindeutig, dass C. owczarzaki kein Nucleariid, sondern Teil der Holozoa ist . [ 15 ] [ 16 ] Dies wurde später durch phylogenomische Analysen bestätigt, [ 17 ] [ 18 ] eine davon [ 18 ] positionierte sie als Schwestergruppe von Ministeria innerhalb des Filasterea-Klades, der wiederum die Schwestergruppe von Choanoflagellatea und Metazoa ist. [ 19 ] [ 20 ]
Anwendungen
C. owczarzaki ist von wissenschaftlichem Interesse, da es zu den engsten einzelligen Verwandten vielzelliger Tiere zählt. Sein Genom wurde kürzlich sequenziert und weist mehrere Gene auf, die an der Vielzelligkeit von Metazoen beteiligt sind , wie beispielsweise Integrine [ 21 ] , Metazoen-Transkriptionsfaktoren [ 22 ] und Proteintyrosinkinasen [ 23 ] . Darüber hinaus ist es für die menschliche Gesundheit relevant, da sein Wirt, die Schnecke Biomphalaria glabrata , gleichzeitig Zwischenwirt des Saugwurms Schistosoma mansoni ist , dem Erreger der weit verbreiteten Schistosomiasis beim Menschen. C. owczarzaki parasitiert nicht nur den Zwischenwirt von S. mansoni , sondern befällt und tötet auch die Sporozysten des Saugwurms in der Schnecke [ 24 ] .
Referenzen
- ^ Hertel LA; Bayne CJ; Loker, ES (August 2002), „Der aus drei Stämmen der Lungenschnecke Biomphalaria glabrata isolierte Symbiont Capsaspora owczarzaki , nov. gen. nov. sp., ist mit Mitgliedern der Mesomycetozoea verwandt“, International Journal for Parasitology , 32 (9): 1183–91 , doi : 10.1016/S0020-7519(02)00066-8 , PMID 12117501
- ^ a b c Shalchian-Tabrizi, K; Minge, MA; Espelund, M; Orr, R; Ruden, T; Jakobsen, KS; Cavalier-Smith, T (2008). „Multigene Phylogenie der Choanozoa und der Ursprung der Tiere“ . PLOS ONE . 3 (5) e2098. Bibcode : 2008PLoSO...3.2098S . doi : 10.1371/journal.pone.0002098 . PMC 2346548. PMID 18461162 .
- ^ Suga, Hiroshi; Chen, Zehua; Mendoza, Alex de; Sebé-Pedrós, Arnau; Brown, Matthew W.; Kramer, Eric; Carr, Martin; Kerner, Pierre; Vervoort, Michel (14.08.2013). „Das Capsaspora-Genom enthüllt eine komplexe einzellige Vorgeschichte der Tiere“ . Nature Communications . 4 : 2325. Bibcode : 2013NatCo...4.2325S . doi : 10.1038/ncomms3325 . ISSN 2041-1723 . PMC 3753549. PMID 23942320 .
- ^ Sebé-Pedrós, Arnau; Ballaré, Cecilia; Parra-Acero, Helena; Chiva, Cristina; Tena, Juan J.; Sabidó, Eduard; Gómez-Skarmeta, José Luis; Croce, Luciano Di; Ruiz-Trillo, Iñaki (2016). „Das dynamische regulatorische Genom von Capsaspora und der Ursprung der tierischen Vielzelligkeit“ . Zelle . 165 (5): 1224–1237 . doi : 10.1016/j.cell.2016.03.034 . PMC 4877666 . PMID 27114036 .
- ^ Sebé-Pedrós, Arnau; Peña, Marcia Ivonne; Capella-Gutiérrez, Salvador; Antó, Meritxell; Gabaldón, Toni; Ruiz-Trillo, Iñaki; Sabidó, Eduard (2016). „Hochdurchsatz-Proteomik enthüllt die einzelligen Wurzeln der Phosphosignalisierung und Zelldifferenzierung bei Tieren“ . Entwicklungszelle . 39 (2): 186–197 . doi : 10.1016/j.devcel.2016.09.019 . HDL : 10230/32237 . PMID 27746046 .
- ^ a b Stibbs, HH; Owczarzak, A.; Bayne, CJ; DeWan, P. (1979). „Schistosoma-Sporozysten abtötende Amöben, isoliert aus Biomphalaria glabrata“. Journal of Invertebrate Pathology . 33 (2): 159–170 . doi : 10.1016/0022-2011(79)90149-6 . PMID 501126 .
- Owczarzak , A.; Stibbs, HH; Bayne, CJ (1980). „Die Zerstörung von Schistosoma manson-Muttersporozysten in vitro durch aus Biomphalaria glabrata isolierte Amöben: eine ultrastrukturelle Studie“. J Invertebr Pathol . 35 ( 1 ): 26–33 . doi : 10.1016 / 0022-2011(80)90079-8 . PMID 7365267 .
- ^ Ferrer-Bonet M, Ruiz-Trillo I (11.09.2017). „Capsaspora owczarzaki“ . Curr Biol . 27 (17): R829– R830. ISSN 0960-9822 . Abgerufen am 06.09.2024 .
- ^ Sebe-Pedros, A. (2013) Der Ursprung der Vielzelligkeit von Metazoen, ein genomischer und funktioneller Ansatz. PhD UB, Facultat de Biologia, Departament de Genètica
- Torruella , G.; Derelle, R.; Paps, J.; Lang, F.; Roger, A .; Shalchian-Tabrizi, K.; Ruiz-Trillo, I. (2012). „ Phylogenetische Beziehungen innerhalb der Opisthokonta basierend auf phylogenomischen Analysen konservierter Einzelkopie-Proteindomänen“ . Molecular Biology and Evolution . 29 (2): 531–544 . doi : 10.1093 / molbev/msr185 . PMC 3350318. PMID 21771718 .
- Paps , J.; Medina-Chacon, L.; Marshall, W.; Suga, H.; Ruiz-Trillo, I. (2013). „Molekulare Phylogenie der Unikonta: Neue Erkenntnisse zur Stellung der Apusomonaden und Ancyromonaden sowie zu den internen Verwandtschaftsverhältnissen der Opisthokonten“ . Protist . 164 (1): 2–12 . doi : 10.1016/j.protis.2012.09.002 . PMC 4342546. PMID 23083534 .
- ^ Hertel, Lynn A.; Bayne, Christopher J.; Loker, Eric S. (01.08.2002). „Der aus drei Stämmen der Lungenschnecke Biomphalaria glabrata isolierte Symbiont Capsaspora owczarzaki, nov. gen. nov. sp., ist mit Mitgliedern der Mesomycetozoea verwandt.“ International Journal for Parasitology . 32 (9): 1183–1191 . doi : 10.1016/s0020-7519(02)00066-8 . ISSN 0020-7519 . PMID 12117501 .
- Zettler , LAA; Nerad, TA; O'Kelly, CJ; Sogin, ML (1. Mai 2001). „Die Nucleariiden-Amöben: Weitere Protisten an der Grenze zwischen Tier und Pilz“. The Journal of Eukaryotic Microbiology . 48 (3): 293–297 . doi : 10.1111/j.1550-7408.2001.tb00317.x . ISSN 1066-5234 . PMID 11411837. S2CID 44548329 .
- ^ Medina, Mónica; Collins, Allen G.; Taylor, John W.; Valentine, James W.; Lipps, Jere H.; Amaral-Zettler, Linda; Sogin, Mitchell L. (1. Juli 2003). „Phylogenie der Opisthokonta und die Evolution von Vielzelligkeit und Komplexität bei Pilzen und Metazoen“ . International Journal of Astrobiology . 2 (3): 203–211 . Bibcode : 2003IJAsB...2..203M . doi : 10.1017/S1473550403001551 . ISSN 1475-3006 .
- ^ Ruiz-Trillo, Iñaki; Inagaki, Yuji; Davis, Lesley A.; Sperstad, Sigmund; Landfald, Bjarne; Roger, Andrew J. (2004). „Capsaspora owczarzaki ist eine unabhängige Opisthokont-Linie“ . Aktuelle Biologie . 14 (22): R946 –R947. doi : 10.1016/j.cub.2004.10.037 . PMID 15556849 .
- ^ Ruiz-Trillo, Inaki; Lane, Christopher E.; Archibald, John M.; Roger, Andrew J. (01.09.2006). „Einblicke in den evolutionären Ursprung und die Genomarchitektur der einzelligen Opisthokonten Capsaspora owczarzaki und Sphaeroforma arctica“. Das Journal of Eukaryotic Microbiology . 53 (5): 379–384 . doi : 10.1111/j.1550-7408.2006.00118.x . ISSN 1066-5234 . PMID 16968456 . S2CID 24862220 .
- ^ Ruiz-Trillo, Iñaki; Roger, Andrew J.; Burger, Gertraud; Gray, Michael W.; Lang, B. Franz (01.04.2008). „Eine phylogenomische Untersuchung des Ursprungs von Metazoen“ . Molekularbiologie und Evolution . 25 (4): 664–672 . doi : 10.1093/molbev/msn006 . ISSN 1537-1719 . PMID 18184723 .
- ^ Shalchian - Tabrizi , Kamran; Minge, Marianne A.; Espelund, Mari; Orr, Russell; Ruden, Torgeir; Jakobsen, Kjetill S.; Cavalier-Smith, Thomas (07.05.2008). „Multigene Phylogenie von Choanozoa und die Herkunft der Tiere“ . PLUS EINS . 3 (5) e2098. Bibcode : 2008PLoSO...3.2098S . doi : 10.1371/journal.pone.0002098 . ISSN 1932-6203 . PMC 2346548 . PMID 18461162 .
- Torruella , G.; Derelle, R.; Paps, J.; Lang, BF; Roger, AJ; Shalchian-Tabrizi, K.; Ruiz-Trillo, I. (1. Februar 2012). „Phylogenetische Beziehungen innerhalb der Opisthokonta basierend auf phylogenomischen Analysen konservierter Einzelkopie-Proteindomänen“ . Molecular Biology and Evolution . 29 (2): 531–544 . doi : 10.1093/molbev/msr185 . ISSN 0737-4038 . PMC 3350318. PMID 21771718 .
- ^ Torruella, Guifré; Mendoza, Alex de; Grau-Bové, Xavier; Antó, Meritxell; Chaplin, Mark A.; Campo, Javier del; Eme, Laura; Pérez-Cordón, Gregorio; Whipps, Christopher M. (2015). „Phylogenomik enthüllt konvergente Entwicklung der Lebensstile bei nahen Verwandten von Tieren und Pilzen“ . Aktuelle Biologie . 25 (18): 2404–2410 . doi : 10.1016/j.cub.2015.07.053 . PMID 26365255 .
- ^ Sebe-Pedros, A.; Roger, A.; Lang, F.; King, N.; Ruiz-Trillo, I. (2010). „ Ursprung der Integrin-vermittelten Adhäsion und Signalübertragung“ . Proceedings of the National Academy of Sciences USA . 107 (22): 10142–7 . doi : 10.1073/pnas.1002257107 . PMC 2890464. PMID 20479219 .
- ^ Sebe-Pedros, A.; de Mendoza, A.; Lang, F.; Degnan, B.; Ruiz-Trillo, I. (2011). „ Unerwartetes Repertoire an Metazoen-Transkriptionsfaktoren im einzelligen Holozoen Capsaspora owczarzaki“ . Molecular Biology and Evolution . 28 (3): 1241–54 . doi : 10.1093/molbev/msq309 . PMC 4342549. PMID 21087945 .
- ^ Suga, H.; Dacre, M.; de Mendoza, A.; Shalchian-Tabrizi, K.; Manning, G.; Ruiz-Trillo, I. (2012). „Genomische Untersuchung von Prämetazoen zeigt tiefe Konservierung zytoplasmatischer Tyrosinkinasen und multiple Radiationen von Rezeptor-Tyrosinkinasen“. Science Signaling . 5 (222): ra35. doi : 10.1126/scisignal.2002733 . hdl : 10261/112779 . PMID 22550341. S2CID 27205070 .
- ^ Owczarzak, A.; Stibbs, H. H.; Bayne, C. J. (Januar 1980). „Die Zerstörung von Muttersporozysten von Schistosoma mansoni in vitro durch aus Biomphalaria glabrata isolierte Amöben: eine ultrastrukturelle Studie“. J. Invertebr. Pathol . 35 (1): 26–33 . doi : 10.1016/0022-2011(80)90079-8 . PMID 7365267 .