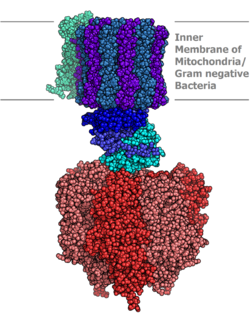
Die Elektronentransportkette ( ETK [ 1 ] ) ist eine Reihe von Proteinkomplexen und anderen Molekülen, die Elektronen von Elektronendonatoren zu Elektronenakzeptoren über Redoxreaktionen (gleichzeitige Reduktion und Oxidation) übertragen und diesen Elektronentransfer mit dem Transport von Protonen (H<sup> + </sup>-Ionen) durch eine Membran koppeln . Viele der Enzyme der Elektronentransportkette sind in die Membran eingebettet .
Der Elektronentransport durch die Elektronentransportkette ist ein exergonischer Prozess . Die Energie aus den Redoxreaktionen erzeugt einen elektrochemischen Protonengradienten , der die Synthese von Adenosintriphosphat (ATP) antreibt. Bei der aeroben Atmung endet der Elektronentransport mit molekularem Sauerstoff als finalem Elektronenakzeptor. Bei der anaeroben Atmung werden andere Elektronenakzeptoren, wie beispielsweise Sulfat , verwendet .
In der Elektronentransportkette werden die Redoxreaktionen durch die Differenz der freien Gibbs-Energie von Edukten und Produkten angetrieben. Die freie Energie, die bei der Umwandlung eines energiereicheren Elektronendonators und -akzeptors in energieärmere Produkte freigesetzt wird, während Elektronen von einem niedrigeren zu einem höheren Redoxpotential übertragen werden , wird von den Komplexen der Elektronentransportkette genutzt, um einen elektrochemischen Ionengradienten zu erzeugen. Dieser elektrochemische Gradient treibt die ATP-Synthese über die Kopplung mit der oxidativen Phosphorylierung mittels ATP-Synthase an . [ 2 ]
In eukaryotischen Organismen befindet sich die Elektronentransportkette, der Ort der oxidativen Phosphorylierung , in der inneren Mitochondrienmembran . Die bei Reaktionen von Sauerstoff und reduzierten Verbindungen wie Cytochrom c und (indirekt) NADH und FADH₂ freigesetzte Energie wird von der Elektronentransportkette genutzt, um Protonen in den Intermembranraum zu pumpen und so den elektrochemischen Gradienten über der inneren Mitochondrienmembran zu erzeugen . In photosynthetischen Eukaryoten befindet sich die Elektronentransportkette in der Thylakoidmembran . Hier treibt Lichtenergie den Elektronentransport mittels einer Protonenpumpe an , und der resultierende Protonengradient bewirkt die nachfolgende ATP-Synthese. In Bakterien kann die Elektronentransportkette zwischen den Arten variieren, sie besteht jedoch stets aus einer Reihe von Redoxreaktionen, die über die Erzeugung eines elektrochemischen Gradienten und die oxidative Phosphorylierung mittels ATP-Synthase an die ATP-Synthese gekoppelt sind. [ 3 ]
Mitochondriale Elektronentransportketten

Die meisten eukaryotischen Zellen besitzen Mitochondrien , die ATP aus Reaktionen von Sauerstoff mit Produkten des Citratzyklus , des Fettsäurestoffwechsels und des Aminosäurestoffwechsels produzieren . An der inneren Mitochondrienmembran wandern Elektronen von NADH und FADH₂ durch die Elektronentransportkette zu Sauerstoff, der dabei zu Wasser reduziert wird und so die für den Prozess benötigte Energie liefert. [ 4 ] Die Elektronentransportkette besteht aus einer enzymatischen Kette von Elektronendonatoren und -akzeptoren. Jeder Elektronendonator gibt Elektronen an einen Akzeptor mit höherem Redoxpotential ab, der diese Elektronen wiederum an einen anderen Akzeptor weitergibt. Dieser Prozess setzt sich in der Kette fort, bis die Elektronen schließlich an Sauerstoff, den letzten Elektronenakzeptor, übertragen werden. Jede Reaktion setzt Energie frei, da ein energiereicherer Donator und Akzeptor in energieärmere Produkte umgewandelt werden. Mithilfe der übertragenen Elektronen wird diese Energie genutzt, um einen Protonengradienten über die Mitochondrienmembran zu erzeugen, indem Protonen in den Intermembranraum „gepumpt“ werden. Dadurch entsteht ein Zustand höherer freier Energie, der potenziell Arbeit verrichten kann. Dieser gesamte Prozess wird als oxidative Phosphorylierung bezeichnet , da ADP zu ATP phosphoryliert wird, indem der elektrochemische Gradient genutzt wird, den die Redoxreaktionen der Elektronentransportkette aufgebaut haben, angetrieben durch energiefreisetzende Reaktionen von Sauerstoff.
Mitochondriale Redox-Carrier
Die mit dem Elektronentransport entlang der Elektronentransportkette verbundene Energie wird genutzt, um Protonen aus der mitochondrialen Matrix in den Intermembranraum zu pumpen. Dadurch entsteht ein elektrochemischer Protonengradient ( ΔpH ) über die innere Mitochondrienmembran. Dieser Protonengradient ist maßgeblich, aber nicht ausschließlich, für das mitochondriale Membranpotenzial (ΔΨ<sub> M</sub> ) verantwortlich. [ 5 ] Er ermöglicht es der ATP-Synthase , den H<sup> +</sup> -Fluss durch das Enzym zurück in die Matrix zu nutzen, um ATP aus Adenosindiphosphat (ADP) und anorganischem Phosphat zu generieren . Komplex I (NADH-Coenzym-Q-Reduktase; bezeichnet als I) nimmt Elektronen vom Citratzyklus -Elektronenträger Nicotinamidadenindinukleotid (NADH) auf und leitet sie an Coenzym Q ( Ubichinon ; bezeichnet als Q) weiter, welches seinerseits Elektronen von Komplex II ( Succinatdehydrogenase ; bezeichnet als II) erhält. Q überträgt Elektronen an Komplex III ( Cytochrom-bc- 1- Komplex ; mit III bezeichnet), welcher sie an Cytochrom c (Cyt c ) weitergibt. Cyt c überträgt Elektronen an Komplex IV ( Cytochrom- c -Oxidase ; mit IV bezeichnet).
In den Mitochondrien wurden vier membrangebundene Komplexe identifiziert. Jeder dieser Komplexe ist eine äußerst komplexe Transmembranstruktur , die in die innere Membran eingebettet ist. Drei davon sind Protonenpumpen . Die Strukturen sind elektrisch über fettlösliche und wasserlösliche Elektronenträger miteinander verbunden. Die gesamte Elektronentransportkette lässt sich wie folgt zusammenfassen:

Komplex I
Im Komplex I (NADH-Ubichinon-Oxidoreduktase, Typ-I-NADH-Dehydrogenase oder mitochondrialer Komplex I; EC 7.1.1.2 ) werden zwei Elektronen von NADH abgespalten und auf den lipidlöslichen Träger Ubichinon (Q) übertragen. Das reduzierte Produkt, Ubichinol (QH₂ ) , diffundiert frei innerhalb der Membran, und Komplex I transportiert vier Protonen (H⁺ ) durch die Membran, wodurch ein Protonengradient entsteht. Komplex I ist einer der Hauptorte für vorzeitigen Elektronenverlust an Sauerstoff und somit einer der Hauptorte der Superoxidbildung . [ 6 ]
Der Weg der Elektronen ist wie folgt:
NADH wird zu NAD + oxidiert , indem Flavinmononukleotid in einem Zwei-Elektronen-Schritt zu FMNH2 reduziert wird. FMNH2 wird anschließend in zwei Ein-Elektronen-Schritten über ein Semichinon- Zwischenprodukt oxidiert. Dabei wird jedes Elektron vom FMNH2 auf einen Fe-S-Cluster und von diesem auf Ubichinon (Q) übertragen . Die Übertragung des ersten Elektrons führt zur Bildung der freien Radikalform ( Semichinon ) von Q, während die Übertragung des zweiten Elektrons die Semichinonform zur Ubichinolform QH2 reduziert . Während dieses Prozesses werden vier Protonen aus der mitochondrialen Matrix in den Intermembranraum transportiert. [ 7 ] Durch den Elektronentransport durch den Komplex entsteht ein Elektronenstrom entlang der 180 Å breiten Membran innerhalb des Komplexes. Dieser Strom treibt den aktiven Transport von vier Protonen pro zwei Elektronen aus NADH in den Intermembranraum an. [ 8 ]
Komplex II
Im Komplex II ( Succinatdehydrogenase oder Succinat-CoQ-Reduktase; EC 1.3.5.1 ) werden zusätzliche Elektronen aus Succinat in den Chinonpool (Q) eingeschleust und (über Flavin-Adenin-Dinukleotid (FAD) ) auf Q übertragen. Komplex II besteht aus vier Proteinuntereinheiten: Succinatdehydrogenase (SDHA), mitochondrialer Eisen-Schwefel-Untereinheit der Succinatdehydrogenase (SDHB), Untereinheit C des Succinatdehydrogenasekomplexes (SDHC) und Untereinheit D des Succinatdehydrogenasekomplexes (SDHD). Auch andere Elektronendonatoren (z. B. Fettsäuren und Glycerin-3-phosphat) leiten Elektronen (über FAD) in Q. Komplex II ist ein paralleler Elektronentransportweg zu Komplex I, jedoch werden im Gegensatz zu Komplex I in diesem Weg keine Protonen in den Intermembranraum transportiert. Daher trägt der Weg über Komplex II weniger Energie zum gesamten Elektronentransportprozess bei.
Komplex III
Im Komplex III ( Cytochrom -bc1 - Komplex oder CoQH₂ - Cytochrom- c- Reduktase; EC 7.1.1.8 ) trägt der Q-Zyklus durch eine asymmetrische Protonenaufnahme und -abgabe zum Protonengradienten bei. Zwei Elektronen werden am Q<sub> O </sub>-Zentrum von QH₂ abgespalten und nacheinander auf zwei Moleküle Cytochrom c , einen wasserlöslichen Elektronenträger im Intermembranraum, übertragen. Die beiden anderen Elektronen wandern nacheinander durch das Protein zum Q<sub> i </sub>-Zentrum, wo der Chinonanteil von Ubichinon zu Chinol reduziert wird. Durch die Oxidation eines Chinolmoleküls am Q<sub> O </sub>-Zentrum zu einem Chinonmolekül am Q<sub> i </sub>-Zentrum entsteht ein Protonengradient . (Insgesamt werden vier Protonen transportiert: zwei Protonen reduzieren Chinon zu Chinol und zwei Protonen werden von zwei Ubichinolmolekülen freigesetzt.)


Wenn der Elektronentransfer reduziert ist (durch ein hohes Membranpotential oder Atmungsinhibitoren wie Antimycin A ), kann Komplex III Elektronen an molekularen Sauerstoff abgeben , was zur Bildung von Superoxid führt .
Dieser Komplex wird durch Dimercaprol (British Anti-Lewisite, BAL), Naphthochinon und Antimycin gehemmt .
Komplex IV
Im Komplex IV ( Cytochrom- c -Oxidase ; EC 7.1.1.9 ), auch Cytochrom AA3 genannt, werden vier Elektronen von vier Cytochrom -c- Molekülen abgespalten und auf molekularen Sauerstoff (O₂) und vier Protonen übertragen , wobei zwei Wassermoleküle entstehen. Der Komplex enthält koordinierte Kupferionen und mehrere Hämgruppen. Gleichzeitig werden acht Protonen aus der mitochondrialen Matrix abgespalten (wobei nur vier durch die Membran transportiert werden), was zum Protonengradienten beiträgt. Die genauen Mechanismen des Protonenpumpens im Komplex IV werden noch erforscht. [ 9 ] Cyanid ist ein Inhibitor des Komplexes IV.
Kopplung mit oxidativer Phosphorylierung

According to the chemiosmotic coupling hypothesis, proposed by Nobel Prize in Chemistry winner Peter D. Mitchell, the electron transport chain and oxidative phosphorylation are coupled by a proton gradient across the inner mitochondrial membrane. The efflux of protons from the mitochondrial matrix creates an electrochemical gradient (proton gradient). This gradient is used by the FOF1ATP-synthase complex to make ATP via oxidative phosphorylation. ATP-synthase is sometimes described as Complex V of the electron transport chain.[10]
The FO component acts as a channel that harnesses the proton flow to drive rotation. It is composed of a, b and c subunits. Protons in the inter-membrane space of mitochondria first enter the ATP-synthase complex through an a subunit channel. Then protons bind to the c subunits, which are oriented in a ring (the c-ring), where the number of c subunits determines how many protons are required to make the c-ring and the attached γ-rotor turn one full revolution[11]. There are 8 c subunits in humans, thus 8 protons are required.[12] Protons are released as a result of the rotation of the c-ring, being directed into the mitochondrial matrix along the a subunit channels.[11] This proton reflux drives the mechanical rotation of the c-ring and the γ-axle. The rotation of the γ-rotor causes the sequential alternation of conformational states in the catalytic β-subunits in F1.
There are three different conformational states, which are:
- Open, in this state the β-subunit has low affinity to ligands, releasing the previously synthesized ATP molecule.
- Loose, Binds ADP and Pi together loosely.
- Tight, Binds ADP and Pi so tightly that it catalyzes the condensation reaction to form ATP.
This cycle is known as the binding change mechanism (coined by Paul D. Boyer), explaining the conversion of mechanical rotation to chemical energy.[13][14]
Die Kopplung mit der oxidativen Phosphorylierung ist ein entscheidender Schritt für die ATP-Produktion. In bestimmten Fällen kann jedoch die Entkopplung der beiden Prozesse biologisch vorteilhaft sein. Das Entkopplungsprotein Thermogenin – in der inneren Mitochondrienmembran des braunen Fettgewebes vorhanden – ermöglicht einen alternativen Protonenfluss zurück in die innere Mitochondrienmatrix. Auch Thyroxin wirkt als natürlicher Entkoppler. Dieser alternative Fluss führt zur Thermogenese anstelle der ATP-Produktion. [ 15 ]
Umgekehrter Elektronenfluss
Der umgekehrte Elektronenfluss ist der Transfer von Elektronen durch die Elektronentransportkette mittels umgekehrter Redoxreaktionen. Dieser Prozess erfordert üblicherweise einen erheblichen Energieaufwand und kann die oxidierten Formen von Elektronendonatoren reduzieren. Beispielsweise kann NAD<sup> +</sup> durch Komplex I zu NADH reduziert werden. [ 16 ] Es gibt mehrere Faktoren, die den umgekehrten Elektronenfluss induzieren können. Dies muss jedoch noch weiter untersucht werden. Ein Beispiel ist die Blockierung der ATP-Synthase, die zu einer Anreicherung von Protonen und damit zu einer höheren protonenmotorischen Kraft führt und somit den umgekehrten Elektronenfluss induziert . [ 17 ]
Prokaryotische Elektronentransportketten
In Eukaryoten ist NADH der wichtigste Elektronendonator. Die zugehörige Elektronentransportkette verläuft wie folgt: NADH → Komplex I → Q → Komplex III → Cytochrom c → Komplex IV → O₂ . Die Komplexe I, III und IV fungieren als Protonenpumpen, während Q und Cytochrom c mobile Elektronenträger sind. Der Elektronenakzeptor für diesen Prozess ist molekularer Sauerstoff.
Bei Prokaryoten ( Bakterien und Archaeen ) ist die Situation komplexer, da es mehrere verschiedene Elektronendonatoren und Elektronenakzeptoren gibt. Die allgemeine Elektronentransportkette in Bakterien sieht folgendermaßen aus:

Elektronen können auf drei Ebenen in die Kette eintreten: auf der Ebene einer Dehydrogenase , auf der Ebene des Chinonpools oder auf der Ebene eines mobilen Cytochrom -Elektronenträgers. Diese Ebenen entsprechen sukzessive positiveren Redoxpotentialen bzw. sukzessive geringeren Potentialdifferenzen relativ zum terminalen Elektronenakzeptor. Anders ausgedrückt: Sie entsprechen sukzessive kleineren Änderungen der freien Gibbs-Energie für die gesamte Redoxreaktion.
Einzelne Bakterien nutzen mehrere Elektronentransportketten, oft gleichzeitig. Bakterien können verschiedene Elektronendonatoren, Dehydrogenasen, Oxidasen und Reduktasen sowie Elektronenakzeptoren verwenden. Beispielsweise nutzt E. coli (beim aeroben Wachstum mit Glucose und Sauerstoff als Energiequelle) zwei verschiedene NADH-Dehydrogenasen und zwei verschiedene Chinoloxidasen, sodass insgesamt vier verschiedene Elektronentransportketten gleichzeitig aktiv sind.
Allen Elektronentransportketten ist gemeinsam, dass sie eine Protonenpumpe besitzen, die einen elektrochemischen Gradienten über eine Membran erzeugt. Bakterielle Elektronentransportketten können, ähnlich wie Mitochondrien, bis zu drei Protonenpumpen enthalten oder auch nur zwei oder mindestens eine.
Elektronendonatoren
In der heutigen Biosphäre sind organische Moleküle die häufigsten Elektronendonatoren. Organismen, die organische Moleküle als Elektronenquelle nutzen, werden als Organotrophe bezeichnet . Chemoorganotrophe (Tiere, Pilze, Protisten) und Photolithotrophe (Pflanzen und Algen) bilden die überwiegende Mehrheit aller bekannten Lebensformen.
Einige Prokaryoten können anorganische Stoffe als Elektronenquelle nutzen. Solche Organismen werden als (Chemo-)Lithotrophe („Gesteinsfresser“) bezeichnet. Zu den anorganischen Elektronendonatoren gehören Wasserstoff , Kohlenmonoxid , Ammoniak , Nitrit , Schwefel , Sulfid , Manganoxid und Eisen(II)-Ionen . Lithotrophe wurden in Gesteinsformationen gefunden, die Tausende von Metern unter der Erdoberfläche wachsen. Aufgrund ihrer weiten Verbreitung könnten Lithotrophe in unserer Biosphäre sogar die Organotrophen und Phototrophen zahlenmäßig übertreffen .
Die Nutzung anorganischer Elektronendonatoren wie Wasserstoff als Energiequelle ist für die Evolutionsforschung von besonderem Interesse . Logischerweise muss diese Art des Stoffwechsels der Nutzung organischer Moleküle und Sauerstoff als Energiequelle vorausgegangen sein.
Dehydrogenasen: Äquivalente zu den Komplexen I und II
Bakterien können verschiedene Elektronendonatoren nutzen. Wenn organische Substanz die Elektronenquelle ist, kann der Donator NADH oder Succinat sein. In diesem Fall gelangen die Elektronen über die NADH-Dehydrogenase (ähnlich dem Komplex I in den Mitochondrien) oder die Succinat-Dehydrogenase (ähnlich dem Komplex II ) in die Elektronentransportkette. Andere Dehydrogenasen können zur Verarbeitung verschiedener Energiequellen verwendet werden: Formiat-Dehydrogenase, Lactat-Dehydrogenase, Glycerinaldehyd-3-phosphat-Dehydrogenase, H₂ - Dehydrogenase ( Hydrogenase ) und Elektronentransportkette. Einige Dehydrogenasen fungieren auch als Protonenpumpen, während andere Elektronen in den Chinonpool leiten. Die meisten Dehydrogenasen zeigen in der Bakterienzelle eine induzierte Expression als Reaktion auf den Stoffwechselbedarf, der durch die Wachstumsumgebung der Zellen ausgelöst wird. Im Fall der Lactat-Dehydrogenase in E. coli wird das Enzym aerob und in Kombination mit anderen Dehydrogenasen verwendet. Es ist induzierbar und wird exprimiert, wenn die Konzentration von DL-Laktat in der Zelle hoch ist.
Chinonträger
Chinone sind mobile, fettlösliche Transportmoleküle, die Elektronen (und Protonen) zwischen großen, relativ unbeweglichen, in die Membran eingebetteten Makromolekülkomplexen transportieren. Bakterien nutzen Ubichinon (Coenzym Q, dasselbe Chinon, das auch Mitochondrien verwenden) und verwandte Chinone wie Menachinon (Vitamin K₂ ) . Archaeen der Gattung Sulfolobus verwenden Caldariellachinon. [ 18 ] Die Verwendung unterschiedlicher Chinone beruht auf geringfügigen Änderungen der Redoxpotentiale, die durch Strukturveränderungen bedingt sind. Diese Änderungen der Redoxpotentiale können an Veränderungen der Elektronenakzeptoren oder an Schwankungen der Redoxpotentiale in bakteriellen Komplexen angepasst sein. [ 19 ]
Protonenpumpen
Eine Protonenpumpe ist jeder Prozess, der einen Protonengradienten über eine Membran erzeugt. Protonen können physikalisch durch eine Membran transportiert werden, wie in den mitochondrialen Komplexen I und IV zu beobachten ist . Derselbe Effekt lässt sich durch die Bewegung von Elektronen in die entgegengesetzte Richtung erzielen. Dies führt zum Verschwinden eines Protons aus dem Zytoplasma und zum Auftreten eines Protons im Periplasma. Der mitochondriale Komplex III ist eine solche zweite Art von Protonenpumpe, die durch ein Chinon vermittelt wird ( Q-Zyklus ).
Einige Dehydrogenasen sind Protonenpumpen, andere nicht. Die meisten Oxidasen und Reduktasen sind Protonenpumpen, einige jedoch nicht. Cytochrom bc1 ist eine Protonenpumpe, die in vielen, aber nicht allen Bakterien vorkommt (nicht in E. coli ). Wie der Name schon sagt, ist bakterielles bc1 dem mitochondrialen bc1 ( Komplex III ) ähnlich .
Cytochrom-Elektronenträger
Cytochrome sind Proteine, die Eisen enthalten. Sie kommen in zwei sehr unterschiedlichen Umgebungen vor.
Einige Cytochrome sind wasserlösliche Elektronenträger, die Elektronen zu und von großen, unbeweglichen, in die Membran eingebetteten Makromolekülen transportieren. Der mobile Elektronenträger in den Mitochondrien ist Cytochrom c . Bakterien nutzen verschiedene mobile Elektronenträger.
Andere Cytochrome finden sich innerhalb von Makromolekülen wie Komplex III und Komplex IV . Sie fungieren ebenfalls als Elektronenträger, jedoch in einer ganz anderen, intramolekularen Festkörperumgebung.
Elektronen können auf der Ebene eines mobilen Cytochroms oder Chinon-Carriers in die Elektronentransportkette eintreten. Beispielsweise gelangen Elektronen von anorganischen Elektronendonatoren (Nitrit, Eisen(II)-Ionen, Elektronentransportkette) auf der Cytochrom-Ebene in die Elektronentransportkette. Treten Elektronen auf einem Redoxniveau oberhalb von NADH ein, muss die Elektronentransportkette umgekehrt arbeiten, um dieses notwendige, energiereichere Molekül zu produzieren.
Es wurde beobachtet, dass der interproteinäre Elektronentransport zwischen Cytochrom c und c 1 ( Komplex III ) vom pH-Wert und der Anwesenheit von Sauerstoff abhängt, was darauf hindeutet, dass Protonen und Superoxid als Redoxmediatoren im Elektronentransportprozess über größere Distanzen durch die wässrige Lösung fungieren könnten. [ 20 ]
Elektronenakzeptoren und terminale Oxidase/Reduktase
Da es verschiedene Elektronendonatoren gibt (organische Substanzen bei Organotrophen, anorganische Substanzen bei Lithotrophen), existieren auch verschiedene Elektronenakzeptoren, sowohl organische als auch anorganische. Wie bei anderen Schritten der Atmungskette ist auch hier ein Enzym erforderlich.
Wenn Sauerstoff verfügbar ist, dient er in aeroben Bakterien und fakultativ anaeroben Organismen meist als terminaler Elektronenakzeptor. Eine Oxidase reduziert den Sauerstoff (O₂ ) zu Wasser und oxidiert dabei gleichzeitig eine andere Substanz. In den Mitochondrien ist der terminale Membrankomplex ( Komplex IV ) die Cytochromoxidase, die das Cytochrom oxidiert. Aerobe Bakterien nutzen verschiedene terminale Oxidasen. Beispielsweise besitzt E. coli (ein fakultativ anaerober Organismus) weder eine Cytochromoxidase noch einen bc1 - Komplex. Unter aeroben Bedingungen verwendet es zwei verschiedene terminale Chinoloxidasen (beides Protonenpumpen), um Sauerstoff zu Wasser zu reduzieren.
Bakterielle terminale Oxidasen lassen sich anhand der als terminale Elektronenakzeptoren fungierenden Moleküle in Klassen einteilen. Oxidasen der Klasse I sind Cytochromoxidasen und nutzen Sauerstoff als terminalen Elektronenakzeptor. Oxidasen der Klasse II sind Chinoloxidasen und können verschiedene terminale Elektronenakzeptoren verwenden. Beide Klassen lassen sich anhand ihrer redoxaktiven Komponenten weiter unterteilen. Beispielsweise sind terminale Oxidasen der Klasse I, die Häm-Aminosäuren (aa3) enthalten, deutlich effizienter als solche der Klasse II. [ 2 ]
In anaeroben Umgebungen werden verschiedene Elektronenakzeptoren genutzt, darunter Nitrat, Nitrit, Eisen(III)-Ionen, Sulfat, Kohlendioxid und kleine organische Moleküle wie Fumarat. Beim Wachstum von Bakterien unter anaeroben Bedingungen wird der terminale Elektronenakzeptor durch ein Enzym, eine sogenannte Reduktase, reduziert. E. coli kann je nach Verfügbarkeit der jeweiligen Akzeptoren Fumaratreduktase, Nitratreduktase, Nitritreduktase, DMSO-Reduktase oder Trimethylamin-N-oxid-Reduktase verwenden.
Die meisten terminalen Oxidasen und Reduktasen sind induzierbar . Sie werden vom Organismus bedarfsgerecht als Reaktion auf spezifische Umweltbedingungen synthetisiert.
Photosynthese

Bei der oxidativen Phosphorylierung werden Elektronen von einem Elektronendonator wie NADH über eine Elektronentransportkette auf einen Akzeptor wie O₂ übertragen, wodurch Energie freigesetzt wird. Bei der Photophosphorylierung wird die Energie des Sonnenlichts genutzt, um einen hochenergetischen Elektronendonator zu erzeugen, der anschließend oxidierte Komponenten reduzieren und über die Elektronentransportkette mittels Protonentranslokation an die ATP-Synthese gekoppelt werden kann. [ 9 ]
Photosynthetische Elektronentransportketten, ähnlich der mitochondrialen Kette, können als Sonderfall bakterieller Systeme betrachtet werden. Sie nutzen mobile, fettlösliche Chinonträger ( Phyllochinon und Plastochinon ) sowie mobile, wasserlösliche Träger ( Cytochrome ). Zudem enthalten sie eine Protonenpumpe . Die Protonenpumpe in allen photosynthetischen Ketten ähnelt dem mitochondrialen Komplex III . Die gängige Theorie der Symbiogenese besagt, dass beide Organellen von Bakterien abstammen.
Siehe auch
- Ladungstransferkomplex
- CoRR-Hypothese
- Elektronenäquivalent
- Wasserstoffhypothese
- Respirasom
- Elektrische Bakterien
Referenzen
- ^ Lyall, Fiona (2010). „Biochemie“. Grundlagen der Geburtshilfe und Gynäkologie . S. 143–171 . doi : 10.1016/B978-0-443-10281-3.00013-0 . ISBN 978-0-443-10281-3Die
- ^ a b Anraku Y (Juni 1988). „Bakterielle Elektronentransportketten“. Annual Review of Biochemistry . 57 (1): 101–32 . Bibcode : 1988ARBio..57..101A . doi : 10.1146/annurev.bi.57.070188.000533 . PMID 3052268 .
- ^ Kracke F, Vassilev I, Krömer JO (2015). „Mikrobieller Elektronentransport und Energieerhaltung – die Grundlage für die Optimierung bioelektrochemischer Systeme“ . Frontiers in Microbiology . 6 : 575. doi : 10.3389/fmicb.2015.00575 . PMC 4463002. PMID 26124754 . – Diese Quelle zeigt vier ETCs ( Geobacter , Shewanella , Moorella , Acetobacterium ) in den Abbildungen 1 und 2.
- ^ Waldenström JG (24.04.2009). „Biochemie. Von Lubert Stryer“. Acta Medica Scandinavica . 198 ( 1– 6): 436. doi : 10.1111/j.0954-6820.1975.tb19571.x . ISSN 0001-6101 .
- ^ Zorova LD, Popkov VA, Plotnikov EY, Silachev DN, Pevzner IB, Jankauskas SS, et al. (Juli 2018). „Mitochondriales Membranpotential“ . Analytische Biochemie . 552 : 50–59 . Bibcode : 2018AnBio.552...50Z . doi : 10.1016/j.ab.2017.07.009 . PMC 5792320 . PMID 28711444 .
- ^ Lauren, Biochemie, Johnson/Cole, 2010, S. 598-611
- ^ Garrett & Grisham, Biochemie, Brooks/Cole, 2010, S. 598-611
- ^ Garrett R, Grisham CM (2016). Biochemie . Boston: Cengage. S. 687. ISBN 978-1-305-57720-6Die
- ^ ein b Stryer. Biochemie . Toppan. OCLC 785100491 .
- ^ Jonckheere AI, Smeitink JA, Rodenburg RJ (März 2012). „Mitochondriale ATP-Synthase: Architektur, Funktion und Pathologie“ . Journal of Inherited Metabolic Disease . 35 (2): 211–225 . doi : 10.1007/s10545-011-9382-9 . PMC 3278611. PMID 21874297 .
- ^ a b Garrett RH, Grisham CM (2012). Biochemie (5. Aufl.). Cengage Learning. S. 664. ISBN 978-1-133-10629-6Die
- ^ Fillingame RH, Angevine CM, Dmitriev OY (November 2003). „Mechanismen der Kopplung von Protonenbewegungen an die Rotation des c-Rings in der ATP-Synthase“ . FEBS Letters . 555 (1): 29–34 . Bibcode : 2003FEBSL.555...29F . doi : 10.1016/ S0014-5793 (03)01101-3 . PMID 14630314. S2CID 38896804 .
- ^ Lodish, Harvey; Berk, Arnold; Zipursky, Samuel Lawrence (2000). Molekulare Zellbiologie (4. Aufl.). WH Freeman. ISBN 0-7167-3136-3Die
- ^ Berg JM, Tymoczko JL, Stryer L (2002-01-01). „Ein Protonengradient treibt die ATP-Synthese an“ . Archiviert vom Original am 4. Januar 2015.
{{cite journal}}: Zeitschrift zitieren erfordert|journal=( Hilfe ) - ^ Cannon B, Nedergaard J (Januar 2004). „Braunes Fettgewebe: Funktion und physiologische Bedeutung“ . Physiological Reviews . 84 (1): 277–359 . doi : 10.1152/physrev.00015.2003 . PMID 14715917. Archiviert vom Original am 3. Dezember 2017. Abgerufen am 10. März 2017 .
- ^ Kim BH, Gadd GM (2008). „Einführung in die bakterielle Physiologie und den Stoffwechsel“. Bakterielle Physiologie und Stoffwechsel . Cambridge University Press. S. 1–6 . doi : 10.1017/cbo9780511790461.002 . ISBN 978-0-511-79046-1Die
- ^ Mills EL, Kelly B, Logan A, Costa AS, Varma M, Bryant CE, et al. (Oktober 2016). „Succinatdehydrogenase unterstützt die metabolische Umfunktionierung von Mitochondrien zur Förderung inflammatorischer Makrophagen“ . Cell . 167 ( 2): 457–470.e13. Bibcode : 2016Cell..167..457M . doi : 10.1016/j.cell.2016.08.064 . PMC 5863951. PMID 27667687 .
- ^ EC 1.3.5.1
- ^ Ingledew WJ, Poole RK (September 1984). „ Die Atmungsketten von Escherichia coli“ . Microbiological Reviews . 48 (3): 222–71 . doi : 10.1128/mmbr.48.3.222-271.1984 . PMC 373010. PMID 6387427 .
- ^ Lagunas, Anna; Gomila, Alexandre MJ; Nin-Hill, Alba; Guerra-Castellano, Alejandra; Pérez-Mejías, Gonzalo; Samitier, Josep; Rovira, Carme; la Rosa, Miguel A. De; Díaz-Moreno, Irene; Gorostiza, Pau (2025). „Der Ladungstransport über große Entfernungen zwischen Cytochrom c und Komplex III wird durch Protonen und reaktive Sauerstoffspezies vermittelt“ . Klein . 21 (42) e01286. Bibcode : 2025Small..21E1286L . doi : 10.1002/small.202501286 . ISSN 1613-6829 . PMC 12548003 . PMID 40937621 .
Weiterführende Literatur
- Fenchel T, King GM, Blackburn TH (September 2006). Bakterielle Biogeochemie: Die Ökophysiologie des Mineralstoffkreislaufs (2. Aufl.). Elsevier. ISBN 978-0-12-103455-9Die
- Lengeler JW (Januar 1999). Drews G; Schlegel HG (Hrsg.). Biologie der Prokaryoten . Blackwell Science. ISBN 978-0-632-05357-5Die
- Nelson DL, Cox MM (April 2005). Lehninger Principles of Biochemistry (4. Aufl.). WH Freeman. ISBN 978-0-7167-4339-2Die
- Nicholls DG, Ferguson SJ (Juli 2002). Bioenergetik 3. Academic Press. ISBN 978-0-12-518121-1Die
- Stumm W; Morgan JJ (1996). Aquatische Chemie (3. Aufl.). John Wiley & Sons . ISBN 978-0-471-51185-4Die
- Thauer RK, Jungermann K, Decker K (März 1977). „ Energieerhaltung in chemotrophen anaeroben Bakterien“ . Bacteriological Reviews . 41 (1): 100–80 . doi : 10.1128/MMBR.41.1.100-180.1977 . PMC 413997. PMID 860983 .
- White D (September 1999). Die Physiologie und Biochemie der Prokaryoten (2. Aufl.). Oxford University Press . ISBN 978-0-19-512579-5Die
- Voet D, Voet JG (März 2004). Biochemie . Bd. 28 (3. Aufl.). John Wiley & Söhne . S. 124 . doi : 10.1016/s0307-4412(00)00032-7 . ISBN 978-0-471-58651-7PMID 10878303 .
{{cite book}}:|journal=ignoriert ( Hilfe ) - Kim HS, Patel K, Muldoon-Jacobs K, Bisht KS, Aykin-Burns N, Pennington JD et al. (Januar 2010). „SIRT3 ist ein in den Mitochondrien lokalisierter Tumorsuppressor, der für die Aufrechterhaltung der mitochondrialen Integrität und des Stoffwechsels unter Stressbedingungen erforderlich ist.“ Cancer Cell . 17 ( 1): 41–52 . doi : 10.1016/j.ccr.2009.11.023 . PMC 3711519. PMID 20129246 .
- Raimondi V, Ciccarese F, Ciminale V (Januar 2020). „Onkogene Wege und die Elektronentransportkette: eine DangeROS-Verbindung“ . Br J Krebs . 122 (2): 168–181 . doi : 10.1038/s41416-019-0651-y . PMC 7052168 . PMID 31819197 .
- Reguera, Gemma (29. Mai 2018). „Biologischer Elektronentransport geht über das Übliche hinaus“ . Proceedings of the National Academy of Sciences . 115 (22): 5632–5634 . Bibcode : 2018PNAS..115.5632R . doi : 10.1073 / pnas.1806580115 . PMC 5984551. PMID 29769327 .– Ein redaktioneller Kommentar erwähnt zwei ungewöhnliche Elektronentransportketten: die von Geobacter sulfurreducens und die von Kabelbakterien . Außerdem enthält er eine schematische Darstellung der Elektronentransportkette von E. coli.
Externe Links
- Elektronentransportkettenkomplex-Proteine in den Medical Subject Headings (MeSH) der US National Library of Medicine
- Khan Academy, Videovorlesung
- KEGG- Stoffwechselweg: Oxidative Phosphorylierung, überlagert mit Genen aus Pseudomonas fluorescens Pf0-1. Klicken Sie auf „Hilfe“, um eine Anleitung zu erhalten.