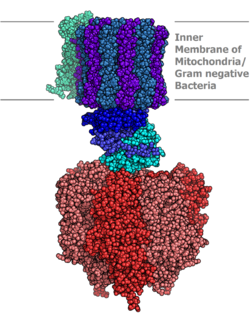
Die oxidative Phosphorylierung ( auch Elektronentransport-gekoppelte Phosphorylierung oder terminale Oxidation genannt ) ist ein Stoffwechselweg, bei dem Zellen mithilfe von Enzymen Nährstoffe oxidieren und dabei chemische Energie zur Produktion von Adenosintriphosphat (ATP) freisetzen. Bei Eukaryoten findet dieser Prozess in den Mitochondrien statt . Nahezu alle aeroben Organismen betreiben oxidative Phosphorylierung. Dieser Stoffwechselweg ist so weit verbreitet, weil er mehr Energie freisetzt als die Gärung .
Bei der aeroben Atmung wird die in den chemischen Bindungen der Glucose gespeicherte Energie durch die Zelle in der Glykolyse und anschließend im Citratzyklus freigesetzt , wobei Kohlendioxid und die energiereichen Elektronendonatoren NADH und FADH₂ entstehen . Die oxidative Phosphorylierung nutzt diese Moleküle und O₂ zur ATP -Produktion , das in der gesamten Zelle verwendet wird, sobald Energie benötigt wird. Während der oxidativen Phosphorylierung werden Elektronen von den Elektronendonatoren auf eine Reihe von Elektronenakzeptoren in einer Reihe von Redoxreaktionen übertragen , die mit Sauerstoff enden. Bei dieser Reaktion wird die Hälfte der Gesamtenergie freigesetzt. [ 1 ]
Bei Eukaryoten werden diese Redoxreaktionen durch eine Reihe von Proteinkomplexen in der inneren Mitochondrienmembran katalysiert; bei Prokaryoten hingegen befinden sich diese Proteine in der Plasmamembran der Zelle . Diese miteinander verbundenen Proteinkomplexe werden als Elektronentransportkette bezeichnet . In den Mitochondrien sind fünf Hauptproteinkomplexe beteiligt, während Prokaryoten über verschiedene andere Enzyme verfügen, die unterschiedliche Elektronendonatoren und -akzeptoren nutzen.
Die Energie, die durch die Elektronentransportkette übertragen wird, dient dem Transport von Protonen durch die innere Membran. Dadurch entsteht potenzielle Energie in Form eines pH- Gradienten und des daraus resultierenden elektrischen Potenzials über die Membran. Dieser Energiespeicher wird genutzt, wenn Protonen im Rahmen der Chemiosmose durch die ATP-Synthase zurück über die Membran fließen. Die ATP-Synthase nutzt diese Energie, um Adenosindiphosphat (ADP) in Adenosintriphosphat (ATP) umzuwandeln – eine Phosphorylierungsreaktion . Angetrieben wird diese Reaktion durch den Protonenfluss, der einen Teil des Enzyms zur Rotation zwingt . Die ATP-Synthase fungiert somit als rotierender Motor.
Obwohl die oxidative Phosphorylierung ein lebenswichtiger Bestandteil des Stoffwechsels ist, entstehen dabei reaktive Sauerstoffspezies wie Superoxid und Wasserstoffperoxid . Diese führen zur Bildung freier Radikale , schädigen Zellen und tragen zu Krankheiten sowie möglicherweise zu Alterung und Seneszenz bei . Die Enzyme dieses Stoffwechselwegs sind zudem Ziel vieler Medikamente und Gifte, die ihre Aktivität hemmen .
Chemiosmose
Die oxidative Phosphorylierung nutzt energieabgebende chemische Reaktionen, um energieverbrauchende Reaktionen anzutreiben. Die beiden Reaktionsgruppen sind gekoppelt , d. h. die eine kann nicht ohne die andere stattfinden. Die Redoxreaktionskette, die den Elektronenfluss durch die Elektronentransportkette von Elektronendonatoren wie NADH zu Elektronenakzeptoren wie Sauerstoff und Wasserstoff (Protonen) antreibt, ist ein exergonischer Prozess – sie setzt Energie frei. Die ATP-Synthese hingegen ist ein endergonischer Prozess, der Energiezufuhr benötigt. Sowohl die Elektronentransportkette als auch die ATP-Synthase sind in eine Membran eingebettet. Der Energietransfer von der Elektronentransportkette zur ATP-Synthase erfolgt durch Protonenbewegungen über diese Membran, ein Prozess, der als Chemiosmose bezeichnet wird . [ 2 ] Ein Protonenstrom fließt von der negativen N-Seite der Membran zur positiven P-Seite durch die protonenpumpenden Enzyme der Elektronentransportkette. Diese Protonenbewegung erzeugt einen elektrochemischen Gradienten über die Membran, die sogenannte protonenmotorische Kraft . Es besteht aus zwei Komponenten: einer Differenz der Protonenkonzentration (einem H + Gradienten, Δ pH ) und einer Differenz des elektrischen Potenzials , wobei die N-Seite eine negative Ladung trägt. [ 3 ]
Die ATP-Synthase setzt diese gespeicherte Energie frei, indem sie den Stromkreis schließt und Protonen entlang des elektrochemischen Gradienten zurück zur N-Seite der Membran fließen lässt. [ 4 ] Der elektrochemische Gradient treibt die Rotation eines Teils der Enzymstruktur an und koppelt diese Bewegung an die ATP-Synthese.
Die beiden Komponenten der protonenmotorischen Kraft sind thermodynamisch äquivalent: In Mitochondrien wird der größte Teil der Energie durch das Membranpotenzial bereitgestellt; in alkaliphilen Bakterien muss die elektrische Energie sogar einen entgegenwirkenden inversen pH-Unterschied kompensieren. Chloroplasten hingegen arbeiten hauptsächlich mit ΔpH. Sie benötigen jedoch auch ein kleines Membranpotenzial für die Kinetik der ATP-Synthese. Im Fall des Fusobakteriums Propionigenium modestum treibt dieses die gegenläufige Rotation der Untereinheiten a und c des F<sub>0</sub> O<sub>5</sub> -Motors der ATP-Synthase an. [ 3 ]
Die durch oxidative Phosphorylierung freigesetzte Energiemenge ist im Vergleich zur durch Gärung erzeugten Menge hoch . Die Glykolyse liefert lediglich 2 ATP-Moleküle, während die oxidative Phosphorylierung der 10 NADH- und 2 Succinatmoleküle, die bei der Umwandlung eines Glucosemoleküls in Kohlendioxid und Wasser entstehen, zwischen 30 und 36 ATP-Moleküle erzeugt [ 5 ]. Jeder Zyklus der β-Oxidation einer Fettsäure liefert etwa 14 ATP-Moleküle. Diese ATP-Ausbeuten stellen theoretische Maximalwerte dar; in der Praxis diffundieren Protonen durch die Membran, wodurch die ATP-Ausbeute sinkt [ 6 ] .
Elektronen- und Protonentransfermoleküle
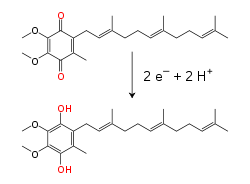
Die Elektronentransportkette transportiert sowohl Protonen als auch Elektronen, indem sie Elektronen von Donatoren zu Akzeptoren weitergibt und Protonen durch eine Membran transportiert. Diese Prozesse nutzen sowohl lösliche als auch protein-gebundene Transfermoleküle. In den Mitochondrien werden Elektronen innerhalb des Intermembranraums durch das wasserlösliche Elektronentransferprotein Cytochrom c übertragen . [ 7 ] Dieses transportiert ausschließlich Elektronen, die durch die Reduktion und Oxidation eines Eisenatoms übertragen werden , das das Protein in einer Hämgruppe seiner Struktur bindet. Cytochrom c kommt auch in einigen Bakterien vor, wo es sich im Periplasma befindet . [ 8 ]
Innerhalb der inneren Mitochondrienmembran transportiert das fettlösliche Elektronenträger -Coenzym Q10 (Q) sowohl Elektronen als auch Protonen mittels eines Redoxzyklus . [ 9 ] Dieses kleine Benzochinonmolekül ist sehr hydrophob und diffundiert daher frei innerhalb der Membran. Nimmt Q zwei Elektronen und zwei Protonen auf, wird es zu Ubichinol (QH₂ ) reduziert ; gibt QH₂ zwei Elektronen und zwei Protonen ab, wird es wieder zu Ubichinon (Q) oxidiert. Sind zwei Enzyme so angeordnet, dass Q auf der einen Seite der Membran reduziert und QH₂ auf der anderen Seite oxidiert wird, koppelt Ubichinon diese Reaktionen und transportiert Protonen durch die Membran. [ 10 ] Einige bakterielle Elektronentransportketten verwenden neben Ubichinon auch andere Chinone, wie beispielsweise Menachinon . [ 11 ]
Innerhalb von Proteinen werden Elektronen zwischen Flavin- Cofaktoren [ 4 , 12 ] , Eisen-Schwefel-Clustern und Cytochromen übertragen . Es gibt verschiedene Arten von Eisen-Schwefel-Clustern. Die einfachste Art in der Elektronentransportkette besteht aus zwei Eisenatomen, die durch zwei anorganische Schwefelatome verbunden sind ; diese werden [2Fe–2S]-Cluster genannt. Die zweite Art, [4Fe–4S] genannt, enthält einen Würfel aus vier Eisen- und vier Schwefelatomen. Jedes Eisenatom in diesen Clustern ist durch eine zusätzliche Aminosäure koordiniert , üblicherweise durch das Schwefelatom von Cystein . Metallionen-Cofaktoren unterliegen Redoxreaktionen, ohne Protonen zu binden oder abzugeben, daher dienen sie in der Elektronentransportkette ausschließlich dem Elektronentransport durch Proteine. Elektronen bewegen sich durch Ketten dieser Cofaktoren über relativ lange Strecken durch Proteine. [ 13 ] Dies geschieht durch Quantentunneln , das über Distanzen von weniger als 1,4 × 10⁻⁹ m sehr schnell abläuft . [ 14 ]
Eukaryotische Elektronentransportketten
Viele katabole biochemische Prozesse, wie die Glykolyse , der Citratzyklus und die β-Oxidation , produzieren das reduzierte Coenzym NADH . Dieses Coenzym enthält Elektronen mit hohem Elektronentransferpotenzial ; das heißt, bei der Oxidation wird eine große Menge Energie freigesetzt. Die Zelle setzt diese Energie jedoch nicht auf einmal frei, da dies eine unkontrollierbare Reaktion wäre. Stattdessen werden die Elektronen von NADH abgespalten und über eine Reihe von Enzymen, die jeweils eine kleine Menge Energie freisetzen, an Sauerstoff übertragen. Diese Enzymgruppe, bestehend aus den Komplexen I bis IV, wird als Atmungskette bezeichnet und befindet sich in der inneren Mitochondrienmembran . Auch Succinat wird durch die Atmungskette oxidiert, mündet aber an einer anderen Stelle in diesen Stoffwechselweg.
In Eukaryoten nutzen die Enzyme dieses Elektronentransportsystems die von NADH aus O₂ freigesetzte Energie, um Protonen durch die innere Mitochondrienmembran zu pumpen . Dadurch reichern sich Protonen im Intermembranraum an und erzeugen einen elektrochemischen Gradienten über die Membran. Die in diesem Potenzial gespeicherte Energie wird dann von der ATP-Synthase zur ATP-Produktion genutzt. Die oxidative Phosphorylierung im eukaryotischen Mitochondrium ist das am besten untersuchte Beispiel für diesen Prozess. Mitochondrien sind in fast allen Eukaryoten vorhanden, mit Ausnahme anaerober Protozoen wie Trichomonas vaginalis, die Protonen stattdessen in einem Restmitochondrium, dem sogenannten Hydrogenosom , zu Wasserstoff reduzieren . [ 15 ]
| Atmungsenzym | Redoxpaar | Mittelpunktpotenzial (Volt) |
|---|---|---|
| NADH-Dehydrogenase | NAD + / NADH | −0,32 [ 16 ] |
| Succinatdehydrogenase | FMN oder FAD / FMNH 2 oder FADH 2 | −0,20 [ 16 ] |
| Cytochrom-bc- 1- Komplex | Coenzym Q10 ox / Coenzym Q10 rot | +0,06 [ 16 ] |
| Cytochrom-bc- 1- Komplex | Cytochrom b ox / Cytochrom b rot | +0,12 [ 16 ] |
| Komplex IV | Cytochrom c ox / Cytochrom c rot | +0,22 [ 16 ] |
| Komplex IV | Cytochrom a ox / Cytochrom a rot | +0,29 [ 16 ] |
| Komplex IV | O 2 / HO − | +0,82 [ 16 ] |
| Bedingungen: pH = 7 [ 16 ] | ||
NADH-Coenzym-Q-Oxidoreduktase (Komplex I)

Die NADH-Coenzym-Q-Oxidoreduktase , auch bekannt als NADH-Dehydrogenase oder Komplex I , ist das erste Protein der Elektronentransportkette. [ 17 ] Komplex I ist ein Riesenenzym ; der Säugetierkomplex I besteht aus 46 Untereinheiten und hat eine Molekülmasse von etwa1000 kDa . [ 18 ] Die Struktur ist nur von einem Bakterium detailliert bekannt; [ 19 ] [ 20 ] in den meisten Organismen ähnelt der Komplex einem Stiefel, aus dem eine große „Kugel“ aus der Membran in das Mitochondrium ragt. [ 21 ] [ 22 ] Die Gene, die für die einzelnen Proteine kodieren, befinden sich sowohl im Zellkern als auch im mitochondrialen Genom , wie es bei vielen mitochondrialen Enzymen der Fall ist.
Die von diesem Enzym katalysierte Reaktion ist die Zwei-Elektronen-Oxidation von NADH durch Coenzym Q10 oder Ubichinon (in der folgenden Gleichung als Q dargestellt), ein fettlösliches Chinon , das in der Mitochondrienmembran vorkommt:
| 1 |

Der Beginn der Reaktion und der gesamten Elektronentransportkette ist die Bindung eines NADH-Moleküls an Komplex I und die Abgabe von zwei Elektronen. Die Elektronen gelangen über eine an den Komplex gebundene prosthetische Gruppe , Flavinmononukleotid (FMN), in Komplex I. Durch die Elektronenaufnahme wird FMN in seine reduzierte Form, FMNH₂, überführt . Die Elektronen werden dann über eine Reihe von Eisen-Schwefel-Clustern übertragen: die zweite Art von prosthetischer Gruppe im Komplex. [ 19 ] In Komplex I existieren sowohl [2Fe–2S]- als auch [4Fe–4S]-Eisen-Schwefel-Cluster.
Während die Elektronen diesen Komplex durchlaufen, werden vier Protonen aus der Matrix in den Intermembranraum gepumpt. Wie genau dies geschieht, ist unklar, scheint aber Konformationsänderungen im Komplex I zu beinhalten, die dazu führen, dass das Protein Protonen auf der N-Seite der Membran bindet und sie auf der P-Seite wieder abgibt. [ 23 ] Schließlich werden die Elektronen von der Kette aus Eisen-Schwefel-Clustern auf ein Ubichinonmolekül in der Membran übertragen. [ 17 ] Die Reduktion von Ubichinon trägt ebenfalls zur Ausbildung eines Protonengradienten bei, da bei der Reduktion zu Ubichinol (QH₂ ) zwei Protonen aus der Matrix aufgenommen werden .
Succinat-Q-Oxidoreduktase (Komplex II)

Die Succinat-Q-Oxidoreduktase , auch bekannt als Komplex II oder Succinatdehydrogenase , ist ein zweiter Eintrittspunkt in die Atmungskette. [ 24 ] Sie ist insofern ungewöhnlich, als sie das einzige Enzym ist, das sowohl am Citratzyklus als auch an der Atmungskette beteiligt ist. Komplex II besteht aus vier Proteinuntereinheiten und enthält einen gebundenen Flavin-Adenin-Dinukleotid (FAD)-Cofaktor, Eisen-Schwefel-Cluster und eine Hämgruppe , die nicht am Elektronentransfer zu Coenzym Q beteiligt ist, aber vermutlich eine wichtige Rolle bei der Verringerung der Bildung reaktiver Sauerstoffspezies spielt. [ 25 ] [ 26 ] Sie oxidiert Succinat zu Fumarat und reduziert Ubichinon. Da diese Reaktion weniger Energie freisetzt als die Oxidation von NADH, transportiert Komplex II keine Protonen durch die Membran und trägt nicht zum Protonengradienten bei.
| 2 |

Bei einigen Eukaryoten, wie dem Spulwurm Ascaris suum , wirkt ein Enzym, das dem Komplex II ähnelt – die Fumaratreduktase (Menachinon:Fumarat-Oxidoreduktase oder QFR) –, in umgekehrter Richtung: Es oxidiert Ubichinol und reduziert Fumarat. Dadurch kann der Wurm im anaeroben Milieu des Dickdarms überleben und anaerobe oxidative Phosphorylierung mit Fumarat als Elektronenakzeptor durchführen. [ 27 ] Eine weitere ungewöhnliche Funktion des Komplexes II findet sich beim Malariaerreger Plasmodium falciparum . Hier ist die umgekehrte Wirkung des Komplexes II als Oxidase wichtig für die Regeneration von Ubichinol, das der Parasit in einer ungewöhnlichen Form der Pyrimidinbiosynthese verwendet . [ 28 ]
Elektronentransfer-Flavoprotein-Q-Oxidoreduktase
Die Elektronentransfer-Flavoprotein-Ubichinon-Oxidoreduktase (ETF-Q-Oxidoreduktase), auch bekannt als Elektronentransfer-Flavoprotein-Dehydrogenase , stellt einen dritten Eintrittspunkt in die Elektronentransportkette dar. Dieses Enzym nimmt Elektronen vom Elektronentransfer-Flavoprotein in der mitochondrialen Matrix auf und nutzt diese zur Reduktion von Ubichinon. [ 29 ] Das Enzym enthält ein Flavin und einen [4Fe–4S]-Cluster, bindet aber im Gegensatz zu den anderen Atmungskomplexen an die Membranoberfläche und durchdringt die Lipiddoppelschicht nicht. [ 30 ]
| 3 |

Bei Säugetieren ist dieser Stoffwechselweg wichtig für die β-Oxidation von Fettsäuren und den Abbau von Aminosäuren und Cholin , da er Elektronen von mehreren Acetyl-CoA -Dehydrogenasen aufnimmt. [ 31 ] [ 32 ] Auch bei Pflanzen spielt die ETF-Q-Oxidoreduktase eine wichtige Rolle bei den Stoffwechselreaktionen, die das Überleben in längeren Dunkelperioden ermöglichen. [ 33 ]
Q-Cytochrom-c-Oxidoreduktase (Komplex III)

Q-Cytochrom-c-Oxidoreduktase ist auch als Cytochrom-c-Reduktase , Cytochrom-bc1 - Komplex oder einfach Komplex III bekannt . [ 34 ] [ 35 ] Bei Säugetieren liegt dieses Enzym als Dimer vor . Jeder Untereinheitenkomplex besteht aus elf Proteinuntereinheiten, einem [2Fe-2S]-Eisen-Schwefel-Cluster und drei Cytochromen : einem Cytochrom c1 und zwei Cytochromen b . [ 36 ] Ein Cytochrom ist ein Elektronentransferprotein, das mindestens eine Hämgruppe enthält . Die Eisenatome in den Hämgruppen des Komplexes III wechseln zwischen einem reduzierten Eisen(II)-Zustand (+2) und einem oxidierten Eisen(III)-Zustand (+3), während die Elektronen durch das Protein übertragen werden.
Die von Komplex III katalysierte Reaktion ist die Oxidation eines Ubichinolmoleküls und die Reduktion zweier Cytochrom-c- Moleküle , eines Hämproteins, das lose mit dem Mitochondrium assoziiert ist. Im Gegensatz zu Coenzym Q, das zwei Elektronen trägt, trägt Cytochrom c nur ein Elektron.
| 4 |

Da jeweils nur ein Elektron vom QH₂-Donor auf einen Cytochrom-c-Akzeptor übertragen werden kann , ist der Reaktionsmechanismus des Komplexes III komplexer als der der anderen Atmungskomplexe und verläuft in zwei Schritten, dem sogenannten Q-Zyklus . [ 37 ] Im ersten Schritt bindet das Enzym drei Substrate: zunächst QH₂ , das oxidiert wird, wobei ein Elektron auf das zweite Substrat, Cytochrom c, übertragen wird. Die beiden von QH₂ freigesetzten Protonen gelangen in den Intermembranraum. Das dritte Substrat ist Q, das das zweite Elektron von QH₂ aufnimmt und zu Q⁻ , dem Ubisemichinon- Radikal , reduziert wird . Die ersten beiden Substrate werden freigesetzt, das Ubisemichinon-Zwischenprodukt bleibt jedoch gebunden. Im zweiten Schritt bindet ein zweites QH₂-Molekül und überträgt erneut sein erstes Elektron auf einen Cytochrom-c-Akzeptor . Das zweite Elektron wird an das gebundene Ubisemichinon weitergegeben, wodurch dieses zu QH₂ reduziert wird, während es zwei Protonen aus der mitochondrialen Matrix aufnimmt. Dieses QH₂ wird dann vom Enzym freigesetzt. [ 38 ]
Da Coenzym Q auf der Innenseite der Membran zu Ubichinol reduziert und auf der Außenseite zu Ubichinon oxidiert wird, findet ein Netto-Protonentransfer über die Membran statt, der den Protonengradienten verstärkt. [ 4 ] Der recht komplexe zweistufige Mechanismus, der diesem Vorgang zugrunde liegt, ist wichtig, da er die Effizienz des Protonentransfers erhöht. Würde anstelle des Q-Zyklus ein Molekül QH₂ verwendet, um zwei Moleküle Cytochrom c direkt zu reduzieren, halbierte sich die Effizienz, und es würde nur ein Proton pro reduziertem Cytochrom c übertragen. [ 4 ]
Cytochrom-c-Oxidase (Komplex IV)

Cytochrom-c-Oxidase , auch als Komplex IV bekannt , ist der letzte Proteinkomplex der Elektronentransportkette. [ 39 ] Das Säugetierenzym besitzt eine äußerst komplexe Struktur und besteht aus 13 Untereinheiten, zwei Hämgruppen sowie mehreren Metallionen-Cofaktoren – insgesamt drei Kupferatomen , einem Magnesiumatom und einem Zinkatom . [ 40 ]
Dieses Enzym katalysiert die letzte Reaktion der Elektronentransportkette und überträgt Elektronen auf Sauerstoff und Wasserstoff (Protonen), während es gleichzeitig Protonen durch die Membran pumpt. [ 41 ] Der finale Elektronenakzeptor Sauerstoff wird in diesem Schritt zu Wasser reduziert. Sowohl das direkte Pumpen von Protonen als auch der Verbrauch von Matrixprotonen bei der Sauerstoffreduktion tragen zum Protonengradienten bei. Die katalysierte Reaktion ist die Oxidation von Cytochrom c und die Reduktion von Sauerstoff.
| 5 |

Alternative Reduktasen und Oxidasen
Viele eukaryotische Organismen besitzen Elektronentransportketten, die sich von den oben beschriebenen, viel untersuchten Säugetierenzymen unterscheiden. Pflanzen beispielsweise verfügen über alternative NADH-Oxidasen, die NADH im Zytosol anstatt in der mitochondrialen Matrix oxidieren und diese Elektronen an den Ubichinon-Pool weitergeben. [ 42 ] Diese Enzyme transportieren keine Protonen und reduzieren daher Ubichinon, ohne den elektrochemischen Gradienten über die innere Membran zu verändern. [ 43 ]
Ein weiteres Beispiel für eine divergente Elektronentransportkette ist die alternative Oxidase , die in Pflanzen sowie in einigen Pilzen , Protisten und möglicherweise auch in einigen Tieren vorkommt . [ 44 ] [ 45 ] Dieses Enzym überträgt Elektronen direkt von Ubichinol auf Sauerstoff. [ 46 ]
Die durch diese alternativen NADH- und Ubichinon-Oxidasen gebildeten Elektronentransportwege weisen eine geringere ATP- Ausbeute auf als der vollständige Weg. Die Vorteile eines verkürzten Weges sind noch nicht vollständig geklärt. Die alternative Oxidase wird jedoch als Reaktion auf Stressfaktoren wie Kälte, reaktive Sauerstoffspezies und Infektionen mit Krankheitserregern sowie andere Faktoren gebildet, die die vollständige Elektronentransportkette hemmen. [ 47 ] [ 48 ] Alternative Wege könnten daher die Widerstandsfähigkeit eines Organismus gegenüber Schädigungen erhöhen, indem sie oxidativen Stress reduzieren . [ 49 ]
Organisation von Komplexen
Das ursprüngliche Modell zur Organisation der Atmungskettenkomplexe ging davon aus, dass diese frei und unabhängig in der Mitochondrienmembran diffundieren. [ 50 ] Neuere Daten deuten jedoch darauf hin, dass die Komplexe höhergeordnete Strukturen, sogenannte Superkomplexe oder „ Respirasome “, bilden könnten. [ 51 ] In diesem Modell existieren die verschiedenen Komplexe als organisierte Gruppen interagierender Enzyme. [ 52 ] Diese Assoziationen könnten den Transport von Substraten zwischen den verschiedenen Enzymkomplexen ermöglichen und so die Geschwindigkeit und Effizienz des Elektronentransfers erhöhen. [ 53 ] Innerhalb solcher Säugetier-Superkomplexe wären einige Komponenten in höherer Konzentration vorhanden als andere. Einige Daten legen ein Verhältnis zwischen den Komplexen I/II/III/IV und der ATP-Synthase von etwa 1:1:3:7:4 nahe. [ 54 ] Die Debatte um diese Superkomplex-Hypothese ist jedoch noch nicht vollständig abgeschlossen, da einige Daten nicht mit diesem Modell übereinzustimmen scheinen. [ 18 ] [ 55 ]
Prokaryotische Elektronentransportketten
Im Gegensatz zur allgemeinen Ähnlichkeit in Struktur und Funktion der Elektronentransportketten in Eukaryoten besitzen Bakterien und Archaeen eine große Vielfalt an Elektronentransferenzymen. Diese nutzen ein ebenso breites Spektrum an chemischen Substanzen als Substrate. [ 56 ] Wie bei Eukaryoten nutzt der prokaryotische Elektronentransport die bei der Oxidation eines Substrats freigesetzte Energie, um Ionen durch eine Membran zu pumpen und einen elektrochemischen Gradienten zu erzeugen. Bei Bakterien ist die oxidative Phosphorylierung in Escherichia coli am besten erforscht , während die Systeme in Archaeen derzeit noch wenig verstanden sind. [ 57 ]
Der Hauptunterschied zwischen eukaryotischer und prokaryotischer oxidativer Phosphorylierung besteht darin, dass Bakterien und Archaeen viele verschiedene Substanzen zur Abgabe oder Aufnahme von Elektronen nutzen. Dies ermöglicht es Prokaryoten, unter verschiedensten Umweltbedingungen zu wachsen. [ 58 ] In E. coli beispielsweise kann die oxidative Phosphorylierung durch eine Vielzahl von Reduktions- und Oxidationsmittelpaaren angetrieben werden, die im Folgenden aufgeführt sind. Das Mittelpunktspotential einer chemischen Substanz gibt an, wie viel Energie bei ihrer Oxidation oder Reduktion freigesetzt wird; Reduktionsmittel besitzen negative, Oxidationsmittel positive Potentiale.
| Atmungsenzym | Redoxpaar | Mittelpunktpotenzial (Volt) |
|---|---|---|
| Ubiquinol-Oxidase | Sauerstoff / Wasser | +0,82 |
| Nitratreduktase | Nitrat / Nitrit | +0,42 |
| Nitritreduktase | Nitrit / Ammoniak | +0,36 |
| Dimethylsulfoxidreduktase | DMSO / DMS | +0,16 |
| Trimethylamin- N -oxid-Reduktase | TMAO / TMA | +0,13 |
| Fumaratreduktase | Fumarat / Succinat | +0,03 |
| Succinatdehydrogenase | Fumarat / Succinat | +0,03 |
| Glucose-Dehydrogenase | Gluconat / Glucose | −0,14 |
| Glycerin-3-phosphat-Dehydrogenase | DHAP / Gly-3-P | −0,19 |
| Laktatdehydrogenase | Pyruvat / Laktat | −0,19 |
| NADH-Dehydrogenase | NAD + / NADH | −0,32 |
| Hydrogenase | Proton / Wasserstoff | −0,42 |
| Formiatdehydrogenase | Bicarbonat / Formiat | −0,43 |
| D- Aminosäure-Dehydrogenase | 2-Oxosäure + Ammoniak / D -Aminosäure | ? |
| Pyruvatoxidase | Acetat + Kohlendioxid / Pyruvat | ? |
Wie oben gezeigt, kann E. coli mit Reduktionsmitteln wie Formiat, Wasserstoff oder Lactat als Elektronendonatoren und Nitrat, DMSO oder Sauerstoff als Akzeptoren wachsen. [ 58 ] Je größer die Differenz des Mittelpunktspotentials zwischen einem Oxidations- und einem Reduktionsmittel ist, desto mehr Energie wird bei ihrer Reaktion freigesetzt. Unter diesen Verbindungen ist das Succinat/Fumarat-Paar ungewöhnlich, da sein Mittelpunktspotential nahe null liegt. Succinat kann daher zu Fumarat oxidiert werden, wenn ein starkes Oxidationsmittel wie Sauerstoff vorhanden ist, oder Fumarat kann mit einem starken Reduktionsmittel wie Formiat zu Succinat reduziert werden. Diese alternativen Reaktionen werden durch Succinatdehydrogenase bzw. Fumaratreduktase katalysiert . [ 60 ]
Einige Prokaryoten nutzen Redoxpaare mit nur geringem Unterschied im Mittelpunktspotential. Beispielsweise oxidieren nitrifizierende Bakterien wie Nitrobacter Nitrit zu Nitrat und geben dabei Elektronen an Sauerstoff ab. Die geringe Energiemenge, die bei dieser Reaktion freigesetzt wird, reicht aus, um Protonen zu pumpen und ATP zu generieren, jedoch nicht, um NADH oder NADPH direkt für den Anabolismus zu bilden . [ 61 ] Dieses Problem wird durch eine Nitrit-Oxidoreduktase gelöst , die genügend protonenmotorische Kraft erzeugt, um einen Teil der Elektronentransportkette rückwärts laufen zu lassen. Dadurch wird Komplex I zur NADH-Generierung angeregt. [ 62 ] [ 63 ]
Prokaryoten regulieren die Nutzung dieser Elektronendonatoren und -akzeptoren, indem sie die Produktion bestimmter Enzyme in Abhängigkeit von den Umweltbedingungen anpassen. [ 64 ] Diese Flexibilität ist möglich, da verschiedene Oxidasen und Reduktasen denselben Ubichinon-Pool nutzen. Dadurch können zahlreiche Enzymkombinationen zusammenwirken, verbunden durch das gemeinsame Ubichinol-Zwischenprodukt. [ 59 ] Diese Atmungsketten weisen daher einen modularen Aufbau mit leicht austauschbaren Enzymsystemen auf.
Zusätzlich zu dieser metabolischen Vielfalt besitzen Prokaryoten auch eine Reihe von Isoenzymen – verschiedene Enzyme, die dieselbe Reaktion katalysieren. In E. coli beispielsweise gibt es zwei verschiedene Arten von Ubichinoloxidase, die Sauerstoff als Elektronenakzeptor nutzen. Unter stark aeroben Bedingungen verwendet die Zelle eine Oxidase mit geringer Sauerstoffaffinität, die zwei Protonen pro Elektron übertragen kann. Sinkt der Sauerstoffgehalt jedoch, wechselt die Zelle zu einer Oxidase, die nur ein Proton pro Elektron überträgt, aber eine hohe Sauerstoffaffinität aufweist. [ 65 ]
ATP-Synthase (Komplex V)
Die ATP-Synthase, auch Komplex V genannt , ist das letzte Enzym der oxidativen Phosphorylierung. Dieses Enzym kommt in allen Lebensformen vor und funktioniert in Prokaryoten und Eukaryoten auf dieselbe Weise. [ 66 ] Das Enzym nutzt die in einem Protonengradienten über eine Membran gespeicherte Energie, um die Synthese von ATP aus ADP und Phosphat (P <sub>i</sub> ) anzutreiben. Schätzungen der Anzahl der für die Synthese eines ATP-Moleküls benötigten Protonen variieren zwischen drei und vier, [ 67 ] [ 68 ] wobei einige Forscher vermuten, dass Zellen dieses Verhältnis an unterschiedliche Bedingungen anpassen können. [ 69 ]
| 6 |

Diese Phosphorylierungsreaktion ist ein Gleichgewicht , das durch Veränderung der protonenmotorischen Kraft verschoben werden kann. Fehlt eine protonenmotorische Kraft, verläuft die ATP-Synthase-Reaktion von rechts nach links, wobei ATP hydrolysiert und Protonen aus der Matrix durch die Membran gepumpt werden. Bei hoher protonenmotorischer Kraft hingegen wird die Reaktion in die entgegengesetzte Richtung gezwungen; sie verläuft von links nach rechts, wodurch Protonen ihrem Konzentrationsgradienten folgen und ADP in ATP umwandeln können. [ 66 ] Tatsächlich wird die Hydrolysereaktion in den eng verwandten vakuolären H⁺-ATPasen zur Ansäuerung zellulärer Kompartimente genutzt, indem Protonen gepumpt und ATP hydrolysiert wird. [ 70 ]
Die ATP-Synthase ist ein massiver Proteinkomplex von pilzförmiger Gestalt. Der Enzymkomplex von Säugetieren besteht aus 16 Untereinheiten und hat eine Masse von etwa 600 Kilodalton . [ 71 ] Der in die Membran eingebettete Teil wird als F <sub>0</sub> bezeichnet und enthält einen Ring aus c-Untereinheiten sowie den Protonenkanal. Der Stiel und das kugelförmige Kopfstück werden als F<sub> 1</sub> bezeichnet und sind der Ort der ATP-Synthese. Der kugelförmige Komplex am Ende des F<sub> 1 </sub>-Abschnitts enthält sechs Proteine zweier verschiedener Arten (drei α-Untereinheiten und drei β-Untereinheiten), während der Stiel aus einem Protein besteht: der γ-Untereinheit, deren Spitze in die Kugel aus α- und β-Untereinheiten hineinragt. [ 72 ] Sowohl die α- als auch die β-Untereinheiten binden Nukleotide, aber nur die β-Untereinheiten katalysieren die ATP-Synthesereaktion. Entlang der Seite des F 1- Abschnitts und zurück in die Membran erstreckt sich eine lange, stabförmige Untereinheit, die die α- und β-Untereinheiten an der Basis des Enzyms verankert.
Wenn Protonen durch den Kanal an der Basis der ATP-Synthase die Membran passieren, rotiert der F<sub> O </sub>-Protonenmotor. [ 73 ] Die Rotation könnte durch Veränderungen der Ionisation von Aminosäuren im Ring der c-Untereinheiten verursacht werden, die elektrostatische Wechselwirkungen hervorrufen und den Ring der c-Untereinheiten am Protonenkanal vorbeitreiben. [ 74 ] Dieser rotierende Ring treibt wiederum die Rotation der zentralen Achse (des γ-Untereinheiten-Stiels) innerhalb der α- und β-Untereinheiten an. Die α- und β-Untereinheiten werden durch den Seitenarm, der als Stator fungiert, an einer Rotation gehindert . Diese Bewegung der Spitze der γ-Untereinheit innerhalb der Kugel aus α- und β-Untereinheiten liefert die Energie, die die aktiven Zentren in den β-Untereinheiten benötigen, um einen Bewegungszyklus zu durchlaufen, der ATP produziert und anschließend freisetzt. [ 75 ]

Diese ATP-Synthesereaktion wird als Bindungsänderungsmechanismus bezeichnet und beinhaltet den Zyklus des aktiven Zentrums einer β-Untereinheit zwischen drei Zuständen. [ 76 ] Im „offenen“ Zustand gelangen ADP und Phosphat in das aktive Zentrum (braun dargestellt). Das Protein schließt sich dann um die Moleküle und bindet sie locker – der „lockere“ Zustand (rot dargestellt). Anschließend ändert das Enzym erneut seine Form und presst diese Moleküle zusammen, wobei das aktive Zentrum im resultierenden „festen“ Zustand (rosa dargestellt) das neu produzierte ATP-Molekül mit sehr hoher Affinität bindet . Schließlich kehrt das aktive Zentrum in den offenen Zustand zurück, gibt ATP frei und bindet erneut ADP und Phosphat, bereit für den nächsten Zyklus.
Bei einigen Bakterien und Archaeen wird die ATP-Synthese durch den Transport von Natriumionen durch die Zellmembran angetrieben, nicht durch den Transport von Protonen. [ 77 ] [ 78 ] Archaeen wie Methanococcus besitzen zudem die A <sub>1 </sub> A <sub> o </sub>-Synthase, eine Enzymform mit zusätzlichen Proteinen, die nur geringe Sequenzähnlichkeit zu anderen bakteriellen und eukaryotischen ATP-Synthase-Untereinheiten aufweisen. Es ist möglich, dass die A<sub> 1 </sub> A <sub> o</sub> -Form des Enzyms in einigen Arten eine spezialisierte, natriumgetriebene ATP-Synthase darstellt, [ 79 ] dies trifft jedoch möglicherweise nicht in allen Fällen zu. [ 78 ]
Reaktive Sauerstoffspezies
Molekularer Sauerstoff ist ein guter terminaler Elektronenakzeptor , da er ein starkes Oxidationsmittel ist. Die Reduktion von Sauerstoff führt jedoch zu potenziell schädlichen Zwischenprodukten. [ 80 ] Obwohl die Übertragung von vier Elektronen und vier Protonen Sauerstoff zu Wasser reduziert, welches harmlos ist, entstehen durch die Übertragung von einem oder zwei Elektronen Superoxid- oder Peroxidanionen , die hochreaktiv sind.
| 7 |

Diese reaktiven Sauerstoffspezies und ihre Reaktionsprodukte, wie beispielsweise das Hydroxylradikal , sind sehr schädlich für Zellen, da sie Proteine oxidieren und Mutationen in der DNA verursachen . Diese Zellschädigung kann zu Krankheiten beitragen und wird als eine Ursache des Alterns diskutiert . [ 81 ] [ 82 ]
Der Cytochrom-c-Oxidase-Komplex reduziert Sauerstoff hocheffizient zu Wasser und setzt nur wenige partiell reduzierte Zwischenprodukte frei; allerdings entstehen durch die Elektronentransportkette geringe Mengen an Superoxidanionen und Peroxiden. [ 83 ] Besonders wichtig ist die Reduktion von Coenzym Q in Komplex III, da im Q-Zyklus ein hochreaktives Ubi-Semichinon-Radikal als Zwischenprodukt gebildet wird. Diese instabile Spezies kann zu einem Elektronenverlust führen, wenn Elektronen direkt auf Sauerstoff übertragen werden und Superoxid bilden. [ 84 ] Da die Produktion reaktiver Sauerstoffspezies durch diese protonenpumpenden Komplexe bei hohen Membranpotentialen am größten ist, wird angenommen, dass Mitochondrien ihre Aktivität regulieren, um das Membranpotential in einem engen Bereich zu halten, der die ATP-Produktion mit der Oxidantienbildung ausgleicht. [ 85 ] Oxidantien können beispielsweise Entkopplungsproteine aktivieren , die das Membranpotential senken. [ 86 ]
Um diesen reaktiven Sauerstoffspezies entgegenzuwirken, enthalten die Zellen zahlreiche antioxidative Systeme, darunter antioxidative Vitamine wie Vitamin C und Vitamin E sowie antioxidative Enzyme wie Superoxiddismutase , Katalase und Peroxidasen [ 80 ] , die die reaktiven Spezies entgiften und so Schäden an der Zelle begrenzen.
Unter hypoxischen/anoxischen Bedingungen
Da Sauerstoff für die oxidative Phosphorylierung unerlässlich ist, kann ein Mangel an O₂ die ATP-Produktionsrate verändern. Die protonenmotorische Kraft und die ATP-Produktion können durch intrazelluläre Azidose aufrechterhalten werden. [ 87 ] Zytosolische Protonen, die sich durch ATP-Hydrolyse und Laktatazidose angesammelt haben, können frei durch die äußere Mitochondrienmembran diffundieren und den Intermembranraum ansäuern, wodurch sie direkt zur protonenmotorischen Kraft und zur ATP-Produktion beitragen.
Bei Sauerstoffmangel ( Hypoxie /Anoxie) erleiden die meisten Tiere Schäden an ihren Mitochondrien. [ 88 ] Bei manchen Arten können diese Zustände durch Umweltfaktoren wie Niedrigwasser [ 89 ] , niedrige Temperaturen [ 90 ] oder allgemeine Lebensbedingungen, beispielsweise das Leben in einem sauerstoffarmen unterirdischen Bau, hervorgerufen werden. [ 91 ] Beim Menschen treten diese Zustände häufig bei medizinischen Notfällen wie Schlaganfall , Ischämie und Asphyxie auf .
Trotzdem, oder vielleicht gerade deswegen, haben einige Arten eigene Abwehrmechanismen gegen Sauerstoffmangel/Hypoxie sowie gegen Reperfusion /Reoxygenierung entwickelt. Diese Mechanismen sind vielfältig und unterscheiden sich zwischen Endothermen und Ektothermen und können sogar innerhalb einer Art variieren.
Endotherme
Hypoxie-/Anoxieintoleranz
Die meisten Säugetiere und Vögel vertragen keinen oder nur geringen Sauerstoffgehalt. Im Herzen führt Sauerstoffmangel zu einer verminderten Aktivität der ersten vier Komplexe der Atmungskette. [ 88 ] Dadurch treten Protonen aus der inneren Mitochondrienmembran aus , da die Komplexe I , III und IV den Protonengradienten nicht aufrechterhalten können. Zusätzlich kommt es zu einem Elektronenleck (Elektronenverlust aus der Atmungskette), da die NADH-Dehydrogenase in Komplex I geschädigt wird. Dies ermöglicht die Bildung reaktiver Sauerstoffspezies (ROS ) während einer Ischämie. [ 92 ] In der Folge wird Komplex V inaktiviert und transportiert Protonen entgegen ihrem Konzentrationsgradienten aus der Matrix zurück in den Intermembranraum . Dieser Transport benötigt Energie, weshalb Komplex V ATP verbraucht. [ 93 ]
Reoxygenierung intoleranter Tiere
Wenn Sauerstoff wieder in den Organismus gelangt, stehen Tiere vor neuen Problemen. Da ATP während der anoxischen Phase verbraucht wurde, führt dies zu einem Mangel an ADP im System. [ 94 ] Dies ist auf den natürlichen Abbau von ADP zu AMP zurückzuführen, wodurch ADP aus dem System verbraucht wird. Ohne ADP kann Komplex V nicht aktiviert werden, sodass die Protonen nicht durch ihn in die Matrix fließen können. [ 94 ] Durch die Umkehrung der Aktivität von Komplex V während der Anoxie ist der Protonengradient hyperpolarisiert (er ist stark positiv geladen). Ein weiterer Faktor ist die Anreicherung von Succinat während der Anoxie. Bei der Wiederzufuhr von Sauerstoff gibt Succinat Elektronen an Komplex II ab . [ 95 ] [ 96 ] Der hyperpolarisierte Gradient und die Succinat-Anreicherung führen zu einem umgekehrten Elektronentransport und verursachen oxidativen Stress [ 97 ] , der zu Zellschäden und Krankheiten führen kann. [ 98 ]
Hypoxie-/Anoxietoleranz
Der Nacktmull ( Heterocephalus glaber ) ist eine hypoxietolerante Art, die in tiefen Bauten und in großen Kolonien schläft. Die Tiefe dieser Baute verringert den Sauerstoffzugang, und das Schlafen in großen Gruppen führt zu einem schnelleren Sauerstoffverbrauch als üblich und somit zu Hypoxie. [ 91 ] Der Nacktmull besitzt die einzigartige Fähigkeit, mehrere Stunden unter Sauerstoffmangel und 18 Minuten lang unter völliger Sauerstofffreiheit zu überleben. [ 99 ] Eine Möglichkeit, Hypoxie im Gehirn zu bekämpfen, besteht darin, die Abhängigkeit von Sauerstoff für die ATP-Produktion zu verringern. Dies wird durch eine verringerte Atmungsrate und einen reduzierten Protonenverlust erreicht. [ 91 ]
Reoxygenierung toleranter Tiere
Hypoxie-/Anoxie-tolerante Arten bewältigen die ROS-Produktion während der Reoxygenierung besser als intolerante. Im Kortex der Nacktmulle zeigen sie eine bessere Homöostase der ROS-Produktion als intolerante Arten und scheinen den typischen ROS-Anstieg bei der Reoxygenierung zu vermeiden. [ 99 ]
Ektotherme
Hypoxie-/Anoxieintoleranz
Die Forschung zu intoleranten Ektothermen ist begrenzter als die zu toleranten Ektothermen und intoleranten Endothermen. Es zeigt sich jedoch, dass sich die Anoxie-/Hypoxieintoleranz hinsichtlich der Überlebensdauer zwischen Endothermen und Ektothermen unterscheidet. Während intolerante Endotherme nur Minuten überleben, können intolerante Ektotherme Stunden überstehen, wie beispielsweise die im Subtidal lebende Jakobsmuschel ( Argopecten irradians ). [ 100 ] Dieser Unterschied in der Intoleranz könnte auf verschiedene Faktoren zurückzuführen sein. Ein Vorteil besteht darin, dass die innere Mitochondrienmembran ektothermer Tiere weniger durchlässig ist, sodass aufgrund von Unterschieden in der Zusammensetzung der Phospholipid-Doppelschicht weniger Protonen durch die innere Membran austreten . [ 93 ] Ein weiterer Vorteil von Ektothermen in dieser Kategorie ist die Fähigkeit ihrer Mitochondrien, in einem breiten Temperaturbereich ordnungsgemäß zu funktionieren, wie beispielsweise bei der Westlichen Zauneidechse ( Sceloporus occidentalis ). Obwohl westliche Zauneidechsen nicht als hypoxietolerante Tiere gelten, zeigten ihre Mitochondrien dennoch eine geringere Temperaturempfindlichkeit als die von Mäusen. [ 101 ]
Reoxygenierung intoleranter Tiere
Es ist zwar unklar, wie sich die Reoxygenierung auf mitochondriale Ebene auf intolerante ektotherme Organismen auswirkt, doch einige Studien zeigen, wie manche von ihnen reagieren. Beim hypoxieempfindlichen Schaufelrochen ( Aptychotrema rostrata ) ist die ROS-Produktion nach Reoxygenierung geringer als bei Rochen, die nur Normoxie (normalen Sauerstoffwerten) ausgesetzt waren. [ 89 ] Dies unterscheidet sich von hypoxieempfindlichen Endothermen, bei denen die ROS-Produktion ansteigt. Die Werte des Rochens waren jedoch immer noch höher als beim hypoxietoleranteren Epaulettenhai ( Hemiscyllum ocellatum ), der möglicherweise aufgrund der in Riffplattformen auftretenden Niedrigwasserphasen Hypoxie ausgesetzt ist. [ 89 ] Bei subtidalen Jakobsmuscheln kommt es während der Reoxygenierung sowohl zu einer Abnahme der maximalen Atmung als auch zu einer Depolarisation der Membran. [ 100 ]
Hypoxie-/Anoxietoleranz
Hypoxie-/Anoxie-tolerante ektotherme Tiere haben einzigartige Strategien zum Überleben von Sauerstoffmangel entwickelt. Teichschildkröten wie die Zierschildkröte ( Chrysemys picta bellii ) erleben im Winter Sauerstoffmangel, da sie am Grund zugefrorener Teiche überwintern. [ 90 ] In ihren Herzmuskelmitochondrien werden während des Sauerstoffmangels die Umkehrung des Komplexes V [ 102 ] , der ATP-Verbrauch und die Succinatbildung verhindert. [ 94 ] Auch Karauschen ( Carassius carassius ) überwintern in zugefrorenen Teichen und zeigen während des Sauerstoffmangels keinen Verlust des Membranpotenzials in ihren Herzmuskelmitochondrien. Dies ist jedoch auf die Aktivität der Komplexe I und III angewiesen. [ 103 ]
Reoxygenierung toleranter Tiere
Teichschildkröten können die ROS-Produktion bei der Reoxygenierung vollständig vermeiden. [ 104 ] Karauschen hingegen können dies nicht und sind nicht in der Lage, den Tod von Gehirnzellen bei der Reoxygenierung zu verhindern. [ 105 ]
Inhibitoren
Es gibt mehrere bekannte Medikamente und Toxine , die die oxidative Phosphorylierung hemmen. Obwohl jedes dieser Toxine nur ein Enzym der Atmungskette hemmt, führt die Hemmung eines beliebigen Schrittes in diesem Prozess zum Stillstand des gesamten Prozesses. Hemmt beispielsweise Oligomycin die ATP-Synthase, können Protonen nicht mehr in das Mitochondrium zurückfließen. [ 106 ] Infolgedessen können die Protonenpumpen nicht mehr arbeiten, da der Konzentrationsgradient zu stark wird, um ihn zu überwinden. NADH wird dann nicht mehr oxidiert, und der Citratzyklus kommt zum Erliegen, da die NAD + -Konzentration unter die für diese Enzyme notwendige Konzentration sinkt.
Zahlreiche ortsspezifische Inhibitoren der Elektronentransportkette haben zum heutigen Verständnis der mitochondrialen Atmung beigetragen. Da die ATP-Synthese ebenfalls von der Elektronentransportkette abhängt, hemmen alle ortsspezifischen Inhibitoren auch die ATP-Bildung. Das Fischgift Rotenon , das Barbiturat Amytal und das Antibiotikum Piericidin A hemmen NADH und Coenzym Q. [ 107 ]
Kohlenmonoxid , Cyanid , Schwefelwasserstoff und Azid hemmen die Cytochromoxidase wirksam. Kohlenmonoxid reagiert mit der reduzierten Form des Cytochroms, während Cyanid und Azid mit der oxidierten Form reagieren. Das Antibiotikum Antimycin A und das britische Anti-Lewisit , ein Gegenmittel gegen chemische Waffen, sind zwei wichtige Inhibitoren der Bindungsstelle zwischen Cytochrom B und C1. [ 107 ]
| Verbindungen | Verwenden | Handlungsort | Auswirkung auf die oxidative Phosphorylierung |
|---|---|---|---|
| Cyanid Kohlenmonoxid Azid Schwefelwasserstoff | Gifte | Komplex IV | Die Elektronentransportkette wird gehemmt, indem stärker als Sauerstoff an das Fe - Cu- Zentrum der Cytochrom-c-Oxidase gebunden wird, wodurch die Reduktion von Sauerstoff verhindert wird. [ 108 ] |
| Oligomycin | Antibiotikum | Komplex V | Hemmt die ATP-Synthase durch Blockierung des Protonenflusses durch die F o- Untereinheit. [ 106 ] |
| CCCP 2,4-Dinitrophenol | Vergiftungen, Gewichtsverlust [ N 2 ] | Innere Membran | Ionophore stören den Protonengradienten, indem sie Protonen durch eine Membran transportieren. Dieser Ionophor entkoppelt das Protonenpumpen von der ATP-Synthese, da er Protonen durch die innere Mitochondrienmembran transportiert. [ 109 ] |
| Rotenon | Pestizid | Komplex I | Verhindert den Elektronentransfer von Komplex I zu Ubichinon durch Blockierung der Ubichinon-Bindungsstelle. [ 110 ] |
| Malonat und Oxalacetat | Gifte | Komplex II | Kompetitive Inhibitoren der Succinatdehydrogenase (Komplex II). [ 111 ] |
| Antimycin A | Fischmord | Komplex III | Bindet an die Qi-Bindungsstelle der Cytochrom-c-Reduktase und hemmt dadurch die Oxidation von Ubichinol . |
Nicht alle Inhibitoren der oxidativen Phosphorylierung sind toxisch. Im braunen Fettgewebe können regulierte Protonenkanäle, sogenannte Entkopplungsproteine, die Zellatmung von der ATP-Synthese entkoppeln. [ 112 ] Diese beschleunigte Atmung erzeugt Wärme und ist besonders wichtig für die Aufrechterhaltung der Körpertemperatur bei Winterschläfern , obwohl diese Proteine möglicherweise auch eine allgemeinere Funktion bei zellulären Stressreaktionen haben. [ 113 ]
Geschichte
Das Gebiet der oxidativen Phosphorylierung begann 1906 mit Arthur Hardens Bericht über die entscheidende Rolle von Phosphat bei der zellulären Gärung . Anfänglich waren jedoch nur Zuckerphosphate als beteiligt bekannt. [ 114 ] Anfang der 1940er Jahre wurde der Zusammenhang zwischen der Oxidation von Zuckern und der ATP-Synthese von Herman Kalckar [ 115 ] eindeutig nachgewiesen . Damit wurde die zentrale Rolle von ATP im Energietransfer bestätigt, die Fritz Albert Lipmann bereits 1941 postuliert hatte . [ 116 ] 1949 bewiesen Morris Friedkin und Albert L. Lehninger , dass das Coenzym NADH Stoffwechselwege wie den Citratzyklus mit der ATP-Synthese verknüpft. [ 117 ] Der Begriff „oxidative Phosphorylierung“ wurde 1939 von Volodymyr Belitser geprägt . [ 118 ] [ 119 ]
Weitere zwanzig Jahre blieb der Mechanismus der ATP-Synthese ein Rätsel. Wissenschaftler suchten nach einem schwer fassbaren „energiereichen Zwischenprodukt“, das Oxidations- und Phosphorylierungsreaktionen miteinander verbinden sollte. [ 120 ] Peter D. Mitchell löste dieses Rätsel 1961 mit der Veröffentlichung der chemiosmotischen Theorie . [ 121 ] Anfänglich war dieser Vorschlag höchst umstritten, setzte sich aber allmählich durch, und Mitchell erhielt 1978 den Nobelpreis . [ 122 ] [ 123 ] Die nachfolgende Forschung konzentrierte sich auf die Reinigung und Charakterisierung der beteiligten Enzyme. Wesentliche Beiträge leisteten David E. Green zu den Komplexen der Elektronentransportkette sowie Efraim Racker zur ATP-Synthase. [ 124 ] Einen entscheidenden Schritt zur Aufklärung des Mechanismus der ATP-Synthase leistete Paul D. Boyer mit der Entwicklung des „Bindungsänderungsmechanismus“ im Jahr 1973, gefolgt von seinem radikalen Vorschlag der Rotationskatalyse im Jahr 1982. [ 76 ] [ 125 ] Zu den neueren Arbeiten zählen Strukturuntersuchungen der an der oxidativen Phosphorylierung beteiligten Enzyme durch John E. Walker , für die Walker und Boyer 1997 den Nobelpreis erhielten. [ 126 ]
Siehe auch
Anmerkungen
- ^ (UK / ɒ k ˈ s ɪ d . ə . t ɪ v / , US / ˈ ɑː k . s ɪ ˌ d eɪ . t ɪ v / : "Oxidativ" . Cambridge Dictionary . Archiviert vom Original am 24. Januar 2018. Abgerufen am 28. April 2018 .
- DNP wurde in den 1930er Jahren häufig als Mittel gegen Fettleibigkeit eingesetzt , aufgrund seiner gefährlichen Nebenwirkungen jedoch schließlich vom Markt genommen. Der illegale Gebrauch des Medikaments zu diesem Zweck besteht jedoch bis heute.Weitere Informationen finden Sie unter 2,4-Dinitrophenol#Diäthilfe .
Referenzen
- ^ Voet D, Voet JG (2004). Biochemie . Wiley internationale Ausgabe (3. Aufl.). New York, NY: Wiley. P. 804. ISBN 978-0-471-19350-0Die
- ^ Mitchell P, Moyle J (Januar 1967). „ Chemiosmotische Hypothese der oxidativen Phosphorylierung“. Nature . 213 (5072): 137–139 . Bibcode : 1967Natur.213..137M . doi : 10.1038/213137a0 . PMID 4291593. S2CID 4149605 .
- Dimroth P, Kaim G, Matthey U (Januar 2000). „Die entscheidende Rolle des Membranpotentials für die ATP-Synthese durch F(1)F(o)-ATP-Synthasen“ . The Journal of Experimental Biology . 203 (Teil 1): 51–59 . Bibcode : 2000JExpB.203 ...51D . doi : 10.1242/jeb.203.1.51 . PMID 10600673. Archiviert vom Original am 30. September 2007 .
- ^ a b c d Schultz BE, Chan SI (2001). „Strukturen und Protonenpumpstrategien mitochondrialer Atmungsenzyme“ . Annual Review of Biophysics and Biomolecular Structure . 30 : 23–65 . doi : 10.1146/annurev.biophys.30.1.23 . PMID 11340051 .
- ^ Rich PR (Dezember 2003). „Die molekularen Mechanismen der Keilin-Atmungskette“. Biochemical Society Transactions . 31 (Teil 6): 1095–1105 . doi : 10.1042/bst0311095 . PMID 14641005 .
- ^ Porter RK, Brand MD (September 1995). „Mitochondriale Protonenleitfähigkeit und H+/O-Verhältnis sind unabhängig von der Elektronentransportrate in isolierten Hepatozyten“ . The Biochemical Journal . 310 (Pt 2): 379–382 . doi : 10.1042/bj3100379 . PMC 1135905. PMID 7654171 .
- ^ Mathews FS (1985). „Die Struktur, Funktion und Evolution der Cytochrome“ . Progress in Biophysics and Molecular Biology . 45 (1): 1–56 . doi : 10.1016/0079-6107(85)90004-5 . PMID 3881803 .
- ^ Wood PM (Dezember 1983). „Warum existieren Cytochrome vom Typ c?“ FEBS Letters . 164 ( 2): 223–226 . Bibcode : 1983FEBSL.164..223W . doi : 10.1016/0014-5793(83)80289-0 . PMID 6317447. S2CID 7685958 .
- ^ Crane FL (Dezember 2001). „Biochemische Funktionen von Coenzym Q10“. Journal of the American College of Nutrition . 20 (6): 591–598 . doi : 10.1080/07315724.2001.10719063 . PMID 11771674. S2CID 28013583 .
- ^ Mitchell P (Dezember 1979). „Keilins Atmungskettenkonzept und seine chemiosmotischen Konsequenzen“. Science . 206 (4423): 1148–1159 . Bibcode : 1979Sci...206.1148M . doi : 10.1126/science.388618 . PMID 388618 .
- ^ Søballe B, Poole RK (August 1999). „Mikrobielle Ubichinone: Vielfältige Funktionen in Atmung, Genregulation und oxidativem Stressmanagement“ ( PDF) . Microbiology . 145 (8): 1817–1830 . doi : 10.1099/13500872-145-8-1817 . PMID 10463148. Archiviert (PDF) vom Original am 29.05.2008.
- ^ Johnson DC, Dean DR, Smith AD, Johnson MK (2005). „Struktur, Funktion und Bildung biologischer Eisen-Schwefel-Cluster“. Annual Review of Biochemistry . 74 : 247–281 . doi : 10.1146/annurev.biochem.74.082803.133518 . PMID 15952888 .
- ^ Page CC, Moser CC, Chen X, Dutton PL (November 1999). „Natural engineering principles of electron tunnelling in biological oxidation-reduction“. Nature . 402 ( 6757): 47–52 . Bibcode : 1999Natur.402...47P . doi : 10.1038/46972 . PMID 10573417. S2CID 4431405 .
- ^Leys D, Scrutton NS (December 2004). "Electrical circuitry in biology: emerging principles from protein structure". Current Opinion in Structural Biology. 14 (6): 642–647. doi:10.1016/j.sbi.2004.10.002. PMID 15582386.
- ^Boxma B, de Graaf RM, van der Staay GW, van Alen TA, Ricard G, Gabaldón T, et al. (March 2005). "An anaerobic mitochondrion that produces hydrogen". Nature. 434 (7029): 74–79. Bibcode:2005Natur.434...74B. doi:10.1038/nature03343. hdl:11370/de48e914-ff0e-4707-8325-0f63ca48a67c. PMID 15744302. S2CID 4401178.
- ^ abcdefghMedical CHEMISTRY Compendium. By Anders Overgaard Pedersen and Henning Nielsen. Aarhus University. 2008
- ^ abHirst J (June 2005). "Energy transduction by respiratory complex I--an evaluation of current knowledge". Biochemical Society Transactions. 33 (Pt 3): 525–529. doi:10.1042/BST0330525. PMID 15916556.
- ^ abLenaz G, Fato R, Genova ML, Bergamini C, Bianchi C, Biondi A (2006). "Mitochondrial Complex I: structural and functional aspects". Biochimica et Biophysica Acta (BBA) - Bioenergetics. 1757 (9–10): 1406–1420. doi:10.1016/j.bbabio.2006.05.007. PMID 16828051.
- ^ abSazanov LA, Hinchliffe P (March 2006). "Structure of the hydrophilic domain of respiratory complex I from Thermus thermophilus". Science. 311 (5766): 1430–1436. Bibcode:2006Sci...311.1430S. doi:10.1126/science.1123809. PMID 16469879. S2CID 1892332.
- ^Efremov RG, Baradaran R, Sazanov LA (May 2010). "The architecture of respiratory complex I". Nature. 465 (7297): 441–445. Bibcode:2010Natur.465..441E. doi:10.1038/nature09066. PMID 20505720. S2CID 4372778.
- ^Baranova EA, Holt PJ, Sazanov LA (February 2007). "Projection structure of the membrane domain of Escherichia coli respiratory complex I at 8 A resolution". Journal of Molecular Biology. 366 (1): 140–154. doi:10.1016/j.jmb.2006.11.026. PMID 17157874.
- ^Friedrich T, Böttcher B (January 2004). "The gross structure of the respiratory complex I: a Lego System". Biochimica et Biophysica Acta (BBA) - Bioenergetics. 1608 (1): 1–9. doi:10.1016/j.bbabio.2003.10.002. PMID 14741580.
- ^Hirst J (December 2009). "Towards the molecular mechanism of respiratory complex I". The Biochemical Journal. 425 (2): 327–339. doi:10.1042/BJ20091382. PMID 20025615.
- ^Cecchini G (2003). "Function and structure of complex II of the respiratory chain". Annual Review of Biochemistry. 72: 77–109. doi:10.1146/annurev.biochem.72.121801.161700. PMID 14527321.
- ^Yankovskaya V, Horsefield R, Törnroth S, Luna-Chavez C, Miyoshi H, Léger C, et al. (January 2003). "Architecture of succinate dehydrogenase and reactive oxygen species generation". Science. 299 (5607): 700–704. Bibcode:2003Sci...299..700Y. doi:10.1126/science.1079605. PMID 12560550. S2CID 29222766.
- ^Horsefield R, Iwata S, Byrne B (April 2004). "Complex II from a structural perspective". Current Protein & Peptide Science. 5 (2): 107–118. doi:10.2174/1389203043486847. PMID 15078221.
- ^ Kita K, Hirawake H, Miyadera H, Amino H, Takeo S (Januar 2002). „Rolle von Komplex II bei der anaeroben Atmung der Parasitenmitochondrien aus Ascaris suum und Plasmodium falciparum“ . Biochimica et Biophysica Acta (BBA) – Bioenergetik . 1553 ( 1– 2): 123– 139. doi : 10.1016/S0005-2728(01)00237-7 . PMID 11803022 .
- ^ Painter HJ, Morrisey JM, Mather MW, Vaidya AB (März 2007). „Spezifische Rolle des mitochondrialen Elektronentransports im Blutstadium von Plasmodium falciparum“. Nature . 446 ( 7131): 88–91 . Bibcode : 2007Natur.446...88P . doi : 10.1038/nature05572 . PMID 17330044. S2CID 4421676 .
- ^ Ramsay RR, Steenkamp DJ, Husain M (Februar 1987). „Reaktionen des Elektronentransfer-Flavoproteins und der Elektronentransfer-Flavoprotein: Ubichinon-Oxidoreduktase“ . The Biochemical Journal . 241 (3): 883–892 . doi : 10.1042/ bj2410883 . PMC 1147643. PMID 3593226 .
- ^ Zhang J, Frerman FE, Kim JJ (Oktober 2006). „Struktur der Elektronentransfer-Flavoprotein-Ubichinon-Oxidoreduktase und Elektronentransfer zum mitochondrialen Ubichinonpool“ . Proceedings of the National Academy of Sciences of the United States of America . 103 (44): 16212–16217 . Bibcode : 2006PNAS..10316212Z . doi : 10.1073/pnas.0604567103 . PMC 1637562. PMID 17050691 .
- ^ Ikeda Y, Dabrowski C, Tanaka K (Januar 1983). „Separation and properties of five distinct acyl-CoA dehydrogenases from rat liver mitochondria. Identification of a new 2-methyl branched chain acyl-CoA dehydrogenase“ . The Journal of Biological Chemistry . 258 (2): 1066–1076 . doi : 10.1016/S0021-9258(18)33160-0 . PMID 6401712. Archiviert vom Original am 29. September 2007 .
- ^ Ruzicka FJ, Beinert H (Dezember 1977). „Ein neues Eisen-Schwefel-Flavoprotein der Atmungskette. Eine Komponente des Fettsäure-β-Oxidationswegs“ ( PDF) . The Journal of Biological Chemistry . 252 (23): 8440–8445 . doi : 10.1016/S0021-9258(19)75238-7 . PMID 925004. Archiviert (PDF) vom Original am 27.09.2007.
- ^ Ishizaki K, Larson TR, Schauer N, Fernie AR, Graham IA, Leaver CJ (September 2005). „Die entscheidende Rolle der Arabidopsis-Elektronentransfer-Flavoprotein:Ubichinon-Oxidoreduktase während des durch Dunkelheit induzierten Nährstoffmangels“ . The Plant Cell . 17 (9): 2587–2600 . Bibcode : 2005PlanC..17.2587I . doi : 10.1105/tpc.105.035162 . PMC 1197437. PMID 16055629 .
- ^ Berry EA, Guergova-Kuras M, Huang LS, Crofts AR (2000). „Struktur und Funktion von Cytochrom-bc-Komplexen“ ( PDF ) . Annual Review of Biochemistry . 69 : 1005–1075 . CiteSeerX 10.1.1.319.5709 . doi : 10.1146/annurev.biochem.69.1.1005 . PMID 10966481. Archiviert (PDF) vom Original am 28.12.2015.
- ^ Crofts AR (2004). „Der Cytochrom-bc1-Komplex: Funktion im Kontext der Struktur“. Annual Review of Physiology . 66 : 689–733 . doi : 10.1146/annurev.physiol.66.032102.150251 . PMID 14977419 .
- ^ Iwata S, Lee JW, Okada K, Lee JK, Iwata M, Rasmussen B, et al. (Juli 1998). „Vollständige Struktur des aus 11 Untereinheiten bestehenden mitochondrialen Cytochrom-bc1-Komplexes vom Rind“. Science . 281 (5373): 64–71 . Bibcode : 1998Sci...281...64I . doi : 10.1126/science.281.5373.64 . PMID 9651245 .
- Trumpower BL (Juli 1990). „Der protonenmotorische Q-Zyklus. Energietransduktion durch Kopplung der Protonentranslokation an den Elektronentransfer durch den Cytochrom-bc1-Komplex“ ( PDF) . The Journal of Biological Chemistry . 265 (20): 11409–11412 . doi : 10.1016/S0021-9258(19)38410-8 . PMID 2164001. Archiviert (PDF) vom Original am 27.09.2007.
- ^ Hunte C, Palsdottir H, Trumpower BL (Juni 2003). „Protonenmotorische Wege und Mechanismen im Cytochrom-bc1-Komplex“ . FEBS Letters . 545 (1): 39–46 . Bibcode : 2003FEBSL.545...39H . doi : 10.1016 / S0014-5793(03)00391-0 . PMID 12788490. S2CID 13942619 .
- ^ Calhoun MW, Thomas JW, Gennis RB (August 1994). „Die Cytochromoxidase-Superfamilie redoxgetriebener Protonenpumpen“. Trends in Biochemical Sciences . 19 (8): 325–330 . doi : 10.1016/0968-0004(94)90071-X . PMID 7940677 .
- ^ Tsukihara T, Aoyama H, Yamashita E, Tomizaki T, Yamaguchi H, Shinzawa-Itoh K, et al. (Mai 1996). „Die Gesamtstruktur der oxidierten Cytochrom-c-Oxidase mit 13 Untereinheiten bei 2,8 Å“. Science . 272 ( 5265): 1136–1144 . Bibcode : 1996Sci...272.1136T . doi : 10.1126/science.272.5265.1136 . PMID 8638158. S2CID 20860573 .
- ^ Yoshikawa S, Muramoto K, Shinzawa-Itoh K, Aoyama H, Tsukihara T, Shimokata K, et al. (2006). „Protonenpumpmechanismus der Cytochrom-C-Oxidase des Rinderherzens“ . Biochimica et Biophysica Acta (BBA) – Bioenergetik . 1757 ( 9– 10): 1110– 1116. doi : 10.1016/j.bbabio.2006.06.004 . PMID 16904626 .
- ^ Rasmusson AG, Soole KL, Elthon TE (2004). „Alternative NAD(P)H-Dehydrogenasen von Pflanzenmitochondrien“. Annual Review of Plant Biology . 55 : 23–39 . doi : 10.1146/annurev.arplant.55.031903.141720 . PMID 15725055 .
- ^ Menz RI, Day DA (September 1996). „Reinigung und Charakterisierung einer 43 kDa großen, Rotenon-unempfindlichen NADH - Dehydrogenase aus Pflanzenmitochondrien“ . The Journal of Biological Chemistry . 271 (38): 23117–23120 . doi : 10.1074/jbc.271.38.23117 . PMID 8798503. S2CID 893754 .
- ^ McDonald A, Vanlerberghe G (Juni 2004). „Verzweigter mitochondrialer Elektronentransport im Tierreich: Vorkommen alternativer Oxidase in verschiedenen Tierstämmen“ . IUBMB Life . 56 (6): 333–341 . doi : 10.1080/1521-6540400000876 . PMID 15370881 .
- ^ Sluse FE, Jarmuszkiewicz W (Juni 1998). „Alternative Oxidase im verzweigten mitochondrialen Atmungsnetzwerk: Ein Überblick über Struktur, Funktion, Regulation und Rolle“ . Brazilian Journal of Medical and Biological Research = Revista Brasileira de Pesquisas Medicas e Biologicas . 31 (6): 733–747 . doi : 10.1590/S0100-879X1998000600003 . PMID 9698817 .
- ^ Moore AL, Siedow JN (August 1991). „Die Regulation und Natur der cyanidresistenten alternativen Oxidase von Pflanzenmitochondrien“. Biochimica et Biophysica Acta (BBA) - Bioenergetics . 1059 (2): 121–140 . doi : 10.1016/S0005-2728(05)80197-5 . PMID 1883834 .
- ^ Vanlerberghe GC, McIntosh L (Juni 1997). „Alternative Oxidase: Vom Gen zur Funktion“. Annual Review of Plant Physiology and Plant Molecular Biology . 48 : 703–734 . doi : 10.1146/annurev.arplant.48.1.703 . PMID 15012279 .
- ^ Ito Y, Saisho D, Nakazono M, Tsutsumi N, Hirai A (Dezember 1997). „Die Transkriptwerte tandemförmig angeordneter alternativer Oxidase-Gene in Reis werden durch niedrige Temperaturen erhöht.“ Gen. 203 (2): 121–129 . doi : 10.1016/S0378-1119(97)00502-7 . PMID 9426242 .
- ^ Maxwell DP, Wang Y, McIntosh L (Juli 1999). „Die alternative Oxidase senkt die mitochondriale Produktion reaktiver Sauerstoffspezies in Pflanzenzellen“ . Proceedings of the National Academy of Sciences of the United States of America . 96 (14): 8271–8276 . Bibcode : 1999PNAS...96.8271M . doi : 10.1073 / pnas.96.14.8271 . PMC 22224. PMID 10393984 .
- ^ Lenaz G (Dezember 2001). „Eine kritische Bewertung des mitochondrialen Coenzym-Q-Pools“ . FEBS Letters . 509 (2): 151–155 . Bibcode : 2001FEBSL.509..151L . doi : 10.1016/S0014-5793(01)03172-6 . PMID 11741580. S2CID 46138989 .
- ^ Heinemeyer J, Braun HP, Boekema EJ, Kouril R (April 2007). „ Ein Strukturmodell des Cytochrom-C-Reduktase/Oxidase-Superkomplexes aus Hefemitochondrien“ . The Journal of Biological Chemistry . 282 (16): 12240–12248 . doi : 10.1074/jbc.M610545200 . hdl : 11370 / 7eb43dde-007b-4ba7-887b-bb4e29d6088b . PMID 17322303. S2CID 18123642 .
- ^ Schägger H, Pfeiffer K (April 2000). „Superkomplexe in den Atmungsketten von Hefe- und Säugetiermitochondrien“ . The EMBO Journal . 19 (8): 1777–1783 . doi : 10.1093/ emboj /19.8.1777 . PMC 302020. PMID 10775262 .
- ^ Schägger H (September 2002). „Respiratory chain supercomplexes of mitochondria and bacteria“ . Biochimica et Biophysica Acta (BBA) - Bioenergetics . 1555 ( 1–3 ): 154–159 . doi : 10.1016/S0005-2728(02)00271-2 . PMID 12206908 .
- ^ Schägger H, Pfeiffer K (Oktober 2001). „Das Verhältnis der Komplexe IV der oxidativen Phosphorylierung in Rinderherzmitochondrien und die Zusammensetzung der Superkomplexe der Atmungskette“ . The Journal of Biological Chemistry . 276 (41): 37861–37867 . doi : 10.1074/jbc.M106474200 . PMID 11483615. Archiviert vom Original am 29.09.2007.
- ^ Gupte S, Wu ES, Hoechli L, Hoechli M, Jacobson K, Sowers AE, et al. (Mai 1984). „Beziehung zwischen lateraler Diffusion, Kollisionsfrequenz und Elektronentransfer von Redoxkomponenten der mitochondrialen Innenmembran“ . Proceedings of the National Academy of Sciences of the United States of America . 81 (9): 2606–2610 . Bibcode : 1984PNAS...81.2606G . doi : 10.1073 / pnas.81.9.2606 . PMC 345118. PMID 6326133 .
- ^ Nealson KH (Januar 1999). „Post-Viking-Mikrobiologie: Neue Ansätze, neue Daten, neue Erkenntnisse“. Origins of Life and Evolution of the Biosphere . 29 (1): 73–93 . Bibcode : 1999OLEB...29...73N . doi : 10.1023/A: 1006515817767 . PMID 11536899. S2CID 12289639 .
- Schäfer G, Engelhard M, Müller V (September 1999). „Bioenergetik der Archaeen“ . Microbiology and Molecular Biology Reviews . 63 (3): 570–620 . doi : 10.1128/MMBR.63.3.570-620.1999 . PMC 103747. PMID 10477309 .
- ^ a b Ingledew WJ, Poole RK (September 1984). „ Die Atmungsketten von Escherichia coli“ . Microbiological Reviews . 48 (3): 222–271 . doi : 10.1128/mmbr.48.3.222-271.1984 . PMC 373010. PMID 6387427 .
- Unden G, Bongaerts J (Juli 1997). „Alternative Atmungswege von Escherichia coli: Energetik und Transkriptionsregulation in Reaktion auf Elektronenakzeptoren“ . Biochimica et Biophysica Acta (BBA) - Bioenergetics . 1320 ( 3 ): 217–234 . doi : 10.1016/S0005-2728(97)00034-0 . PMID 9230919 .
- ^ Cecchini G, Schröder I, Gunsalus RP, Maklashina E (Januar 2002). „Succinatdehydrogenase und Fumaratreduktase aus Escherichia coli“ . Biochimica et Biophysica Acta (BBA) – Bioenergetics . 1553 ( 1–2 ): 140–157 . doi : 10.1016/S0005-2728(01)00238-9 . PMID 11803023 .
- ^ Freitag A, Bock E (1990). „Energieerhaltung in Nitrobacter“ . FEMS Microbiology Letters . 66 ( 1–3 ): 157–62 . doi : 10.1111/j.1574-6968.1990.tb03989.x .
- ^ Starkenburg SR, Chain PS, Sayavedra-Soto LA, Hauser L, Land ML, Larimer FW, et al. (März 2006). „Genomsequenz des chemolithoautotrophen, nitritoxidierenden Bakteriums Nitrobacter winogradskyi Nb-255“ . Applied and Environmental Microbiology . 72 (3): 2050–2063 . Bibcode : 2006ApEnM..72.2050S . doi : 10.1128/AEM.72.3.2050-2063.2006 . PMC 1393235. PMID 16517654 .
- ^ Yamanaka T, Fukumori Y (Dezember 1988). „Das Nitrit-Oxidationssystem von Nitrobacter winogradskyi“ . FEMS Microbiology Reviews . 54 (4): 259–270 . doi : 10.1111/j.1574-6968.1988.tb02746.x . PMID 2856189 .
- ^ Iuchi S, Lin EC (Juli 1993). „ Anpassung von Escherichia coli an Redoxumgebungen durch Genexpression“. Molecular Microbiology . 9 (1): 9–15 . doi : 10.1111/j.1365-2958.1993.tb01664.x . PMID 8412675. S2CID 39165641 .
- ^ Calhoun MW, Oden KL, Gennis RB, de Mattos MJ, Neijssel OM (Mai 1993). „Energieeffizienz von Escherichia coli: Auswirkungen von Mutationen in Komponenten der aeroben Atmungskette“ ( PDF ) . Journal of Bacteriology . 175 (10): 3020–3025 . doi : 10.1128/jb.175.10.3020-3025.1993 . PMC 204621. PMID 8491720. Archiviert (PDF) vom Original am 27.09.2007.
- ^ a b Boyer PD (1997). „Die ATP-Synthase – eine brillante molekulare Maschine“. Annual Review of Biochemistry . 66 : 717–749 . doi : 10.1146/annurev.biochem.66.1.717 . PMID 9242922 .
- ^ Van Walraven HS, Strotmann H, Schwarz O, Rumberg B (Februar 1996). „Das H+/ATP-Kopplungsverhältnis der ATP-Synthase aus thiolmodulierten Chloroplasten und zwei Cyanobakterienstämmen beträgt vier“. FEBS Letters . 379 (3): 309–313 . Bibcode : 1996FEBSL.379..309V . doi : 10.1016/0014-5793(95)01536-1 . PMID 8603713. S2CID 35989618 .
- ^ Yoshida M, Muneyuki E, Hisabori T (September 2001). „ATP-Synthase – ein wunderbarer Rotationsmotor der Zelle“. Nature Reviews Molecular Cell Biology . 2 (9): 669–677 . doi : 10.1038/35089509 . PMID 11533724. S2CID 3926411 .
- ^ Schmidt RA, Qu J, Williams JR, Brusilow WS (Juni 1998). „Einfluss der Kohlenstoffquelle auf die Expression von F0-Genen und auf die Stöchiometrie der c-Untereinheit in der F1F0-ATPase von Escherichia coli“ . Journal of Bacteriology . 180 (12): 3205–3208 . doi : 10.1128/jb.180.12.3205-3208.1998 . PMC 107823. PMID 9620972 .
- ^ Nelson N, Perzov N, Cohen A, Hagai K, Padler V, Nelson H (Januar 2000). „Die Zellbiologie der protonenmotorischen Krafterzeugung durch V-ATPasen“ . The Journal of Experimental Biology . 203 (Teil 1): 89–95 . Bibcode : 2000JExpB.203...89N . doi : 10.1242/jeb.203.1.89 . PMID 10600677. Archiviert vom Original am 30. September 2007 .
- ^ Rubinstein JL, Walker JE, Henderson R (Dezember 2003). „Struktur der mitochondrialen ATP-Synthase mittels Kryo-Elektronenmikroskopie“ . The EMBO Journal . 22 (23): 6182–6192 . doi : 10.1093/emboj/cdg608 . PMC 291849. PMID 14633978 .
- ^ Leslie AG, Walker JE (April 2000). „Strukturmodell der F1-ATPase und seine Bedeutung für die Rotationskatalyse“ . Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 355 (1396): 465–471 . doi : 10.1098 / rstb.2000.0588 . PMC 1692760. PMID 10836500 .
- ^ Noji H, Yoshida M (Januar 2001). „Die Rotationsmaschine in der Zelle, die ATP-Synthase“ . The Journal of Biological Chemistry . 276 (3): 1665–1668 . doi : 10.1074/jbc.R000021200 . PMID 11080505. S2CID 30953216 .
- ^ Capaldi RA, Aggeler R (März 2002). „Mechanismus der F(1)F(0)-Typ-ATP-Synthase, eines biologischen Rotationsmotors“. Trends in Biochemical Sciences . 27 (3): 154–160 . doi : 10.1016/S0968-0004(01)02051-5 . PMID 11893513 .
- ^ Dimroth P, von Ballmoos C, Meier T (März 2006). „Katalytische und mechanische Zyklen in F-ATP-Synthasen. Vierter Teil der Cycles Review Series“ . EMBO Reports . 7 (3): 276–282 . doi : 10.1038/sj.embor.7400646 . PMC 1456893. PMID 16607397 .
- Gresser MJ, Myers JA, Boyer PD (Oktober 1982). „Kooperativität der katalytischen Zentren der mitochondrialen F1 - ATPase aus Rinderherzen. Korrelationen von Anfangsgeschwindigkeit, gebundenem Zwischenprodukt und Sauerstoffaustauschmessungen mit einem alternierenden Drei-Zentren-Modell“ . The Journal of Biological Chemistry . 257 (20): 12030–12038 . doi : 10.1016/S0021-9258(18)33672-X . PMID 6214554. Archiviert vom Original am 29. September 2007 .
- ^ Dimroth P (1994). „Bakterien - Natriumionen-gekoppelte Energetik“. Antonie van Leeuwenhoek . 65 (4): 381–395 . doi : 10.1007/BF00872221 . PMID 7832594. S2CID 23763996 .
- ^ a b Becher B, Müller V (Mai 1994). „Delta mu Na+ treibt die ATP-Synthese über eine delta mu Na(+)-translozierende F1F0-ATP-Synthase in Membranvesikeln des Archaebakteriums Methanosarcina mazei Gö1 an“ . Journal of Bacteriology . 176 (9): 2543–2550 . doi : 10.1128/jb.176.9.2543-2550.1994 . PMC 205391. PMID 8169202 .
- Müller V (Februar 2004). „Eine außergewöhnliche Variabilität im Motor archaischer A1A0-ATPasen: von multimeren zu monomeren Rotoren mit 6–13 Ionenbindungsstellen“. Journal of Bioenergetics and Biomembranes . 36 (1): 115–125 . doi : 10.1023/B:JOBB.0000019603.68282.04 . PMID 15168615. S2CID 24887884 .
- ^ a b Davies KJ (1995). „Oxidativer Stress: Das Paradoxon des aeroben Lebens“. Biochemical Society Symposium . 61 : 1–31 . doi : 10.1042/bss0610001 . PMID 8660387 .
- ^ Rattan SI ( Dezember 2006). „Theorien des biologischen Alterns: Gene , Proteine und freie Radikale“ (PDF) . Free Radical Research . 40 (12): 1230–1238 . CiteSeerX 10.1.1.476.9259 . doi : 10.1080/10715760600911303 . PMID 17090411. S2CID 11125090. Archiviert vom Original (PDF) am 14.06.2014 . Abgerufen am 27.10.2017 .
- Valko M, Leibfritz D, Moncol J, Cronin MT, Mazur M, Telser J (2007). „Freie Radikale und Antioxidantien in normalen physiologischen Funktionen und menschlichen Erkrankungen“. The International Journal of Biochemistry & Cell Biology . 39 (1): 44–84 . doi : 10.1016/j.biocel.2006.07.001 . PMID 16978905 .
- ^ Raha S, Robinson BH (Oktober 2000). „Mitochondrien, freie Sauerstoffradikale, Krankheit und Alterung“. Trends in Biochemical Sciences . 25 (10): 502–508 . doi : 10.1016/S0968-0004(00)01674-1 . PMID 11050436 .
- ^ Finkel T, Holbrook NJ (November 2000). „Oxidantien, oxidativer Stress und die Biologie des Alterns“. Nature . 408 (6809): 239–247 . Bibcode : 2000Natur.408..239F . doi : 10.1038/35041687 . PMID 11089981. S2CID 2502238 .
- ^ Kadenbach B, Ramzan R, Wen L, Vogt S (März 2010). „Neue Erweiterung der Mitchell-Theorie für die oxidative Phosphorylierung in Mitochondrien lebender Organismen“. Biochimica et Biophysica Acta (BBA) - General Subjects . 1800 (3): 205–212 . doi : 10.1016/j.bbagen.2009.04.019 . PMID 19409964 .
- ^ Echtay KS, Roussel D, St-Pierre J, Jekabsons MB, Cadenas S, Stuart JA, et al. (Januar 2002). „Superoxid aktiviert mitochondriale Entkopplungsproteine“. Nature . 415 (6867): 96–99 . Bibcode : 2002Natur.415...96E . doi : 10.1038 / 415096a . PMID 11780125. S2CID 4349744 .
- ^ Devaux JB, Hedges CP, Birch N, Herbert N, Renshaw GM, Hickey AJ (Januar 2019). „ Azidose erhält die Funktion der Gehirnmitochondrien bei hypoxietoleranten Dreiflossenfischen aufrecht: Eine Strategie zum Überleben akuter Hypoxieexposition?“ Frontiers in Physiology . 9 : 1941. doi : 10.3389/fphys.2018.01941 . PMC 6346031. PMID 30713504 .
- ^ a b Lesnefsky EJ, Chen Q, Tandler B, Hoppel CL (Januar 2017). „Mitochondriale Dysfunktion und Myokardischämie-Reperfusion: Implikationen für neuartige Therapien“ . Annual Review of Pharmacology and Toxicology . 57 : 535–565 . doi : 10.1146/annurev-pharmtox-010715-103335 . PMC 11060135. PMID 27860548 .
- ^ a b c Hickey AJ, Renshaw GM, Speers-Roesch B, Richards JG, Wang Y, Farrell AP, et al. (Januar 2012). „Ein radikaler Ansatz zur Bekämpfung von Hypoxie: Verminderte Freisetzung freier Radikale aus Herzmuskelfasern des hypoxietoleranten Epaulettenhais (Hemiscyllum ocellatum)“. Journal of Comparative Physiology B. 182 ( 1): 91–100 . doi : 10.1007/s00360-011-0599-6 . PMID 21748398 .
- ^ a b Hawrysh PJ, Myrka AM, Buck LT (2022). „Review: A history and perspective of mitochondria in the context of anoxia tolerance“. Comparative Biochemistry and Physiology. Part B, Biochemistry & Molecular Biology . 260 110733. doi : 10.1016/j.cbpb.2022.110733 . PMID 35288242 .
- Pamenter ME, Lau GY, Richards JG, Milsom WK (Februar 2018). „Der Fluss des Elektronentransportsystems und der H+-Leckstrom in den Mitochondrien des Gehirns von Nacktmullen sind während akuter Hypoxie reduziert“. The Journal of Experimental Biology . 221 ( Pt 4): jeb171397. doi : 10.1242/jeb.171397 . PMID 29361591 .
- ^ Chen Q, Camara AK, Stowe DF, Hoppel CL, Lesnefsky EJ (Januar 2007). „Modulation des Elektronentransports schützt Herzmitochondrien und verringert Myokardschäden während Ischämie und Reperfusion“. American Journal of Physiology. Cell Physiology . 292 (1): C137– C147. doi : 10.1152/ajpcell.00270.2006 . PMID 16971498 .
- ^ a b St-Pierre J, Brand MD, Boutilier RG (Juli 2000). „Mitochondrien als ATP-Verbraucher: Zellulärer Verrat bei Anoxie“ . Proceedings of the National Academy of Sciences of the United States of America . 97 (15): 8670–8674 . Bibcode : 2000PNAS...97.8670S . doi : 10.1073/pnas.140093597 . PMC 27006. PMID 10890886 .
- ^ a b c Bundgaard A, James AM, Gruszczyk AV, Martin J, Murphy MP, Fago A (Februar 2019). „Stoffwechselanpassungen bei extremer Anoxie im Schildkrötenherzen und ihre Auswirkungen auf Ischämie-Reperfusionsschäden“ . Wissenschaftliche Berichte . 9 (1): 2850. Bibcode : 2019NatSR...9.2850B . doi : 10.1038/s41598-019-39836-5 . PMC 6391391 . PMID 30808950 .
- ^ Bundgaard A, Borowiec BG, Lau GY (März 2024). „Sind reaktive Sauerstoffspezies immer schlecht? Erkenntnisse aus hypoxischen Ektothermen“. The Journal of Experimental Biology . 227 (6): jeb246549. Bibcode : 2024JExpB.227B6549B . doi : 10.1242/jeb.246549 . PMID 38533673 .
- ^ Chouchani ET, Pell VR, Gaude E, Aksentijević D, Sundier SY, Robb EL, et al. (November 2014). „Ischämische Akkumulation von Succinat kontrolliert Reperfusionsschäden durch mitochondriale ROS“ . Nature . 515 (7527): 431–435 . Bibcode : 2014Natur.515..431C . doi : 10.1038/ nature13909 . PMC 4255242. PMID 25383517 .
- ^ Murphy MP (Januar 2009). „Wie Mitochondrien reaktive Sauerstoffspezies produzieren“ . The Biochemical Journal . 417 (1): 1–13 . doi : 10.1042/BJ20081386 . PMC 2605959. PMID 19061483 .
- ^ Bolisetty S, Jaimes EA (März 2013). „Mitochondrien und reaktive Sauerstoffspezies: Physiologie und Pathophysiologie“ . International Journal of Molecular Sciences . 14 (3): 6306–6344 . doi : 10.3390/ijms14036306 . PMC 3634422. PMID 23528859 .
- Eaton L, Wang T, Roy M, Pamenter ME (2023). „ Der Kortex des Nacktmulls erhält die Homöostase reaktiver Sauerstoffspezies während In-vitro- Hypoxie oder Ischämie und Reperfusion aufrecht“ . Current Neuropharmacology . 21 (6): 1450–1461 . doi : 10.2174/1570159X20666220327220929 . PMC 10324332. PMID 35339183 .
- Ivanina AV, Nesmelova I, Leamy L, Sokolov EP, Sokolova IM (Juni 2016). „ Intermittierende Hypoxie führt zu einer funktionellen Reorganisation der Mitochondrien und beeinflusst die zelluläre Bioenergetik bei marinen Mollusken“. The Journal of Experimental Biology . 219 ( Teil 11): 1659–1674 . Bibcode : 2016JExpB.219.1659I . doi : 10.1242/jeb.134700 . PMID 27252455 .
- ^ Berner NJ (September 1999). „Sauerstoffverbrauch von Mitochondrien eines endothermen und eines ektothermen Organismus“. Comparative Biochemistry and Physiology. Part B, Biochemistry & Molecular Biology . 124 (1): 25–31 . doi : 10.1016/S0305-0491(99)00093-0 . PMID 10582317 .
- ^ Galli GL, Lau GY, Richards JG (September 2013). „Sauerstoffmangel besiegen: Chronische Anoxie reduziert die mitochondriale F1FO-ATPase-Aktivität im Schildkrötenherzen (Trachemys scripta) . The Journal of Experimental Biology . 216 (Pt 17): 3283–3293 . Bibcode : 2013JExpB.216.3283G . doi : 10.1242 / jeb.087155 . PMC 4074260. PMID 23926310 .
- ^ Scott MA, Fagernes CE, Nilsson GE, Stensløkken KO (Oktober 2024). „Erhalt der mitochondrialen Integrität ohne Sauerstoff beim anoxietoleranten Karauschen“ . The Journal of Experimental Biology . 227 (20): jeb247409. Bibcode : 2024JExpB.227B7409S . doi : 10.1242/jeb.247409 . PMC 11418198. PMID 38779846 .
- ^ Bundgaard A, Gruszczyk AV, Prag HA, Williams C, McIntyre A, Ruhr IM, et al. (Mai 2023). „Geringe Produktion mitochondrialer reaktiver Sauerstoffspezies nach Anoxie und Reoxygenierung in Schildkrötenherzen“ . The Journal of Experimental Biology . 226 (9): jeb245516. Bibcode : 2023JExpB.226B5516B . doi : 10.1242/jeb.245516 . PMC 10184768. PMID 37066839 .
- ^ Bundgaard A, Ruhr IM, Fago A, Galli GL (April 2020). „Metabolische Anpassungen an Anoxie und Reoxygenierung: Neue Erkenntnisse von Süßwasserschildkröten und Karauschen“ . Current Opinion in Endocrine and Metabolic Research . 11 : 55–64 . doi : 10.1016/j.coemr.2020.01.002 .
- ^ a b Joshi S, Huang YG (August 1991). „ATP-Synthase-Komplex aus Rinderherzmitochondrien: Das Oligomycin-Sensitivitäts-vermittelnde Protein ist essentiell für die Dicyclohexylcarbodiimid-sensitive ATPase“. Biochimica et Biophysica Acta (BBA) - Biomembranes . 1067 (2): 255–258 . doi : 10.1016/0005-2736(91)90051-9 . PMID 1831660 .
- ^ ein b Satyanarayana U (2002). Biochemie (2. Aufl.). Kalkutta, Indien: Bücher und Verbündete. ISBN 81-87134-80-1OCLC 71209231 .
- ^ Tsubaki M (Januar 1993). „Fourier-Transform-Infrarot-Studie zur Cyanidbindung an das Fea3-CuB-binukleäre Zentrum der Cytochrom-c-Oxidase aus Rinderherzen: Implikation der redoxabhängigen Konformationsänderung am binukleären Zentrum“. Biochemistry . 32 (1): 164–173 . doi : 10.1021/bi00052a022 . PMID 8380331 .
- Heytler PG (1979). „Entkoppler der oxidativen Phosphorylierung“. In: Sidney Fleischer, Lester Packer (Hrsg.). Biomembranen Teil F: Bioenergetik: Oxidative Phosphorylierung . Methods in Enzymology. Band 55. S. 462–472 . doi : 10.1016/0076-6879(79)55060-5 . ISBN 978-0-12-181955-2PMID 156853 .
- ^ Lambert AJ, Brand MD (September 2004). „Inhibitoren der Chinonbindungsstelle ermöglichen eine schnelle Superoxidproduktion durch mitochondriale NADH:Ubichinon-Oxidoreduktase (Komplex I)“ . The Journal of Biological Chemistry . 279 (38): 39414–39420 . doi : 10.1074/jbc.M406576200 . PMID 15262965. S2CID 26620903 .
- ^ Dervartanian DV, Veeger C (November 1964). „Studien zur Succinatdehydrogenase. I. Spektrale Eigenschaften des gereinigten Enzyms und Bildung von Enzym-kompetitiven Inhibitor-Komplexen“. Biochimica et Biophysica Acta (BBA) – Specialized Section on Enzymological Subjects . 92 (2): 233–247 . doi : 10.1016/0926-6569(64)90182-8 . PMID 14249115 .
- ^ Ricquier D, Bouillaud F (Januar 2000). „Die Entkopplungsprotein-Homologen: UCP1, UCP2, UCP3, StUCP und AtUCP“ . The Biochemical Journal . 345 (Teil 2): 161–179 . doi : 10.1042/0264-6021:3450161 . PMC 1220743. PMID 10620491 .
- ^ Borecký J, Vercesi AE (2005). „Entkopplung von mitochondrialem Protein und alternativer Oxidase in Pflanzen: Energiestoffwechsel und Stress“. Bioscience Reports . 25 ( 3–4 ): 271–286 . doi : 10.1007/s10540-005-2889-2 . PMID 16283557. S2CID 18598358 .
- ^ Harden A, Young WJ (1906). „Die alkoholische Gärung von Hefesaft“ . Proceedings of the Royal Society . B (77): 405–20 . doi : 10.1098/rspb.1906.0029 .
- ^ Kalckar HM (November 1974). „Ursprünge des Konzepts der oxidativen Phosphorylierung“. Molecular and Cellular Biochemistry . 5 ( 1–2 ): 55–63 . doi : 10.1007/BF01874172 . PMID 4279328. S2CID 26999163 .
- ^ Lipmann F (1941). „Metabolische Erzeugung und Nutzung von Phosphatbindungsenergie“. Adv Enzymol . 1 : 99–162 . doi : 10.4159/harvard.9780674366701.c141 . ISBN 978-0-674-36670-1Die
{{cite journal}}: ISBN / Date incompatibility (help) - Friedkin M, Lehninger AL (April 1949). „Veresterung von anorganischem Phosphat gekoppelt an den Elektronentransport zwischen Dihydrodiphosphopyridinnukleotid und Sauerstoff“ . The Journal of Biological Chemistry . 178 (2): 611–644 . doi : 10.1016/S0021-9258(18)56879-4 . PMID 18116985. Archiviert vom Original am 16. Dezember 2008 .
- ^ Kalckar HM (1991). „50 Jahre biologische Forschung – von der oxidativen Phosphorylierung zur Regulation energiebedürftiger Transportprozesse“ . Annual Review of Biochemistry . 60 : 1–37 . doi : 10.1146/annurev.bi.60.070191.000245 . PMID 1883194 .
- ^ Belitser VA, Tsibakova ET (1939). „Über den mit der Atmung gekoppelten Phosphorylierungsmechanismus“. Biokhimiya . 4 : 516– 534.
- ^ Slater EC (November 1953) . „Mechanism of phosphorylation in the respiratory chain“. Nature . 172 (4387): 975–978 . Bibcode : 1953Natur.172..975S . doi : 10.1038/172975a0 . PMID 13111237. S2CID 4153659 .
- ^ Mitchell P (Juli 1961). „Kopplung der Phosphorylierung an den Elektronen- und Wasserstofftransfer durch einen chemio-osmotischen Mechanismus“. Nature . 191 ( 4784): 144–148 . Bibcode : 1961Natur.191..144M . doi : 10.1038/191144a0 . PMID 13771349. S2CID 1784050 .
- ^ Saier Jr MH. Peter Mitchell and the Vital Force . OCLC 55202414 .
- ^ Mitchell P (1978). „David Keilins Konzept der Atmungskette und seine chemiosmotischen Konsequenzen“ (PDF) . Nobelvortrag . Nobelstiftung. Archiviert (PDF) vom Original am 27.09.2007 . Abgerufen am 21.07.2007 .
- Pullman ME, Penefsky HS, Datta A, Racker E (November 1960). „Partielle Trennung der Enzyme, die die oxidative Phosphorylierung katalysieren. I. Reinigung und Eigenschaften der löslichen, durch Dinitrophenol stimulierten Adenosintriphosphatase“ . The Journal of Biological Chemistry . 235 (11): 3322–3329 . doi : 10.1016/S0021-9258(20)81361-1 . PMID 13738472. Archiviert vom Original am 29. September 2007 .
- ^ Boyer PD, Cross RL, Momsen W (Oktober 1973). „Ein neues Konzept für die Energiekopplung in der oxidativen Phosphorylierung basierend auf einer molekularen Erklärung der Sauerstoffaustauschreaktionen“ . Proceedings of the National Academy of Sciences of the United States of America . 70 (10): 2837–2839 . Bibcode : 1973PNAS...70.2837B . doi : 10.1073 / pnas.70.10.2837 . PMC 427120. PMID 4517936 .
- ^ „Der Nobelpreis für Chemie 1997“ . Nobelstiftung. Archiviert vom Original am 25.03.2017 . Abgerufen am 21.07.2007 .
Weiterführende Literatur
Einleitend
- Nelson DL, Cox MM (2004). Lehninger Principles of Biochemistry (4. Aufl.). WH Freeman. ISBN 0-7167-4339-6Die
- Schneider ED, Sagan D (2006). Into the Cool: Energy Flow, Thermodynamics and Life (1. Aufl.). University of Chicago Press. ISBN 0-226-73937-6Die
- Lane N (2006). Macht, Sex, Selbstmord: Mitochondrien und der Sinn des Lebens (1. Aufl.). Oxford University Press, USA. ISBN 0-19-920564-7Die
Fortschrittlich
- Nicholls DG, Ferguson SJ (2002). Bioenergetik 3 (1. Aufl.). Academic Press. ISBN 0-12-518121-3Die
- Haynie D (2001). Biologische Thermodynamik (1. Aufl.). Cambridge University Press. ISBN 0-521-79549-4Die
- Rajan SS (2003). Einführung in die Bioenergetik (1. Aufl.). Anmol. ISBN 81-261-1364-2Die
- Wikstrom M, Hrsg. (2005). Biophysikalische und strukturelle Aspekte der Bioenergetik (1. Aufl.). Royal Society of Chemistry. ISBN 0-85404-346-2Die
Allgemeine Ressourcen
- Animierte Diagramme zur Veranschaulichung der oxidativen Phosphorylierung ( Wiley and Co., Konzepte der Biochemie)
- Online-Vorlesungen zur Biophysik (Archiviert am 02.05.2009 im Internet Archive) Antony Crofts, Universität von Illinois in Urbana-Champaign
- ATP-Synthase Graham Johnson
Strukturelle Ressourcen
- PDB- Molekül des Monats:
- ATP-Synthase (Archiviert am 24.07.2020 im Internet Archive)
- Cytochrom c (Archiviert am 24.07.2020 im Internet Archive)
- Cytochrom-c-Oxidase (Archiviert am 24.07.2020 im Internet Archive)
- Interaktive molekulare Modelle an der Universidade Fernando Pessoa :