
Euchromatin (auch „ offenes Chromatin “ genannt) ist eine locker gepackte Form von Chromatin ( DNA , RNA und Proteine ), die reich an Genen ist und häufig (aber nicht immer) aktiv transkribiert wird . Euchromatin steht im Gegensatz zu Heterochromatin , das dicht gepackt und für die Transkription weniger zugänglich ist. 92 % des menschlichen Genoms sind euchromatisch. [ 1 ]
Bei Eukaryoten stellt das Euchromatin den aktivsten Teil des Genoms im Zellkern dar . Bei Prokaryoten ist Euchromatin die einzige Chromatinform; dies deutet darauf hin, dass sich die Heterochromatinstruktur erst später zusammen mit dem Zellkern entwickelt hat , möglicherweise als Mechanismus zur Bewältigung der zunehmenden Genomgröße.
Struktur
Euchromatin besteht aus sich wiederholenden Untereinheiten, den sogenannten Nukleosomen , die an eine Kette entfalteter Perlen erinnern und einen Durchmesser von etwa 11 nm aufweisen. [ 2 ] Im Zentrum dieser Nukleosomen befinden sich vier Histonproteinpaare : H3 , H4 , H2A und H2B . [ 2 ] Jedes dieser Kernhistonproteine besitzt eine „Schwanz“-Struktur, die auf verschiedene Weise variieren kann. Man geht davon aus, dass diese Variationen durch unterschiedliche Methylierungs- und Acetylierungszustände als „Hauptschalter“ fungieren und so die Gesamtstruktur des Chromatins bestimmen. [ 2 ] Etwa 147 Basenpaare DNA sind um die Histonoktamere gewickelt, was etwas weniger als zwei Helixwindungen entspricht. [ 3 ] Die Nukleosomen entlang des Strangs sind über das Histon H1 [ 4 ] und einen kurzen Abschnitt offener Linker - DNA von etwa 0–80 Basenpaaren miteinander verbunden . Der wesentliche Unterschied zwischen der Struktur von Euchromatin und Heterochromatin besteht darin, dass die Nukleosomen im Euchromatin viel weiter voneinander entfernt sind, was verschiedenen Proteinkomplexen einen leichteren Zugang zum DNA-Strang und somit eine erhöhte Gentranskription ermöglicht . [ 2 ]
Aussehen

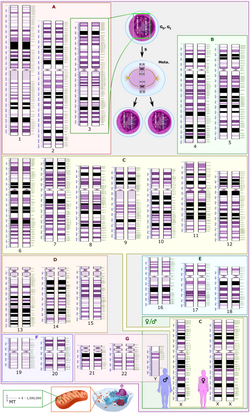
Euchromatin ähnelt bei starker Vergrößerung einer Perlenkette. [ 2 ] Aus größerer Entfernung kann es wie ein Knäuel verhedderter Fäden erscheinen, beispielsweise in einigen elektronenmikroskopischen Darstellungen. [ 5 ] Sowohl in der Licht- als auch in der Elektronenmikroskopie erscheint Euchromatin aufgrund seiner weniger kompakten Struktur heller als Heterochromatin , das ebenfalls im Zellkern vorkommt und dunkel erscheint . [ 6 ] [ 5 ] Zur Visualisierung von Chromosomen , wie etwa in einem Karyogramm , werden die Chromosomen mittels zytogenetischer Bandenfärbung angefärbt. Diese ermöglicht es, die aus Euchromatin bzw. Heterochromatin bestehenden Chromosomenabschnitte zu erkennen und so chromosomale Unterabschnitte, Unregelmäßigkeiten oder Umlagerungen zu differenzieren. [ 7 ] Ein Beispiel hierfür ist die G-Bandenfärbung , auch bekannt als Giemsa-Färbung, bei der Euchromatin heller als Heterochromatin erscheint. [ 8 ]
| Giemsa-Streifen (G-) | Umgekehrte (R-) Bänderung | Konstitutive Heterochromatin-(C-)-Bänderung | Quinacrin (Q-) Bänderung | Telomerische R (T-) Bänderung | |
|---|---|---|---|---|---|
| Euchromatin | Feuerzeug | Dunkler | Feuerzeug | Langweilig | Licht |
| Heterochromatin | Dunkler | Feuerzeug | Dunkler | Hell (fluoreszierend) | Dunkler (Schwach) |
Funktion
Transkription
Euchromatin ist an der aktiven Transkription von DNA zu mRNA beteiligt . Seine ungefaltete Struktur ermöglicht es Genregulationsproteinen und RNA-Polymerase- Komplexen, an die DNA-Sequenz zu binden und so die Transkription zu initiieren. [ 2 ] Obwohl nicht das gesamte Euchromatin transkribiert wird, da es in transkriptionell aktive und inaktive Bereiche unterteilt ist, [ 13 ] ist Euchromatin dennoch generell mit aktiver Gentranskription assoziiert. Es besteht daher ein direkter Zusammenhang zwischen der Aktivität und Produktivität einer Zelle und der Menge an Euchromatin in ihrem Zellkern.
Man geht davon aus, dass die Zelle die Umwandlung von Euchromatin in Heterochromatin nutzt, um Genexpression und Replikation zu steuern , da sich diese Prozesse auf dicht gepacktem Chromatin anders verhalten. Dies ist als „Zugänglichkeitshypothese“ bekannt. [ 14 ] Ein Beispiel für konstitutives Euchromatin, das „immer aktiv“ ist, sind Haushaltsgene , die für Proteine kodieren, die für grundlegende Zellfunktionen benötigt werden. [ 15 ]
Epigenetik
Epigenetik umfasst Veränderungen des Phänotyps , die vererbt werden können, ohne die DNA-Sequenz zu verändern. Dies kann durch vielfältige Umwelteinflüsse geschehen. [ 16 ] Posttranslationale Modifikationen der Histone können die Chromatin-Struktur verändern und so die Genexpression beeinflussen, ohne die DNA zu verändern. [ 17 ] Darüber hinaus korreliert ein Verlust von Heterochromatin und eine Zunahme von Euchromatin mit einem beschleunigten Alterungsprozess , insbesondere bei Erkrankungen, die Symptome vorzeitiger Alterung aufweisen . [ 18 ] Weitere Studien haben epigenetische Marker auf Histonen für eine Reihe weiterer Erkrankungen identifiziert. [ 19 ] [ 20 ]
Verordnung
Euchromatin wird primär durch posttranslationale Modifikationen der Histone seiner Nukleosomen reguliert , die von zahlreichen Histon-modifizierenden Enzymen durchgeführt werden . Diese Modifikationen finden an den N-terminalen Enden der Histone statt, die aus der Nukleosomenstruktur herausragen. Man geht davon aus, dass sie Enzyme rekrutieren, um das Chromatin entweder in seiner offenen Form (Euchromatin) oder in seiner geschlossenen Form ( Heterochromatin) zu halten . [ 21 ] Histonacetylierung ist beispielsweise typischerweise mit der Euchromatin-Struktur assoziiert, während Histonmethylierung die Heterochromatin-Remodellierung fördert. [ 22 ] Durch Acetylierung wird die Histongruppe negativer geladen, was wiederum ihre Wechselwirkungen mit dem DNA-Strang stört und diesen somit für einen leichteren Zugang „öffnet“. [ 21 ] Acetylierung kann an mehreren Lysinresten des N-terminalen Endes eines Histons und an verschiedenen Histonen desselben Nukleosoms erfolgen , was die DNA-Zugänglichkeit für Transkriptionsfaktoren weiter erhöht . [ 21 ]
Die Phosphorylierung von Histonen ist ein weiterer Mechanismus zur Regulation des Euchromatins. [ 21 ] Sie findet vorwiegend an den N-terminalen Enden der Histone statt, jedoch sind auch Stellen im Kernbereich vorhanden. [ 21 ] Die Phosphorylierung wird durch Kinasen und Phosphatasen gesteuert , die Phosphatgruppen anfügen bzw. entfernen. Dies kann an Serin- , Threonin- oder Tyrosinresten im Euchromatin erfolgen. [ 21 ] [ 22 ] Da die hinzugefügten Phosphatgruppen eine negative Ladung in die Histonstruktur einbringen, fördern sie – ähnlich wie die Acetylierung – die entspanntere, „offene“ Konformation. [ 22 ] Hinsichtlich der Funktion ist die Histonphosphorylierung an der Genexpression, der DNA-Reparatur und dem Chromatin-Remodeling beteiligt . [ 22 ]
Eine weitere Regulationsmethode, die eine negative Ladung einführt und dadurch die „offene“ Form begünstigt, ist die ADP-Ribosylierung . [ 22 ] Bei diesem Prozess wird dem Histon eine oder mehrere ADP-Ribose- Einheiten hinzugefügt; er ist am DNA-Schadensantwortweg beteiligt . [ 22 ]
Siehe auch
Referenzen
- ^ International Human Genome Sequencing Consortium (Oktober 2004). „ Finishing the euchromatic sequence of the human genome“ . Nature . 431 (7011): 931–945 . Bibcode : 2004Natur.431..931H . doi : 10.1038/nature03001 . PMID 15496913. S2CID 186242248 .
- ^ a b c d e f g Babu A, Verma RS (Januar 1987). Bourne GH, Jeon KW, Friedlander M (Hrsg.). „Chromosomenstruktur: Euchromatin und Heterochromatin“. International Review of Cytology . 108. Academic Press: 1–60 . doi : 10.1016/s0074-7696(08)61435-7 . ISBN 978-0-12-364508-1PMID 2822591 .
- ^ „Definition: Nukleosom/Nukleosomen“ . Scitable Nature Education . Abgerufen am 06.10.2021 .
- ^ Mobley AS (Januar 2019). „Kapitel 4 – Induzierte pluripotente Stammzellen“. In: Mobley AS (Hrsg.). Neuronale Stammzellen und adulte Neurogenese . Academic Press. S. 67–94 . ISBN 978-0-12-811014-0Die
- ^ a b „Die Zelle. 4. Zellkern. Chromatin. Atlas der Pflanzen- und Tierhistologie“ . mmegias.webs.uvigo.es . Abgerufen am 2021-12-02 .
- ^ Enukashvily NI (Januar 2013). „Kapitel 2 – Satelliten-DNA der Säugetiere: Ein sprechender Stummer“. In: Donev R, Ponomartsev NV (Hrsg.). Fortschritte in der Proteinchemie und Strukturbiologie . Organisation der Chromosomen. Band 90. Academic Press. S. 31–65 . doi : 10.1016/B978-0-12-410523-2.00002-X . ISBN 978-0-12-410523-2PMID 23582201 .
- ^ Shen CH (Januar 2019). „Kapitel 13 – Molekulare Diagnostik von Chromosomenstörungen“. In: Shen CH (Hrsg.). Diagnostische Molekularbiologie . Academic Press. S. 331–358 . doi : 10.1016/B978-0-12-802823-0.00013-4 . ISBN 978-0-12-802823-0. S2CID 131915096 .
- ^ a b „Giemsa-Streifen“ . Biologie-Artikel, Tutorials & Wörterbuch online . 07.10.2019 . Abgerufen am 02.12.2021 .
- ^ „Umgekehrte Bänderung – Definition und Beispiele – Online-Wörterbuch Biologie“ . Biologie-Artikel, Tutorials & Wörterbuch online . 18.09.2020 . Abgerufen am 02.12.2021 .
- ^ „Konstitutive Heterochromatin-Bänderung“ . Biologie-Artikel, Tutorials & Online-Wörterbuch . 07.10.2019 . Abgerufen am 02.12.2021 .
- ^ „Chinacrin-Streifen“ . Biologie-Artikel, Tutorials & Online-Wörterbuch . 07.10.2019 . Abgerufen am 02.12.2021 .
- ^ „T-Banding“ . Biologie-Artikel, Tutorials & Online-Wörterbuch . 07.10.2019 . Abgerufen am 02.12.2021 .
- Verschure PJ, van Der Kraan I, Manders EM, van Driel R (Oktober 1999). „Räumliche Beziehung zwischen Transkriptionsorten und Chromosomenbereichen“ . The Journal of Cell Biology . 147 (1): 13–24 . doi : 10.1083/jcb.147.1.13 . PMC 2164981. PMID 10508851 .
- ^ Muegge K (2003-04-01). „Modifikationen von Histonkernen und -schwänzen bei der V(D)J-Rekombination“ . Genome Biology . 4 (4): 211. doi : 10.1186/gb-2003-4-4-211 . PMC 154571. PMID 12702201 .
- ^ Eisenberg E, Levanon EY (Oktober 2013). „Human housekeeping genes, revisited“. Trends in Genetics . 29 (10): 569–574 . doi : 10.1016/j.tig.2013.05.010 . PMID 23810203 .
- ^ Arney KL, Fisher AG (September 2004). „Epigenetische Aspekte der Differenzierung“. Journal of Cell Science . 117 (Pt 19): 4355–4363 . doi : 10.1242/jcs.01390 . PMID 15331660. S2CID 24376600 .
- ^ Singh NP, Madabhushi SR, Srivastava S, Senthilkumar R, Neeraja C, Khosla S, Mishra RK (Mai 2011). „ Epigenetisches Profil der euchromatischen Region des menschlichen Y-Chromosoms“ . Nucleic Acids Research . 39 (9): 3594–3606 . doi : 10.1093/nar/gkq1342 . PMC 3089472. PMID 21252296 .
- ^ Wang J , Jia ST, Jia S (Mai 2016). „Neue Erkenntnisse zur Regulation des Heterochromatins“ . Trends in Genetics . 32 (5): 284–294 . doi : 10.1016/j.tig.2016.02.005 . PMC 4842111. PMID 27005444 .
- ^ Simmons D (2008). „Epigenetische Einflüsse und Krankheit“ . Nature Education . 1 (1): 6. Abgerufen am 2021-12-02 .
- ^ Alaskhar Alhamwe B, Khalaila R, Wolf J, von Bülow V, Harb H, Alhamdan F, et al. (2018-05-23). „ Histonmodifikationen und ihre Rolle in der Epigenetik von Atopie und allergischen Erkrankungen“ . Allergy, Asthma, and Clinical Immunology . 14 (1): 39. doi : 10.1186/s13223-018-0259-4 . PMC 5966915. PMID 29796022 .
- ^ a b c d e f Bannister AJ, Kouzarides T (März 2011). „Regulation des Chromatins durch Histonmodifikationen“ . Cell Research . 21 (3): 381–395 . doi : 10.1038/cr.2011.22 . PMC 3193420. PMID 21321607 .
- ^ a b c d e f Singh D, Nishi K, Khambata K, Balasinor NH (Januar 2020). „Einführung in die Epigenetik: Grundkonzepte und Fortschritte auf diesem Gebiet“. In Tollefsbol T (Hrsg.). Epigenetik und reproduktive Gesundheit . Translationale Epigenetik. Bd. 21. Akademische Presse. S. xxv– xliv. doi : 10.1016/B978-0-12-819753-0.02001-8 . ISBN 978-0-12-819753-0. S2CID 235031860 .
Weiterführende Literatur
- Die Heterochromatinbildung beinhaltet Veränderungen der Histonmodifikationen über mehrere Zellgenerationen hinweg – Katan-Khaykovich Y, Struhl K (Juni 2005). „Heterochromatinbildung beinhaltet Veränderungen der Histonmodifikationen über mehrere Zellgenerationen hinweg“ . The EMBO Journal . 24 (12): 2138–2149 . doi : 10.1038/sj.emboj.7600692 . PMC 1150886. PMID 15920479 .
- Chromatin Velocity enthüllt epigenetische Dynamiken durch Einzelzellprofilierung von Heterochromatin und Euchromatin – Tedesco M, Giannese F, Lazarević D, Giansanti V, Rosano D, Monzani S, et al. (Oktober 2021). „Chromatin Velocity reveals epigenetic dynamics by single-cell profiling of heterochromatin and euchromatin“. Nature Biotechnology . 40 (2): 235–244 . doi : 10.1038/s41587-021-01031-1 . hdl : 11368/3007419 . PMID 34635836. S2CID 238637962 .
- Epigenetische Vererbung und die fehlende Heritabilität – Trerotola M, Relli V, Simeone P, Alberti S (Juli 2015). „Epigenetische Vererbung und die fehlende Heritabilität“ . Human Genomics . 9 (1): 17. doi : 10.1186/s40246-015-0041-3 . PMC 4517414. PMID 26216216 .
- Epigenetische Histonmarkierungen im Heterochromatin und Euchromatin des Chagas-Krankheitsüberträgers Triatoma infestans – Alvarenga EM, Rodrigues VL, Moraes AS, Naves LS, Mondin M, Felisbino MB, Mello ML (Mai 2016). „Epigenetische Histonmarkierungen im Heterochromatin und Euchromatin des Chagas-Krankheitsüberträgers Triatoma infestans“. Acta Histochemica . 118 (4): 401–412 . doi : 10.1016/j.acthis.2016.04.002 . PMID 27079857 .