
Bakterienwachstum [ 1 ] ist die Vermehrung eines Bakteriums in zwei Tochterzellen durch binäre Spaltung . Sofern keine Mutation auftritt, sind die entstehenden Tochterzellen genetisch identisch mit der ursprünglichen Zelle. Daher findet Bakterienwachstum statt. Nicht beide Tochterzellen überleben zwangsläufig. Übersteigt die durchschnittliche Anzahl der überlebenden Zellen jedoch eins, wächst die Bakterienpopulation exponentiell . Die Messung der exponentiellen Wachstumskurve von Bakterien in Batch-Kulturen war traditionell Bestandteil der Ausbildung aller Mikrobiologen. Die grundlegende Methode hierfür ist die Bakterienzählung mittels direkter und individueller (mikroskopischer, durchflusszytometrischer [ 2 ] ), direkter und Gesamt- (Biomasse-), indirekter und individueller (Koloniezählung) oder indirekter und Gesamtmethoden (MPN-Bestimmung, Trübungsmessung , Nährstoffaufnahme). Modelle bringen die Theorie mit den Messungen in Einklang. [ 3 ]
Phasen
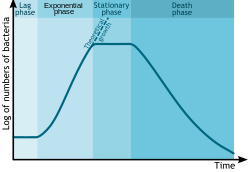
In autökologischen Studien kann das Wachstum von Bakterien (oder anderen Mikroorganismen wie Protozoen , Mikroalgen oder Hefen ) in Batch-Kulturen anhand von vier verschiedenen Phasen modelliert werden: Lag-Phase (A), logarithmische oder exponentielle Phase (B), stationäre Phase (C) und Absterbephase (D). [ 4 ]
- Während der Lag - Phase passen sich Bakterien an die Wachstumsbedingungen an. In dieser Phase reifen die einzelnen Bakterien heran und sind noch nicht teilungsfähig. Während der Lag-Phase des bakteriellen Wachstumszyklus findet die Synthese von RNA, Enzymen und anderen Molekülen statt. Die Zellen verändern sich in der Lag-Phase kaum, da sie sich in einem neuen Medium nicht sofort vermehren. Diese Phase mit geringer oder keiner Zellteilung wird als Lag-Phase bezeichnet und kann zwischen einer Stunde und mehreren Tagen dauern. Während dieser Phase befinden sich die Zellen nicht in einem Ruhezustand. [ 5 ]
- Die logarithmische Phase (auch exponentielle Phase genannt ) ist eine Periode, die durch Zellverdopplung gekennzeichnet ist. [ 6 ] Die Anzahl der pro Zeiteinheit entstehenden neuen Bakterien ist proportional zur aktuellen Population. Bei unbegrenztem Wachstum verdoppelt sich die Zellzahl mit konstanter Rate, sodass sich sowohl die Zellzahl als auch die Wachstumsrate der Population mit jedem aufeinanderfolgenden Zeitabschnitt verdoppeln. Trägt man bei diesem exponentiellen Wachstum den natürlichen Logarithmus der Zellzahl gegen die Zeit auf, erhält man eine Gerade. Die Steigung dieser Geraden entspricht der spezifischen Wachstumsrate des Organismus und gibt die Anzahl der Zellteilungen pro Zeiteinheit an. [ 6 ] Die tatsächliche Wachstumsrate (d. h. die Steigung der Geraden in der Abbildung) hängt von den Wachstumsbedingungen ab, welche die Häufigkeit der Zellteilungen und die Überlebenswahrscheinlichkeit beider Tochterzellen beeinflussen. Unter kontrollierten Bedingungen können Cyanobakterien ihre Population bis zu viermal täglich verdoppeln und anschließend verdreifachen. [ 7 ] Exponentielles Wachstum kann jedoch nicht unbegrenzt fortgesetzt werden, da das Medium bald an Nährstoffen verarmt und mit Abfallstoffen angereichert wird.
- Die stationäre Phase wird häufig durch wachstumshemmende Faktoren wie den Mangel an essentiellen Nährstoffen und/oder die Bildung von Hemmstoffen wie organischen Säuren verursacht. Sie entsteht, wenn Wachstums- und Sterberate gleich sind. Die Anzahl neu gebildeter Zellen ist durch den Wachstumsfaktor begrenzt, sodass die Wachstumsrate der Sterberate entspricht. Dies führt zu einem gleichmäßigen, horizontalen Verlauf der Wachstumskurve während der stationären Phase. Mutationen können auch in der stationären Phase auftreten . Bridges et al. (2001) [ 8 ] lieferten Hinweise darauf, dass DNA-Schäden für viele Mutationen im Genom von Bakterien in der stationären Phase oder unter Nährstoffmangel verantwortlich sind. Endogen gebildete reaktive Sauerstoffspezies scheinen eine Hauptursache für solche Schäden zu sein. [ 8 ] Bakterien in dieser Phase fallen mitunter in einen Ruhezustand , indem sie mithilfe von Hibernationsfaktoren ihren Stoffwechsel verlangsamen. [ 9 ]
- In der Absterbephase sterben die Bakterien ab. Dies kann durch Nährstoffmangel, eine Umgebungstemperatur ober- oder unterhalb des Toleranzbereichs der Art oder durch andere schädliche Bedingungen verursacht werden.
Dieses grundlegende Wachstumsmodell für Batch-Kulturen hebt Aspekte des Bakterienwachstums hervor, die sich vom Wachstum der Makrofauna unterscheiden können. Es betont die Klonbildung, die asexuelle Zweiteilung, die kurze Entwicklungszeit im Verhältnis zur Replikation, die scheinbar niedrige Sterberate, die Notwendigkeit, vom Ruhezustand in den Reproduktionszustand überzugehen oder das Medium zu konditionieren, und schließlich die Tendenz von im Labor adaptierten Stämmen, ihre Nährstoffe zu erschöpfen. In der Realität sind die vier Phasen selbst in Batch-Kulturen nicht klar definiert. Die Zellen reproduzieren sich nicht synchron ohne explizite und kontinuierliche Anregung (wie in Experimenten mit gestielten Bakterien [ 10 ] ), und ihr exponentielles Wachstum ist oft keine konstante Rate, sondern eine langsam abklingende Rate – eine ständige stochastische Reaktion auf den Druck, sich zu reproduzieren oder angesichts sinkender Nährstoffkonzentrationen und steigender Abfallkonzentrationen in den Ruhezustand zu verfallen.
Die Abnahme der Bakterienzahl kann sogar logarithmisch verlaufen. Daher kann diese Wachstumsphase auch als negative logarithmische oder negative exponentielle Wachstumsphase bezeichnet werden. [1]
Gegen Ende der logarithmischen Wachstumsphase einer Batch-Kultur kann die Kompetenz zur natürlichen genetischen Transformation induziert werden, wie beispielsweise bei Bacillus subtilis [ 11 ] und anderen Bakterien. Die natürliche genetische Transformation ist eine Form des DNA-Transfers, die offenbar eine Anpassung zur Reparatur von DNA-Schäden darstellt.
Die Batch-Kultur ist die gebräuchlichste Methode zur Untersuchung des Bakterienwachstums im Labor, aber nur eine von vielen. Sie ist idealerweise räumlich unstrukturiert und zeitlich strukturiert. Die Bakterienkultur wird in einem geschlossenen Gefäß mit einer einzigen Mediumcharge inkubiert. In manchen Versuchsansätzen wird regelmäßig ein Teil der Bakterienkultur entnommen und frischem, sterilem Medium zugegeben. Im Extremfall führt dies zu einer kontinuierlichen Nährstofferneuerung. Dies ist ein Chemostat , auch bekannt als kontinuierliche Kultur. Er ist idealerweise räumlich und zeitlich unstrukturiert und befindet sich in einem stationären Zustand, der durch die Nährstoffzufuhr und das Bakterienwachstum definiert ist. Im Vergleich zur Batch-Kultur werden die Bakterien in der exponentiellen Wachstumsphase gehalten, und ihre Wachstumsrate ist bekannt. Verwandte Geräte sind Turbidostaten und Auxostaten . Wenn Escherichia coli in einem Chemostaten sehr langsam mit einer Verdopplungszeit von 16 Stunden wächst, besitzen die meisten Zellen ein einzelnes Chromosom. [ 2 ]
Bakterienwachstum lässt sich mit Bakteriostatika hemmen , ohne die Bakterien zwangsläufig abzutöten. Bestimmte Toxine können zur Hemmung des Bakterienwachstums oder zur Abtötung von Bakterien eingesetzt werden. Antibiotika (genauer: antibakterielle Medikamente) sind Medikamente zur Abtötung von Bakterien; sie können Nebenwirkungen haben oder sogar unerwünschte Reaktionen beim Menschen hervorrufen, zählen aber nicht zu den Toxinen. In einer synökologischen , naturnahen Situation, in der mehrere Bakterienarten vorkommen, ist das Wachstum von Mikroorganismen dynamischer und kontinuierlicher.
Flüssigkeiten sind nicht die einzige Laborumgebung für das Bakterienwachstum. Räumlich strukturierte Umgebungen wie Biofilme oder Agaroberflächen stellen zusätzliche, komplexe Wachstumsmodelle dar.
Polyauxisches Wachstum

Polyauxisches Wachstum (vom griechischen poly = „viele“ und auxein = „wachsen“) bezeichnet ein mehrphasiges mikrobielles Wachstumsmuster, das durch mehrere deutlich voneinander abgegrenzte exponentielle Phasen gekennzeichnet ist, die durch vorübergehende stationäre oder Lag-Phasen getrennt sind. Dieses Phänomen tritt auf, wenn Mikroorganismen in einem komplexen Medium kultiviert werden, das eine Mischung aus Kohlenstoffquellen (Substraten) enthält, die nacheinander und nicht gleichzeitig verbraucht werden.
Die einfachste und klassischste Form ist das diauxische Wachstum (zwei Phasen), das erstmals von Jacques Monod in seiner Dissertation (1941) und nachfolgenden Veröffentlichungen (1945) detailliert beschrieben wurde. [ 12 ] [ 13 ] In seinen Experimenten mit Escherichia coli beobachtete Monod, dass die Bakterien bei gleichzeitigem Angebot von Glucose und Lactose bevorzugt Glucose verstoffwechselten, da deren Metabolisierung thermodynamisch effizienter ist. Während dieser ersten Phase werden die für den Lactose-Stoffwechsel benötigten Enzyme gehemmt – ein Regulationsmechanismus, der als Katabolitrepression bekannt ist . Erst nach vollständigem Verbrauch der Glucose tritt die Bakterienpopulation in eine vorübergehende Lag-Phase ein, um die notwendigen Enzyme (z. B. β-Galactosidase ) zu synthetisieren, was zu einer zweiten exponentiellen Wachstumsphase auf Lactose führt.
In komplexen Umwelt- oder Industriekontexten, wie der Fermentation von Lignocellulosehydrolysaten oder Abwasserströmen, können Bakterien auf vielfältige Nährstoffpools treffen, was zu polyauxischen Wachstumsmustern höherer Ordnung (z. B. triauxischem oder tetraauxischem Wachstum) führt. Die präzise mathematische Modellierung dieser Dynamiken ist für die Bioprozesssteuerung unerlässlich. Während klassische Modelle (z. B. die Gompertz-Funktion ) einphasiges Wachstum beschreiben, stellen moderne semi-mechanistische Ansätze Polyauxie als Summe mehrerer sigmoider Phasen dar. Diese Modelle ermöglichen es Forschern, kinetische Parameter – wie die maximale spezifische Wachstumsrate ( ) und die Dauer der Lag-Phase ( ) – für jede einzelne Substratverbrauchsphase explizit zu bestimmen. [ 14 ] [ 15 ]


Die 5. Phase: Langfristige stationäre Phase
Die langfristige stationäre Phase ist, anders als die frühe stationäre Phase (in der nur geringe Zellteilung stattfindet), eine hochdynamische Periode, in der sich Geburten- und Sterberaten im Gleichgewicht befinden. Es ist nachgewiesen, dass E. coli nach der Sterbephase über lange Zeiträume in Batch-Kultur ohne Nährstoffzugabe gehalten werden kann. [ 16 ] [ 17 ] Durch die Zugabe von sterilem destilliertem Wasser zur Aufrechterhaltung von Volumen und Osmolarität können aerob gezüchtete Kulturen über fünf Jahre lang mit einer Dichte von ca. 10⁶ koloniebildenden Einheiten (KBE) pro ml ohne Nährstoffzugabe in Batch-Kultur gehalten werden. [ 18 ]
Umweltbedingungen
Umweltfaktoren wie pH-Wert, Temperatur, Wasseraktivität , Makro- und Mikronährstoffe, Sauerstoffgehalt und Toxine beeinflussen das Bakterienwachstum . Die Wachstumsbedingungen sind bei Bakterien – mit Ausnahme von Extremophilen – in der Regel relativ konstant. Bakterien benötigen optimale Wachstumsbedingungen, um optimal zu gedeihen. Werden diese Bedingungen jedoch nicht eingehalten, kann der Stress zu verringertem oder stockendem Wachstum, zu Ruhephasen (z. B. Sporenbildung ) oder zum Tod führen . Die Aufrechterhaltung suboptimaler Wachstumsbedingungen ist ein Schlüsselprinzip der Lebensmittelkonservierung .
Temperatur
Die meisten Mikroorganismen gedeihen am besten bei moderaten Temperaturen. Die Einhaltung suboptimaler Wachstumstemperaturen ist für die Lebensmittelkonservierung unerlässlich. Dieses Prinzip führte zur Einführung von Kühlung und gründlichen Garmethoden. Mikroorganismen werden nach den Temperaturen klassifiziert, bei denen sie wachsen und sich vermehren. Sie lassen sich wie folgt einteilen:
- Psychrophile
Psychrophile sind extremophile Mikroorganismen, die an niedrige Temperaturen angepasst sind. Die optimale Wachstumstemperatur liegt zwischen 0 und 15 Grad Celsius. [ 19 ] Psychrophile kommen typischerweise in extrem kalten Ökosystemen der Erde vor, wie beispielsweise in polaren Eiskappen, Permafrost, auf polaren Oberflächen und in der Tiefsee. Um dort zu überleben, müssen Psychrophile sowohl an kalte Temperaturen als auch an extreme Umweltbedingungen angepasst sein. Obwohl diese physiologischen Anpassungen noch nicht vollständig erforscht oder verstanden sind, umfassen einige Anpassungen die Regulation der Membranfluidität, die kälteakklimatisierte Proteinsynthese und die Frosttoleranz. Auf Enzymebene ermöglicht die Destabilisierung des aktiven Zentrums oder des gesamten Proteins, dass das Protein bei Temperaturen, die normalerweise die molekulare Bewegung einfrieren, aktiv und flexibel bleibt. [ 20 ]
- Mesophile
Mesophile Organismen verdanken ihren Namen ihrer Vorliebe für das Wachstum bei moderaten Temperaturen zwischen 20 und 45 Grad Celsius. Mesophile Organismen umfassen die Mehrheit der Mikroorganismen.
Krankheitserreger, die den menschlichen Körper befallen, sind typischerweise mesophil, da sie im gemäßigten Temperaturbereich des menschlichen Körpers am besten gedeihen.
- Thermophile
Thermophile sind Mikroorganismen, die bei Temperaturen zwischen 45 und 80 Grad Celsius gedeihen. Man unterscheidet zwischen moderaten Thermophilen, die zwischen 45 und 70 Grad Celsius wachsen, und extremen Thermophilen, die über 70 Grad Celsius wachsen. Letztere kommen häufig in geothermisch oder vulkanisch erwärmten Umgebungen vor. Thermophile verfügen über verschiedene Mechanismen, um bei diesen Temperaturen zu überleben. DNA-bindende Proteine verpacken die DNA in Nukleosomen, um die Stabilität bei hohen Temperaturen zu erhöhen. Membranmodifikationen, wie beispielsweise der Einbau von iso-verzweigten Fettsäuren, verbessern die Steifigkeit. Viele Thermophile besitzen ein kleineres Genom, wodurch der Energiebedarf für die Zellteilung sinkt.
Säure
Der optimale pH-Wert für Bakterien liegt in der Regel zwischen 6,5 und 7,0 (neutral). Bakterien, die in Umgebungen mit niedrigerem pH-Wert leben, werden als acidophile und stärker alkaliphile Bakterien bezeichnet . Einige Bakterien können den pH-Wert verändern, beispielsweise durch die Ausscheidung von Säure, was zu suboptimalen Bedingungen führt. [ 21 ]
Wasseraktivitäten
Umweltbedingungen, die das mikrobielle Wachstum beeinflussen, werden typischerweise einzeln untersucht. Temperatur und Feuchtigkeit sind jedoch oft eng miteinander verknüpft. Unabhängig von den Temperaturbedingungen sinkt die bakterielle Wachstumsrate bei geringerer Bodenfeuchtigkeit. [ 22 ]
Sauerstoff
Bakterien können aerob oder anaerob sein . Je nach ihrem Sauerstoffbedarf lassen sie sich in folgende Klassen einteilen:
- fakultativ anaerobe Organismen – d. h. sie sind aerotolerant und benötigen für ihr Wachstum weder Sauerstoff und noch nur minimalen Sauerstoff.
- Obligat anaerobe Organismen wachsen nur in völliger Abwesenheit von Sauerstoff.
- fakultativ aerobe Organismen können sowohl in Gegenwart als auch in minimaler Sauerstoffkonzentration wachsen.
- obligat aerobe Organismen wachsen nur in Gegenwart von Sauerstoff
Mikronährstoffe
Mikroorganismen benötigen ausreichend Nährstoffe für ihr Wachstum. Zu den für das mikrobielle Wachstum notwendigen Mikronährstoffen gehören Zink, Kupfer, Mangan und Eisen. Obwohl Mikronährstoffe in der Natur in der Regel kein limitierender Faktor für das mikrobielle Wachstum sind, wirken sie als Cofaktoren und unterstützen Enzyme . [ 23 ] Der Nährstoffbedarf variiert je nach Mikroorganismenart. Kieselalgen beispielsweise benötigen B-Vitamine wie Vitamin B12 für die Aminosäuresynthese und Methioninsynthase, die das Zellwachstum der Kieselalgen fördert. [ 24 ] Mikronährstoffe sind zwar in ausreichender Menge für Wachstum und Effizienz notwendig, ein Überschuss kann jedoch schädlich für das mikrobielle Wachstum sein.
Giftige Verbindungen
Giftige Verbindungen wie Ethanol können das Wachstum von Bakterien hemmen oder diese abtöten. Dies wird vorteilhaft zur Desinfektion und zur Lebensmittelkonservierung eingesetzt .
Siehe auch
Referenzen
- ^ Fernández-Martínez LT, Javelle A, Hoskisson PA (Februar 2024). „Mikrobielle Grundlagen: Kinetik des Bakterienwachstums“ . Microbiology . 170 (2): 001428. doi : 10.1099/mic.0.001428 . PMC 10924458. PMID 38329407 .
- ^ a b Skarstad K, Steen HB, Boye E (1983). „Zellzyklusparameter langsam wachsender Escherichia coli B/r, untersucht mittels Durchflusszytometrie“ . J. Bacteriol. 154 (2): 656–662 . doi : 10.1128/jb.154.2.656-662.1983 . PMC 217513. PMID 6341358 .
- ^ Zwietering MH, Jongenburger I, Rombouts FM, van 'T Riet K (1990). „Modellierung der bakteriellen Wachstumskurve“ . Applied and Environmental Microbiology . 56 (6): 1875–1881 . Bibcode : 1990ApEnM..56.1875Z . doi : 10.1128 / aem.56.6.1875-1881.1990 . PMC 184525. PMID 16348228 .
- ^ Fankhauser DB (17. Juli 2004). „Bakterienwachstumskurve“ . University of Cincinnati Clermont College. Archiviert vom Original am 13. Februar 2016. Abgerufen am 29. Dezember 2015 .
- ^ Case C, Funke B, Tortora G (2010). Mikrobiologie: Eine Einführung (Zehnte Auflage). Pearson Benjamin Cummings. ISBN 978-0-321-55007-1Die
- ^ a b „Bakterienwachstum“ . BACANOVA-Projekt . Europäische Kommission. Archiviert vom Original am 24. Oktober 2007. Abgerufen am 7. Mai 2008 .
- ^ Coutts DA (15. Dezember 2011). „Marshall T. Savage – Eine exponentialistische Sichtweise“ . Berühmte Exponentialisten . Homepage der Exponentialisten.
- Bridges BA , Foster PL, Timms AR (2001). „Einfluss endogener Carotinoide auf die adaptive Mutation in Escherichia coli FC40“ . Mutat. Res . 473 (1): 109–119 . Bibcode : 2001MRFMM.473..109B . doi : 10.1016/s0027-5107(00 ) 00144-5 . PMC 2929247. PMID 11166030 .
- ^ Samorodnitsky, Dan (5. Juni 2024). „Der größte Teil des Lebens auf der Erde befindet sich im Ruhezustand, nachdem er eine ‚Notbremse‘ gezogen hat.“" . Quanta Magazine . Abgerufen am 12. Juni 2024 .
- ^ Novick A (1955). „Wachstum von Bakterien“. Annual Review of Microbiology . 9 : 97–110 . doi : 10.1146/annurev.mi.09.100155.000525 . PMID 13259461 .
- ^ Anagnostopoulos C, Spizizen J (1961). „ Anforderungen an die Transformation von Bacillus subtilis“ . J. Bacteriol . 81 (5): 741–6 . Bibcode : 1961JBact..81..741A . doi : 10.1128/JB.81.5.741-746.1961 . PMC 279084. PMID 16561900 .
- ^ Monod, Jacques (1941). Recherches sur la croissance des cultures bactériennes (auf Französisch). Paris: Hermann.
- ^ Monod, Jacques (1945). „Sur la nature du phénomène de diauxie“. Annales de l'Institut Pasteur (auf Französisch). 71 : 37–40 .
- ^ Mockaitis, Gustavo (2026). „Mono- und polyauxische Wachstumskinetik: Ein semi-mechanistischer Rahmen für komplexe biologische Dynamiken“ . Bulletin of Mathematical Biology . 88 : 55. arXiv : 2507.05960 . doi : 10.1007/s11538-026-01621-7 .
- ^ Mockaitis, Gustavo (2026). „Polyauxic Modeling Platform v1.0.0 (Streamlit)“ . doi : 10.5281/zenodo.18025828 .
- ^ Steinhaus EA, Birkeland JM (September 1939). „Studien über Leben und Tod von Bakterien: I. Die Seneszenzphase in alternden Kulturen und die wahrscheinlichen Mechanismen“ . Journal of Bacteriology . 38 (3): 249–261 . doi : 10.1128/jb.38.3.249-261.1939 . PMC 374517. PMID 16560248 .
- ^ Finkel SE, Kolter R (März 1999). „Evolution der mikrobiellen Diversität während längeren Hungers“ . Proceedings of the National Academy of Sciences of the United States of America . 96 (7): 4023–4027 . Bibcode : 1999PNAS...96.4023F . doi : 10.1073 / pnas.96.7.4023 . PMC 22413. PMID 10097156 .
- ^ Finkel SE (Februar 2006). „Langfristiges Überleben in der stationären Phase: Evolution und der GASP-Phänotyp“. Nature Reviews Microbiology . 4 (2): 113–120 . doi : 10.1038/nrmicro1340 . PMID 16415927. S2CID 3337959 .
- ^ Feller, Georges; Gerday, Charles (Dezember 2003). „Psychrophile Enzyme: Aktuelle Themen der Kälteanpassung“ . Nature Reviews Microbiology . 1 (3): 200–208 . doi : 10.1038/nrmicro773 . ISSN 1740-1534 .
- ^ Somayaji, Adithi; Dhanjal, Chetan Roger; Lingamsetty, Rathnamegha; Vinayagam, Ramesh; Selvaraj, Raja; Varadavenkatesan, Thivaharan; Govarthanan, Muthusamy (1. Oktober 2022). „Ein Einblick in die Mechanismen der Homöostase bei Extremophilen“ . Mikrobiologische Forschung . 263 127115. doi : 10.1016/j.micres.2022.127115 . ISSN 0944-5013 . PMID 35868258 .
- ^ Blamire J. „Einfluss des pH-Werts auf die Wachstumsrate“ . Brooklyn College . Abgerufen am 8. Oktober 2016 .
- ^ Cruz-Paredes, Carla; Tájmel, Dániel; Rousk, Johannes (1. Mai 2021). „Kann Feuchtigkeit die Temperaturabhängigkeit des mikrobiellen Wachstums und der Atmung beeinflussen?“ Soil Biology and Biochemistry . 156 108223. Bibcode : 2021SBiBi.15608223C . doi : 10.1016/j.soilbio.2021.108223 . ISSN 0038-0717 .
- ^ Merchant, Sabeeha S.; Helmann, John D. (2012), „Elemental Economy“, Advances in Microbial Physiology , Bd. 60, Elsevier, S. 91–210 , doi : 10.1016/b978-0-12-398264-3.00002-4 , ISBN 978-0-12-398264-3, PMC 4100946
- ^ Costas-Selas, Cecilia; Martínez-García, Sandra; Pinhassi, Jarone; Fernández, Emilio; Teira, Eva (Dezember 2024). „Enthüllung der durch B-Vitamine vermittelten Wechselwirkungen zwischen Kieselalgen und den damit verbundenen Bakterien aus Kokulturen“ . Zeitschrift für Phykologie . 60 (6): 1456–1470 . Bibcode : 2024JPcgy..60.1456C . doi : 10.1111/jpy.13515 . ISSN 0022-3646 . PMC 11670299 . PMID 39413213 .
Externe Links
- Eine Untersuchung des exponentiellen Wachstums von Bakterienpopulationen. Archiviert am 10. Januar 2006 in der Wayback Machine.
- Mikrobielles Wachstum, BioMineWiki, archiviert am 20. September 2011 im Internetarchiv Wayback Machine
- Vom Wolfram Demonstrations Project — erfordert CDF Player (kostenlos) :
- Die endgültige Anzahl der Bakterienzellen
- Simulation von mikrobiellen Zählaufzeichnungen mit einem erweiterten Fermi-Lösungsmodell
- Anfängliche Wachstumsprozesse mit konkurrierenden Mechanismen
- Modifiziertes logistisches isothermes mikrobielles Wachstumsverhältnis
- Verallgemeinerte logistische (Verhulst) isotherme mikrobielle Wachstumskurve
- Wachstum, Mortalität und Übergänge zwischen mikrobiellen Populationen
- Diauxisches Wachstum von Bakterien auf zwei Substraten
Dieser Artikel enthält Material aus einem am 26. April 2003 auf Nupedia veröffentlichten Artikel ; verfasst von Nagina Parmar; geprüft und genehmigt von der Biologiegruppe; Herausgeberin: Gaytha Langlois; Hauptgutachterin: Gaytha Langlois; Hauptredakteurinnen: Ruth Ifcher und Jan Hogle.