Dieses Glossar erläutert Fachbegriffe, die häufig zur Beschreibung von Dinosaurierfossilien verwendet werden . Neben dinosaurierspezifischen Begriffen werden auch weiter verbreitete Begriffe behandelt, sofern diese für die Dinosaurierforschung von zentraler Bedeutung sind oder ihre Erläuterung im Kontext der Dinosaurierforschung zielführend ist. Das Glossar umfasst weder ichnologische noch knochenhistologische Begriffe und auch keine Maßangaben.
A
- Acetabulum
- Bei Dinosauriern ist die Hüftgelenkpfanne ( Acetabulum , Plural: Acetabula ) eine Öffnung im Becken, die vom Darmbein (Ilium) , Schambein (Pubis ) und Sitzbein (Ichium) gebildet wird und in seitlicher und medialer Ansicht sichtbar ist. Sie nimmt den Oberschenkelkopf auf und bildet so das Hüftgelenk. Die meisten Vierfüßer besitzen eine geschlossene Hüftgelenkpfanne , bei der die Pfanne vollständig mit Knochen ausgefüllt ist und eine Vertiefung bildet. Dinosaurier sind insofern einzigartig, als sie eine offene Hüftgelenkpfanne aufweisen , bei der die gesamte Pfanne eine offene Öffnung ohne Knochenfüllung darstellt. [ 1 ]
- Acromion
- Das Acromion ist ein Knochenvorsprung am unteren Teil des Schulterblatts, der als Ansatzstelle für das Schlüsselbein dient . [ 2 ] [ 3 ] Nodosauriden entwickeln einen ausgeprägten Sporn, das sogenannte Pseudoacromion , das wahrscheinlich als Ansatzstelle für den Musculus scapulohumeralis anterior diente und daher dem Acromion der Säugetiere analog ist . [ 4 ]
- Adduktorfossa
- Die Adduktorengrube oder Meckelsche Öffnung bei Reptilien und Dinosauriern ist die Hauptöffnung zum Unterkiefer und liegt zwischen dem Zahnbereich und dem Kiefergelenk. Sie öffnet sich dorsal und wird seitlich vom Surangulare und medial vom Präartikulare begrenzt ; da letzteres in der Regel deutlich tiefer liegt als ersteres, ist die Grube auch von medial sichtbar. Der Boden der Öffnung wird vom Angulare gebildet und beherbergt den hinteren Teil des Meckelschen Knorpels. Die Adduktorengrube und ihre umgebenden Ränder dienen als Ansatzpunkt für die wichtigsten Adduktorenmuskeln, die den Kiefer schließen; außerdem ermöglicht sie den Eintritt des Hauptnervs, der Hauptarterie und der Hauptvene des Kiefers in das Kieferinnere. [ 5 ]
- Luftsäcke
- Bei modernen Vögeln sind die Lungenbläschen dünnwandige, durchscheinende, luftgefüllte Säckchen, die mit der Lunge verbunden sind . Zusammen mit der Lunge bilden die Lungenbläschen ein hocheffizientes Atmungssystem, das bei Vögeln bis zu 160 % mehr Sauerstoff aufnehmen kann als bei Säugetieren. Obwohl in den Lungenbläschen nur ein begrenzter Gasaustausch stattfindet, treiben sie die Lungenventilation an. Lungenbläschen, die sowohl hinter als auch vor der Lunge liegen, ermöglichen einen konstanten Luftstrom durch die Lunge. Kleinere, blind endende, luftgefüllte Ausstülpungen, die von den Lungenbläschen und der Lunge ausgehen, werden als pneumatische Divertikel (Singular: Divertikel ) bezeichnet; diese können zahlreich sein und in fast allen Körperregionen vorkommen. Einige pneumatische Divertikel werden im Laufe des Wachstums eines Tieres resorbiert und durchdringen die Knochen , wodurch Gruben (Vertiefungen) auf der Knochenoberfläche sowie innere Kammern in den Knochen entstehen – ein Prozess, der als postkraniale Skelettpneumatisierung (PSP) bekannt ist. Obwohl Luftsäcke nicht fossilisiert werden, wird ihre Existenz zumindest bei Saurischiern durch charakteristische Spuren der Pneumatisierung in den Knochen belegt. [ 6 ]
- Alveolen
- Zahnalveolen (Einzahl: Alveole ) oder Alveolen sind Vertiefungen im Kiefer , die die Zahnwurzeln enthalten . Innerhalb der Alveolen werden die Zähne periodisch durch darunter nachwachsende neue Zähne ersetzt; die alte Zahnkrone fällt nach der Resorption der Wurzel ab. Das Vorhandensein tiefer Alveolen wird als Thekodontie bezeichnet und ist bei allen Archosauriern , einschließlich der Dinosaurier, anzutreffen. Die meisten Schuppenkriechtiere hingegen weisen die Pleurodontie auf , bei der die Zähne mit der Innenseite der Kieferknochen verwachsen sind, oder die Akrodontie , bei der die Zähne ohne Alveolen mit der Oberseite der Kieferknochen verwachsen sind. Die Thekodontie wurde historisch zur Definition eines Taxons , der Thekodontia , herangezogen , das heute als paraphyletisch und somit überholt gilt. [ 7 ]
- Winkel
- Der Angulus ist ein Hautknochen des Unterkiefers . In der Lateralansicht bedeckt er einen größeren Bereich der posteroventralen Region des Kiefers und liegt hinter dem Dentale und unterhalb des Surangulare . In der Medialansicht des Unterkiefers ist er unterhalb des Präartikulare sichtbar . Er bildet den Boden der Adduktorengrube und stützt den hinteren Anteil des Meckelschen Knorpels . [ 5 ]
- Antorbitalfenster
- Das Antorbitalfenster ist eine der fünf Hauptöffnungen des Schädels und befindet sich zwischen der Augenhöhle und dem äußeren Nasenloch . Es ist bei den meisten frühen Archosauriformes (einschließlich der Archosauria ) vorhanden und war ursprünglich bei Dinosauriern zu finden. Bei Saurischiern ist es tendenziell groß, bei Ornithischiern hingegen verkleinert oder vollständig verschlossen. Das Antorbitalfenster liegt in einer größeren Vertiefung, der Antorbitalgrube . Diese Grube kann weitere, kleinere Öffnungen enthalten, nämlich das Maxillarfenster (auch: akzessorisches Antorbitalfenster ) und das Promaxillarfenster . [ 1 ]
- Gelenk
- Das Os articulare ist der hinterste Knochen des Unterkiefers . Auf seiner dorsalen Fläche befindet sich die Glenoidgrube , in die das untere Ende des Os quadratum des Schädels passt und so das Kiefergelenk bildet. Es ist der einzige enchondrale Knochen des Unterkiefers und entsteht direkt aus dem hinteren Teil des Meckelschen Knorpels . Bei Säugetieren wanderte das Os articulare in den Schädel und bildete dort den Hammer des Mittelohrs . [ 5 ]
- artikuliert
- Eine Artikulation ist jede Verbindung zwischen Knochen . Der Begriff wird auch zur Beschreibung der Erhaltung von Präparaten verwendet: Bei einem artikulierten Präparat haften die einzelnen Knochen in ihrer ursprünglichen anatomischen Position zusammen. Im Gegensatz dazu sind die Knochen eines disartikulierten Skeletts aus ihrer ursprünglichen anatomischen Anordnung herausgelöst. Ein Präparat, dessen Knochen zwar disartikuliert, aber nahe beieinander liegen, wird als assoziiertes Skelett bezeichnet. Der Übergang von einem vollständig artikulierten Skelett zu einer Ansammlung isolierter und nicht assoziierter Knochen ist fließend. [ 8 ]
- Astragalus
- Das Sprungbein (Plural: Astragali [ 1 ] ) ist ein wichtiger Knochen im Sprunggelenk . Es liegt direkt unterhalb des Schienbeins und medial des Fersenbeins , welches unterhalb des Wadenbeins sitzt . Das Sprungbein rotiert nicht gegenüber dem Fersenbein oder dem Schienbein; stattdessen ist es bei Zweibeinern häufig mit beiden Elementen verwachsen (siehe auch: Tibiotarsus ). [ 9 ]
- Atlas
- Der Atlas ist der erste (vorderste) Wirbel der Wirbelsäule . Er nimmt den Hinterhauptkondylus der Schädelbasis auf und bildet so die Verbindung zwischen Schädel und Wirbelsäule . Dinosaurier besaßen einfache Kondylen, die eine Drehbewegung zwischen Atlas und Schädel ermöglichten. Säugetiere hingegen weisen doppelte Kondylen auf, die die Bewegung auf eine Ebene beschränken; hier findet die Drehbewegung hauptsächlich zwischen dem Atlas und dem zweiten Wirbel, dem Axis , statt . Der Atlas der Dinosaurier ist primitiv, da er aus drei separaten Elementen besteht, was den ursprünglichen Zustand der Reptilien widerspiegelt: die Atlasneurapophyse (Plural: Atlasneurapophysen; auch: Atlasbogen ) oben; [ 10 ] das Intercentrum vorne und das Centrum hinten. Ein zusätzlicher kleiner Knochen, der Proatlas , liegt vor dem Atlasbogen. [ 11 ] Der Centrum-Teil des Atlas wird auch als Dens axis bezeichnet . [ 12 ] Bei Dinosauriern bleiben die drei Elemente im Allgemeinen getrennt, können aber miteinander verschmolzen sein. Bei Ceratopsiern sind der Atlas sowie der Axis und der dritte Wirbel zu einem einzigen Knochen verschmolzen . [ 11 ]
- Arctometatarsal
- Bei der Arctometatarsalia- Konstitution (von lateinisch arctus – „komprimiert“) ist der mittlere (dritte) Mittelfußknochen am oberen Ende zwischen den benachbarten Mittelfußknochen (dem zweiten und vierten) eingeklemmt und daher von vorn nicht sichtbar. Diese Konstitution findet sich bei einigen abgeleiteten Theropoden, darunter Ornithomimiden, Tyrannosauriden, Troodontiden, Elmisauriden und Avimimiden, und diente vermutlich als Stoßdämpfer beim Laufen, wodurch eine höhere Laufgeschwindigkeit ermöglicht wurde . Ursprünglich wurde dieses Merkmal zur Definition einer Klade, der Arctometatarsalia, verwendet, die heute als polyphyletisch gilt . [ 13 ] [ 14 ]
- Achse
- Der Axis ist der zweite Wirbel der Wirbelsäule nach dem Atlas . Er ist größer als dieser, sein Wirbelkörper ist mit dem Neuralbogen verschmolzen und der Dornfortsatz ist gut entwickelt. Sein kleiner Zwischenwirbelraum, der sich vor dem Wirbelkörper befindet, ist bei Theropoden separat, verschmilzt aber bei Ornithischiern mit dem Wirbelkörper des Atlas. [ 11 ]
- Axonie
- Der Begriff Axonie beschreibt die Lage des dominanten (größten und am weitesten vorstehenden) Fingers oder Zehs an Hand oder Fuß und wird am häufigsten zur Beschreibung von Fußabdrücken verwendet. Ist der mittlere Finger (in der Regel der dritte) dominant, wie es bei den Füßen der meisten zweibeinigen Dinosaurier der Fall ist, spricht man von mesaxonischer Hand oder Fußstellung . Bei einer entaxonischen Hand oder Fußstellung liegt der dominante Finger medial (entweder der erste oder der zweite Finger); diese seltene Konstellation findet sich bei Sauropodenfüßen. Umgekehrt liegt bei einer ektaxonischen Hand/Fußstellung der dominante Finger außen (oft der vierte Finger). Sind zwei oder vier Finger vorhanden und ist keine Hälfte der Hand oder des Fußes dominanter als die andere, spricht man von paraxonischer Handstellung . [ 15 ] : 47–48


B
- Basaltuber
- Die Basaltuberkel (Singular: Basaltuberkel ) oder Sphenoccipitaltuberkel [ 16 ] sind ein Paar tuberkelartiger Ausstülpungen an der Unterseite des Hirnschädels , die als Ansatzstellen für ventrale Halsmuskeln dienen . Sie werden vom Basioccipital- und dem Basisphenoidknochen gebildet und sind bei Saurischiern stark ausgeprägt, bei Ornithischiern hingegen nur mäßig. [ 17 ] [ 18 ]
- Basicranium
- Das Basikranium bildet den Boden des Hirnschädels und wird vom Basioccipitale , Basisphenoid und Parasphenoid gebildet . [ 19 ]
- Basisphenoid
- Das Basisphenoid bildet den vorderen Teil des Schädelbodens . Es ist bei einem artikulierten Schädel von außen nicht sichtbar und ist hinten mit dem Basioccipitale und vorne mit dem Parasphenoid verwachsen . Von seiner Unterseite erstrecken sich zwei markante Fortsätze, die Basipterygoidfortsätze , die mit den Pterygoidfortsätzen des Gaumens artikulieren . [ 20 ]
- Basioccipital
- Das Basioccipitale ist ein unpaarer Schädelknochen und einer der vier Knochen, die das Hinterhauptbein des Hirnschädels bilden . Es ist in der Rückansicht des artikulierten Schädels sichtbar. Es bildet den größten Teil des Hinterhauptkondylus , eines abgerundeten Fortsatzes , der den Schädel mit dem Atlas , dem ersten Halswirbel , verbindet . Oberhalb ist es mit den paarigen Exoccipitalien verschmolzen . Es bildet außerdem den hinteren Teil des Hirnschädelbodens und ist vorn mit dem Basisphenoid verschmolzen. [ 20 ]
- Knochen
- Knochen sind neben den Zähnen die häufigsten Fossilien von Dinosaurierkörpern. Sie bestehen aus Hydroxylapatit , sind hart mineralisiert und daher widerstandsfähig. Weichteile hingegen bleiben meist nur als Abdrücke erhalten und sind nur in Ausnahmefällen direkt konserviert. Zu den Knochen gehören der Schädel , das Achsenskelett (Wirbelsäule und Rippen ) und das Extremitätenskelett ( Gürtel und Gliedmaßen ). [ 21 ] Die meisten dieser Knochen sind paarig angelegt , mit einem spiegelbildlichen Gegenstück auf der anderen Körperseite, oder unpaarig . Im letzteren Fall liegen sie in der Regel in der Körpermittellinie und werden durch diese in zwei symmetrische Hälften geteilt. [ 1 ] Darüber hinaus umfassen die Knochen auch verschiedene Elemente, die in der Haut gebildet wurden , wie beispielsweise Bauchpanzer , Knochenplatten und Stacheln . [ 21 ] Paläontologen untersuchen am häufigsten die Morphologie von Knochen, aber auch deren Histologie (die innere Mikrostruktur bis hin zur Zellebene) und chemische Zusammensetzung lieferten wichtige Erkenntnisse zur Biologie der Dinosaurier. [ 22 ] Es gibt zwei Haupttypen von Knochen: Dermale Knochen entstehen direkt in der Dermis (Haut) und wachsen in der Regel aus anfänglich dünnen Platten. Unter anderem sind die meisten Knochen, die die äußere Oberfläche des Schädels und des Unterkiefers bilden, dermale Knochen. Im Gegensatz dazu entsteht enchondraler Knochen aus einer knorpeligen Vorstufe, die verknöchert (ossifiziert). [ 1 ]
- Hirnhaut
- Der Hirnschädel ist der Teil des Schädels, der das Gehirn umschließt . Bei einem artikulierten Schädel ist er von außen nur vom Hinterhauptbein (Os occipitale) aus sichtbar . Er ist eine komplexe Struktur und wird von zahlreichen Öffnungen (Foramina) durchzogen , die Blutgefäße und Hirnnerven enthalten. Die einzelnen Knochen des Hirnschädels sind bei ausgewachsenen Tieren meist vollständig miteinander verschmolzen, sodass die Grenzen zwischen den ursprünglichen Elementen oft nicht mehr erkennbar sind. Bei Dinosauriern ist die Anatomie des Hirnschädels relativ stabil, kann aber gerade deshalb genutzt werden, um Verwandtschaftsverhältnisse innerhalb einer Gruppe zu erschließen, selbst wenn andere Skelettmerkmale so tiefgreifende Veränderungen erfahren haben, dass ihre Ursprünge nicht mehr nachvollziehbar sind. Der Hirnschädel ermöglicht zudem die Rekonstruktion von Gehirn und Innenohr und damit Rückschlüsse auf Sinnesorgane und Intelligenz. [ 20 ]


C
- Fersenbein
- Das Fersenbein (Plural: Calcanea [ 1 ] ) ist ein wichtiger Knochen des Sprunggelenks (an der Rückseite des Fußes) und bildet zusammen mit dem Sprungbein die obere Reihe der Fußwurzelknochen. Es liegt seitlich des Sprungbeins und distal des Wadenbeins . [ 9 ]
- Caputegulum
- Caputegulae (lateinisch „Schädelplatten“) sind flache Knochen, die die Schädelknochen von Ankylosauriern bedecken. Zusammen mit den pyramidenförmigen Hörnern bilden sie die Verzierung des Schädels. Der Begriff wurde 2001 von William T. Blowes geprägt [ 23 ] und kann sowohl für verknöcherte Osteoderme als auch für Schädelskulpturen verwendet werden. Die Position eines Caputegulums auf dem Schädel kann mithilfe von Attributen genauer beschrieben werden; z. B. sitzen die nasalen Caputegulae auf den Nasenbeinen. [ 24 ]
- Carinae
- Carinae (Singular: Carina ) sind Schmelzleisten, die die Schneidekanten an den Vorder- und Hinterrändern der Zähne bilden. Sie kommen typischerweise bei fleischfressenden Dinosauriern vor und weisen häufig Sägezähne auf . [ 25 ] : 41
- Handwurzelknochen
- Die Handwurzelknochen bilden das Handgelenk ( Carpus ), welches den Unterarm ( Radius und Ulna ) mit den Mittelhandknochen ( Metacarpalia ) verbindet . [ 26 ] Der entsprechende Teil des Fußes ist der Tarsus . Basale Reptilien weisen drei Reihen von Handwurzelknochen auf. Bei Dinosauriern ist das Handgelenk oft nicht vollständig verknöchert, und die Anzahl und die genaue Art der einzelnen Elemente bleiben in vielen Fällen unklar. Besonders gut verknöchert ist das Handgelenk beim basalen Ornithischier Heterodontosaurus , wo es aus neun Elementen besteht. Die proximale Reihe besteht aus dem Radius (unterhalb des Radius), dem Ulnare (unterhalb der Ulna) und dem Erbsenbein (Pisiforme, einem kleinen Element unterhalb der Ulna und seitlich des Ulnare). Die distale Reihe besteht aus fünf Elementen oberhalb der fünf Mittelfußknochen, die als distale Handwurzelknochen 1–5 bezeichnet werden. Die mittlere Reihe wird durch ein einzelnes Element, das Centrale , repräsentiert . [ 27 ] [ 28 ]
- Karpometakarpus
- Der Carpometacarpus ist ein knöchernes Element der Hand, das aus den verschmolzenen Karpalknochen und Metakarpalknochen besteht . Diese Struktur kommt bei modernen Vögeln vor, war aber auch bei einigen eng mit Vögeln verwandten Theropoden vorhanden und entwickelte sich unabhängig bei Alvarezsauriden . [ 26 ]
- Schwanzwirbel
- Die Schwanzwirbel (vom lateinischen caudum – Schwanz) bilden den Schwanz. [ 26 ] Ursprünglich besaßen Dinosaurier etwa 50 Schwanzwirbel, deren Anzahl, Größe und Form jedoch in den verschiedenen Gruppen stark variierten. Die Anzahl der Schwanzwirbel nahm im Laufe der Evolution zu den modernen Vögeln ab; bei diesen sind die verbleibenden Schwanzwirbel zu einem Pygostyl verschmolzen . Obwohl der Schwanz früher Dinosaurier flexibel war, versteiften einige Kladen ihn mithilfe verknöcherter Sehnen (wie bei vielen Ornithischiern) oder verlängerter Präzygapophysen (wie bei einigen Theropoden, z. B. Dromaeosauriden ). Diplodociden Sauropoden besaßen einen verlängerten, peitschenartigen Schwanz, während die Schwänze einiger Ornithischier mit Keulen, Stacheln und/oder Platten ausgestattet waren. [ 25 ] : 45
- caudofemoralis
- Die Caudofemoralis-Muskeln ( Musculus caudofemoralis ) sind die wichtigsten Fortbewegungsmuskeln aller langschwänzigen Dinosaurier. Sie befinden sich hauptsächlich im Schwanz und ziehen bei Kontraktion den Oberschenkelknochen der Hintergliedmaße nach hinten (Femurretraktion/Hüftextension) und erzeugen so den Vortrieb. Bei langschwänzigen Dinosauriern ist der Musculus caudofemoralis außergewöhnlich groß und macht schätzungsweise 58 % der Gesamtmasse des Schwanzes eines Tyrannosaurus aus . Zwei Teile sind bei Dinosauriern deutlich ausgeprägt: Der Musculus caudofemoralis brevis entspringt am unteren Rand des hinteren Darmbeinabschnitts, während der Musculus caudofemoralis longus am vorderen Schwanzabschnitt, ventral der Querfortsätze und unterhalb der oberflächlichen hypaxialen Schwanzmuskulatur, entspringt. Beide Teile setzen am vierten Trochanter an der Rückseite des Oberschenkelknochens an. Die Caudofemoralis-Muskeln reduzierten sich im Laufe der Theropoden-Evolution und sind bei modernen Vögeln größtenteils verschwunden. Vögel nutzen im Gegensatz zu langschwänzigen Dinosauriern nicht die Retraktion des Oberschenkelknochens zur Fortbewegung, sondern ziehen den Unterschenkel um das Kniegelenk herum zurück. [ 4 ] [ 29 ]
- Zentrocoel
- Der Centrocoel ist der höhlenartige Markraum im Inneren des Wirbelkörpers . [ 30 ] : 31, 47
- Fossa centroprezygapophysea
- Die Centroprezygapophysengrube ist eine Vertiefung an der Vorderseite der Wirbelbögen, die durch die Centroprezygapophysenlamina begrenzt wird. [ 31 ]
- Zentrum
- Der Wirbelkörper (Plural: Wirbelzentren ), auch Wirbelkörper oder Corpus genannt , ist ein spulen- oder zylinderförmiges Element, das zusammen mit dem Neuralbogen einen Wirbel bildet . [ 1 ] Bei Jungtieren sind Wirbelkörper und Neuralbogen separate Elemente, und die Verschmelzung dieser Elemente ist ein wichtiges Kriterium für die Bestimmung des Erwachsenenalters. Die Vorder- und Hinterfläche des Wirbelkörpers bilden die Gelenkfläche mit dem Wirbelkörper des vorhergehenden bzw. nachfolgenden Wirbels. Wirbelkörper können anhand der Morphologie dieser Gelenkflächen klassifiziert werden:

Klassifizierung der Centrummorphologien anhand ihrer Gelenkenden bei Dinosauriern. - amphicoel (Substantiv: amphicoely ) Centra sind an beiden Enden stark konkav.
- Platycoel (Substantiv: platycoely ) sind an beiden Enden leicht konkav.
- Bei den amphiplatischen (Substantiv: Amphiplatie . Auch: acoel ) Zentren sind die Enden abgeflacht.
- Die procoelen (Substantiv: procoely ) Centra sind vorn konkav und hinten konvex.
- Opisthocoel (Substantiv: opisthocoely ) Centra sind posterior konkav und anterior konvex.
- Heterocoel (Substantiv: heterocoely ) Centra sind an beiden Enden sattelförmig.
Amphicoelie ist der ursprüngliche Zustand der Tetrapoden. Bei Fischen sind die Enden der Wirbelkörper tief ausgehöhlt und durch eine kleine Öffnung, den Durchgang für die Chorda dorsalis , verbunden . Bei Reptilien findet sich dieser Wirbelkörpertyp in Embryonen und bei einigen Arten auch in adulten Formen. Bei den meisten Arten, einschließlich der Dinosaurier, sind die Wirbelkörper stärker verknöchert, und die Öffnung für die Chorda dorsalis ist geschlossen, was die Widerstandsfähigkeit gegen Druckkräfte erhöht. Heterocoelische Wirbel ermöglichen Flexibilität, verhindern aber gleichzeitig Rotation. Procoelische und opisthocoelische Wirbelkörper bilden konkav-konvexe ( Kugelgelenke ), bei denen das konvexe Ende, der Condylus , in das konkave Ende, den Cotylus (auch Cotyla ), passt . Diese Konfiguration ermöglicht eine höhere Stabilität, ohne die Beweglichkeit einzuschränken. Bei langen Hälsen und Schwänzen ist diese Stabilisierung am effektivsten, wenn der konvexe Teil vom Körper weg zeigt. Bei Sauropoden sind die Wirbel vor dem Kreuzbein daher typischerweise opisthocoel, die des Schwanzes hingegen procoel. Da eine Wirbelsäule verschiedene zentrale Morphologien aufweisen kann, können Übergangswirbelkörper mit unterschiedlich geformten Enden vorkommen. [ 11 ] [ 32 ] [ 33 ] [ 34 ]
- Kleinhirn
- Das Kleinhirn (Cerebellum) ist ein dorsaler Teil des Hinterhirns zwischen Hirnstamm und Großhirn und dient der Kontrolle von Gleichgewicht, Körperhaltung und Bewegung. Dieser Teil des Gehirns ist in Dinosaurierfossilien üblicherweise nicht zu sehen, da er selten auf Endocasts sichtbar ist ; eine Ausnahme bildet die mögliche Erhaltung von Kleinhirnblättern bei Conchoraptor . [ 35 ] [ 36 ] [ 26 ]
- Halswirbelsäule
- Die Halswirbel (Cervicalia) sind die Halswirbel. [ 26 ] Die meisten Dinosaurier besaßen 9 bis 10 Halswirbel, wobei in einigen Gruppen, darunter den Sauropoden, höhere Zahlen erreicht wurden, sowohl durch eine Erhöhung der Wirbelanzahl als auch durch die Integration von Rückenwirbeln in den Hals. [ 25 ] : 44
- zervikaler Halbring
- Ein Halswirbelring ist eine quer verlaufende, kragenartige Reihe von Osteodermen, die die Oberseite des Halses bei Ankylosauriern schützt (die Halsunterseite bleibt unbedeckt). Ein Individuum besaß üblicherweise zwei Halswirbelringe, wobei der vordere kleiner als der hintere war. Halswirbelringe sind ein gemeinsames Merkmal der Ankylosauria. [ 37 ]
- Halsrippe
- Die Halsrippen sind Knochen, die seitlich-ventral an den Halswirbeln ansetzen. Sie sind ein ursprüngliches Merkmal der Amnioten (obwohl sie bei Säugetieren verloren gegangen sind) und bestehen aus einem vorderen und einem hinteren Fortsatz. Einige Sauropodomorpha, insbesondere einige langhalsige Sauropoden wie Giraffatitan , besaßen überlange Halsrippen, deren hintere Fortsätze zwei oder drei vorhergehende Wirbel überlappten. Knochenhistologische Analysen haben gezeigt, dass diese verlängerten Fortsätze verknöcherte Sehnen darstellen , was bedeutet, dass ihre Enden mit Muskeln verbunden waren. Die große Länge der Fortsätze vergrößerte den Abstand zwischen Muskelkörper und dem vom Muskel beanspruchten Wirbel, wodurch der Muskel näher am Körper liegen und der Hals leichter werden konnte. [ 38 ] [ 39 ]
- Winkel
- Die Chevrone, auch Hämalbögen genannt , sind Knochen, die an der Unterseite der Schwanzwirbel befestigt sind und die ventrale Oberfläche des Schwanzes bilden. Ein Chevron besteht aus einem linken und einem rechten Teil, die typischerweise V-förmig miteinander verschmolzen sind und eine große Öffnung umschließen, die sowohl von vorn als auch von hinten sichtbar ist. Die Öffnungen mehrerer aufeinanderfolgender Chevrone bilden den Hämalkanal des Schwanzes, der Nerven und Blutgefäße schützt. [ 26 ] [ 25 ] : 46
- Choanen
- Die Choanen (Singular: Choane), auch innere Nasenöffnungen genannt , sind zwei Öffnungen im Gaumen, die mit den äußeren Nasenlöchern den Nasengang bilden. Die linke und rechte Öffnung sind entlang der Schädelmittellinie durch das Pflugscharbein (Vomer) getrennt . Bei Dinosauriern sind die Choanen in der Regel sehr groß und länglich. [ 25 ] : 39 [ 40 ]
- Cingulum
- Ein Cingulum (Plural: Cingula ) ist eine plattenartige Ausbuchtung, die die Basis der Zahnkrone umgibt . [ 41 ]
- Schlüsselbeine
- Die Schlüsselbeine (auch Claviculae , Singular: Clavicula ) sind zwei strebenartige, gebogene Knochen oberhalb des Rabenschnabelfortsatzes (Coracoid) im Schulterblatt. Diese Hautknochen sind am Schulterdach (Acromion) befestigt und am besten in der Vorderansicht eines Skeletts zu erkennen. Schlüsselbeine werden selten bei Dinosaurierskeletten gefunden, was wahrscheinlich auf ihr geringes Erhaltungspotenzial zurückzuführen ist . [ 42 ] [ 25 ] : 49
- Rabenschnabel
- Das Rabenschnabelbein (Processus coracoideus) ist ein paariger Knochen des Schultergürtels, der am unteren Ende des Schulterblatts ansetzt . Es ist ein flaches, bei Dinosauriern typischerweise halbkreis- bis quadratisch geformtes Element und enchondralen Ursprungs. Sein unterer Rand bildet zusammen mit dem Schulterblatt einen Teil der Gelenkfläche des Schultergelenks (Glenoid). [ 25 ] : 47–49. Das Rabenschnabelbein weist an seiner lateralen Fläche eine Öffnung auf, das Rabenschnabelfortsatzforamen (Foramen coracoideum) , durch das der Nervus supracoracoideus verläuft. [ 3 ]
- Processus coronoideus
- Der Processus coronoideus ist ein knöcherner Vorsprung, der sich von der Oberseite des Unterkiefers hinter der Zahnreihe nach oben erstreckt. Er dient als Ansatzstelle für die Kieferschließmuskulatur; ein höherer Processus coronoideus vergrößert den Hebelarm dieser Muskeln und somit die Beißkraft. [ 43 ] [ 26 ] ( siehe Abbildung hier )
- kraniale Kinese
- Die Schädelkinetik beschreibt die Fähigkeit von Schädelteilen, sich an Gelenken innerhalb des Schädels gegeneinander zu bewegen. Obwohl die Schädelkinetik für eine Reihe nicht-avianer Dinosaurierarten postuliert wurde, erwies sich eine Studie aus dem Jahr 2008 die meisten dieser Annahmen als problematisch. [ 44 ] Zu den Formen der vermuteten Schädelkinetik bei Dinosauriern gehören:
- Streptostylie : Die Bewegung des Quadratums um das Squamosum am Otic-Gelenk. Das Quadratum schwingt meist parallel zur Schädelmittellinie, obwohl auch transversale Bewegungen vorkommen können. [ 44 ]
- Prokinese : Die Bewegung zwischen dem Hirnschädel und dem Gesichtsschädel um das Nasofrontalgelenk (ein Gelenk zwischen Nasen- und Stirnbein) oder die Bewegung zwischen dem linken und rechten Nasenbein. Diese Art kommt bei modernen Vögeln vor. [ 44 ]
- Neurokinese (auch: Basalgelenkkinese ): Die Bewegung des Hirnschädels gegen den Gaumen um das Basipterygoidgelenk (oder Basalgelenk). [ 44 ]
- Pleurokinese : Die Fähigkeit des Oberkiefers , nach außen zu schwingen. Pleurokinese wurde als neuartige Form der Schädelkinese bei Ornithopoden vorgeschlagen, die transversale Kieferbewegungen beim Kauen ermöglicht. Diese komplexe Form der Schädelkinese erfordert neben der Beweglichkeit des Oberkiefers und des Gesichtsschädels transversale Bewegungen des Quadratbeins gegen das Schuppenbein (eine modifizierte Form der Streptostylie) sowie die Kinese des Basalgelenks. [ 44 ]


D
- Todespose
- Die Todesstellung , auch Opisthotonus genannt , ist eine häufige Haltung bei erhaltenen Dinosaurier- und Vogelfossilien, bei der die Wirbelsäule stark nach oben gekrümmt (überstreckt) ist. [ 45 ] Verschiedene mögliche Ursachen werden diskutiert, darunter Opisthotonus (Todesqualen) [ 45 ] und die Ablösung des Ligamentum elasticum interlaminare während der Verwesung. [ 46 ]
- Zahnbatterie
- Eine Zahnbatterie ist eine Gebissform bei einigen pflanzenfressenden Dinosauriern, bei der die einzelnen Zähne dicht aneinander liegen und eine durchgehende Kaufläche bilden. Beim Hadrosaurier Edmontosaurus umfasste die Zahnbatterie jeder Kieferhälfte mehr als 60 Zahnreihen. Jede Reihe bestand aus bis zu drei übereinanderliegenden Funktionszähnen und bis zu fünf darunterliegenden Ersatzzähnen, die nach dem Abnutzen der Funktionszähne durchbrachen. Als komplexeste Gebissform bei Dinosauriern entwickelte sie sich unabhängig voneinander bei Hadrosauriern, Ceratopsiern und einigen Sauropoden und unterscheidet sich in Form und Funktion innerhalb dieser Gruppen. [ 25 ] : 185–186 [ 47 ]
- Zahn
- Der Dentale ist der Hauptknochen des Unterkiefers . Er ist der einzige Unterkieferknochen, der Zähne trägt, und liegt vor allen anderen Kieferknochen, außer bei Ornithischiern, bei denen die Spitze des Unterkiefers vom Prädentale gebildet wird . An ihren vorderen Enden sind die Dentale des linken und rechten Kiefers miteinander verbunden und bilden die Symphysis mandibularis . [ 25 ] : 40
- Dentition
- Der Begriff „Gebiss“ bezeichnet alle Zähne im Kiefer eines einzelnen Dinosauriers. Das Gebiss kann homodont sein , wenn nur ein einziger Zahntyp vorhanden ist, oder heterodont, wenn verschiedene Zahntypen vorkommen. [ 48 ] : 232–233 Zähne werden lebenslang kontinuierlich ersetzt. Durchgebrochene und aktuell genutzte Zähne werden als Funktionszähne bezeichnet . An jeder Zahnposition befinden sich typischerweise ein oder zwei nicht durchgebrochene Ersatzzähne , die nacheinander in die Zahnlücke wandern und den ausgefallenen Funktionszahn ersetzen. Einige pflanzenfressende Arten können bis zu sechs Ersatzzähne pro Zahnposition aufweisen. Der Zahnwechsel beginnt mit der Resorption der Wurzel des Funktionszahns. [ 49 ] Ausgeworfene Zähne besitzen keine Wurzel und werden als Abfallzähne bezeichnet . [ 41 ]
- Deltopektoralkamm
- Der Deltopektoralkamm ist ein nach vorn gerichteter Knochenvorsprung am oberen Teil des Oberarmknochens . Ein besonders langer und ausgeprägter Deltopektoralkamm ist ein Synapomorphiemerkmal der Dinosaurier , d. h. ein Merkmal, das diese Gruppe von anderen Gruppen unterscheidet. Bei Dinosauriern misst der Kamm 30–40 % der Oberarmknochenlänge. Er diente als Ansatzfläche für die Schulter- und Brustmuskulatur (Musculus deltoideus bzw. Musculus pectoralis), die bei Kontraktion den Arm zum Körper zog. [ 25 ] : 14
- Ziffern
- Die Finger und Zehen bilden den distalen Teil des Autopodiums und schließen sich an den Mittelhandknochen (Metacarpus) der Hand und den Mittelfußknochen (Metatarsus) des Fußes an. Sie werden mit den römischen Ziffern I–V bezeichnet, wobei I den innersten und V den äußersten Finger oder Zeh kennzeichnet. Jeder Finger oder Zeh besteht aus einer oder mehreren Phalangen (Finger- und Zehenknochen). [ 1 ] : 145
- Dolichoiliak
- Dolichoiliac bezeichnet eine von zwei Hauptkonfigurationen des Hüftbeins bei frühen Saurischiern. Der dolichoiliace Typ zeichnet sich durch große vordere und hintere Ausläufer des Darmbeins sowie verlängerte und schmale Schambeine und Sitzbeine aus. Im Gegensatz dazu ist der brachyiliace Typ durch kurze Darmbeinausläufer und robustere Schambeine und Sitzbeine gekennzeichnet. Der brachyiliace Typ ist typisch für basale Sauropodomorpha der Trias, während der dolichoiliace Typ für Theropoden charakteristisch ist. Beide Begriffe wurden 1964 von Edwin Colbert eingeführt. [ 50 ] [ 51 ]
- Rücken
- Die Rückenwirbel, auch als Dorsalwirbel oder Rückenwirbel bezeichnet, sind die Wirbel der Rückenregion zwischen den Halswirbeln und den Kreuzbeinwirbeln . Die Nomina Anatomica Avium (NAA) verwendet stattdessen den Begriff Brustwirbel . Bei Säugetieren bezieht sich der Begriff Brustwirbel ausschließlich auf die rippentragenden Wirbel des Brustkorbs, während die rippenlosen Wirbel des unteren Rückens als Lendenwirbel bezeichnet werden . Diese Unterteilung der Rückenwirbelsäule ist bei Dinosauriern nicht anwendbar, und der NAA-Begriff „Brustwirbel“ bezieht sich auf die gesamte Rückenwirbelsäule. [ 1 ] : 143 Die meisten Dinosaurier besaßen etwa 15 Rückenwirbel. Im Vergleich zu den Halswirbeln sind die Rückenwirbel kürzer, ihre Dornfortsätze länger und ihre Querfortsätze robuster und nach außen gerichtet. [ 25 ] : 45

E
- Ectopterygoid
- Das Ectopterygoid ist ein kleinerer Knochen des Gaumens . Er ist paarig angelegt , dermalen Ursprungs und verbindet sich seitlich mit dem Jochbein und medial mit dem Pterygoid . [ 25 ] : 39–40
- Endocast
- Endocasts sind Abdrücke (Formen) von neuralen Hohlräumen, darunter der Hirnschädel und der Wirbelkanal . Sie können somit äußere Merkmale der in diesen Hohlräumen vorhandenen neuronalen Strukturen, insbesondere des Gehirns, dokumentieren. Endocasts sind jedoch keine exakten Kopien neuronaler Strukturen, da neurale Hohlräume typischerweise zusätzliches Gewebe enthalten, das die Morphologie der neuronalen Struktur verdecken kann. Ein natürlicher Endocast entsteht, wenn ein neuraler Hohlraum mit Sediment aufgefüllt wird, während künstliche Endocasts mithilfe von Abformmaterial hergestellt werden können. [ 35 ] : 192
- Epijugal
- Das Epijugale ist eine für Ceratopsier einzigartige dermale Verknöcherung. Es bedeckt das untere Ende des nach unten gerichteten, dreieckigen Fortsatzes des Jochbeins, der typisch für diese Gruppe ist. Bei Arrhinoceratops und Pentaceratops bildet das Epijugale ein ausgeprägtes Jochbeinhorn. Der Knochen findet sich auch bei Yamaceratops und allen höher entwickelten Ceratopsiern. [ 52 ] : 500 [ 53 ] : 538
- Epoccipitale
- Epoccipitalia sind Hautknochen, die die Ränder des Nackenschildes von Ceratopsiern säumen. Bei Jungtieren sind sie eigenständige Knochen, bei ausgewachsenen Tieren verschmelzen sie je nach Lage entweder mit dem Schuppenbein oder dem Scheitelbein . Die Epoccipitalia des Schuppenbeins werden auch als Episquamosalia , die des Scheitelbeins als Epiparietalia bezeichnet . Einige Autoren sprachen sich gegen die Bezeichnung Epoccipitalia aus, da diese Knochen keine Verbindung zur Hinterhauptsregion des Schädels aufweisen, und bevorzugten stattdessen die Begriffe Episquamosalia und Epiparietalia. Epoccipitalia waren rein ornamentaler und nicht funktionaler Natur und wiesen eine große Formvielfalt auf; bei Centrosaurinen bildeten sie stark vergrößerte Stacheln. [ 54 ] [ 52 ] : 502 [ 53 ] : 540
- Epipophyse
- Epipophysen sind knöcherne Fortsätze der Halswirbel, die bei Dinosauriern und einigen fossilen basalen Vögeln vorkommen. Diese paarigen Fortsätze sitzen oberhalb der Postzygapophysen am hinteren Ende des Wirbelbogens . Ihre Morphologie ist variabel und reicht von kleinen, einfachen, hügelartigen Erhebungen bis hin zu großen, komplexen, flügelartigen Auswüchsen. Epipophysen boten große Ansatzflächen für verschiedene Nackenmuskeln; große Epipophysen deuten daher auf eine kräftige Nackenmuskulatur hin. Das Vorhandensein von Epipophysen gilt als Synapomorphie der Dinosaurier. [ 25 ] : 14
- Epiossifikationen
- Epiossifikationen (auch Epi-Ossifikationen geschrieben) sind akzessorische Verknöcherungen, die an den Schädeln von Ceratopsiern anhaften . [ 54 ] Dazu gehören:
- Der Rostralknochen , ein zusätzlicher Knochen vor dem Prämaxillare des Oberkiefers.
- Das Epinasale , welches den Hornkern des Nasenhorns bildet.
- Die Epijugalia , ein Knochenpaar, das oft markante Wangenhörner bildet.
- Die Epiparietale und Episquamosale sind kleine Knochenvorsprünge, die die Ränder des Nackenschildes säumen (die Scheitelbeine bzw. Schuppenbeine). Diese Knochenvorsprünge werden auch zusammenfassend als Epoccipitale bezeichnet . [ 54 ]
- Epipterygoid
- Das Epipterygoid ist ein paariger endochondraler Knochen im hinteren Gaumenbereich . Als kleiner, plattenartiger Knochen verbindet er sich mit dem Pterygoid und dem Hirnschädel . [ 25 ] : 39–40
- Exoccipitale
- Das Exoccipitale ist ein paariger Knochen, der zusammen mit dem unpaarigen Supraoccipitale und Basioccipitale das Hinterhauptbein am Hinterkopf bildet . Bei ausgewachsenen Dinosauriern sind die Exoccipitale mit dem Opisthoticum verschmolzen und bilden eine Struktur, die auch als Exoccipital-Opisthoticum bezeichnet wird. Weiter unten sind die Exoccipitale mit dem Basioccipitale verschmolzen . [ 20 ] [ 25 ] : 38
- äußere Nasenlöcher
- Die äußeren Nasenöffnungen (Singular: äußere Nasenöffnung , auch: knöcherne Nasenlöcher [ 55 ] ) sind ein Paar äußerer Schädelöffnungen für die Nasenlöcher. Sie sind wichtige Orientierungspunkte am Schädel und befinden sich ursprünglich vor dem Antorbitalfenster nahe der Schnauzenspitze. Die äußeren Nasenöffnungen werden manchmal fälschlicherweise als Nasenlöcher bezeichnet; diese Bezeichnung ist jedoch nicht empfehlenswert, da der Begriff Nasenloch der fleischigen Öffnung des Nasengangs (auch fleischiges Nasenloch [ 55 ] genannt ) vorbehalten ist, die in manchen Fällen weit außerhalb der äußeren Nasenöffnungen liegen kann. [ 1 ] : 139 Die Öffnungen des Nasengangs in die Mundhöhle werden hingegen als innere Nasenöffnungen oder Choanen bezeichnet. [ 25 ] : 39 Der oft vergrößerte vorderste Teil der Nasenhöhle, direkt unterhalb der äußeren Nasenöffnungen, wird als Nasenvorhof bezeichnet . [ 55 ]
F
- Oberschenkelknochen
- Der Femur (Plural: Femora ) oder Oberschenkelknochen ist das proximale Element der Hintergliedmaße. Sein proximaler Kopf weist einen großen Femurkopf auf , der medial gerichtet ist und einen 90°-Winkel zum Schaft bildet; der Kopf dringt in die Hüftgelenkpfanne ein und bildet so das Hüftgelenk. [ 25 ] : 15 Der obere Abschnitt des Femurs weist mehrere Trochanter (Fortsätze für Muskelansätze) auf:
- Der Trochanter minor (auch: Trochanter anterior ) befindet sich an der Vorderseite des Femurs unmittelbar unterhalb des Kopfes. Als einzigartiges Merkmal der Dinosaurier und ihrer unmittelbaren Außengruppen verankerte er den Musculus iliofemoralis, der die Abduktion (Spreizung) der Beine ermöglichte. Viele frühe Dinosaurier besitzen zusätzlich einen knöchernen Vorsprung oder eine Muskelnarbe, die als Trochanterleiste bezeichnet wird und sich von der Basis des Trochanter anterior zum posterolateralen Rand des Femurs erstreckt. Der Trochanter minor der Dinosaurier ist nicht homolog zum Trochanter minor der Säugetiere. [ 25 ] : 19 [ 4 ] : 179
- Der Trochanter major (auch: Trochanter dorsolateralis ) ist eine Leiste oder Vorwölbung an der lateralen Fläche des Femurs, gegenüber dem Femurkopf und mit diesem verbunden. [ 30 ] : 47 Er dient als Ansatzpunkt für den Musculus puboischiofemoralis und den Musculus ischiotrochantericus, welche das Hinterbein nach vorne und innen ziehen. [ 4 ] : 181
- Der vierte Trochanter ist ein ausgedehnter, nach hinten gerichteter Knochenvorsprung an der Rückseite des Oberschenkelknochens. Bei Dinosauriern ist der vierte Trochanter deutlich asymmetrisch, wobei der proximale Teil stärker ausgeprägt ist als der distale. Dies ist ein gemeinsames Merkmal der Dinosaurier (Synapomorphie) . Am vierten Trochanter setzte der Musculus caudofemoralis longus an, der wichtigste Muskel für die Fortbewegung. Er zieht den Oberschenkelknochen bei Kontraktion nach hinten und sorgt so für den Vortrieb. [ 25 ] : 16 [ 4 ] : 181–182
- Wadenbein
- Das Wadenbein (Fibula , Plural: Fibulae ) ist ein langer Knochen , der seitlich des Schienbeins ( Tibia) liegt ; zusammen bilden die beiden Knochen den Unterschenkel. Es ist im Allgemeinen schlanker als das Schienbein und besonders dünn bei abgeleiteten Theropoden und Vögeln. [ 1 ] : 147 [ 25 ] : 53
- Foramen
- Ein Foramen (Plural: Foramina ) ist eine Öffnung in einem Knochen für den Durchtritt von Blutgefäßen, Nerven, Muskeln und ähnlichen Strukturen. [ 26 ] Nährstoffforamina sind Öffnungen, durch die Blutgefäße in das Innere von Knochen gelangen und diese mit Nährstoffen versorgen. [ 25 ] : 224
- frontal
- Das Stirnbein ist ein paariger Hautknochen des Schädeldachs , der zwischen dem Nasenbein vorne und dem Scheitelbein hinten liegt. Stirnbeine sind typischerweise ausgedehnt und bilden den oberen Rand der Augenhöhle sowie große Teile des Schädeldachs . [ 25 ] : 38
- Fontanellen
- Fontanellen sind Öffnungen zwischen Knochen – typischerweise Schädelknochen –, die vorwiegend im Embryo vorhanden sind, sich aber im Laufe des Wachstums oft wieder schließen. [ 56 ] : 25 Ceratopsier weisen Öffnungen zwischen dem Stirn- und Scheitelbein auf, die als Stirnfontanellen bezeichnet werden und die Öffnungen der Schädelhöhle darstellen – ein Merkmal, das für diese Gruppe einzigartig ist. [ 52 ]
- Fossa
- Fossa (Plural: Fossae ) ist ein allgemeiner Begriff für eine Vertiefung oder Furche in Knochenoberflächen. [ 26 ]
- Gabelung
- Die Furcula (Plural: Furculae ), auch Gabelbein genannt, ist ein unpaarer, V-förmiger Knochen im Brustbereich, der das linke und rechte Schulterblatt verbindet . Sie kommt bei Vögeln und einigen Dinosauriern vor. Es ist umstritten, ob es sich um ein Interclaviculare handelt oder ob es durch die Verschmelzung der beiden Schlüsselbeine entstanden ist . [ 57 ] [ 25 ] : 49

G

- Gastralia
- Gastralia (Singular: Gastralium ) sind Hautknochen, die in der Dermis des Abdomens zwischen Brustbein und Schambein liegen . Sie sind ursprünglich bei Dinosauriern vorhanden und finden sich bei basalen Sauropodomorpha und Theropoden , sind aber bei Sauropoden , Ornithischiern und Neornithinen (den heutigen Vögeln) unabhängig voneinander verloren gegangen . Sofern vorhanden, sind sie in 8 bis 21 Reihen angeordnet, die jeweils aus vier Elementen bestehen: Ein rechtes und ein linkes mediales Gastralium artikulieren zickzackförmig in der Körpermittellinie, während ein laterales Gastralium mit dem lateralen Ende jedes medialen Gastraliums artikuliert. Die erste und letzte Reihe können zu einer einzigen, bogenförmigen Struktur, dem sogenannten V-förmigen Gastralium , verschmolzen sein . Die Bezeichnung „Abdominalrippe“ , die gelegentlich für Gastralia und andere abdominale Strukturen verwendet wurde, ist mehrdeutig und wird daher nicht empfohlen. [ 58 ]
- Glenoid
- Die Gelenkfläche (Glenoid) wird vom Rabenschnabelfortsatz (Coracoid) und dem Schulterblatt (Scapula) gebildet und nimmt den Oberarmkopf ( Humeruskopf) auf , wodurch das Schultergelenk entsteht . Sie ist eine konkave, kreisförmige Struktur mit einem knöchernen Rand und befindet sich an der Rückseite des Rabenschnabelfortsatzes und der posterodistalen Fläche des Schulterblatts. [ 3 ] [ 1 ] : 144
H
- Ferse
- Die Ferse ist das hintere Ende des Fußes . Der Begriff bezeichnet auch das hintere Ende eines Fußabdrucks, wobei er in diesem Fall nicht unbedingt mit der anatomischen Ferse übereinstimmt, die bei vielen Dinosauriern über dem Boden lag. [ 15 ] : 47
- Horn
- Hörner sind Auswüchse von Schädelknochen, die von einer Keratinscheide umgeben sind . Der knöcherne Kern des Horns wird als Hornkern bezeichnet . Da die Keratinscheide in Fossilien im Allgemeinen nicht erhalten bleibt, wurde ihr Vorhandensein bei einigen Dinosauriern durch Vergleiche mit heutigen Rindern abgeleitet . Andere Schädelauswüchse oder -wucherungen können von Hautstrukturen bedeckt sein, wie beispielsweise für den Nasenhöcker des Pachyrhinosaurus und die Kuppeln der Pachycephalosaurier vorgeschlagen wurde . [ 59 ]
- Oberarmknochen
- Der Oberarmknochen (Humerus, Plural: Humeri ) ist der einzige Oberarmknochen und in der Regel der größte Knochen der Vordergliedmaße. [ 1 ] : 145 [ 25 ] : 49
- Hyposphen-Hypantrum-Gelenk
- Hyposphen-Hypantrum-Gelenke sind akzessorische Gelenke, die benachbarte Wirbel verbinden. Sie bestehen aus einem Fortsatz an der Rückseite eines Wirbels, dem Hyposphen , der in eine Vertiefung an der Vorderseite des nächsten Wirbels, dem Hypantrum , passt . Hyposphen-Hypantrum-Gelenke kommen in den Brustwirbeln und gelegentlich auch in den hintersten Halswirbeln und den vordersten Schwanzwirbeln vor . [ 60 ]
- Zungenbein
- Das Zungenbein ist ein Knochen im Kehlkopfbereich unterhalb und hinter dem Schädel, der die Zunge stützte. Diese Knochen sind bei Dinosauriern selten, da sie nicht mit dem übrigen Skelett verbunden sind und daher leicht verloren gehen. [ 4 ] : 155
- Hypex
- Der Hypex (Plural: Hypexe ) ist der Scheitelpunkt des Winkels zwischen zwei Zehen oder, anders ausgedrückt, der proximalste Punkt des Zwischenraums zwischen zwei Zehen. Der Hypex ist nur bei Vorhandensein von Weichgewebe erkennbar und wird daher hauptsächlich bei der Untersuchung fossiler Fußabdrücke herangezogen . [ 15 ] : 46–47

ICH
- Darmbein
- Das Darmbein (Plural: Darmbeine ) ist der obere und größte Knochen des Hüftgelenks. Es besteht aus einem Hauptkörper, dem Darmbeinblatt , dessen mediale Seite an den Kreuzbeinwirbeln befestigt ist . Ventral bildet es einen verdickten, gebogenen Knochenvorsprung über der Hüftgelenkpfanne , den Crista supraacetabularis ( auch: Crista supraacetabularis genannt), der die auf den Oberschenkelknochen der Hintergliedmaße wirkenden Kräfte verteilt. Der vordere Fortsatz des Darmbeinblatts wird als Processus acetabularis (auch: Ala preacetabularis ) und der hintere als Processus postacetabularis (auch: Ala postacetabularis ) bezeichnet; [ 61 ] beide Fortsätze ermöglichen die optimale Positionierung der Ursprünge der Gliedmaßenmuskulatur. Vor dem Acetabulum erstreckt sich ein kräftiger Fortsatz, der Schambeinstiel (Pedunculus pubicus ), ventral zum Schambein (Os pubis), während sich hinter dem Acetabulum der Sitzbeinstiel (Pedunculus ischiadicus) zum Sitzbein (Os ischii) erstreckt. [ 62 ] : 33 Unmittelbar hinter dem Acetabulum, am Sitzbeinstiel, liegt der Trochanter antitrochanter , eine Gelenkfläche, die sich ventral auf das Sitzbein erstreckt und mit dem Trochanter major des Femurs artikuliert. [ 25 ] : 19 [ 63 ] : 726 Die ventrale Fläche des Processus postacetabuli wies eine Vertiefung auf , die als Fossa brevis bezeichnet wird und den Ursprung des Musculus caudofemoralis brevis darstellt. [ 62 ] : 21 Seitlich an die Fossa brevis schließt sich der Shelf brevis an, ein Knochenkamm, der entlang des ventrolateralen Randes des Darmbeins zwischen dem Pedunculus ischiadicus und dem hinteren Ende des Knochens verläuft. [ 63 ] : 733–734
- Sitzbein
- Das Sitzbein (Plural: Ischia ) ist einer der drei Knochen des Beckens und liegt unterhalb des Darmbeins und hinter dem Schambein . Es ist ein stabförmiges Element mit einer verbreiterten Leiste an seinem proximalen Ende, der Lamina obturatoria , die mit dem Darmbein und dem Schambein in Kontakt steht (eine entsprechende Lamina obturatoria findet sich auch am Schambein). Wie das Schambein sind das linke und rechte Sitzbein über ihre gesamte Länge miteinander verschmolzen. Die verbreiterte Symphyse des kaudoventral gerichteten Schafts wird als Sitzbeinschürze bezeichnet . [ 64 ] : 139 Das distale Ende des Sitzbeins ist oft zu einem Sitzbeinschuh verbreitert . Die ventrale Fläche des Schafts weist einen Längskamm, den Processus obturatorius, auf . Während der Processus obturatorius bei basalen Taxa proximal liegt, befindet er sich bei Coelurosauriern am distalen Ende des Sitzbeins. [ 64 ] : 152
- infratemporale Fenster
- Das Fenestra infratemporalis (auch: laterales temporales Fenestra ) ist eine große Öffnung an der Seite des Schädels hinter der Orbita . [ 1 ] : 140 Es wird im oberen vorderen Bereich vom Postorbitale , im oberen hinteren Bereich vom Squamosum , im unteren hinteren Bereich vom Quadratojugale und im unteren vorderen Bereich vom Jugale begrenzt . [ 25 ] : 37
- Intercentrum
- Intercentren sind Teile der Wirbelsäule, die sich zwischen den Wirbelkörpern im Halsbereich einiger Dinosaurier befinden. Ein Intercentrum findet sich häufig in Verbindung mit dem ersten Halswirbel, kann aber auch ununterscheidbar mit diesem verschmelzen. [ 65 ]
- interclavic
- Das Interclavicula ist ein einzelner, stabförmiger Hautknochen, der sich zwischen den Schlüsselbeinen im Schultergürtel befindet. [ 42 ] Als ursprüngliches Merkmal der Vierfüßer gilt das Interclavicula bei Dinosauriern allgemein als nicht vorhanden, da es bei den Dinosauriformes verloren gegangen ist. [ 66 ] Die Existenz von Interclavicula bei verschiedenen Dinosauriergruppen wurde jedoch wiederholt vorgeschlagen. [ 42 ]
- Interdentalplatten
- Interdentalplatten (auch: transversale Septen , rugosae [ 30 ] ) sind knöcherne Platten am lingualen (inneren) Rand der Zahnreihe, die vom Alveolarrand des Kiefers aufsteigen und den Raum zwischen den Zähnen ausfüllen. [ 67 ] [ 68 ]

J
- Jugal
- Das Jochbein (Os jugale) ist ein Schädelknochen, der den unteren Rand der Augenhöhle bildet und vorn mit dem Oberkiefer (Maxilla) und hinten mit dem Quadratojugale verbunden ist. Sein hinteres Ende ist an der Gelenkfläche mit dem Quadratojugale gegabelt, was als Synapomorphie der Dinosaurier gilt . [ 1 ] : 140 [ 25 ] : 12
L
- Tränenbein
- Das Tränenbein ist ein strebenartiger Knochen im Schädel, der die Antorbitalöffnung von der Augenhöhle trennt . Es ist von einem Kanal für den Tränenkanal durchbohrt , der die Augenhöhle mit der Antorbitalöffnung verbindet. Bei einigen Arten weist das obere Ende des Tränenbeins einen dreieckigen Kamm oder ein Horn auf, das sich über das Schädeldach erhebt . [ 25 ] : 37 [ 17 ] : 62
- Lamellen
- Wirbelbögen (Singular: Lamina ) oder Knochensepten (Singular: Osseus septum ) sind Leisten an den Wirbeln, die pneumatische Kammern unterteilen. Sie beginnen und enden je nach Bezeichnung an verschiedenen Fortsätzen und Regionen des Wirbels und werden nach ihren Anfangs- und Endpunkten benannt. Die Bögen werden anhand ihres Endpunktes in vier willkürliche Kategorien eingeteilt: Diapophysenbögen , Parapophysenbögen , Zygapophysenbögen und Spinalbögen . Sie können auch in Sublaminae unterteilt werden, wenn sie sich entlang ihrer Länge spalten, oder in zusammengesetzte Laminae, wenn mehrere Bögen einen Leisten bilden. Beispielhafte Bögen: [ 69 ]
- Spinoprezygapophysenlamina (SPRL) : Lamina, die sich vom neuralen Dornfortsatz ( Spino- ) bis zur Präzygapophyse ( -Präzygapophyse ) erstreckt.
- Präspinale Lamina (PRSL) : Lamina, die sich entlang der vorderen Oberfläche ( prä- ) des neuralen Dornfortsatzes ( -spinal ) erstreckt.
- Posteriore centrodiapophysäre Lamina (PCDL) : Lamina, die sich vom hinteren Ende ( Posterior ) des Centrums ( centro- ) bis zur Diapophyse ( -diapophyseal ) erstreckt.
- Intrapostzygapophysäre Lamina (TPOL) : Lamina, die sich zwischen ( intra- ) den Postzygapophysen erstreckt ( -postzygapophysär ).
- Präzygoparapophysäre Lamina (PRPL) : Lamina, die sich von der Präzygapophyse ( Prezygo- ) zur Parapophyse ( -parapophysär ) erstreckt.
- Laterosphenoid
- Das Laterosphenoid (auch Pleurosphenoid ) ist ein flügelartiger Knochen des vorderen Teils der lateralen Hirnschädelwand . Es ist von außen nicht sichtbar, liegt vor dem Prooticum und berührt darüber das Parietale , Frontale und Postorbitale . Das Laterosphenoid als eigenständige Verknöcherung ist einzigartig für Archosauriformes; bei anderen Reptilien verknöchert dieser Teil des neurokranialen Knorpels nicht. [ 25 ] : 39 [ 17 ] : 83 [ 20 ] [ 26 ]
- Ligamentum elasticum interlaminare
- Das Ligamentum elasticum interlaminare (manchmal auch Ligamentum elasticum genannt ) ist ein Band aus unpaaren Faserbündeln, das die Dornfortsätze benachbarter Wirbel bei Dinosauriern und Vögeln verbindet . [ 46 ] Dieses Band überspannt Hals und Schwanz und erhält bei modernen Vögeln die konkave Halsform aufrecht. [ 46 ] [ 70 ] Man vermutet, dass die Ablösung dieses Bandes während des Verwesungsprozesses zu den charakteristischen Todespositionen führt , bei denen die Wirbelsäule stark gekrümmt ist. [ 46 ]
- Glied
- Die Gliedmaßen bilden zusammen mit den Schulter- und Beckengürteln einen Teil des Extremitätenskeletts. Vorder- und Hintergliedmaßen sind im Aufbau sehr ähnlich und in drei Hauptabschnitte unterteilt. [ 1 ] Die obere Gliedmaße, das Stylopodium , besteht aus dem Oberarmknochen (Humerus) (Vordergliedmaße) bzw. dem Oberschenkelknochen (Femur) (Hintergliedmaße), während die untere Gliedmaße, das Zeugopodium , aus Elle und Speiche (Vordergliedmaße) bzw. Schienbein und Wadenbein (Hintergliedmaße) besteht. Der distale Abschnitt ist das Autopodium , das die Hände oder Füße umfasst. Das Autopodium selbst ist in drei Segmente unterteilt: Die Karpalknochen (Vordergliedmaße) bzw. Tarsalknochen (Hintergliedmaße) bilden das Basipodium ; die Mittelhandknochen (Vordergliedmaße) bzw. Mittelfußknochen (Hintergliedmaße) das Metapodium ; und die Finger- bzw. Zehenglieder das Acropodium . [ 71 ] : 18 Günter Wagner und Chi-Hua Chiu schlugen 2001 eine abweichende Terminologie vor. Hierbei wird das Autopodium nur in zwei Abschnitte unterteilt: das Mesopodium , das die knöchernen Elemente (Carpus oder Tarsus) umfasst, und das Acropodium, das nach dieser Definition alle langen Knochen des Autopodiums einschließt, einschließlich der Metacarpalia (oder Metatarsalia) und der Phalangen. [ 72 ]

M
- Oberkiefer
- Der Oberkieferknochen ( Maxilla ) ist der hintere und in der Regel größte zahntragende Knochen des Oberkiefers. Er ist vorn mit dem Zwischenkieferknochen (Prämaxilla) verbunden und trägt häufig zum Rand der äußeren Nasenöffnung bei. Über weite Strecken seiner Länge bildet der Oberkieferknochen die ventrale Begrenzung des Antorbitalfensters sowie die diese Öffnung umgebende Vertiefung, die Antorbitalgrube , die tief im Oberkieferknochen liegt. Bei abgeleiteten Theropoden kann der Oberkieferknochen zwei kleinere, zusätzliche Öffnungen aufweisen, das Promaxillarfenster und das Maxillarfenster. An seinem hinteren Ende artikuliert der Oberkieferknochen mit dem Jochbein und dem Tränenbein. [ 25 ] : 37 [ 1 ] : 139–140
- Unterkiefer
- Der Unterkiefer ( Mandibula ) ist der Teil des Schädels unterhalb des Schädeldachs ( Cranium ). Jede Hälfte des Unterkiefers, auch Mandibularis (Plural: Mandibularisäste ; vom lateinischen „Ast“) oder Hemimandibel genannt , [ 73 ] : 157 ist am Hinterkopf mit dem Quadratbein ( Os quadratum) verbunden und bildet so das Kiefergelenk. Vorne sind die beiden Mandibularisäste miteinander verbunden; diese Verbindungsstelle wird als Mandibularsymphyse bezeichnet . Der Unterkiefer besteht sowohl aus enchondralen Knochen, die aus dem Meckelschen Knorpel verknöcherten , als auch aus Hautknochen . [ 5 ] Bei Dinosauriern trägt nur der Unterkiefer (Dentale) Zähne . [ 25 ] : 40
- Mandibularfenster
- Die äußere Unterkieferfensterung ist eine Öffnung im Unterkiefer zwischen dem Dentale , dem Surangulare und dem Angulare . Sie ist charakteristisch für Archosaurier und kommt in den meisten Dinosauriergruppen vor. [ 25 ] : 40
- Hand
- Die Manus (Plural: Manus), oder Hand, besteht aus den Karpalia , Metakarpalia und Fingergliedern . [ 1 ] : 145 Der erste Finger ist der Pollex ( oder Daumen). [ 74 ]
- Meckelsche Rinne
- Die Meckelsche Furche ist ein Längskanal im Unterkiefer. Sie enthielt die nicht verknöcherten Überreste des Meckelschen Knorpels (auch: Meckelscher Knorpel ), aus dem die enchondralen Elemente des Unterkiefers verknöcherten. Der vordere Teil der Meckelschen Furche liegt an der medialen Seite des Dentale nahe dem ventralen Rand des Knochens frei, während der hintere Teil beidseitig von Knochen umschlossen ist und sich dorsal durch die Adduktorengrube öffnet . [ 5 ] [ 16 ] : 44
- Mesethmoid
- Das Mesethmoid ist ein Knochen im vorderen Bereich des Hirnschädels . Es liegt unterhalb der Stirnbeine und vor dem Keilbein und artikuliert vorn mit dem Septum interorbitale . Das Mesethmoid besteht aus einer horizontalen dorsalen Platte, die direkt unterhalb der Stirnbeine liegt und von der sich ein Septum medianum (eine dünne Knochenwand in der Schädelmittellinie) ventral erstreckt, um Kontakt zum Basisphenoid herzustellen . Wie das Keilbein und das Orbitosphenoid ist auch das Mesethmoid bei vielen Arten nicht verknöchert und daher selten erhalten; bei Vögeln kommt es jedoch häufig vor. [ 75 ] [ 20 ] [ 25 ] : 39
- Mittelhandknochen
- Die Mittelhandknochen sind die langen Knochen der Hand, die die Handfläche bilden. Zusammen werden sie als Metakarpus bezeichnet und liegen zwischen den Handwurzelknochen und den Fingergliedern. Sie werden mit den römischen Ziffern I–V bezeichnet, wobei der erste Mittelhandknochen (Metakarpus I) der innerste (und mit dem Daumen verbunden) und der fünfte Mittelhandknochen (Metakarpus V) der äußerste ist. [ 1 ] : 145
- Mittelfuß-
- Die Mittelfußknochen sind die langen Knochen des Fußes. Zusammen als Metatarsus (Plural: Metatarsi ) bezeichnet, verbinden sie die Fußwurzelknochen mit den Zehen. Wie die Mittelhandknochen werden auch die Mittelfußknochen mit den römischen Ziffern I–V bezeichnet, wobei Mittelfußknochen I der innerste (und mit Daumen und Zehe verbunden) und Mittelfußknochen V der äußerste ist. [ 1 ] : 147–148
- myorhabdoi
- Myorhabdoi (auch: myorhabdoidale Ossifikationen) sind Knochen im Schwanz von Pachycephalosauriern . Mehrere Myorhabdoi bilden eine netzartige Struktur, die die Wirbelsäule umgibt (aber nicht mit ihr verbunden ist) und mitunter als Schwanzkorb bezeichnet wird . Myorhabdoi entstehen innerhalb der Myosepten (Bindegewebe, das Muskelgewebeblöcke, die Myomere , trennt ) und stellen verknöcherte Myoseptalsehnen dar . Daher bilden sich Myorhabdoi in der Peripherie des Muskelgewebes unterhalb der Dermis (und nicht innerhalb der Dermis, wie es bei Osteodermen der Fall ist ). Sie unterscheiden sich auch von verknöcherten Sehnen , die den Schwanz anderer ornithischischer Dinosaurier versteiften, obwohl sie ähnliche Funktionen gehabt haben könnten. Myorhabdoi sind hauptsächlich von Teleostiern bekannt ; Pachycephalosaurier sind die einzigen bekannten Tetrapoden, bei denen diese Strukturen verknöchern. Ein artikulierter Schwanzkorb ist von Homalocephale bekannt . [ 76 ]

N
- Nasal
- Das paarige Nasenbein ist der vorderste Knochen des Schädeldachs und der größte Knochen der Schnauzenoberseite. Es liegt zwischen dem Zwischenkieferbein vorn und dem Stirnbein hinten. [ 25 ] : 38 [ 1 ] : 141
- Neuralbogen
- Der Neuralbogen ist der bogenförmige obere Abschnitt eines Wirbels , der über dem Wirbelkanal und dem Wirbelkörper liegt . Bei ausgewachsenen Dinosauriern verschmelzen Wirbelkörper und Neuralbogen typischerweise miteinander und verschließen so die Neurozentralnaht , die bei Jungtieren zwischen den beiden Abschnitten verläuft. Der Neuralbogen kann verschiedene Knochenfortsätze tragen, wie beispielsweise Dornfortsätze , Epipophysen , Querfortsätze (die mit den Rippen verbunden sind ) und Zygapophysen (die mit benachbarten Wirbeln artikulieren). Dinosaurier besitzen komplexe Neuralbögen, die oft mit einem System aus Lamellen , Fossae und/oder Pleurocoelen verziert sind , welche die entlang der Wirbel verlaufenden Luftsäcke bilden.
- Dornfortsatz
- Dornfortsätze (auch: Dornfortsätze ) sind Fortsätze, die von der Oberseite des Wirbelbogens nach oben ragen . Sie sind einzeln angeordnet und bilden eine Reihe entlang der Mittellinie der Wirbelsäule, wobei ihre Spitzen in der Regel die höchsten Punkte der einzelnen Wirbel darstellen. Dornfortsätze dienen als Ansatzflächen für Muskeln und Bänder, die auf der Wirbelsäule verlaufen. [ 77 ] : 8 Bei manchen Arten können sie stark verlängert sein und ein Segel bilden oder tief gegabelt sein, sodass ihre oberen Teile eine doppelte Reihe bilden. [ 78 ] [ 79 ]
- Neurozentrale Naht
- Die Neurozentralnaht ist die Trennlinie zwischen dem Wirbelkörper und dem Neuralbogen jedes Wirbels . Bei jungen Dinosauriern sind die Neurozentralnähte typischerweise „offen“ (nicht verschmolzen), während sie sich mit Erreichen des Erwachsenenalters „schließen“ (verschmelzen).
- Nackenkamm
- Der querverlaufende Nackenkamm ist ein Knochenkamm am Hinterkopf vieler Theropoden. Er verläuft quer zur Schädelmittellinie und bildet die Grenze zwischen Schädeldach und Hinterhauptregion. Hauptsächlich wird er vom Hinterrand der Scheitelbeine gebildet, wobei auch die Schuppenbeine beteiligt sind . Der Kamm dient als Ansatzstelle für die Nackenmuskulatur, und seine Rückseite kann Vertiefungen für den Ansatz des Nackenbandes aufweisen. Der querverlaufende Nackenkamm ist nicht mit dem Sagittalkamm zu verwechseln , einem mittigen Knochenkamm am Supraoccipitale . [ 80 ] : 82 [ 81 ] : 117 [ 82 ] : 167
- Nackenband
- Das Nackenband ist ein elastisches Band , das vom Hinterkopf bis zum hinteren Halsbereich oberhalb der Wirbelsäule verläuft. [ 83 ] : 354
O
- Hinterkopf
- Das Hinterhauptbein ist ein Bereich an der Rückseite des Schädels. [ 26 ] Es besteht aus vier Knochen, die das Foramen magnum , den Durchgang des Rückenmarks in die Hirnhöhle, umgeben: dem Supraoccipitale oben, den paarigen Exoccipitale seitlich und dem Basioccipitale unten. Direkt unterhalb des Foramen magnum befindet sich ein kugelförmiger, knopfartiger Fortsatz, der Condylus occipitalis , der mit dem Atlas, dem ersten Halswirbel, artikuliert. Der Condylus occipitalis wird hauptsächlich vom Basioccipitale gebildet, mit geringeren Anteilen der Exoccipitale an den oberen Rändern. [ 20 ] [ 25 ] : 38
- opisthotisch
- Das Opisthoticum ist ein paariger Knochen im hinteren Bereich des Hirnschädels . Bei ausgewachsenen Dinosauriern ist es stets mit den paarigen Exoccipitalia verschmolzen und bildet so die Exoccipital-Opisthotika. Zusammen mit den Exoccipitalia bilden die Opisthotika ein Paar großer, flügelartiger Fortsätze, die sich vom Hirnschädel nach hinten und zur Seite erstrecken: die Paroccipitalfortsätze . Diese Fortsätze stehen in Kontakt mit dem Parietale , dem Squamosum und dem Quadratum . [ 20 ] [ 25 ] : 38
- Orbitosphenoid
- Das Orbitosphenoid (veraltet: Präsphenoid ) ist ein Knochen des vorderen Hirnschädels , der unter dem Vorderhirn liegt. Als paariger Knochen umschließt seine linke und rechte Hälfte den Kanal für den zweiten Hirnnerv (Nervus opticus). Bei Dinosauriern verknöchert es nur gelegentlich. [ 75 ] [ 20 ] [ 25 ] : 39
- Osteoderm
- Osteoderme sind Knochen, die sich in der Dermis der Haut bilden. Bei manchen Arten, insbesondere bei den gepanzerten Ankylosauriern, können sie platten- oder stachelartige Strukturen ausbilden. Kleine und unregelmäßige Osteoderme mit einem Durchmesser von weniger als 1 cm (oder 5–15 mm [ 84 ] ) werden als Ossikel bezeichnet . [ 85 ] [ 86 ]
- verknöcherte Sehnen
- Verknöcherte Sehnen sind knöcherne Stäbe, die die Wirbelsäule stützen und versteifen. [ 1 ] : 148 Ihr Vorkommen an der Oberseite der Wirbel gilt als Synapomorphie der Ornithischier . [ 87 ]
- Ohrkapsel
- Die Otic-Kapsel ist der verdickte seitliche Bereich des Hirnschädels , der das Innenohr enthält. Sie besteht aus zwei Knochen, dem vorderen Prooticum und dem hinteren Opisthoticum . Zwischen den beiden Knochen befindet sich die Fenestra ovalis , eine große Öffnung, die den Steigbügel aufnimmt . [ 17 ]

P
- Unterlage
- Ein Ballen ist eine fleischige Verdickung an der Unterseite einer Hand oder eines Fußes, die häufig in Fußabdrücken zu sehen ist. Je nachdem, welchen Teil der Hand oder des Fußes sie stützen, werden sie als Handflächenballen , Fußsohlenballen oder Zehenballen bezeichnet . [ 15 ] : 47 Ein Finger oder Zeh kann einzelne Phalangenballen (auch: digitale Knoten [ 88 ] : 112–116 ) aufweisen, die einzelnen Phalangen (Finger-/Zehenknochen) entsprechen können . [ 89 ] Bei Dinosauriern zeigen Phalangenballen typischerweise eine arthrale Anordnung, bei der ein Ballen das Gelenk zwischen zwei Phalangen umschließt. Menschen hingegen weisen die mesarthrale Anordnung auf, bei der der Übergang von einem Ballen zum nächsten unterhalb des Gelenks erfolgt. Ein Ballen, der das Gelenk zwischen einem Metakarpalknochen (oder Metatarsalknochen) und der ersten Phalanx umschließt, wird als Metatarsophalangealballen bezeichnet . [ 88 ] : 112–116
- Gaumen
- Der Gaumen ist der Teil des Schädels zwischen dem linken und rechten Oberkiefer, der das Dach des Mundes bildet. Er besteht aus einem unpaaren Knochen, dem Pflugscharbein (Vomer) , und fünf paarigen Knochen ( Palatinum , Pterygoid , Ectopterygoid , Epipterygoid und Quadratum ). Der Gaumen weist drei Öffnungspaare auf: die Choanen (innere Nasenlöcher), die Suborbitalfenster zwischen dem Gaumenbein und dem Ectopterygoid sowie die Subtemporalfenster hinter dem Ectopterygoid, die mit den Infratemporalfenstern in Verbindung stehen . [ 25 ] : 39–40
- Pfalz
- Das Gaumenbein ist ein paariger , dermaler Knochen des Gaumens . Es liegt medial am Pflugscharbein und Flügelbein sowie lateral am Oberkiefer und Jochbein an und bildet den hinteren Rand der Choanen sowie den vorderen Rand der Suborbitalfenster . [ 25 ] : 39–40
- palpebral
- Das Palpebral (auch: Supraorbitale , Adlacrimale [ 90 ] ) ist ein kleiner Knochen, der am oberen Rand der Orbita (Augenhöhle) ansetzt oder Teile davon bildet. Es entsteht im Oberlid und ist ursprünglich aus Osteodermen entstanden . Auf beiden Seiten des Schädels können ein oder mehrere Palpebrale vorhanden sein. Das Vorhandensein eines Palpebrals ist ein gemeinsames Merkmal der Ornithischier, obwohl sich Palpebrale auch in anderen Reptiliengruppen, einschließlich der Krokodilartigen, entwickelten . [ 91 ]
- Parapophyse
- Parapophysen sind Fortsätze an den Wirbelkörpern der Hals- und Brustwirbel, die mit dem Capitulum der Rippen artikulieren . Sie liegen typischerweise nahe dem vorderen Rand der Seitenfläche des Wirbelkörpers und sind deutlich von den Diapophysen an den Querfortsätzen der Wirbelbögen getrennt, welche den zweiten Rippenkopf, das Tuberculum , aufnehmen . Die Position der Parapophyse verschiebt sich jedoch entlang der Wirbelsäule von den Hals- zu den hinteren Brustwirbeln allmählich auf den Querfortsatz, wo sie mit der Diapophyse, die eine einköpfige Rippe aufnimmt, eine gemeinsame Struktur bilden kann. [ 77 ] : 8 [ 11 ] : 225
- Parasphenoid
- Das Parasphenoid ist der einzige Hautknochen des Hirnschädels . Es bildet einen Teil der Hirnschädelunterseite, liegt vor dem Basisphenoid und erstreckt sich in einem länglichen Fortsatz unterhalb der Augen nach vorn. Dieser Fortsatz stützte eine Membran, die sich dorsal bis zum Schädeldach erstreckte und die beiden Augäpfel trennte. Diese Membran kann verknöchert sein; in diesem Fall wird sie als Septum interorbitale bezeichnet . [ 25 ] : 39
- parietal
- Das paarige Scheitelbein ist der hinterste Knochen des Schädeldachs . Als Hautknochen liegt es hinter den Stirnbeinen und überspannt den Hirnschädel . [ 25 ] : 38 [ 1 ] : 141 [ 20 ]
- Scheitelfenster
- Die Scheitelfenster sind zwei fensterartige Öffnungen, die häufig in den Nackenschilden von Ceratopsiern vorkommen . Bei Chasmosaurus und Pentaceratops waren diese Öffnungen besonders groß. [ 92 ]
- Schultergürtel
- Der Schultergürtel ist die Knochengruppe des Extremitätenskeletts , die die Vordergliedmaßen verbindet. Streng genommen umfasst er Schulterblatt , Rabenschnabelfortsatz und Schlüsselbein , während das Brustbein entweder dem Schultergürtel oder, zusammen mit den Rippen, dem Achsenskelett zugeordnet wird. Im Gegensatz zum Beckengürtel, der fest mit der Wirbelsäule verbunden ist, besitzt der Schultergürtel keine solche knöcherne Verbindung, sondern wird von Muskeln gehalten. [ 3 ]
- Becken
- Das Becken, auch Beckengürtel genannt, ist die Sammelbezeichnung für die Knochen der Hüfte, die die Wirbelsäule mit der Hintergliedmaße verbinden. Zum Becken gehören Darmbein (Os ilium) , Schambein (Os pubis) und Sitzbein (Os ischii) . Seine Innenfläche ist fest mit den Kreuzbeinrippen der Kreuzbeinwirbel verbunden , die zum Kreuzbein (Os sacrum) verschmolzen sein können. [ 3 ]
- PES
- Der Fuß (Pseus, Plural: Pedes ) besteht aus den Tarsalknochen , Metatarsalknochen und Zehengliedern . [ 1 ] Die erste Zehe des Fußes ist die Hallux , die bei den meisten zweibeinigen Dinosauriern kurz ist und den Boden nicht berührt, bei Vögeln jedoch vergrößert und nach hinten statt nach vorne gerichtet ist. [ 2 ] [ 93 ]
- Fingerknochen
- Die Phalangen (Singular: Phalanx ) sind die Knochen der Finger und Zehen. Die letzte Phalanx eines Fingers oder Zehs wird als Ungual bezeichnet und bildet den knöchernen Kern eines Hornhufs oder einer Hornklaue. [ 1 ] : 145
- Foramen pineale
- Das Foramen pineale (auch: Foramen frontoparietale , Foramen parietale , Foramen postfrontale , Foramen interfrontale ) ist eine unpaare Öffnung in der Mittellinie des Schädeldachs , die bei einigen Dinosauriern vorhanden, bei ausgewachsenen Tieren jedoch oft verschlossen ist. Seine Lage ist variabel; es kann zwischen den Frontalia , den Parietale oder an deren Übergangsstelle liegen . Durch diese Öffnung war das Parietalorgan zugänglich und diente somit der Photorezeption . [ 94 ] [ 95 ] [ 96 ]
- Pleurocoel
- Pleurocoele sind Öffnungen an den Seitenflächen der Wirbel, die in innere Kammern innerhalb des Wirbelkörpers und/oder des Wirbelbogens führen. Ein Pleurocoel kann eine einzelne Höhle oder ein Komplex aus kleineren, miteinander verbundenen Höhlen sein. [ 1 ] : 143–144
- postkranial
- Das Postkranium (der Teil des Skeletts hinter dem Schädel; Plural: Postkrania ) ist der Teil des Skeletts, der sich hinter dem Schädel befindet. Es wird in das Achsenskelett , das die gesamte Wirbelsäule und die Rippen umfasst, und das Extremitätenskelett , das Schulter- und Beckengürtel sowie die Gliedmaßen einschließt, unterteilt. [ 1 ] Darüber hinaus werden auch einzelne Fundstücke ohne Schädel häufig als Postkrania bezeichnet.
- postorbital
- Das Postorbitale ist ein paariger Knochen an der Schädelseite, der einen Großteil des hinteren Randes der Augenhöhle bildet . Bei Ceratopsiern ist er zu markanten Hörnern über den Augen umgewandelt. [ 25 ] : 38
- postparietales Foramen
- Das Foramen postparietale (auch: Fontanelle postparietale , Fenestra postparietale ) ist eine unpaare Öffnung in der Schädelmittellinie zwischen Parietale und Supraoccipitale , die bei einigen Sauropodomorpha vorkommt . Ähnlich wie das Foramen pineale legte es möglicherweise das Parietalorgan frei und diente somit der Photorezeption . [ 97 ] [ 98 ] [ 94 ]
- posttemporale Fenster
- Die posttemporale Fenestra (alternative Schreibweise: posttemporale Fenestra) ist eine paarige Öffnung unterhalb des hinteren Randes des Scheitelbeins und oberhalb des Paroccipitalfortsatzes des Hirnschädels . Sie stellt möglicherweise den Austritt des Hinterhauptastes der Arteria ophthalmica dar . [ 99 ] : 30
- präartikuläre
- Das Präartikular ist ein Knochen des hinteren Unterkieferabschnitts . Es liegt an der Innenseite des Unterkiefers, vor dem Articulare und oberhalb des Angulus . Es bildet den inneren Rand der Fossa adductorii . [ 5 ]
- präfrontal
- Das Präfrontale ist ein kleinerer Knochen am seitlichen Rand des Schädeldachs zwischen dem Stirnbein , dem Tränenbein und dem Nasenbein . [ 25 ] : 38
- prädental
- Der Prädentale ist ein unpaarer Knochen vor den Dentale des Unterkiefers, der bei Ornithischiern den Unterkieferschnabel bildete . [ 1 ] : 142 Sein Vorhandensein gilt als Synapomorphie der Ornithischier . [ 100 ]
- Zwischenkiefer
- Der paarige Zwischenkieferknochen (Plural: Zwischenkieferknochen ) ist der vorderste Knochen des Oberkiefers und bildet die Schnauzenspitze. Er enthält den vorderen Teil der oberen Zahnreihe, die mit der des dahinterliegenden Oberkiefers ( Maxilla ) ineinander übergeht. [ 25 ] : 36
- Proatlas
- Der Proatlas ist ein kleiner, paariger Knochen, der zwischen dem Neuralbogen des Atlas (des ersten Halswirbels) und der Schädelbasis liegt. Die Elemente jedes Paares sind dreieckig, wobei das breite Ende mit dem Neuralbogen des Atlas und das spitze Ende mit dem Exoccipitale des Schädels artikuliert. Aufgrund seiner geringen Größe geht der Proatlas bei der Fossilisation, Sammlung oder Konservierung leicht verloren und wird daher nur selten gefunden. [ 11 ]
- Prootik
- Das Prooticum ist ein paariger Knochen, der Teile der seitlichen Oberfläche des Hirnschädels bildet . Zusammen mit dem dahinter liegenden Opisthotikum bildet es die Otische Kapsel . [ 17 ] Das Prooticum enthält Öffnungen für den Trigeminus- und den Gesichtsnerv und ist innen von Nasennebenhöhlen umgeben. Seine Außenfläche bot raue Ansatzstellen für die Kieferöffnungsmuskeln. [ 25 ] : 39
- Flügelbein
- Das Pterygoid ist ein paariger Hautknochen des Gaumens . Es ist groß und komplex und artikuliert sowohl mit dem Hirnschädel als auch mit anderen Gaumenknochen. An ihrem hinteren Ende umschließen das linke und rechte Pterygoid eine Öffnung, die Interpterygoid-Vakuität . [ 25 ] : 39–40
- Schambein
- Das Schambein (Plural: Schambeine ) ist einer der drei Knochen des Beckens und liegt ventral des Darmbeins und anterior des Sitzbeins . Bei Saurischiern ist der Schambeinschaft ursprünglich nach vorne gerichtet ( propubische Konformation). Bei Ornithischiern zeigt der ursprüngliche Schambeinschaft nach hinten ( opisthopubische Konformation); stattdessen ist ein gut entwickelter vorderer Ast oder Präpubis vorhanden, der bei abgeleiteten Formen größer als der nach hinten gerichtete Schaft sein kann. [ 101 ] Die linken und rechten Schambeine sind in der Regel über ihre gesamte Länge miteinander verschmolzen, wobei der distale Abschnitt erweitert ist und die Schamschürze bildet . [ 64 ] : 152 Bei einigen Neotheropoden ist der distale Abschnitt der Schamnaht nicht durchgehend, sondern bildet eine Öffnung, das Foramen pubicum , das in ventraler Ansicht sichtbar ist. [ 64 ] : 141 Der proximale Teil des Schambeins weist eine Öffnung auf, das Foramen obturatum , das sich in der Nähe des Acetabulums befindet und in der Seitenansicht sichtbar ist. Durch das Foramen obturatum verläuft der Nervus obturatorius. Bei Theropoden ist das Foramen obturatum nicht vollständig von Knochen umschlossen, da der ventrale Rand fehlt; dieser Zustand wird als Incisura obturatoria bezeichnet . [ 64 ] : 143
- Pygostyle
- Ein Pygostyl ist eine knöcherne Struktur, die aus dem verschmolzenen hintersten Schwanzwirbel besteht. Es kommt bei pygostylischen Vögeln vor , wo es der Verankerung der langen Schwanzfedern dient. [ 26 ]

Q
- quadratisch
- Das Quadratum ist ein großer, paariger , endochondraler Knochen im hinteren Schädelbereich. Es handelt sich um eine säulenförmige Struktur, deren unteres Ende mit dem Unterkiefer artikuliert und das Kiefergelenk bildet, während ihr oberes Ende unter das Schuppenbein reicht . Das Quadratum ist Teil des Gaumens . [ 25 ] : 39–40
- Quadratjugal
- Das Quadratojugale ist ein Knochen in der Wangenregion des Schädels, der in der Seitenansicht sichtbar ist und die untere hintere Ecke des Schädels bildet . [ 25 ] : 37–38
R
- Radius
- Die Speiche (Plural: Speichen ) ist der kleinere und vordere der beiden Unterarmknochen. [ 1 ] : 145
- Rhamphotheca
- Die Rhamphotheca (Plural: Rhamphothecae ) oder der Schnabel ist eine hornige ( keratinöse ) Bedeckung an den Kieferspitzen, die häufig bei Ornithischiern, Ornithomimosauriern und Vögeln vorkommt. [ 26 ] [ 21 ] Da Keratin selten fossilisiert, sind Schnäbel nur als Abdrücke erhalten. Das Vorhandensein von Schnäbeln wird oft aus der rauen Oberflächenstruktur der Kieferspitzen abgeleitet, die stark vaskularisiert sind (zahlreiche Blutgefäße enthalten). [ 2 ]
- Rippchen
- Die Rippen (Singular: Costa ; dieser lateinische Begriff ist weniger gebräuchlich als der englische Begriff „Ribs“ [ 1 ] ) setzen beidseitig an den Brustwirbeln an und schützen die Organe des Rumpfes. Die Rippen sind zweiköpfig (bicapitate): [ 102 ] Ein dorsaler Kopf, das Tuberculum (Plural: Tubercula ), artikuliert mit den Querfortsätzen des Neuralbogens , während ein ventraler Kopf, das Capitulum (Plural: Capitula ), mit dem Centrum artikuliert . Rippen finden sich auch im Hals ( Halsrippen ) und im Kreuzbein ( Kreuzbeinrippen ). [ 1 ]
- rostral
- Das Rostral ist ein neuartiger Knochen bei Ceratopsiern . Als unpaares Element bedeckt es den vorderen Teil der Prämaxillae an der Schnauzenspitze. [ 25 ] : 36 Als Adjektiv bezeichnet „ rostral“ das Rostrum . [ 83 ] : 357 Das Rostral und andere akzessorische Verknöcherungen am Schädel von Ceratopsiern werden zusammenfassend als Epiossifikationen bezeichnet . [ 54 ]
- Tribüne
- Das Rostrum (Plural: Rostra ) ist der Schnauzenbereich des Schädels. [ 83 ] : 357

S
- Sakrale
- Die Sakralwirbel der Wirbelsäule befinden sich zwischen den Brust- und Schwanzwirbeln. Sie sind häufig zum Kreuzbein (Plural: Sakralwirbel ) verschmolzen. [ 1 ] : 143 Manchmal sind ein oder mehrere Brustwirbel mit dem Kreuzbein zu einem Synsakrum verschmolzen . [ 48 ] : 368
- Segel
- Segel (auch: Dornfortsatzsegel ) sind Strukturen, die durch die Verlängerung der Dornfortsätze der Wirbel entstehen , typischerweise an den Rücken-, Kreuz- und Schwanzwirbeln . Sie variieren in Größe und Form, von flachen Wülsten bis hin zu hohen, auffälligen Strukturen. [ 78 ] [ 103 ] In manchen Fällen, wie bei Concavenator , bilden die Dornfortsätze einen „Buckel“ [ 104 ] oder, wie bei Ichthyovenator , ein sinusförmiges (wellenförmiges) Segel . [ 105 ] Dieses Merkmal ist bei Spinosauriden am deutlichsten ausgeprägt [ 103 ] , kommt aber auch bei Carcharodontosauriden , Metriacanthosauriden [ 78 ] [ 106 ] und einigen Ornithopoden und Sauropoden vor . [ 107 ] [ 108 ] [ 109 ]
- Schulterblatt
- Das Schulterblatt (Plural: Scapulae ) ist ein endochondraler Knochen und das größte Element des Schultergürtels. Bei Erwachsenen ist das Schulterblatt üblicherweise mit dem Rabenschnabelfortsatz (Processus coracoideus) verwachsen und bildet so das Schulterblatt-Rabenschnabelfortsatz-Gelenk (Processus scapulocoracoideus ). [ 3 ]
- Skleralring
- Ein Skleralring (auch: sklerotischer Ring ) ist ein Ring aus kleinen, plattenförmigen Knochen, der sich in der Sklera des Auges um die Pupille herum befindet . Die einzelnen plattenförmigen Knochen werden als Skleralossikel bezeichnet . [ 110 ] [ 111 ] [ 25 ] : 84
- sekundärer Gaumen
- Der sekundäre Gaumen ist eine dachartige Struktur, die die Nasenwege vom Mund trennt. Bei Reptilien öffnen sich die Choanen ursprünglich vorne in die Mundhöhle, wodurch Nahrungsreste beim Fressen die Atemwege blockieren können. Ein sekundärer Gaumen, wie er häufig bei Säugetieren vorkommt, verlagert die Choanen nach hinten und ermöglicht so gleichzeitiges Fressen und Atmen. [ 83 ] Bei einigen Kladen, darunter Ankylosaurier [ 112 ] , Spinosauriden [ 113 ] und Maniraptoriformes Coelurosaurier [ 80 ], war der sekundäre Gaumen knöchern und wurde als ossärer sekundärer Gaumen bezeichnet. Im Gegensatz dazu wurde bei einigen anderen Taxa wie Plateosaurus und Stegosauria aufgrund von Vorsprüngen und Leisten an den Gaumenknochen ein weicher sekundärer Gaumen angenommen. [ 114 ] [ 115 ] Ein knöcherner sekundärer Gaumen wird typischerweise durch plattenartige Fortsätze der Prämaxillae und Maxillae gebildet, die in der Schädelmittellinie auf das Pflugscharbein treffen . Ankylosauriden entwickelten einen zusätzlichen Teil des sekundären Gaumens, der sich vom Pterygoid und Palatinum im hinteren Gaumenbereich nach vorne erstreckt und als kaudoventraler Gaumenfortsatz bezeichnet wird (entsprechend wird der vordere, von den Prämaxillae und Maxillae gebildete Teil auch als rostrodorsaler Gaumenfortsatz bezeichnet ). [ 112 ]
- Zacken
- Sägezähne sind kleine, linienförmig angeordnete Auswüchse an den Schneidekanten ( Carinae ) der Zähne. Ein eng verwandter Begriff ist Dentikel (auch: Denteluren ). Beide Begriffe wurden unterschiedlich definiert, und viele Autoren verwenden sie synonym. Andere Autoren verwendeten den Begriff „Sägezahn“ für die kleineren Strukturen an Zähnen von Fleischfressern und den Begriff „Dentikel“ für die gröberen Auswüchse an vielen Zähnen von Pflanzenfressern. Eine neuere terminologische Überprüfung definiert Dentikel als eine komplexe Art von Sägezahn, die sowohl aus dem Zahnschmelz als auch aus dem darunterliegenden Dentin besteht , während der Begriff Sägezahn auch Strukturen umfasst, die ausschließlich aus Zahnschmelz bestehen. Gemäß dieser Definition sollten die bei fleischfressenden Dinosauriern beobachteten Auswüchse als Dentikel bezeichnet werden. [ 116 ] Eine detaillierte Terminologie wird verwendet, um die komplexe Dentikelmorphologie an Zähnen von Fleischfressern zu beschreiben:
- Cellae (Singular: Cella ; auch: Interdentikularraum ): Die Zwischenräume zwischen den einzelnen Dentikeln. [ 116 ]
- Diaphyse (Plural: Diaphysen ): Die Stelle, an der die Schmelzkappen zweier benachbarter Dentikel auseinanderlaufen oder einander am nächsten sind. [ 117 ] [ 118 ] [ 116 ]
- Ampulle (Plural: Ampullen ): Die flaschenförmige Kammer unterhalb der Diaphyse. [ 116 ]
- Operculum : Die Schmelzschicht des Dentikels. [ 116 ]
- Radix : der Kern des Dentikels unterhalb des Operculums. [ 116 ]
- Interdentikulärer Sulcus (Plural: Sulci, auch: Blutrinne ): Eine Rinne, die von den Zwischenräumen benachbarter Dentikel ein kurzes Stück auf die Zahnoberfläche beidseits senkrecht zur Carina verläuft . [ 116 ]
- Cauda (Plural: Caudae ): eine Ausbuchtung, die von der Basis eines Dentikels ausgeht und senkrecht zur Carina auf die Zahnoberfläche zwischen zwei Interdentikularfurchen verläuft. [ 116 ]
- Schädel
- Der Schädel umfasst die Knochen und Zähne des Kopfes. Er besteht aus einem oberen Teil, dem Schädel (Cranium, Plural: Crania ), und einem unteren Teil, dem Unterkiefer (Mandibula ). Der Schädel setzt sich aus Hirnschädel , Schädeldach , Oberkiefer und Wangenregion sowie dem Gaumen zusammen . Der Hirnschädel ist fast vollständig enchondralen Ursprungs, während der übrige Schädel überwiegend aus Hautknochen besteht. Die Unterkiefer bestehen sowohl aus Haut- als auch aus enchondralen Knochen. Der Schädel weist eine Reihe von Öffnungen auf, die wichtige Orientierungspunkte in anatomischen Beschreibungen darstellen. Dazu gehören die Orbita (Plural: Orbita ), die Augenhöhle, in der sich das Auge befand, sowie die äußere Nasenöffnung (Naris ). Darüber hinaus besaß der Schädel weitere Öffnungen, sogenannte Fenestrae (Singular: Fenestra ), die typisch für diapside Reptilien waren : die Antorbitalfenster zwischen der äußeren Nasenöffnung und der Orbita; die Fenestra infratemporalis hinter der Orbita und die Fenestra supratemporalis am Hinterkopf. [ 1 ] : 138–140 [ 25 ] : 32–36 [ 17 ]
- Schädeldach
- Das Schädeldach bildet die Oberseite des Schädels. Bei Dinosauriern besteht es aus vier paarigen Knochen: Die Nasen- , Stirn- und Scheitelbeine sind große Elemente, während die Präfrontalbeine klein sind und zwischen Nasen-, Stirn- und Tränenbein liegen . Im hinteren Teil des Schädels befinden sich die Schläfenfenster . [ 25 ] : 38
- Keilbein Siebbein
- Das Sphenethmoid ist ein röhrenförmiger Knochen im vorderen Bereich des Hirnschädels . Es liegt unterhalb der Stirnbeine , hinter dem Mesethmoid und vor dem Orbitosphenoid und enthielt die Bulbi olfactorii , die für den Geruchssinn verantwortlich sind. Wie auch das Mesethmoid und das Orbitosphenoid ist das Sphenethmoid bei vielen Arten nicht verknöchert und daher selten erhalten. [ 75 ] [ 20 ] [ 25 ] : 39
- prächtig
- Das Spleniale ist ein Hautknochen des Unterkiefers , der hinter und medial (nach innen gerichtet) des Dentale liegt . Es bedeckt den größten Teil der Innenseite des Dentale und ist in medialer Ansicht oft der ausgedehnteste Knochen des Unterkiefers. [ 25 ] : 40 [ 5 ]
- Schuppenbein
- Das Schuppenbein ist ein paariger Knochen an den hinteren Ecken des Schädels. [ 25 ] : 38
- Sternum
- Das Brustbein, im nicht verknöcherten Zustand als Brustbeinplatten bezeichnet, ist ein Knochen des Schultergürtels. Bei Reptilien ist das Brustbein üblicherweise knorpelig, daher sind sein Fehlen und seine Beziehung zum Schlüsselbein nicht immer bekannt. [ 3 ]
- subnarielles Foramen
- Das Foramen subnariale ist eine kleine Öffnung zwischen Prämaxilla und Maxilla bei Saurischiern und einigen basalen Ornithischiern. [ 25 ] : 23
- subnarieller Spalt
- Die Subnariallücke (auch „Knick“ genannt) ist eine Lücke zwischen Prämaxilla und Maxilla im Schnauzenbereich von Coelophysoiden , Dilophosauriden und Spinosauriden . Sie führt zu einem Diastema , einer Lücke in der Zahnreihe. Der Raum zwischen der Subnariallücke und der nach oben gebogenen Spitze des Unterkiefers wird als Subrostralkerbe bezeichnet . [ 119 ] [ 120 ] [ 121 ] [ 122 ] Bei Dilophosaurus enthielt die Lücke eine tiefe Vertiefung hinter der Zahnreihe des Prämaxilla, die sogenannte Subnarialgrube . [ 119 ]
- supraoccipital
- Das Supraoccipitale ist ein unpaarer Knochen des Hinterhauptbeins am Hinterkopf. Es bildet den oberen Rand des Foramen magnum und ist dorsal mit den Scheitelbeinen verbunden . Häufig weist es einen Mittelgrat für den Ansatz der Nackenmuskulatur auf. [ 20 ] [ 25 ] : 38–39
- supratemporale Fenster
- Das supratemporale Fenster (auch: oberes temporales Fenster [ 123 ] ) ist eine Öffnung am oberen Hinterkopf. [ 1 ] : 140 Es wird typischerweise vom Postorbital- , Squamosal- und Parietalbein begrenzt . [ 25 ] : 38
- surangular
- Das Surangulare ist ein Hautknochen im Unterkiefer, der in der Seitenansicht sichtbar ist und sich hinter dem Dentale und oberhalb des Angulares befindet . [ 25 ] : 40
- synzervikal
- Das Synzervikal ist eine Struktur, die bei Vertretern der Neoceratopsia aus den verschmolzenen ersten drei Halswirbeln besteht . Während einige Interpretationen die ersten vier Halswirbel als zum Synzervikal verschmolzen ansehen, zeigt die evolutionäre Entwicklung bei Auroraceratops , Leptoceratops und Protoceratops sowie anderen Ceratopsiern, dass das Synzervikal die ersten drei Halswirbel und die ersten beiden Intercentra vereint . [ 65 ]

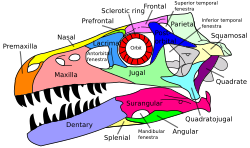

T
- Tarsale
- Die Tarsalknochen sind eine Gruppe von Knochen in der Hintergliedmaße zwischen den Mittelfußknochen (Metatarsalia) unten und Schienbein (Tibia) und Wadenbein (Fibula) oben. [ 1 ] : 148 Sie werden zusammenfassend als Tarsus bezeichnet . Der Tarsus besteht aus einer oberen Reihe, die vom Sprungbein (Astragalus) und Fersenbein (Calcaneum) gebildet wird , und einer unteren Reihe kleiner Knochen, die auf den Mittelfußknochen aufliegen. Die obere und die untere Reihe können sich gegeneinander bewegen und bilden so das Sprunggelenk . [ 25 ] : 53
- Zähne
- Bei Dinosauriern befinden sich Zähne im Oberkiefer (Maxilla und Zwischenkieferknochen) sowie im Unterkieferzahn (Dentale). [ 25 ] : 40 Nur die sehr basalen Dinosaurier Eoraptor und Eodromaeus besitzen rudimentäre Zähne am Gaumenbein ( Gaumenzähne ) . [ 124 ] Ein zahnloser Kieferknochen wird als zahnlos bezeichnet . [ 1 ] : 140 Zähne lassen sich in zwei Teile unterteilen: die Krone , den oberen, sichtbaren Teil, und die Wurzel , die im Zahnfleisch liegt. [ 48 ] Zähne bestehen hauptsächlich aus zwei Gewebearten: Zahnschmelz und Dentin. Der Zahnschmelz bildet die harte, glänzende Außenschicht, während das weichere, knochenähnliche Dentin das Innere ausfüllt. Gelegentlich findet sich auf der Schmelzschicht eine dritte Gewebeart, das Zement . [ 41 ]
- Schienbein
- Das Schienbein (Plural: Tibiae ) ist der größere der beiden Unterschenkelknochen. Es liegt medial des Wadenbeins ( Fibula ). Das Schienbein weist an seinem oberen Ende einen markanten Knochenkamm auf, die Crista tibialis (auch: Crista tibialis ). An der Crista tibialis setzten die Sehnen des Musculus triceps femoris an, der für die Streckung des Knies verantwortlich ist, und die Hebelwirkung dieser Muskeln wurde erhöht. [ 4 ] : 178 [ 1 ] : 147
- Thagomizer
- Ein Thagomizer sind die vier bis zehn Schwanzstacheln, die bei Stegosauriern zu sehen sind. Der Begriff wurde 1982 von dem Cartoonisten Gary Larson geprägt . [ 26 ]
- Querfortsatz
- Die Querfortsätze sind flügelartige Ausstülpungen, die seitlich von den Neuralbögen der Hals-, Brust-, Kreuzbein- und der vordersten Schwanzwirbel abstehen. Ihre typischerweise horizontale Ausrichtung führt zur charakteristischen T-Form der Wirbel in Vorder- und Rückansicht. An seiner Spitze artikuliert ein Querfortsatz mit dem Tuberculum der zugehörigen Rippe ; die verbreiterte Gelenkfläche für die Rippe wird als Diapophyse (Plural: Diapophysen ) bezeichnet. [ 25 ] : 42 Einige Autoren bezeichnen jedoch den gesamten Querfortsatz als Diapophyse und verwenden beide Begriffe synonym. [ 11 ] : 224–225 [ 77 ] : 8

U
- Elle
- Die Elle (Plural: Ulnae ) ist der größere und weiter hinten liegende der beiden Unterarmknochen. [ 1 ] : 145 Am oberen Ende der Elle befindet sich oft ein großer Fortsatz, das Olecranon , das über das Ellenbogengelenk hinausragt und an dem die Trizepsmuskeln (Unterarmstrecker) ansetzen. Die mitunter große Länge des Olecranons ermöglichte diesen Muskeln eine größere Hebelwirkung. [ 25 ] : 50 [ 4 ] : 173–174
V
- Wirbel
- Wirbel (Einzahl: Wirbel ) sind die knöchernen Bestandteile der Wirbelsäule. Bei Dinosauriern lassen sich die Wirbel in Halswirbel (Cervicalis), Brustwirbel (Dorsalis), Kreuzbeinwirbel (Sacralalis) und Schwanzwirbel ( Caudalis ) unterteilen. Jeder Wirbel besteht aus einem annähernd spulenförmigen unteren Abschnitt, dem Wirbelkörper ( Centrum ) , und einem bogenförmigen oberen Abschnitt, dem Wirbelbogen (Arcus intertubercularis) . Zwischen diesen beiden Abschnitten befindet sich ein röhrenförmiger Kanal, der Spinalkanal . Das Rückenmark des Nervensystems verläuft durch den Spinalkanal jedes Wirbels. Die Hals-, Brust- und Kreuzbeinwirbel sind über Querfortsätze an den Seiten ihres Wirbelbogens mit den Rippen verbunden . Die Schwanzwirbel sind über Chevronfortsätze an der Unterseite ihrer Wirbelkörper verbunden.
- Vomer
- Das Pflugscharbein ist ein unpaarer , schmaler Knochen im vorderen Gaumenbereich , der die linke und rechte Maxilla sowie die Choanen trennt . [ 25 ] : 39–40
W
X
Y
Z
- Zahnreihe
- Eine Zahnreihe ist eine Abfolge von Zahnpositionen , die eine Ersatzeinheit bilden. Typischerweise besteht eine Zahnreihe aus mehreren Zahnreihen mit jeweils zwei oder mehr Zähnen. Der Zahnersatz beginnt stets an der hintersten Zahnposition einer Zahnreihe und schreitet nach vorne fort. Dadurch wird vermieden, dass zwei benachbarte Zahnpositionen gleichzeitig ersetzt werden, was Lücken in der Zahnreihe zur Folge hätte. Die Anzahl der Zähne zwischen zwei Zahnreihen wird als Z-Abstand bezeichnet. Beträgt der Z-Abstand genau 2, werden die Zähne abwechselnd ersetzt; ist der Z-Abstand größer als 2, werden die Zähne nacheinander ersetzt. [ 125 ]
- ziphodont
- Ziphodont bezeichnet Zähne mit klingenartiger Form, deren Kronen nach hinten gebogen und abgeflacht sind und typischerweise Sägezähne aufweisen. An eine fleischfressende Ernährung angepasst, sind ziphodonte Zähne ursprünglich bei Dinosauriern vorhanden und finden sich bei den meisten nicht-avianen Theropoden. [ 41 ]
- Zygapophysen
- Die Zygapophysen (Singular: Zygapophyse ), auch Gelenkfortsätze genannt , sind Vorsprünge des Wirbelbogens, die benachbarte Wirbel miteinander verbinden. Jeder Wirbel besitzt zwei Paare von Zygapophysen, die mit den Zygapophysen des jeweils vorhergehenden und nachfolgenden Wirbels artikulieren: Vorne befinden sich die Präzygapophysen (auch: kraniale Zygapophysen ), die sich nach vorne erstrecken und deren Gelenkfläche nach oben zeigt. Hinten an einem Wirbel befinden sich die Postzygapophysen (auch: kaudale Zygapophysen ), die sich nach hinten erstrecken und deren Gelenkfläche nach unten zeigt. [ 1 ] : 143
Siehe auch
Referenzen
- Holtz , TR ; Brett - Surman , MK ( 2012 ) . „ Die Osteologie der Dinosaurier “ . In : Brett -Surman, MK; Holtz, TR; Farlow , JO ( Hrsg . ) . The Complete Dinosaur ( 2. Aufl . ) . Indiana University Press . S. 135–149 . ISBN 978-0-253-00849-7Die
- ^ a b c Currie, PJ; Padian, K., Hrsg. (1997). "Glossar". Enzyklopädie der Dinosaurier . S. 813–827 . ISBN 978-0-12-226810-6Die
- ^ a b c d e f g Padian, K. (1997). „Brustgürtel“. In Currie, PJ; Padian, K. (Hrsg.). Enzyklopädie der Dinosaurier . S. 530–536 . ISBN 978-0-12-226810-6Die
- ^ a b c d e f g h Dilkes, DW; Hutchinson, JR; Holliday, CM; Witmer, LM (2012). „Reconstructing the Musculature of Dinosaurs“. In: Brett-Surman, MK; Holtz, TR; Farlow, JO (Hrsg.). The Complete Dinosaur (2. Aufl.). Indiana University Press. S. 150–190 . ISBN 978-0-253-00849-7Die
- Romer , A. S. ( 1976 ). „Der Unterkiefer“. Osteologie der Reptilien . The University of Chicago Press. S. 198–217 . ISBN 978-0-226-72491-1Die
- ^ Wedel, MJ (2009). „Hinweise auf vogelähnliche Luftsäcke bei Saurischiern“ . Journal of Experimental Zoology Part A: Ecological Genetics and Physiology . 311 (8): 611–628 . Bibcode : 2009JEZA..311..611W . doi : 10.1002/jez.513 . PMID 19204909 .
- ^ Currie, PJ; Padian , K., Hrsg. (1997). „Thecodontia“. Encyclopedia of Dinosaurs . S. 728. ISBN 978-0-12-226810-6Die
- ^ Fiorillo, AR (1997). „Taphonomie“. In: Currie, PJ; Padian, K. (Hrsg.). Enzyklopädie der Dinosaurier . S. 713–716 . ISBN 978-0-12-226810-6Die
- ^ Padian , K. (1997). „Zweibeinigkeit“. In Currie, PJ; Padian, K. (Hrsg.). Enzyklopädie der Dinosaurier . S. 68–70 . ISBN 978-0-12-226810-6Die
- ^ Tsuihiji, Takanobu; Makovicky, Peter J. (2007-09-01). „Homologie der Halswirbelstege der Neoceratopsier“ . Journal of Paleontology . 81 (5): 1132–1138 . Bibcode : 2007JPal...81.1132T . doi : 10.1666/pleo05-164.1 . ISSN 0022-3360 . S2CID 131118800 .
- Romer , A. S. ( 1976). „Das Achsenskelett“. Osteologie der Reptilien . The University of Chicago Press. S. 218–297 . ISBN 978-0-226-72491-1Die
- ^ Galton, Peter M.; Kermack, Diane (2010). „Die Anatomie von Pantydraco caducus, einem sehr basalen Sauropodomorpha-Dinosaurier aus dem Rhaetium (Obertrias) von Südwales, Großbritannien“. Revue de Paléobiologie . 29 : 341–404 .
- ^ Hutchinson, JR; Padian, K. (1997). „Arctometatarsalia“. In Currie, PJ; Padian, K. (Hrsg.). Enzyklopädie der Dinosaurier . S. 24–26 . ISBN 978-0-12-226810-6Die
- ^ Henderson, D. (2012). „Die Erschaffung eines Dinosauriers“. In: Michael K. Brett-Surman; Thomas R. Holtz; James Orville Farlow (Hrsg.). Der vollständige Dinosaurier . Indiana University Press. S. 637–665 .
- ^ a b c d Leonardi, Giuseppe (1987). Glossar und Handbuch zur Paläotechnologie des Tetrapoden-Fußabdrucks . Brasilien: Veröffentlichung des Departemento Nacional da Produção Mineral Brasil. S. 43–51 .
- ^ a b Prieto-Márquez, Albert; Norell, Mark A. (2011). „Neubeschreibung eines nahezu vollständigen Schädels von Plateosaurus (Dinosauria: Sauropodomorpha) aus der späten Trias von Trossingen (Deutschland)“ . American Museum Novitates (3727): 1–58 . doi : 10.1206/3727.2 . S2CID 55272856 .
- ^ a b c d e f Romer, AS (1976). „Der Schädel – Allgemeine Struktur“. Osteologie der Reptilien . The University of Chicago Press. S. 55–83 . ISBN 978-0-226-72491-1Die
- ^ Romer, A. S. (1976). „Der Schädel in den verschiedenen Reptiliengruppen“. Osteologie der Reptilien . The University of Chicago Press. S. 85–197 . ISBN 978-0-226-72491-1Die
- ^ Rogers, Kristina Curry; Forster, Catherine A. (2004). „Der Schädel von Rapetosaurus krausei (Sauropoda: Titanosauria) aus der späten Kreidezeit Madagaskars“. Journal of Vertebrate Paleontology . 24 (1): 121–144 . Bibcode : 2004JVPal..24..121R . doi : 10.1671/A1109-10 . S2CID 83855113 .
- ^ a b c d e f g h i j k l Currie, PJ (1997). „Anatomie des Gehirngehäuses“. In Currie, PJ; Padian, K. (Hrsg.). Enzyklopädie der Dinosaurier . S. 81–85 . ISBN 978-0-12-226810-6Die
- ^ a b c Padian, K. (1997). „Skelettstrukturen“. In Currie, PJ; Padian, K. (Hrsg.). Enzyklopädie der Dinosaurier . S. 668 . ISBN 978-0-12-226810-6Die
- ^ Bocherens, H. (1997). „Chemische Zusammensetzung von Dinosaurierfossilien“. In: Currie, PJ; Padian, K. (Hrsg.). Encyclopedia of Dinosaurs . S. 111–117 . ISBN 978-0-12-226810-6Die
- ^ Blows, William T. (2001). „Dermale Panzerung der Polacanthinen-Dinosaurier“. In: Kenneth Carpenter (Hrsg.). Die gepanzerten Dinosaurier . Indiana University Press. S. 363–385 . ISBN 978-0-253-33964-5Die
- ^ Arbour, Victoria M.; Currie, Philip J. (2013). „ Euoplocephalus tutus und die Diversität der Ankylosauriden in der späten Kreidezeit von Alberta, Kanada, und Montana, USA“ . PLOS ONE . 8 (5): –62421. Bibcode : 2013PLoSO...862421A . doi : 10.1371/ journal.pone.0062421 . PMC 3648582. PMID 23690940 .
- ^ a b c d e f g h i j k l m n o p q r s t u v w x y z aa ab ac ad ae af ag ah ai aj ak al am an ao ap aq ar as at au av aw ax ay az ba bb bc bd be bf bg bh bi bj bk bl Brusatte, Stephen L. (2012). Dinosaurier-Paläobiologie . John Wiley & Söhne.
- Brett - Surman , MK; Holtz, TR; Farlow, JO (Hrsg.) (2012). „Glossar“ . The Complete Dinosaur ( 2. Aufl . ) . Indiana University Press . S. 1075–1081 . ISBN 978-0-253-00849-7Die
- ^ Galton, PM (2014). „Notes on the postcranial anatomy of the heterodontosaurided dinosaur Heterodontosaurus tucki , a basal ornithischian from the Lower Jurassic of South Africa“ (PDF) . Revue de Paléobiologie, Genève . 1. 33 : 97–141 . ISSN 1661-5468 .
- ^ Läng, Émilie; Goussard, Florent (2007). „Neubeschreibung von Handgelenk und Hand von ? Bothriospondylus madagascariensis : Neue Daten zur Carpusmorphologie bei Sauropoda“. Geodiversitas . 29 (4): 549–560 .
- ^ Persons IV, W. Scott; Currie, Philip J. (2011). „Der Schwanz des Tyrannosaurus: Neubewertung der Größe und Bedeutung des M. caudofemoralis für die Fortbewegung bei nicht-avianen Theropoden“ . The Anatomical Record: Advances in Integrative Anatomy and Evolutionary Biology . 294 (1): 119–131 . doi : 10.1002/ar.21290 . PMID 21157923. S2CID 26158462 .
- ^ a b c Madsen, JH; Welles, SP (2000).Ceratosaurus (Dinosauria, Theropoda): Eine überarbeitete Osteologie . Utah Geological Survey . S. 1–80 . ISBN 978-1-55791-380-7Die
- ^ Evers SW, Rauhut OWM, Milner AC, McFeeters B, Allain R. 2015. Eine Neubewertung der Morphologie und systematischen Stellung des Theropoden-Dinosauriers Sigilmassasaurus aus der mittleren Kreidezeit Marokkos. PeerJ 3:e1323 https://doi.org/10.7717/peerj.1323
- Fronimos , JA; Wilson, JA; Baumiller, TK (2016). „Polarität konkav-konvexer Zwischenwirbelgelenke in Hals und Schwanz von Sauropoden-Dinosauriern“. Paleobiology . 42 (4): 624–642 . Bibcode : 2016Pbio...42..624F . doi : 10.1017/pab.2016.16 . S2CID 89348860 .
- ^ Kardong, Kenneth V. „Skelettsystem: Das Achsenskelett“. Wirbeltiere – Vergleichende Anatomie, Funktion, Evolution (6. Aufl.). McGraw-Hill. S. 294–324 . ISBN 978-9-33-922211-6Die
- ^ Carpenter, K.; Tidwell, V. (2005). „Neubewertung des frühkretazischen Sauropoden Astrodon johnsoni Leidy 1865 (Titanosauriformes)“. In: Carpenter, K.; Tidwell, K. (Hrsg.). Donnerechsen: Die Sauropodomorpha-Dinosaurier . Indiana University Press. S. 78–114 . ISBN 978-0-253-34542-4Die
- ^ a b Holtz, TR; Brett-Surman, MK (2012). „Dinosaurier-Paläoneurologie“. In: Brett-Surman, MK; Holtz, TR; Farlow, JO (Hrsg.). The Complete Dinosaur (2. Aufl.). Indiana University Press. S. 191–208 . ISBN 978-0-253-00849-7Die
- ^ Kundrát, Martin (2007). „Vogelähnliche Eigenschaften eines virtuellen Gehirnmodells des Oviraptoriden Conchoraptor gracilis “. Naturwissenschaften . 94 (6): 499–504 . Bibcode : 2007NW.....94..499K . doi : 10.1007 / s00114-007-0219-1 . PMID 17277940. S2CID 25723660 .
- ^ Blows, William T. (2014). „Notice of nodosaur (Dinosauria, Ankylosauria) remains from the mid-Cretaceous of Cambridge, England, with comments on cervical half-ring panour“ (PDF) . Proceedings of the Geologists' Association . 125 (1): 56–62 . Bibcode : 2014PrGA..125...56B . doi : 10.1016/j.pgeola.2013.07.001 .
- Christian , A.; Dzemski, G. (2007). „Rekonstruktion der Halswirbelsäulenhaltung von Brachiosaurus brancai Janensch, 1914 durch eine Analyse der intervertebralen Belastung entlang des Halses und ein Vergleich mit den Ergebnissen anderer Ansätze“ . Fossil Record . 10 (1): 38–49 . doi : 10.1002/mmng.200600017 .
- Klein , N.; Christian, A.; Sander, PM (2012). „Histologische Untersuchungen zeigen, dass die verlängerten Halsrippen bei Sauropoden-Dinosauriern verknöcherte Sehnen sind . “ Biology Letters . 8 (6): 1032–1035 . Bibcode : 2012BiLet...8.1032K . doi : 10.1098/rsbl.2012.0778 . PMC 3497149. PMID 23034173 .
- ^ Weishampel, David B. (1981). „Die Nasenhöhle der Lambeosaurinen-Hadrosauriden (Reptilia: Ornithischia): vergleichende Anatomie und Homologien“. Journal of Paleontology : 1046–1057 .
- ^ a b c d Sander, PM (1997). „Zähne und Kiefer“. In: Currie, PJ; Padian, K. (Hrsg.). Enzyklopädie der Dinosaurier . S. 717–725 . ISBN 978-0-12-226810-6Die
- Tschopp , Emanuel; Mateus , Octávio (2013). „ Schlüsselbeine , Zwischenschlüsselbeine, Gastralia und Brustbeinrippen bei Sauropoden-Dinosauriern: Neue Befunde aus der Diplodocidae und ihre morphologischen, funktionellen und evolutionären Implikationen“ . Journal of Anatomy . 222 ( 3 ): 321–340 . doi : 10.1111/joa.12012 . PMC 3582252. PMID 23190365 .
- ^ Wu, Xiao-Chun; Russell, Anthony P. (1997). „Funktionelle Morphologie“. In: Kevin Padian; Philip J. Currie (Hrsg.). Enzyklopädie der Dinosaurier . San Diego: Academic Press. S. 258–268 . ISBN 978-0-12-226810-6Die
- Holliday , Casey M.; Witmer, Lawrence M. (2008). „Schädelkinese bei Dinosauriern: Intrakranielle Gelenke, Protraktormuskeln und ihre Bedeutung für die Schädelentwicklung und -funktion bei Diapsiden“. Journal of Vertebrate Paleontology . 28 ( 4 ): 1073–1088 . Bibcode : 2008JVPal..28.1073H . doi : 10.1671/ 0272-4634-28.4.1073 . S2CID 15142387 .
- Faux , Cynthia Marshall; Padian, Kevin (2007). „Die opisthotonische Haltung von Wirbeltierskeletten: postmortale Kontraktion oder Todesqualen?“ . Paleobiology . 33 (2): 201–226 . Bibcode : 2007Pbio...33..201F . doi : 10.1666/06015.1 . ISSN 0094-8373 . S2CID 86181173 .
- Reisdorf , AG ; Wuttke, M. (2012). „ Neubewertung von Moodies Opisthotonus-Hypothese bei fossilen Wirbeltieren. Teil I: Reptilien – Die Taphonomie der zweibeinigen Dinosaurier Compsognathus longipes und Juravenator starki aus dem Solnhofener Archipel (Jura, Deutschland)“. Palaeobiodiversity and Palaeoenvironments . 92 (1): 119–168 . Bibcode : 2012PdPe...92..119R . doi : 10.1007/s12549-011-0068-y . S2CID 129785393 .
- ^ LeBlanc, Aaron RH; Reisz, Robert R.; Evans, David C.; Bailleul, Alida M. (2016). „Ontogenese enthüllt Funktion und Evolution des Gebisses der Hadrosaurier“ . BMC Evolutionary Biology . 16 (1): 152. Bibcode : 2016BMCEE..16..152L . doi : 10.1186 / s12862-016-0721-1 . ISSN 1471-2148 . PMC 4964017. PMID 27465802 .
- ^ a b c Martin, Anthony J. (2006). Einführung in das Studium der Dinosaurier (2. Aufl.). Blackwell Publishing. ISBN 978-1-4051-3413-2Die
- ^ Erickson, Gregory M. (1997). „Zahnersatzmuster“. In: Kevin Padian; Philip J. Currie (Hrsg.). Enzyklopädie der Dinosaurier . San Diego: Academic Press. S. 739–740 . ISBN 978-0-12-226810-6Die
- ^ Colbert, Edwin Harris (1964). „Verwandtschaftsverhältnisse der Saurischier“. American Museum Novitates (2181): 1–24 .
- ^ Galton, Peter M. (01.12.1977). „Über Staurikosaums pricei , einen frühen saurischen Dinosaurier aus der Trias Brasiliens, mit Anmerkungen zu den Herrerasauridae und Poposauridae“. Paläontologische Zeitschrift . 51 (3): 234–245 . Bibcode : 1977PalZ...51..234G . doi : 10.1007/BF02986571 . ISSN 1867-6812 . S2CID 129438498 .
- ^ a b c Dodson, P.; Forster, C. A.; Sampson, S. D. (2004), „Ceratopsidae“, in Weishampel, D. B.; Dodson, P.; Osmólska, H. (Hrsg.), The Dinosauria (2. Aufl.), Berkeley: University of California Press, S. 494–513 , ISBN 978-0-520-25408-4
- ^ a b Makovicky, P. (2012). „Marginocephalia“. In: Brett-Surman, MK; Holtz, TR; Farlow, JO (Hrsg.). The Complete Dinosaur (2. Aufl.). Indiana University Press. S. 526–549 . ISBN 978-0-253-00849-7Die
- Horner , John R.; Goodwin, Mark B. ( 2008). „ Ontogenese der kranialen Epiossifikationen bei Triceratops “. Journal of Vertebrate Paleontology . 28 (1): 134–144 . doi : 10.1671/0272-4634(2008)28[134:OOCEIT]2.0.CO ; 2 . S2CID 86291412 .
- ^ a b c Witmer, Lawrence M. (2001) . „Die Position der Nasenlöcher bei Dinosauriern und anderen Wirbeltieren und ihre Bedeutung für die Nasenfunktion“. Science . 293 (5531): 850–853 . doi : 10.1126/science.1062681 . PMID 11486085. S2CID 7328047 .
- ^ Witmer, Lawrence M. (1997). „Die Evolution der Antorbitalhöhle der Archosaurier: Eine Studie zur Weichteilrekonstruktion im Fossilienbestand mit einer Analyse der Funktion der Pneumatisierung“. Journal of Vertebrate Paleontology . 17 (S1): 1–76 . Bibcode : 1997JVPal..17S...1W . doi : 10.1080/02724634.1997.10011027 .
- ^ Cau, Andrea; Beyrand, Vincent; Barsbold, Rinchen; Tsogtbaatar, Khishigjav; Godefroit, Pascal (19. Juli 2021). „Ungewöhnlicher Brustapparat bei einem Raubsaurier löst Homologie des Gabelbeins bei Vögeln“. Scientific Reports . 11 (1): 14722. doi : 10.1038/s41598-021-94285-3 .
- ^ Claessens, Leon PAM (2004). „Dinosaurier-Gastralien: Ursprung, Morphologie und Funktion“ (PDF) . Journal of Vertebrate Paleontology . 24 (1): 89–106 . Bibcode : 2004JVPal..24...89C . doi : 10.1671/A1116-8 . S2CID 53318713 .
- ^ Hieronymus, Tobin; Witmer, Lawrence (2004). „Schädelrauhigkeit und Dinosaurierhörner: Nashorn und Giraffe als Modellsysteme für die Hautrekonstruktion bei fossilen Taxa“. Journal of Vertebrate Paleontology . Band 24. S. 70–70A.
- ^ Apesteguía, Sebastián (2005). „Evolution des Hyposphen-Hypantrum-Komplexes innerhalb der Sauropoda“. In: Virginia Tidwell; Kenneth Carpenter (Hrsg.). Donner-Echsen: Die Sauropodomorpha-Dinosaurier . Indiana University Press. ISBN 978-0-253-34542-4Die
- ^ Langer, Max C.; Benton, Michael J. (2006). „Frühe Dinosaurier: Eine phylogenetische Studie“. Journal of Systematic Palaeontology . 4 (4): 309–358 . Bibcode : 2006JSPal...4..309L . doi : 10.1017/S1477201906001970 . S2CID 55723635 .
- ^ a b Gauthier, Jacques (1986). „Die saurischische Monophylie und der Ursprung der Vögel“. Memoirs of the California Academy of Sciences . 8 : 1–55 .
- ^ Novas , Fernando E. (1996) . „Dinosaurier-Monophylie“. Zeitschrift für Wirbeltierpaläontologie . 16 (4): 723–741 . Bibcode : 1996JVPal..16..723N . doi : 10.1080/02724634.1996.10011361 .
- Hutchinson , John R. (2001). „ Die Evolution der Beckenosteologie und der Weichteile in der Linie zu den rezenten Vögeln (Neornithes)“ . Zoological Journal of the Linnean Society . 131 (2): 123–168 . doi : 10.1111/ j.1096-3642.2001.tb01313.x .
- ^ a b Li, D.; Morschhauser, EM; You, H.; Dodson, P. (2019). „Die Anatomie des Synzervikals von Auroraceratops (Ornithischia: Ceratopsia), dem ältesten bekannten Ceratopsier-Syncervikal“. Journal of Vertebrate Paleontology . 38 (S1): 69–74 . doi : 10.1080/02724634.2018.1510411 .
- ^ Nesbitt, SJ (29.04.2011). „Die frühe Evolution der Archosaurier: Verwandtschaftsverhältnisse und der Ursprung wichtiger Kladen“ . Bulletin of the American Museum of Natural History . 352 : 1–292 . doi : 10.1206/352.1 . hdl : 2246/6112 . ISSN 0003-0090 . S2CID 83493714 .
- Budney , Lisa A.; Caldwell, Michael W.; Albino, Adriana (2006). „Histologie der Zahnfächer bei der Kreidezeitschlange Dinilysia , mit einer Übersicht über das Zahnhaltegewebe von Amnioten“. Journal of Vertebrate Paleontology . 26 (1): 138–145 . doi : 10.1671/0272-4634(2006)26[138:TSHITC]2.0.CO;2 . S2CID 86130973 .
- ^ Reid, REH (1997). „Histologie der Knochen und Zähne“. In: Kevin Padian; Philip J. Currie (Hrsg.). Enzyklopädie der Dinosaurier . San Diego: Academic Press. S. 329–339 . ISBN 978-0-12-226810-6Die
- ^ Wilson, JA (1999). „Eine Nomenklatur für Wirbellamellen bei Sauropoden und anderen Saurischiern“ . Journal of Vertebrate Paleontology . 19 (4): 639–653 . Bibcode : 1999JVPal..19..639W . doi : 10.1080/02724634.1999.10011178 .
- ^ Frankfurt, Nicholas G.; Chiappe, Luis M. (1999). „Ein möglicher Oviraptorosaurier aus der späten Kreidezeit Nordwestargentiniens“. Journal of Vertebrate Paleontology . 19 (1): 101–105 . Bibcode : 1999JVPal..19..101F . doi : 10.1080/02724634.1999.10011126 . ISSN 0272-4634 .
- ^ Schünke, M.; Schulte, E.; Schumacher, U. (2006). Ross, LM; Lamperti, ED (Hrsg.). Thieme Atlas der Anatomie: Allgemeine Anatomie und Bewegungsapparat . Thieme. ISBN 978-3-13-142071-8Die
- Wagner , Günter P.; Chiu, Chi-Hua (2001). „Die Tetrapodengliedmaße: Eine Hypothese zu ihrem Ursprung“. Journal of Experimental Zoology Part A: Ecological Genetics and Physiology . 291 (3): 226–240 . Bibcode : 2001JEZ...291..226W . doi : 10.1002/jez.1100 . PMID 11598912 .
- Beisaw , April M. (2013). Identifizierung und Interpretation von Tierknochen: Ein Handbuch . Texas A&M University Press. ISBN 978-1-62349-082-9Die
- ^ Padian, Kevin (1997). „Saurischia“. In: Kevin Padian; Philip J. Currie (Hrsg.). Encyclopedia of dinosaurs . San Diego: Academic Press. S. 647–653 . ISBN 978-0-12-226810-6Die
- ^ a b c Ali, Farheen; Zelenitsky, Darla K.; Therrien, François; Weishampel, David B. (2008). „Homologie des „Ethmoidkomplexes“ der Tyrannosauriden und ihre Bedeutung für die Rekonstruktion des olfaktorischen Apparats nicht-avianer Theropoden“. Journal of Vertebrate Paleontology . 28 (1): 123–133 . doi : 10.1671/0272-4634(2008)28[123:HOTECO]2.0.CO;2 . S2CID 85751740 .
- ^ Brown, Caleb Marshall; Russell, Anthony P. (2012). „Homologie und Architektur des Schwanzkorbs der Pachycephalosauria (Dinosauria: Ornithischia): das erste Auftreten von Myorhabdoi bei Tetrapoda“ . PLOS ONE . 7 (1): –30212. Bibcode : 2012PLoSO...730212B . doi : 10.1371/journal.pone.0030212 . PMC 3260247. PMID 22272307 .
- ^ a b c Novas, Fernando E. (2009). Das Zeitalter der Dinosaurier in Südamerika . Bloomington: Indiana University Press. ISBN 978-0-253-35289-7Die
- ^ a b c Bailey, Jack Bowman (1997-11-01). „Verlängerung der Neuraldornen bei Dinosauriern: Segelrücken oder Büffelrücken?“ . Journal of Paleontology . 71 (6): 1124– 1146. Bibcode : 1997JPal...71.1124B . doi : 10.1017/S0022336000036076 . ISSN 0022-3360 . JSTOR 1306608 . S2CID 130861276 .
- ^ Upchurch, P.; Barrett, PM; Dodson, P. (2004). „Sauropoda“. In: Weishampel, DB; Dodson, P.; Osmolska, H. (Hrsg.). The Dinosauria, Second Edition . University of California Press, Berkeley. S. 259–322 . ISBN 978-0-520-24209-8Die
- ^ a b Holtz JR., TR; Molnar, RE; Currie, PJ (2004). „Basal Tetanurae“. In: David B. Weishampel; Peter Dodson; H. Osmólska (Hrsg.). The Dinosauria (2. Aufl.). Berkeley: University of California Press. S. 71–110 . ISBN 978-0-520-24209-8Die
- ^ Holtz, Thomas R. (2004). „Tyrannosauroidea“. In: David B. Weishampel, Peter Dodson, H. Osmólska (Hrsg.). The Dinosauria (2. Aufl.). Berkeley: University of California Press. S. 111–136 . ISBN 978-0-520-24209-8Die
- ^ Osmólska, Halszka; Currie, Philip J.; Barsbold, Rinchen (2004). „Oviraptorosauria“. In: David B. Weishampel; Peter Dodson; H. Osmólska (Hrsg.). The Dinosauria (2. Aufl.). Berkeley: University of California Press. S. 165–183 . ISBN 978-0-520-24209-8Die
- ^ a b c d Fastovsky, David E. & Weishampel, David B. (2009). Dinosaurier: Eine prägnante Naturgeschichte . Cambridge, GBR: Cambridge University Press. P. 358. ISBN 978-0-511-47789-8Die
- ^ Ford, Tracy L. (2000). „Eine Übersicht über Ankylosaurier-Osteoderme aus New Mexico und eine vorläufige Übersicht über die Panzerung von Ankylosauriern“. New Mexico Museum of Natural History and Science Bulletin . 17 : 157–176 .
- ^ Arbour, Victoria M.; Burns, Michael E.; Bell, Phil R.; Currie, Philip J. (2014). „Epidermale und dermale Integumentstrukturen von Ankylosauriern“. Journal of Morphology . 275 (1): 39–50 . Bibcode : 2014JMorp.275...39A . doi : 10.1002 / jmor.20194 . PMID 24105904. S2CID 35121589 .
- ^ D'Emic, Michael D.; Wilson, Jeffrey A.; Chatterjee, Sankar (2009). „Die Osteodermfunde von Titanosauriern (Dinosauria: Sauropoda): Übersicht und erstes definitives Exemplar aus Indien“. Journal of Vertebrate Paleontology . 29 (1): 165–177 . Bibcode : 2009JVPal..29..165D . doi : 10.1671/039.029.0131 . S2CID 85991253 .
- ^ Padian, Kevin (1997). „Ornithischia“. In: Kevin Padian; Philip J. Currie (Hrsg.). Encyclopedia of dinosaurs . San Diego: Academic Press. S. 494–498 . ISBN 978-0-12-226810-6Die
- ^ a b Thulborn, Richard A. (1990). Dinosaurierspuren . London, New York: Chapman and Hall. ISBN 978-0-412-32890-9Die
- ^ Currie, Philip J.; Sarjeant, William AS (1979). „Fußabdrücke von Dinosauriern aus der Unterkreide im Peace River Canyon, British Columbia, Kanada“ (PDF) . Palaeogeography, Palaeoclimatology, Palaeoecology . Trace Fossils. 28 : 103–115 . Bibcode : 1979PPP....28..103C . doi : 10.1016/0031-0182(79)90114-7 . ISSN 0031-0182 .
- ^ Hyman, Libbie Henrietta (1942). Vergleichende Wirbeltieranatomie (2. Aufl.). Chicago, Illinois, USA: The University of Chicago Press. S. 177 .
- ^ Coombs, Walter P. (1972). „Das knöcherne Augenlid von Euoplocephalus (Reptilia, Ornithischia)“ . Journal of Paleontology . 46 (5): 637–650 . ISSN 0022-3360 . JSTOR 1303019 .
- ^ Dodson, Peter (1993). „Vergleichende Kraniologie der Ceratopsier“. American Journal of Science . 293 (A): 200–234 . Bibcode : 1993AmJS..293..200D . doi : 10.2475/ajs.293.A.200 .
- ^ Naish, D. (2012). „Vögel“. In: Michael K. Brett-Surman; Thomas R. Holtz; James Orville Farlow (Hrsg.). Der vollständige Dinosaurier . Indiana University Press. S. 379–423 .
- ^ a b Paulina Carabajal, Ariana; Carballido, José L.; Currie, Philip J. (2014). „Hirnschädel, Neuroanatomie und Nackenhaltung von Amargasaurus cazaui (Sauropoda, Dicraeosauridae) und ihre Bedeutung für das Verständnis der Kopfhaltung bei Sauropoden“. Journal of Vertebrate Paleontology . 34 (4): 870–882 . Bibcode : 2014JVPal..34..870P . doi : 10.1080/02724634.2014.838174 . hdl : 11336/19365 . S2CID 85748606 .
- ^ Edinger, Tilly (1955). „Die Größe des Foramen parietale und des Organs parietale bei Reptilien: eine Richtigstellung“ . Bulletin of the Museum of Comparative Zoology . 114 : 1–34 . Archiviert vom Original am 1. Dezember 2017.
- Lehman , Thomas M. (1996). „Ein gehörnter Dinosaurier aus der El Picacho Formation in Westtexas und eine Übersicht über Ceratopsier-Dinosaurier aus dem amerikanischen Südwesten“ . Journal of Paleontology . 70 (3): 494–508 . Bibcode : 1996JPal...70..494L . doi : 10.1017/S0022336000038427 . S2CID 132470348 .
- Harris , Jerald D. (2006). „Die Bedeutung von Suuwassea emilieae (Dinosauria: Sauropoda) für die Verwandtschaftsverhältnisse und Evolution der Flagellicaudata“. Journal of Systematic Palaeontology . 4 (2): 185–198 . Bibcode : 2006JSPal...4..185H . doi : 10.1017/S1477201906001805 . S2CID 9646734 .
- ^ Apaldetti, Cecilia; Martinez, Ricardo N.; Pol, Diego; Souter, Thibaud (2014). „Neubeschreibung des Schädels von Coloradisaurus brevis (Dinosauria, Sauropodomorpha) aus der spät-triassischen Los-Colorados-Formation des Ischigualasto-Villa-Unión-Beckens, Nordwestargentinien“. Journal of Vertebrate Paleontology . 34 (5): 1113–1132 . Bibcode : 2014JVPal..34.1113A . doi : 10.1080/02724634.2014.859147 . hdl : 11336/36518 . S2CID 86158311 .
- ^ Langer, Max C. (2004). „Basale Saurischia“. In: David B. Weishampel, Peter Dodson, H. Osmólska (Hrsg.). Die Dinosaurier (2. Aufl.). Berkeley: University of California Press. S. 25–46 . ISBN 978-0-520-24209-8Die
- ^ Padian, Kevin (1997). „Phylogenie der Dinosaurier“. In: Kevin Padian; Philip J. Currie (Hrsg.). Enzyklopädie der Dinosaurier . San Diego: Academic Press. S. 646–651 . ISBN 978-0-12-226810-6Die
- ^ Rasskin-Gutman, D. (1997). „Becken, vergleichende Anatomie“. In: Kevin Padian; Philip J. Currie (Hrsg.). Enzyklopädie der Dinosaurier . San Diego: Academic Press. S. 536–540 . ISBN 978-0-12-226810-6Die
- Schachner , Emma R.; Lyson, Tyler R.; Dodson, Peter (2009). „Evolution des Atmungssystems bei nicht-aviären Theropoden: Evidenz aus der Rippen- und Wirbelmorphologie“ . The Anatomical Record: Advances in Integrative Anatomy and Evolutionary Biology . 292 (9): 1501–1513 . doi : 10.1002/ar.20989 . PMID 19711481 .
- ^ a b Hone, DWE; Holtz, TR (2017). „Ein Jahrhundert Spinosaurier – Eine Übersicht und Revision der Spinosauridae mit Anmerkungen zu ihrer Ökologie“ . Acta Geologica Sinica – Englische Ausgabe . 91 (3): 1120–1132 . Bibcode : 2017AcGlS..91.1120H . doi : 10.1111/1755-6724.13328 . ISSN 1000-9515 . S2CID 90952478 .
- ^ Ortega, F.; Escaso, F.; Sanz, JL (2010). „Ein bizarrer, buckliger Carcharodontosauria (Theropoda) aus der Unterkreide Spaniens“ ( PDF) . Nature . 467 (7312): 203–206 . Bibcode : 2010Natur.467..203O . doi : 10.1038/nature09181 . PMID 20829793. S2CID 4395795. Archiviert vom Original (PDF) am 08.10.2018 . Abgerufen am 27.11.2018 .
- ^ Allain, R.; Xaisanavong, T.; Richir, P.; Khentavong, B. (2012). „Der erste eindeutige asiatische Spinosauride (Dinosauria: Theropoda) aus der frühen Kreidezeit von Laos“. Naturwissenschaften . 99 (5): 369–377 . Bibcode : 2012NW.....99..369A . doi : 10.1007/ s00114-012-0911-7 . PMID 22528021. S2CID 2647367 .
- ^ Eddy, DR; Clarke, JA (2011). „Neue Erkenntnisse zur Schädelanatomie von Acrocanthosaurus atokensis und ihre Bedeutung für die Phylogenie der Allosauroidea (Dinosauria: Theropoda)“ . PLOS ONE . 6 (3) e17932. Bibcode : 2011PLoSO...617932E . doi : 10.1371/ journal.pone.0017932 . PMC 3061882. PMID 21445312 .
- ^ Benton, Michael J. (2012). Prähistorisches Leben . Edinburgh, Schottland: Dorling Kindersley. S. 338. ISBN 978-0-7566-9910-9Die
- ^ Prieto-Márquez, A.; Chiappe, LM; Joshi, SH (2012). Dodson, Peter (Hrsg.). „ Der Lambeosaurine-Dinosaurier Magnapaulia laticaudus aus der späten Kreidezeit von Baja California, Nordwestmexiko“ . PLOS ONE . 7 (6) e38207. Bibcode : 2012PLoSO...738207P . doi : 10.1371/journal.pone.0038207 . PMC 3373519. PMID 22719869 .
- ^ Paul, GS (2010). The Princeton Field Guide to Dinosaurs . Princeton University Press . S. 208–209 .
- ^ Schmitz, Lars (2009). „ Quantitative Schätzungen visueller Leistungsmerkmale bei fossilen Vögeln“. Journal of Morphology . 270 (6): 759–773 . Bibcode : 2009JMorp.270..759S . CiteSeerX 10.1.1.537.3346 . doi : 10.1002/jmor.10720 . PMID 19123246. S2CID 309861 .
- ^ Yamashita, Momo; Konishi, Takuya; Sato, Tamaki (18.02.2015). „Sklerotische Ringe bei Mosasauriern (Squamata: Mosasauridae): Strukturen und taxonomische Vielfalt“ . PLUS EINS . 10 (2): –0117079. Bibcode : 2015PLoSO..1017079Y . doi : 10.1371/journal.pone.0117079 . ISSN 1932-6203 . PMC 4334958 . PMID 25692667 .
- ^ a b Vickaryous, MK; Maryańska, TM; Weishampel, DB (2004). „Ankylosauria“. In: David B. Weishampel; Peter Dodson; H. Osmólska (Hrsg.). The Dinosauria (2. Aufl.). Berkeley: University of California Press. S. 363–392 . ISBN 978-0-520-24209-8Die
- ^ Sales, Marcos AF; Schultz, Cesar L. (06.11.2017). „Spinosaurier-Taxonomie und Evolution kraniodentaler Merkmale: Erkenntnisse aus Brasilien“ . PLOS ONE . 12 (11): –0187070. Bibcode : 2017PLoSO..1287070S . doi : 10.1371 / journal.pone.0187070 . ISSN 1932-6203 . PMC 5673194. PMID 29107966 .
- ^ Galton, PM (2012). „Stegosaurier“. In: Brett-Surman, MK; Holtz, TR; Farlow, JO (Hrsg.). The Complete Dinosaur (2. Aufl.). Indiana University Press. S. 482–504 . ISBN 978-0-253-00849-7Die
- ^ Galton, Peter M.; Upchurch, Paul (2004). „Prosauropoda“. In: David B. Weishampel; Peter Dodson; H. Osmólska (Hrsg.). Die Dinosaurier (2. Aufl.). Berkeley: University of California Press. S. 232–258 . ISBN 978-0-520-24209-8Die
- ^ a b c d e f g h Hendrickx, Christophe; Mateus, Octávio; Araújo, Ricardo (2015). „Eine vorgeschlagene Terminologie der Theropodenzähne (Dinosauria, Saurischia)“ . Zeitschrift für Wirbeltierpaläontologie . 35 (5): –982797. Bibcode : 2015JVPal..35E2797H . doi : 10.1080/02724634.2015.982797 . S2CID 85774247 .
- ^ D'Amore, Domenic C.; Blumenschine, Robert J. (2012). „Vorhersage der Körpergröße theropoder Dinosaurier anhand von Zahnabdrücken an Knochen: ein Modell basierend auf Fressbeobachtungen von Varanus komodoensis , dem Komodowaran“. Paleobiology . 38 (1): 79–100 . Bibcode : 2012Pbio...38...79D . doi : 10.1017/S0094837300000415 .
- ^ Abler, William L. (1992). „Die gezackten Zähne der Tyrannosauriden und Beißstrukturen bei anderen Tieren“. Paleobiology . 18 (2): 161–183 . Bibcode : 1992Pbio...18..161A . doi : 10.1017/S0094837300013956 . S2CID 88238481 .
- ^ a b Welles, SP (1984). " Dilophosaurus wetherilli (Dinosauria, Theropoda), osteology and comparisons". Palaeontographica Abteilung A . 185 : 85– 180.
- ^ Paul, GS (1988). Raubtiere der Dinosaurier der Welt . New York: Simon & Schuster. S. 271–274 . ISBN 978-0-671-61946-6Die
- ^ Charig, AJ; Milner, AC (1997). " Baryonyx walkeri , ein fischfressender Dinosaurier aus dem Wealden von Surrey" . Bulletin of the Natural History Museum of London . 53 : 11–70 .
- ^ Welles, SP (1970). " Dilophosaurus (Reptilia: Saurischia), ein neuer Name für einen Dinosaurier" . Journal of Paleontology . 44 (5): 989. JSTOR 1302738 .
- ^ Benton, Michael (2014). Wirbeltierpaläontologie (4. Aufl.). John Wiley & Sons. ISBN 978-1-118-40764-6Die
- Martinez , Ricardo N.; Sereno, Paul C.; Alcober, Oscar A.; Colombi, Carina E.; Renne, Paul R.; Montañez, Isabel P.; Currie, Brian S. (14.01.2011). „Ein basaler Dinosaurier aus der Frühzeit des Dinosaurierzeitalters im südwestlichen Pangaea“. Science . 331 (6014): 206–210 . Bibcode : 2011Sci...331..206M . doi : 10.1126/science.1198467 . hdl : 11336/69202 . PMID: 21233386. S2CID : 33506648 .
- ^ Weishampel, David B. (1991). „Ein theoretisch-morphologischer Ansatz zum Zahnersatz bei niederen Wirbeltieren“. In: Schmidt-Kittler, N.; Vogel, Klaus (Hrsg.). Konstruktionsmorphologie und Evolution . Springer. S. 295–310 .