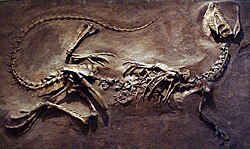
Torvosaurus ( / ˌ t ɔːr v oʊ ˈ s ɔːr ə s / ) ist eine Gattung großer Megalosaurinen -Theropoden , die vor etwa 165 bis 146,5 Millionen Jahren im Callovium bis Tithonium des späten Mittel- und Oberjura in Gebieten des heutigen Colorado , Portugal , Deutschland und möglicherweise auch England , Spanien , Tansania und Uruguay lebten . Sie umfasst zwei derzeit anerkannte Arten , Torvosaurus tanneri und Torvosaurus gurneyi , sowie eine dritte, unbenannte Art aus Deutschland. [ 3 ]
1979 wurde die Typusart Torvosaurus tanneri beschrieben. Mit einer Länge von rund 9 Metern und einem Gewicht von etwa 2–2,4 Tonnen zählte T. tanneri zu den größten Landraubtieren Nordamerikas im späten Jura. Exemplare von Torvosaurus gurneyi erreichten eine Länge von bis zu 10 Metern und eine Körpermasse von 4–5 Tonnen [ 4 ] , was darauf hindeutet, dass er deutlich größer als T. tanneri war und im späten Jura das größte Landraubtier Europas darstellte. Aufgrund der Knochenmorphologie wird angenommen, dass Torvosaurus sehr kräftige kurze Arme besaß.
Entdeckung

Fossilien des Torvosaurus wurden in Nordamerika , Portugal , Deutschland und möglicherweise auch in England , Spanien , Tansania und Uruguay gefunden. Die ersten dem Torvosaurus zugeordneten Überreste wurden 1899 von Elmer Riggs in den „Freeze-out Hills“ im Südosten Wyomings , 18 Kilometer nordwestlich von Medicine Bow , entdeckt . Das Material bestand aus Teilen des linken Fußes und der rechten Hand und wurde ins Field Museum of Natural History in Chicago gebracht , wo es bis zu seiner Wiederentdeckung um das Jahr 2010 aufbewahrt wurde. Das Exemplar wurde nach seiner Beschreibung im Jahr 2014 dem Torvosaurus tanneri zugeordnet. [ 5 ]
Weitere Überreste eines großen Theropoden , der heute als Torvosaurus gilt , wurden in der Tendaguru-Formation in Tansania entdeckt und 1920 von Werner Janensch anhand des Exemplars MB R 1050, einem 12 cm langen Zahn aus Deutsch-Ostafrika (heute Tansania), als „ Megalosaurus “ ingens benannt . [ 6 ] Er wurde später zunächst als wahrscheinliches Mitglied der Carcharodontosauridae und 2020 schließlich als wahrscheinliches Mitglied der Gattung Torvosaurus neu klassifiziert. [ 7 ] Obwohl er zunächst nur als Torvosaurus sp. bezeichnet wurde , merkte ein Kommentator an, dass er möglicherweise auch Torvosaurus ingens heißen könnte . [ 8 ] [ 9 ] Soto et al. beschrieben Zähne eines Vertreters der Gattung Torvosaurus aus der Tacuarembó-Formation in Uruguay . Die Autoren stellten fest, dass einige der von Werner Janensch abgebildeten Exemplare von „ Megalosaurus“ ingens Merkmale des uruguayischen Materials aufweisen und vermuteten, dass die Funde aus Tansania und Uruguay aufgrund der geografischen Nähe zum selben Taxon gehören könnten. Sie kamen jedoch letztendlich zu dem Schluss, dass sie allein anhand der Zähne keine abgeleiteten Merkmale aufweisen, die sie von den beschriebenen Arten der Gattung, T. tanneri und T. gurneyi , unterscheiden . [ 7 ] [ 10 ] Rauhut et al. hingegen halten die Zähne für nicht diagnostisch, da sie in Größe und Form mit einer Vielzahl anderer Theropoden (einschließlich Carcharodontosauriden) übereinstimmen, weshalb sie deren Zuordnung zur Gattung als problematisch ansehen. [ 3 ]
1971 entdeckte Vivian Jones aus Delta, Colorado , im Steinbruch Calico Gulch im Moffat County eine einzelne, riesige Daumenkralle eines Theropoden. Sie zeigte sie James Alvin Jensen , einem Sammler der Brigham Young University . Auf der Suche nach vergleichbaren Fossilien lenkte Vivians Ehemann Daniel Eddie Jones Jensens Aufmerksamkeit auf den Steinbruch Dry Mesa , wo in Gesteinen der Morrison-Formation zahlreiche Knochen riesiger Theropoden sowie Überreste von Supersaurus gefunden wurden . Ab 1972 wurde die Fundstätte von Jensen und Kenneth Stadtman ausgegraben. Die Typusart Torvosaurus tanneri wurde 1979 von Peter Malcolm Galton und Jensen benannt und beschrieben . [ 11 ] Der Gattungsname Torvosaurus leitet sich vom lateinischen Wort torvus , was „Wilder“ bedeutet, und dem griechischen Wort sauros (σαυρος), was „Echse“ bedeutet, ab. [ 12 ] Der Artname tanneri stammt von Nathan Eldon Tanner , dem Ersten Ratgeber in der Ersten Präsidentschaft der Kirche Jesu Christi der Heiligen der Letzten Tage .
1985 konnte Jensen über eine beträchtliche Menge zusätzlichen Materials berichten, darunter die ersten Schädelelemente. [ 13 ] Die Fossilien aus Colorado wurden 1991 von Brooks Britt weiter beschrieben. [ 14 ] Der Holotypus , BYU 2002, bestand ursprünglich aus Ober- und Unterarmknochen. Zu den Paratypen gehörten einige Wirbelsäulen-, Hüft- und Handknochen. [ 11 ] Mit dem 1985 beschriebenen Material fehlen hauptsächlich der Schultergürtel und der Oberschenkelknochen. [ 14 ] Die ursprüngliche Daumenkralle, Exemplar BYUVP 2020, wurde nur vorläufig zugeordnet, da sie an einer 195 Kilometer (121 Meilen) vom Dry Mesa Quarry entfernten Fundstelle entdeckt worden war. [ 11 ] Der Holotypus und die Paratypen repräsentierten mindestens drei Individuen: zwei adulte und ein juveniles Exemplar. [ 14 ] 1991 kam Britt zu dem Schluss, dass es keinen Beweis dafür gebe, dass die Vordergliedmaßen des Holotyps zusammengehörten, und wählte den linken Oberarmknochen als Lectotyp . [ 14 ] Mehrere einzelne Knochen und Zähne, die an anderen amerikanischen Fundorten entdeckt wurden, wurden Torvosaurus zugeordnet . [ 14 ]

1992 wurden in Como Bluff, Wyoming , Fossilien eines großen Theropoden entdeckt, die Schädel-, Schultergürtel-, Becken- und Rippenelemente enthielten. Robert T. Bakker et al. benannten sie als die Art Edmarka rex . Bakker et al. waren von der Größe Edmarkas beeindruckt und bemerkten, dass sie „in ihrer Gesamtlänge mit T. rex konkurrieren würde “. Sie betrachteten diese ungefähre Größe als „natürliche Obergrenze für fleischfressende Dinosaurier“ [ 15 ] . Edmarka wurde oft als jüngeres Synonym von Torvosaurus angesehen [ 16 ] , eine detaillierte Analyse steht jedoch noch aus [ 17 ] . Am selben Fundort wurden vergleichbare Überreste entdeckt, für die der Nomen nudum Brontoraptor verwendet wurde [ 18 ] [ 19 ] . Die meisten Forscher betrachten beide Exemplare heute als zu Torvosaurus tanneri gehörig . [ 4 ] Edmarka rex und Brontoraptor müssen jedoch neu klassifiziert werden, um festzustellen, ob sie tatsächlich zu T. tanneri gehören , da alle vor ihrer Entdeckung beschriebenen Exemplare darauf hindeuten, dass sie ihre adulte Größe erreicht hatten und beiden unvollständigen Exemplaren detaillierte osteologische Beschreibungen fehlen. [ 20 ]
Im Jahr 2012 wurde in Colorado im Skull Creek Quarry, einem Aufschluss der Morrison-Formation, ein noch unbeschriebenes, zu 55 % vollständiges Exemplar entdeckt. Das Exemplar, das den Spitznamen „Elvis“ erhielt, umfasste Becken-, Wirbelsäulen- und Hinterbeinknochen, eine vollständige, zugehörige Wirbelsäule sowie Schädelteile. Es ist das bisher vollständigste gefundene Torvosaurus -Exemplar. [ 21 ] Ein montiertes Skelett des Exemplars, dessen fehlende Teile mithilfe von Abgüssen anderer Torvosaurus- Exemplare rekonstruiert wurden, ist derzeit im Museum of Natural History & Science in Cincinnati ausgestellt. [ 21 ] [ 22 ]
Im Jahr 2000 wurde Material aus Portugal von Octávio Mateus und Miguel Telles Antunes einer Torvosaurus sp. zugeordnet . [ 23 ] 2006 wurden Fossilien aus der portugiesischen Lourinhã-Formation Torvosaurus tanneri zugeordnet . [ 24 ] 2012 kamen Matthew Carrano et al. jedoch zu dem Schluss, dass dieses Material nicht genauer als eine Torvosaurus sp. bestimmt werden könne. [ 25 ] 2013 und 2014 wurden Eier mit und ohne Embryonen aus Portugal gemeldet und Torvosaurus zugeordnet . [ 26 ] [ 27 ] Die Art aus Portugal wurde 2014 zu Ehren von James Gurney , dem Autor der Dinotopia- Buchreihe, T. gurneyi genannt . Es handelt sich um den größten bekannten Theropoden Europas, obwohl ein isolierter vorderer Schwanzwirbel aus der Vega-Formation in Spanien , der möglicherweise zu Torvosaurus oder einem eng verwandten Taxon gehört, etwa 15 % größer ist als der von T. gurneyi gefundene. [ 4 ] [ 28 ] Einer der Beschreiber von T. gurneyi argumentierte, dass der riesige Wirbel aus der Vega-Formation wahrscheinlich zu T. gurneyi gehört . [ 29 ] Die morphologische Einzigartigkeit des Holotypus-Maxillare ML1100 führte zur Benennung der portugiesischen Art. [ 4 ] Im Jahr 2017 wurde eine Reihe portugiesischer Schädelfunde, die Torvosaurus zugeordnet wurden, beschrieben, darunter ein Exemplar, das als zu demselben Individuum wie der Holotypus von Torvosaurus gurneyi gehörig interpretiert wird . [ 30 ]
Im Jahr 2020 beschrieben Soto et al. den Zahn FC-DPV 2971 aus Uruguay als zu einer neuen, unbenannten Art von Torvosaurus gehörig . [ 7 ] Sie ordneten außerdem Megalosaurus / Ceratosaurus ingens (Exemplar MB R 1050) aus Tansania der Gattung Torvosaurus zu . [ 7 ] Ebenfalls im Jahr 2020 wurde ein fragmentarischer Oberkiefer aus der Ornatenton-Formation ( mittleres Callovium) in Deutschland beschrieben , der Torvosaurus zugeordnet werden kann. Dies ist der bisherige Nachweis der Gattung und legt nahe, dass die Megalosaurinen ihren Ursprung in Europa hatten oder dass Europa zumindest vom mittleren bis zum frühen Oberjura ein biogeografischer Drehpunkt für sie war. Weitere mögliche Torvosaurus- Funde in Europa sind fragmentarische Überreste aus dem Kimmeridge Clay in England, die möglicherweise zur Gattung gehören. [ 3 ] Diese bestehen aus einem Schienbein (OUMNH J.29886) und einem Oberkieferfragment, die unabhängig voneinander gefunden wurden. [ 25 ]
Beschreibung
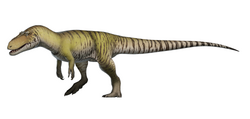

Torvosaurus war ein sehr großer und kräftiger Raubsaurier. T. tanneri wird auf eine Länge von 9–10 Metern und ein Gewicht von 2–2,5 Tonnen geschätzt. [ 11 ] [ 14 ] [ 31 ] [ 32 ] [ 33 ] [ 34 ] Basierend auf den Überresten von Edmarka und Brontoraptor, die üblicherweise als Synonyme gelten, wurde auch eine Länge von 12 Metern für T. tanneri angegeben. [ 35 ] [ 36 ] Es ist jedoch möglich, dass Edmarka rex und Brontoraptor nicht mit Torvosaurus identisch waren . [ 37 ] T. gurneyi wird auf eine Länge von 10 Metern und ein Gewicht von 4–5 Tonnen geschätzt. [ 4 ] T. gurneyi erreichte möglicherweise eine größere Größe, da ein großer Fußabdruck, der T. gurneyi zugeordnet wird, schätzungsweise von einem Fährtenverursacher mit einer Länge von 12 Metern und einer Hüfthöhe von 3,5 Metern stammt. [ 38 ] Die unbenannte Art aus Deutschland dürfte eine ähnliche Größe wie T. tanneri gehabt haben . [ 3 ]

Zu den ursprünglich erkannten Unterscheidungsmerkmalen zwischen T. gurneyi und T. tanneri zählen die Anzahl der Zähne sowie Größe und Form des Mauls. Während der Oberkiefer von T. tanneri mehr als elf Zähne aufweist, besitzt der von T. gurneyi weniger. [ 4 ] Eine spätere Untersuchung eines neuen rechten Oberkiefers, der vermutlich demselben Individuum wie der Holotypus von T. gurneyi zuzuordnen ist , ergab jedoch, dass die beiden Arten zwar anhand der Morphologie der medialen Oberkieferwand und der Interdentalplatten unterschieden werden können, die vermeintlich geringere Anzahl an Oberkieferzähnen beim portugiesischen Exemplar aber möglicherweise auf die Erhaltung zurückzuführen ist, da die genaue Anzahl der Zähne im gesamten Oberkiefer derzeit nicht bestimmt werden kann. [ 30 ] Das Material aus Deutschland unterscheidet sich von den beiden anderen Arten zudem durch einen zeitlichen Unterschied von ca. 10 Millionen Jahren und einige morphologische Unterschiede, die darauf hindeuten, dass es sich um die dritte Art außerhalb der Schwestertaxonbeziehung zwischen T. tanneri und T. gurneyi handelt . Das Material ist nur 10 % kleiner als der Oberkiefer von T. tanneri , obwohl das ontogenetische Stadium des Exemplars unbekannt ist. Dies deutet darauf hin, dass abgeleitete Megalosaurinen bereits zu den größten Landraubtieren des späten Mitteljura gehörten, wobei die Gattung im Oberjura nur noch mäßig an Größe zunahm. [ 3 ]

Torvosaurus besaß eine längliche, schmale Schnauze mit einem Knick im Profil direkt über den großen Nasenlöchern. Der vorderste Schnauzenknochen, der Prämaxillare , trug drei eher flache, leicht nach außen gerichtete Zähne, deren Vorderkante die Außenseite der Hinterkante der vorhergehenden Zahnkrone überlappte. Der Maxillare war hoch und trug mindestens elf relativ lange Zähne. Wie bei anderen Megalosauriden befanden sich die größten Zähne im Maul von Torvosaurus in den zweiten bis sechsten Maxillaralveolen. [ 39 ] Das Antorbitalfenster war relativ kurz. Das Tränenbein wies ein markantes Tränenhorn auf. Sein unteres Ende war in Seitenansicht breit. Die Augenhöhle war hoch und spitz zulaufend. Das Jochbein war lang und quer schmal. Die untere Vorderseite des Quadratbeins war durch eine tropfenförmige Vertiefung ausgehöhlt, die die Kontaktfläche zum Quadratojugale bildete . Sowohl die Halswirbel als auch die vorderen Rückenwirbel besaßen relativ flexible Kugelgelenke. Die Kugelgelenke an der Vorderseite der Wirbelkörper wiesen einen breiten Rand auf, ein Merkmal, das Britt mit einem Bowlerhut verglich . Die Schwanzwurzel war in der Vertikalen durch hohe und in Seitenansicht breite Dornfortsätze versteift. Der gesamte Arm war sehr kräftig, aber etwas kurz. Ob die Daumenkralle besonders vergrößert war, ist ungewiss. Das Darmbein des Beckens ähnelte dem des Megalosaurus und besaß ein hohes, kurzes Vorderblatt und ein längeres, spitzes Hinterblatt. Das Becken war insgesamt massiv gebaut, wobei die Knochenvorsprünge zwischen den Schambeinen und den Sitzbeinen aneinander anlagen und eine gewölbte, geschlossene Unterseite bildeten. [ 14 ] Der Oberkiefer von T. gurneyi ist im erhaltenen Zustand 63 Zentimeter lang, jedoch fehlen 8 Zentimeter des ventroposterioren Randes. [ 24 ] Daraus ergibt sich eine Gesamtlänge des Oberkiefers von T. gurneyi von 71 Zentimetern. Die Zähne von T. tanneri hatten schätzungsweise eine Kronenhöhe von 9,5 Zentimetern. Die Zähne von T. gurneyi waren jedoch deutlich größer; der Holotypus von T. gurneyi wies Zähne mit einer Kronenhöhe von 10,6–11,6 Zentimetern auf. [ 4 ] Die größten Zähne von T. gurneyi erreichten eine Kronenhöhe von 15 Zentimetern. [ 30 ] [ 40 ]
Systematik und Klassifizierung

Als Torvosaurus 1979 von Galton und Jensen erstmals beschrieben wurde [ 11 ] , wurde er als Megalosaurier klassifiziert , was auch heute noch der Konsens ist [ 16 ] . Später wurde er von Ralph Molnar et al. (1990) den Carnosauria zugeordnet [ 41 ] , dann von Oliver Walter Mischa Rauhut (2003) in eine basale Position innerhalb der Spinosauroidea [ 42 ] und von Thomas Holtz (1994) in eine sehr basale Position innerhalb der Tetanurae [ 43 ] . Keine dieser Zuordnungen wird durch aktuelle phylogenetische Analysen gestützt [ 16 ] . 1985 ordnete Jensen Torvosaurus einer eigenen Familie, den Torvosauridae , zu . [ 13 ] Obwohl Paul Sereno [ 44 ] und Mateus [ 24 ] dieses Konzept befürworten, erscheint es redundant, da Torvosaurus eng mit dem früheren Megalosaurus innerhalb der Megalosaurinae verwandt und möglicherweise dessen Schwesterart ist . [ 16 ] Torvosauridae könnte jedoch als alternativer Name für Megalosauridae verwendet werden, falls Megalosaurus als unbestimmtes Nomen dubium betrachtet wird . [ 45 ] Obwohl Torvosaurus eng mit Megalosaurus verwandt ist , scheint er entwickelter oder apomorph zu sein. Die größere Klade von Torvosaurus , die Megalosauridae , wird gemeinhin als basaler Zweig der Tetanurae angesehen , die als weniger abgeleitet als Carnosaurier oder Coelurosaurier und wahrscheinlich mit den Spinosauriden verwandt gelten . [ 16 ]
Nachfolgend ein Kladogramm, basierend auf der von Carrano, Benson und Sampson (2012) durchgeführten phylogenetischen Analyse, das die Verwandtschaftsverhältnisse von Torvosaurus zeigt : [ 16 ]





Unterscheidung anatomischer Merkmale

Nach Carrano et al. (2012) lassen sich Torvosaurus anhand der folgenden Merkmale unterscheiden: [ 46 ]
- Das Vorhandensein einer sehr flachen Kieferhöhle (sie besitzt keine Fenestra maxillaris, die die Knochenwand durchdringt)
- Das Vorhandensein verschmolzener Interdentalplatten
- Die pneumatischen Gruben in den hinteren Rücken- und den vorderen Schwanzwirbelkörpern erweitern sich zu vergrößerten, tiefen Öffnungen.
- Die Puboischiadenplatte ist stark verknöchert (die paarigen Knochenplatten beider Seiten verbinden und verschließen die gesamte Unterseite des Beckens, ein sehr basales Merkmal, das Galton & Jensen als Hinweis darauf sahen, dass die Theropoda polyphyletisch sind und die Carnosauria sich unabhängig von den fleischfressenden Prosauropoda entwickelt haben ) [ 11 ].
- Eine distale Erweiterung des Sitzbeinschafts mit einem prominenten seitlichen Mittellinienkamm und einer ovalen Kontur bei seitlicher Betrachtung
- Die Halswirbel sind opisthocoel mit einem ausgeprägten flachen Rand um den vorderen Kugelkopf (nach Rauhut, 2000).
- Im Neuralbogen der Rückenwirbel befindet sich vor dem Hyposphen eine transversale Öffnung (nach Rauhut, 2000) [ 47 ].
Paläobiologie

Die Untersuchung fossiler Embryonen von Torvosaurus liefert Forschern Informationen über die Embryonalentwicklung im Laufe der Zeit, die verschiedenen Entwicklungswege in den Dinosaurierlinien, das Fortpflanzungsverhalten und die Brutpflege der Dinosaurier. [ 48 ] [ 49 ] [ 50 ] Im Jahr 2013 gaben Araújo et al . die Entdeckung des Exemplars ML1188 bekannt, eines Geleges aus zerdrückten Dinosauriereiern und embryonalem Material, das Torvosaurus zugeordnet wird . [ 26 ] Diese Entdeckung untermauert die Hypothese, dass große Theropoden ovipar waren, also Eier legten und die Embryonalentwicklung somit außerhalb des Körpers weiblicher Dinosaurier stattfand. Diese Entdeckung machte der niederländische Amateur-Fossilienjäger Aart Walen im Jahr 2005 in der Lourinhã-Formation in Westportugal in fluvialen Uferablagerungen, die dem Tithonium des Jura zugeordnet werden und etwa 152 bis 145 Millionen Jahre alt sind. Diese Entdeckung ist aus mehreren Gründen paläontologisch bedeutsam: (a) Es handelt sich um die primitivsten bekannten Dinosaurierembryonen; (b) es sind die einzigen bekannten Embryonen basaler Theropoden; (c) fossilisierte Eier und Embryonen werden selten gemeinsam gefunden; (d) sie liefert den ersten Nachweis einer einschichtigen Eierschale bei Theropoden; und (e) sie ermöglicht es Forschern, eine neue Eierschalenmorphologie mit der Osteologie einer bestimmten Gruppe von Theropoden in Verbindung zu bringen. [ 26 ] Das Exemplar befindet sich im Museu da Lourinhã in Portugal. Da die Eier aus unbekannten Gründen verlassen wurden, ist nicht bekannt, ob Torvosaurus seine Eier und Jungtiere betreute oder sie kurz nach der Eiablage verließ. [ 51 ] Die Eierschalen sind jedoch hochporös, was einen effizienten Gasaustausch zwischen dem äußeren und inneren Medium ermöglicht. Dies deutet darauf hin, dass die Eier ähnlich wie bei modernen Meeresschildkröten zur Inkubation in Substrat eingebettet wurden. Dies wird auch durch die ungestörte taphonomische Situation und den energiearmen geologischen Kontext bestätigt. [ 26 ]
Alle dokumentierten Torvosaurus- Fossilien aus der Morrison-Formation stammen von ähnlich großen, vermutlich adulten Tieren. Das Fehlen von Jungtieren lässt sich durch verschiedene, sich nicht gegenseitig ausschließende Faktoren erklären. Zum einen ist bekannt, dass die Formation große Wirbeltiere besser konserviert als kleinere. Jungtiere könnten zudem eine andere ökologische Nische als die adulten Tiere besetzt haben, in Lebensräumen, in denen ihre Überreste wahrscheinlich als Fossilien erhalten blieben, und sie könnten auch die bevorzugte Beute größerer Raubtiere gewesen sein. Möglicherweise unterlag Torvosaurus auch einer Populationsüberlebensrate vom Typ B1, wie sie bei anderen Dinosauriern beobachtet wurde, wobei die Sterblichkeit nach Erreichen der Geschlechtsreife zunahm, was zu einer Vielzahl adulter Individuen im Fossilienbestand führte. Eine letzte Möglichkeit ist, dass die Überreste von Jungtieren aufgrund ihrer im Vergleich zu den sehr großen und robusten adulten Tieren abweichenden Proportionen falsch identifiziert wurden. [ 5 ]
Paläoökologie

Herkunft und Vorkommen
Das Typusexemplar von Torvosaurus tanneri , BYU 2002, wurde im Steinbruch Dry Mesa der Brushy-Basin-Formation der Morrison-Formation im Montrose County, Colorado, gefunden. Es wurde 1972 von James A. Jensen und Kenneth Stadtman in mittelkörnigem, grobkörnigem Sandstein geborgen, der im Tithonium und Kimmeridgium des Jura vor etwa 153 bis 148 Millionen Jahren abgelagert wurde. [ 52 ] Dieses Exemplar befindet sich in der Sammlung der Brigham Young University in Provo, Utah .
Fauna und Lebensraum in Nordamerika
Studien deuten darauf hin, dass die Paläoumwelt dieses Abschnitts der Morrison-Formation Flüsse umfasste, die von Westen in ein Becken flossen, in dem sich ein riesiger, salzhaltiger Alkalisee befand. In der Umgebung gab es ausgedehnte Feuchtgebiete. Der Dry Mesa Dinosaur Quarry im Westen Colorados birgt eine der vielfältigsten Wirbeltier-Ansammlungen des Oberjura weltweit. [ 53 ] Im Dry Mesa Quarry wurden die Überreste der Sauropoden Apatosaurus , Brachiosaurus , Diplodocus , Barosaurus , Supersaurus und Camarasaurus , der Iguanodonten Camptosaurus und Dryosaurus sowie der Theropoden Allosaurus , Tanycolagreus , Koparion , Stokesosaurus , Ceratosaurus und Ornitholestes , außerdem Othnielosaurus , Gargoyleosaurus und Stegosaurus gefunden . [ 54 ]
Die Flora dieser Zeit wurde durch Fossilien von Grünalgen , Pilzen , Moosen , Schachtelhalmen , Farnen , Palmfarnen , Ginkgos und verschiedenen Nadelbaumfamilien rekonstruiert . Zu den weiteren entdeckten Tierfossilien zählen Muscheln , Schnecken , Strahlenflosser , Frösche , Salamander , Amphibien , Schildkröten , Keilzahnsaurier , Eidechsen , landlebende (wie Hoplosuchus ) und aquatische Krokodilartige , Kotylosaurier , verschiedene Flugsaurierarten wie Harpactognathus sowie frühe Säugetiere wie Multituberculata , Symmetrodonten und Triconodonten . [ 54 ]
Fauna und Lebensraum in Europa

Die Ornatenton-Formation ist eine flachmarine Ablagerung aus dem Callovium. In dieser Formation lebte Torvosaurus gemeinsam mit dem eng verwandten und ebenfalls großen Wiehenvenator . Die Lourinhã-Formation stammt aus dem Kimmeridgium bis Tithonium. Das küstennahe Milieu ist stark marin geprägt. Flora und Fauna ähneln stark denen der Morrison-Formation. Torvosaurus scheint hier der Spitzenprädator gewesen zu sein. Er lebte neben den europäischen Arten Allosaurus ( A. europaeus ), Ceratosaurus , Stegosaurus und vermutlich Camptosaurus . Auch der Theropode Lourinhanosaurus durchstreifte das Gebiet. Lusotitan war der größte Sauropode der Region, während die Diplodociden Dinheirosaurus und Lourinhasaurus ebenfalls vorkamen. Dacentrurus und Miragaia waren Stegosaurier, Dracopelta hingegen ein Ankylosaurier . Draconyx war ein Iguanodontide, der mit Camptosaurus verwandt war . Aufgrund des marinen Charakters der Lourinhã-Formation kommen dort auch Haie, Plesiochelyiden-Schildkröten und Teleosauriden-Krokodilartige vor. [ 55 ]
Fauna und Lebensraum in Afrika
Die kleinräumige, trog- und rippelgeschichtete, feinkörnige Sandsteinschichtung an der Basis des Oberen Dinosaur-Members der Tendaguru-Formation , aus der möglicherweise Torvosaurus- Funde bekannt sind, wird als Wattablagerung interpretiert. Stehende Gewässer wie kleine Seen und Teiche waren vorhanden, und vermutlich existierte auch ein Süßwasser-Ablagerungsmilieu in Meeresnähe.
Die mögliche, unbenannte Torvosaurus- Art aus der Tendaguru-Formation teilte ihren Lebensraum mit zahlreichen Sauropodenarten , darunter Australodocus , Dicraeosaurus , Giraffatitan , Janenschia , Tornieria , Wamweracaudia , drei unbenannte Diplodocinen - Arten , eine unbenannte Flagellicaudata- Art und der „ Erzbischof “. Zu den Theropoden, mit denen sie koexistierte, zählten Allosaurus tendagurensis , Ceratosaurus roechlingi , Elaphrosaurus , Labrosaurus stechowi , Ostafrikasaurus , Veterupristisaurus (mit dem sie möglicherweise um die Vorherrschaft an der Spitze der Nahrungskette konkurrierte), ein möglicher Abelisauroide und ein unbestimmter Megalosauroide . Die Ornithischier, mit denen sie zusammenlebte, waren Dysalotosaurus und Kentrosaurus . Was die Flugsaurier betrifft, so lebte sie zusammen mit Tendaguripterus , einem unbestimmten Archaeopterodactyloiden , einem unbestimmten Azhdarchiden , zwei unbestimmten Dsungaripteroiden , einem unbestimmten Rhamphorynchoiden und einem unbestimmten Flugsaurier unbekannter Klassifikation. Aufgrund des Küstenmilieus der Tendaguru-Formation sind auch Krokodilartige wie Bernissartia , Amphibien , darunter ein unbenannter Lissamphibie , und Haie vertreten. [ 56 ]
Fauna und Lebensraum in Südamerika
Innerhalb Südamerikas finden sich mögliche Überreste von Torvosaurus ausschließlich in der Tacuarembó-Formation in Uruguay. Da diese Formation aus fluvialen bis lakustrinen Sandsteinen , Siltsteinen und Tonsteinen besteht , deutet dies darauf hin, dass die Umwelt der Formation von Flüssen , Bächen und Seen geprägt war .
Falls Torvosaurus vorkam, wäre er wahrscheinlich der Spitzenprädator der Tacuarembó-Formation gewesen , obwohl er möglicherweise von cf. Ceratosaurus konkurriert wurde . [ 57 ] Er teilte seinen Lebensraum mit zwei unbenannten Theropoden , einem unbenannten Coelurosaurier , einem unbenannten Sauropoden , der nur durch Fußabdrücke bekannt ist, einem ebenfalls durch Fußabdrücke bekannten unbenannten Ornithopoden , einem unbestimmten Mesoeucrocodylier , einer unbestimmten Schildkrötenart , die neben der bekannten Schildkrötenart Tacuarembómys kusterae lebte , und dem möglichen Pholidosaurier Meridiosaurus vallisparadisi . Auch Fische wie Arganodus tiguidiensis , Asiatoceratodus cf. tiguidensis , Neoceratodus africanus und Priohybodus arambourgi sowie Muscheln wie Diplodon sind vertreten. [ 58 ] [ 59 ]
Koexistenz mit anderen großen Fleischfressern
Torvosaurus lebte in den Vereinigten Staaten und Portugal zusammen mit anderen großen Theropoden wie Allosaurus und Ceratosaurus , möglicherweise auch mit Veterupristisaurus in Tansania und möglicherweise mit cf. Ceratosaurus (?) in Uruguay. Die drei, möglicherweise vier Arten scheinen unterschiedliche ökologische Nischen besetzt zu haben , wie Anatomie und Fundorte der Fossilien belegen. Torvosaurus und Ceratosaurus bevorzugten vermutlich die Nähe von Gewässern und besaßen niedrigere, gewundenere Körper, was ihnen in Wald- und Unterholzgebieten Vorteile verschaffte. Allosaurus hingegen hatte einen kürzeren Körper, längere Beine, war schneller, aber weniger wendig und bevorzugte offenbar trockene Auen. [ 60 ] Rauhut et al. (2016) schlugen zudem vor, dass Allosauriden und Megalosauriden unterschiedliche Umweltpräferenzen hatten: Erstere waren häufiger im Landesinneren anzutreffen, während Letztere in marinen und Küstengebieten dominierten. [ 61 ]
Andererseits stammen die meisten Torvosaurus- Fossilien aus der Morrison-Formation aus Fundstellen, an denen auch andere Taxa, darunter Allosaurus, vorkommen, wobei Torvosaurus selbst nur einen geringen Anteil der Knochenlagerstätten ausmacht. Dieses Muster wird als Hinweis darauf interpretiert, dass Torvosaurus seinen Lebensraum mit anderen Raubtieren, insbesondere Allosaurus , teilte, jedoch in deutlich geringerer Anzahl. [ 5 ] Die drei Arten könnten auch unterschiedliche Ernährungsvorlieben gehabt haben: Allosaurus war dank seiner kurzen, kräftigen, gezackten Zähne, seines tiefen, schmalen Schädels und seiner starken dorsoventralen Beweglichkeit des Halses besser zum Zerteilen von Knochen geeignet, während Ceratosaurus mit seinen langen, klingenartigen Zähnen und seinem relativ geraden Hals dazu wahrscheinlich nicht in der Lage war und sich stattdessen auf die tiefer liegenden Organe eines Kadavers konzentrierte. Obwohl Torvosaurus vermutlich auch Knochen verzehren konnte, war er mit seinem großen Schädel und seinen Zähnen sowie seinem großen, kräftigen und geschmeidigen Körper möglicherweise darauf spezialisiert, besonders große Sauropodenkadaver zu öffnen und zu zerlegen. Dies hätte kleineren Theropoden wie Allosaurus einen besseren Zugang im Rahmen einer möglichen Kommensalismusbeziehung ermöglicht . [ 62 ]
Der Allosaurus selbst war eine potenzielle Beute für andere Fleischfresser, wie ein Schambein eines Allosaurus belegt, das von den Zähnen eines anderen Theropoden, wahrscheinlich Ceratosaurus oder Torvosaurus , gezeichnet ist. Die Lage des Knochens im Körper (am unteren Rand des Rumpfes und teilweise von den Beinen verdeckt) und die Tatsache, dass er zu den massivsten Knochen des Skeletts gehörte, deuten darauf hin, dass der Allosaurus Aasfresser war. [ 63 ]

Im Mygatt-Moore-Steinbruch aus dem Oberjura wurden an Überresten von Allosaurus und Mymoorapelta Bissspuren gefunden, die neben anderen Knochen mit Fraßspuren entdeckt wurden. Im Gegensatz zu den übrigen Knochen wiesen diese Bissspuren Riefen auf, deren Messung zur Bestimmung der Dentikelbreite zu extrapolierten Zahn- und Körpergrößen führte, die größer waren als die aller bekannten Exemplare von Allosaurus oder Ceratosaurus , den beiden großen Raubsauriern, deren osteologische Überreste aus dem Steinbruch bekannt sind. Die Extrapolationen sind stattdessen schlüssig und lassen sich entweder auf ein ungewöhnlich großes Exemplar von Allosaurus oder auf ein anderes großes Taxon wie Torvosaurus zurückführen, das nicht aus dem Steinbruch bekannt ist. Das Ergebnis erhöht entweder die bekannte Artenvielfalt des Fundorts allein auf der Grundlage von Ichnologie-Befunden oder liefert starke Hinweise auf Kannibalismus bei Allosaurus . Aufgrund der Position und des Nährwerts der verschiedenen Skelettelemente mit Bissspuren wird vermutet, dass Mymoorapelta entweder kurz nach seinem Tod einem Raubtier zum Opfer fiel oder von Aas gefressen wurde, während Allosaurus erst einige Zeit nach seinem Tod von Aas gefressen wurde. [ 64 ]
Referenzen
- ^ Carvalho, Victor F.; Camilo, Bruno; Araújo, Ricardo; Castro, Lígia; Kullberg, José C.; Desmet, Hilde GB; Nerinckx, Ignace; Leite, Marco; Reis, Diego (2025). „ Cambelodon torreensis , ein neues Pinheirodontid-Multituberkulat aus dem Oberjura Westportugals“ . Aufsätze zur Paläontologie . 11 (2) e70012. Bibcode : 2025PPal...11OA.R2C . doi : 10.1002/spp2.70012 .
- ^ „Phylogenetische Analyse, paläoökologische und paläobiogeographische Interpretation von Theropoden-Dinosauriern aus dem Oberjura des Lusitanischen Beckens“ . Repositorio.ulisboa.pt . Abgerufen am 27. Mai 2026 .
- ^ a b c d e Rauhut, Oliver WM; Schwermann, Achim H.; Hübner, Tom R.; Lanser, Klaus-Peter (2020). „Der älteste Nachweis der Gattung Torvosaurus (Theropoda: Megalosauridae) aus der Callovium-Ornatenton-Formation im Nordwesten Deutschlands“ (PDF) . Geologie und Paläontologie in Westfalen . 93 : 1–13 . Archiviert vom Original (PDF) am 13. Juli 2021 . Abgerufen am 8. Oktober 2020 .
- ^ a b c d e f g Hendrickx, C.; Mateus, O. (2014). Evans, Alistair Robert (Hrsg.). „ Torvosaurus gurneyi n. sp., der größte terrestrische Raubtier Europas, und eine vorgeschlagene Terminologie der Maxilla-Anatomie bei nicht-aviären Theropoden“ . PLOS ONE . 9 (3) e88905. Bibcode : 2014PLoSO...988905H . doi : 10.1371/journal.pone.0088905 . PMC 3943790. PMID 24598585 .
- ^ a b c Hanson, Michael; Makovicky, Peter J. (9. Juli 2021). „Ein neues Exemplar von Torvosaurus tanneri , ursprünglich gesammelt von Elmer Riggs“ . Historical Biology . 26 (6): 775–784 . Archiviert vom Original am 9. Juli 2021.
- ^ Janensch, W. (1920). „Über Elaphrosaurus bambergi und die Megalosaurier aus den Tendaguru Schichten Deutsch-Ostafrikas“. Sitzungsberichte der Gesellschaft Naturforschender Freunde zu Berlin : 225–235 .
- Soto , Matías; Toriño, Pablo ; Perea, Daniel ( 2020). „Ein großer Megalosaurier (Theropoda, Tetanurae) aus dem späten Jura von Uruguay und Tansania“. Journal of South American Earth Sciences . 98 102458. Bibcode : 2020JSAES..9802458S . doi : 10.1016/j.jsames.2019.102458 . S2CID 213672502 .
- ^ „ Torvosaurus : Der Grizzlybär des Jura“ . Dinosaurs and Barbarians. 8. August 2015. Archiviert vom Original am 28. Juli 2021. Abgerufen am 22. März 2021 .
- ^ Soto, Matias (30. September 2019). „Megalosauridenzahn aus Uruguay“ . Mendeley-Daten . 1 . doi : 10.17632/6kntxfp449.1 .
- ^ Die Tacuarembó-Formation wurde am 30. November 2024 im Internetarchiv (Wayback Machine) von Fossilworks.org archiviert .
- ^ a b c d e f P. M. Galton und J. A. Jensen . 1979. Ein neuer großer Theropode aus dem Oberjura von Colorado. Archiviert am 9. Juli 2021 in der Wayback Machine . Brigham Young University Geology Studies 26(1):1–12
- ^ Liddell, Henry George ; Scott, Robert (1980). A Greek-English Lexicon (Abridged ed.). Vereinigtes Königreich: Oxford University Press. ISBN 0-19-910207-4Die
- ^ a b Jensen, JA , 1985, "Uncompahgre dinosaur fauna: A preliminary report", Great Basin Naturalist , 45 : 710–720
- ^ a b c d e f g Britt, B., 1991, " Theropoden des Dry Mesa Quarry (Morrison-Formation, Oberjura), Colorado, mit Schwerpunkt auf der Osteologie von Torvosaurus tanneri ", Brigham Young University Geology Studies 37 : 1–72
- ^ Bakker, RT , Siegwarth, J., Kralis, D. & Filla, J., 1992, " Edmarka rex , ein neuer, gigantischer Theropode aus der mittleren Morrison-Formation, Oberjura der Como Bluff-Aufschlussregion", Hunteria , 2 (9): 1–24
- ^ a b c d e f Carrano, MT; Benson, RBJ; Sampson, SD (2012). „Die Phylogenie der Tetanurae (Dinosauria: Theropoda)“. Journal of Systematic Palaeontology 10 (2): 211–300. doi:10.1080/14772019.2011.630927
- ^ Molina-Pérez, R.; Larramendi, A. (2019). Encyclopedia of Dinosaurs: the Theropods . London: The Natural History Museum. ISBN 978-0-565-09497-3Die
- ^ Redman, PD, 1995, Paleo Horizons , Winterausgabe
- ^ Siegwarth, J., Linbeck, R., Bakker, R. und Southwell, B. (1996). Riesige fleischfressende Dinosaurier der Familie Megalosauridae. Hunteria 3 :1–77.
- ^ Dalman, SG (2014). „Neue Daten zu kleinen Theropoden-Dinosauriern aus der oberjurassischen Morrison-Formation von Como Bluff, Wyoming, USA“ (PDF) . Volumina Jurassica . 7 (2): 181–196 . Archiviert (PDF) vom Original am 28. September 2022. Abgerufen am 6. Juni 2022 .
- ^ a b „Torvosaurus – König der wahren Jurassic World ausgegraben“ . FossilEra . Archiviert vom Original am 11. Juli 2021. Abgerufen am 21. März 2021 .
- ^ „Museum für Naturgeschichte und Wissenschaft (MNHS)“ . Cincinnati Museum Center . Archiviert vom Original am 10. Juni 2022. Abgerufen am 21. März 2021 .
- ^ Mateus, O. & Antunes, MT (2000). Torvosaurus sp. (Dinosauria: Theropoda) im späten Jura Portugals. In I Congresso Ibérico de Paleontologia/XVI Jornadas de la Sociedad Española de Paleontología (S. 115–117)
- Mateus , Octávio; Walen, Aart; Antunes, Miguel Telles (2006). „ Die große Theropodenfauna der Lourinha-Formation (Portugal) und ihre Ähnlichkeit mit der der Morrison-Formation, mit der Beschreibung einer neuen Allosaurus-Art “ . In : Foster, John R.; Lucas, Spencer G. (Hrsg.). Paläontologie und Geologie der oberjurassischen Morrison-Formation . New Mexico Museum of Natural History and Science Bulletin, 36. Albuquerque, New Mexico: New Mexico Museum of Natural History and Science. S. 123–129 .
- ^ a b Carrano, Matthew T.; Benson, Roger BJ; Sampson, Scott D. (Juni 2012). „Die Phylogenie der Tetanurae (Dinosauria: Theropoda)“ . Journal of Systematic Palaeontology . 10 (2): 211–300 . Bibcode : 2012JSPal..10..211C . doi : 10.1080/14772019.2011.630927 . ISSN 1477-2019 . S2CID 85354215. Archiviert vom Original am 26. Juli 2021. Abgerufen am 3. November 2022 .
- ^ a b c d Araújo, Ricardo; Castanhinha, Rui; Martins, Rui MS; Mateus, Octávio; Hendrickx, Christophe; Beckmann, F.; Schell, N.; Alves, LC (2013). „Die Lücken in der Phylogenie von Dinosaurier-Eierschalen schließen: Gelege von Theropoden aus dem späten Jura mit Embryonen aus Portugal“ . Wissenschaftliche Berichte . 1924 1924: 8. Bibcode : 2013NatSR...3.1924A . doi : 10.1038/srep01924 . PMC 3667465 . PMID 23722524 . S2CID 7766400 .
- ^ Ribeiro, Vasco; Mateus, Octávio; Holwerda, Femke; Araújo, Ricardo; Castanhinha, Rui (4. März 2014). „Zwei neue Theropoden-Eistandorte aus der späten Jura-Lourinhã-Formation, Portugal“. Historische Biologie . 26 (2): 206– 217. Bibcode : 2014HBio...26..206R . doi : 10.1080/08912963.2013.807254 . ISSN 0891-2963 . S2CID 55315504 .
- ^ Rauhut, Oliver WM; Piñuela, Laura; Castanera, Diego; García-Ramos, José-Carlos; Sánchez Cela, Irene (5. Juli 2018). „Die größten europäischen Theropodendinosaurier: Überreste eines riesigen Megalosauriden und riesige Theropodenspuren aus dem Kimmeridgium von Asturien, Spanien“ . PeerJ . 6 e4963. Bibcode : 2018PeerJ...6e4963R . doi : 10.7717/peerj.4963 . ISSN 2167-8359 . PMC 6035862 . PMID 30002951 .
- ^ Hendrickx, Christophe (2018). „Peerj-Diskussion“ . Peerj .
- ^ a b c Malafaia, E.; Mocho, P.; Escaso, F.; Ortega, F. (März 2017). „Neue Daten zur Anatomie von Torvosaurus und anderen Überresten von Megalosauroiden (Dinosauria, Theropoda) aus dem Oberjura Portugals“ . Journal of Iberian Geology . 43 (1): 33–59 . Bibcode : 2017JIbG...43...33M . doi : 10.1007/s41513-017-0003-9 . ISSN 1698-6180 . S2CID 132198140 .
- ^ Paul, GS (2016). The Princeton Field Guide to Dinosaurs (2. Aufl.). Princeton, New Jersey: Princeton University Press. S. 93. ISBN 978-0-691-16766-4Die
- ^ Pintore, R.; Hutchinson, JR; Bishop, PJ; Tsai, HP; Houssaye, A. (2024). „Die Evolution der Femurmorphologie bei riesigen nicht-avianen Theropoden-Dinosauriern“ . Paleobiology . 50 ( 2): 308–329 . Bibcode : 2024Pbio...50..308P . doi : 10.1017/pab.2024.6 . PMC 7616063. PMID 38846629 .
- ^ Farlow, JO; Coroian, D.; Currie, PJ ; Foster, JR; Mallon, JC; Therrien, F. (2022). "„Drachen“ in der Landschaft: Modellierung der Häufigkeit großer fleischfressender Dinosaurier in der oberjurassischen Morrison-Formation (USA) und der oberkretazischen Dinosaur-Park-Formation (Kanada) . The Anatomical Record . 306 (7): 1669–1696 . doi : 10.1002 /ar.25024 . PMID 35815600 .
- ^ Mortimer, Mickey (2020). "Megalosauroidea" .
- ^ Holtz, Thomas R. (2012). „Dinosaurier: Die umfassendste und aktuellste Enzyklopädie für Dinosaurier-Fans jeden Alters“ (PDF) . Archiviert (PDF) vom Original am 12. August 2017. Abgerufen am 22. November 2019 .
- ^ Siegwarth, J., Linbeck, R., Bakker, R. und Southwell, B., 1996, „Riesige fleischfressende Dinosaurier der Familie Megalosauridae“, Hunteria 3 : 1–77
- ^ „Geological Society of America – Abstract“ . gsameetings.secure-platform.com . Archiviert vom Original am 9. Oktober 2025. Abgerufen am 21. Juni 2026 .
- ^ Mateus, Octávio; Mailand, Jesper (2010). „Eine vielfältige Oberjura-Dinosaurier-Ichnofauna aus Zentralwestportugal“ . Lethaia . 43 (2): 245–257 . doi : 10.1111/j.1502-3931.2009.00190.x . ISSN 0024-1164 .
- ^ Hendrickx, Christophe; Mateus, Octávio; Araújo, Ricardo (2014). „Das Gebiss der Megalosauridae (Theropoda: Dinosauria)“ . Acta Palaeontologica Polonica . doi : 10.4202/app.00056.2013 . ISSN 0567-7920 .
- ^ Malafaia, Elizabete (2017). "„Phylogenetische Analyse, paläoökologische und paläobiogeographische Interpretation von Theropoden-Dinosauriern aus dem Oberjura des Lusitanischen Beckens“" . Universität Lissabon .
- ^ R. E. Molnar, S. M. Kurzanov und Z. Dong. 1990. „Carnosauria“. In: D. B. Weishampel , H. Osmólska und P. Dodson (Hrsg.), The Dinosauria . University of California Press, Berkeley
- ^ OWM Rauhut. 2003. Die Verwandtschaftsverhältnisse und die Evolution basaler Theropoden-Dinosaurier. Special Papers in Palaeontology 69:1–213
- ^ TR Holtz, 1994, „Die phylogenetische Stellung der Tyrannosauridae: Implikationen für die Theropodensystematik“, Journal of Paleontology 68 (5): 1100–1117
- ^ PC Sereno , JA Wilson, HCE Larsson, DB Dutheil und H.-D. Sues , 1994, „Frühe Kreidezeit-Dinosaurier aus der Sahara“, Science 266 (5183): 267–271
- ^ PC Sereno , 1998, „Eine Begründung für phylogenetische Definitionen mit Anwendung auf die übergeordnete Taxonomie von Dinosauria“, Neues Jahrbuch für Geologie und Paläontologie, Abhandlungen 210 (1): 41–83
- ^ Carrano, Benson und Sampson, 2012. Die Phylogenie der Tetanurae (Dinosauria: Theropoda). Journal of Systematic Palaeontology. 10(2), 211–300
- ^ Rauhut, 2000. Die Wechselbeziehungen und Evolution basaler Theropoden (Dinosauria, Saurischia). Dissertation, Universität Bristol [UK], 1–440.
- ^ Long, JA & McNamara, KJ Heterochronie: Der Schlüssel zur Dinosaurier-Evolution. in The Dinofest International (Wolberg, DL, Stump, E. & Rosenberg, GD, Hrsg.) 113–123 (Acad. Nat. Sci. Phil., 1997).
- ^ Balanoff, AM, Norell, MA, Grellet-Tinner, G. & Lewin, MR Digitale Präparation eines wahrscheinlichen Neoceratopsiers, der in einem Ei erhalten ist, mit Anmerkungen zur mikrostrukturellen Anatomie von Ornithischier-Eierschalen. Naturwissenschaften 95, 493–500 (2008).
- ^ Varricchio, DJ et al. , 2008. Die väterliche Fürsorge bei Vögeln hatte einen Ursprung in Dinosauriern. Science 322, 1826–1828.
- ^ „Ein seltener Fund: Verlassene Dinosauriernester mit Eierschalen“ . NBC News . 5. August 2013. Archiviert vom Original am 3. August 2021. Abgerufen am 7. August 2013 .
- ^ Jensen, J. A. und Ostrom, J. H. (1977). Ein zweiter jurassischer Flugsaurier aus Nordamerika. Journal of Paleontology 51(4):867–870
- ^ Richmond, DR und Morris, TH, 1999, Stratigraphie und kataklysmische Ablagerung des Dry Mesa Dinosaur Quarry, Mesa County, Colorado, in Carpenter, K. , Kirkland, J., und Chure, D., Hrsg., Die oberjurassische Morrison-Formation: Eine interdisziplinäre Studie, Modern Geology v. 22, Nr. 1–4, S. 121–143.
- ^ a b Chure, Daniel J.; Litwin, Ron; Hasiotis, Stephen T.; Evanoff, Emmett; Carpenter, Kenneth (2006). „Die Fauna und Flora der Morrison-Formation: 2006“. In: Foster, John R.; Lucas, Spencer G. (Hrsg.). Paläontologie und Geologie der oberjurassischen Morrison-Formation . New Mexico Museum of Natural History and Science Bulletin, 36. Albuquerque, New Mexico: New Mexico Museum of Natural History and Science. S. 233–248 .
- ^ OCTÁVIO MATEUS SPÄTE JURASSIC-DINOSAURIER AUS DER MORRISON-FORMATION (USA), DEN LOURINHÃ- UND ALCOBAÇA-FORMATIONEN (PORTUGAL) UND DEN TENDAGURU-BETTEN (TANSANIA): EIN VERGLEICH Foster, JR und Lucas, SGRM, Hrsg., 2006, Paläontologie und Geologie der oberen Jura-Morrison-Formation. New Mexico Museum für Naturgeschichte und Wissenschaft Bulletin 36.
- ^ Aberhan, Martin; Bussert, Robert; Heinrich, Wolf-Dieter; Schrank, Eckhart; Schultka, Stephan; Sames, Benjamin; Kriwet, Jürgen; Kapilima, Saidi (2002). „Paläoökologie und Ablagerungsmilieus der Tendaguru-Schichten (Spätjura bis Frühkreide, Tansania)“ (PDF) . Fossil Record . 5 (1): 19–44 . doi : 10.1002/mmng.20020050103 . Archiviert (PDF) vom Original am 19. August 2018. Abgerufen am 2. April 2019 .
- ^ Soto, Matías; Toriño, Pablo; Perea, Daniel (1. November 2020). „Zähne des Ceratosaurus (Theropoda, Ceratosauria) aus der Tacuarembó-Formation (Oberjura, Uruguay)“ . Zeitschrift für südamerikanische Geowissenschaften . 103 102781. Bibcode : 2020JSAES.10302781S . doi : 10.1016/j.jsames.2020.102781 . ISSN 0895-9811 . S2CID 224842133 .
- ^ Perea, D.; Ubilla, M.; Rojas, A. (2003). „Erster Nachweis von Theropoden aus der Tacuarembó-Formation (Oberjura–Unterkreide), Uruguay“. Alcheringa . 27 (2): 79–83 . Bibcode : 2003Alch...27...79P . doi : 10.1080/03115510308619548 . S2CID 129634955 .
- ^ Perea, D.; Ubilla, M.; Rojas, A.; Goso, Kalifornien (November 2001). „Das westgondwanische Vorkommen des Hybodontidenhais Priohybodus und das späte Jura-frühe Kreidezeitalter der Tacuarembó-Formation, Uruguay“ . Paläontologie . 44 (6): 1227–1235 . Bibcode : 2001Palgy..44.1227P . doi : 10.1111/1475-4983.00222 .
- ^ Bakker, Robert T .; Bir, Gary (2004). „Dinosaurier-Tatortuntersuchungen: Theropodenverhalten am Como Bluff, Wyoming, und die Evolution der Vogelheit“. In: Currie, Philip J .; Koppelhus, Eva B.; Shugar, Martin A.; Wright, Joanna L. (Hrsg.). Gefiederte Drachen: Studien zum Übergang von Dinosauriern zu Vögeln . Bloomington und Indianapolis: Indiana University Press. S. 301–342 . ISBN 978-0-253-34373-4Die
- ^ Rauhut, OWM; Hübner, T; Lanser, K (2016). „Ein neuer Megalosaurier-Theropode aus dem späten Mitteljura (Callovium) Nordwestdeutschlands: Implikationen für die Theropoden-Evolution und den Faunenwechsel im Jura“ . Palaeontologia Electronica . 19 (2): 1–65 . doi : 10.26879/654 . ISSN 1094-8074 . Archiviert vom Original am 22. Februar 2022. Abgerufen am 24. April 2021 .
- ^ Nash, Duane (10. August 2015). „Antediluvian Salad: Allosaurus – Eher ein Geier als ein Falke“ . Antediluvian Salad . Archiviert vom Original am 28. Juli 2021. Abgerufen am 24. April 2021 .
- ^ Chure, Daniel J. (2000). „Nutzung von Beuteknochen durch räuberische Dinosaurier im späten Jura Nordamerikas, mit Anmerkungen zur Nutzung von Beuteknochen durch Dinosaurier im gesamten Mesozoikum“ (PDF) . Gaia . 15 : 227–232 . ISSN 0871-5424 . Archiviert vom Original (PDF) am 19. Juli 2011. Abgerufen am 16. August 2015 .
- Drumheller , Stephanie K.; McHugh, Julia B.; Kane, Miriam; Riedel, Anja; D'Amore, Domenic C. (27. Mai 2020). „Hohe Häufigkeit von Theropodenbissspuren liefert Hinweise auf Nahrungsaufnahme, Aasfressen und möglichen Kannibalismus in einem gestressten Ökosystem des späten Jura . “ PLOS ONE . 15 (5) e0233115. Bibcode : 2020PLoSO..1533115D . doi : 10.1371/ journal.pone.0233115 . ISSN 1932-6203 . PMC 7252595. PMID 32459808 .