Histon H1 gehört zu den fünf Haupthistonproteinfamilien, die Bestandteile des Chromatins in eukaryotischen Zellen sind. Obwohl es hochkonserviert ist , weist es dennoch die größte Sequenzvariabilität zwischen den Spezies auf.
Struktur
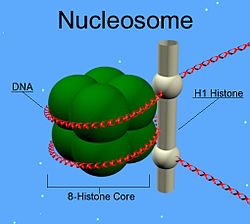
Metazoen-H1-Proteine zeichnen sich durch eine zentrale globuläre „Flügelhelix“-Domäne und lange C- und kurze N-terminale Enden aus. H1 ist an der Packung der „Perlenketten“-Substrukturen zu einer übergeordneten Struktur beteiligt, deren Details noch nicht vollständig aufgeklärt sind. [ 1 ] H1-Proteine von Protisten und Bakterien, auch bekannt als Nukleoproteine HC1 und HC2 ( Pfam PF07432 , PF07382 ), besitzen weder die zentrale Domäne noch das N-terminale Ende. [ 2 ]
H1 ist weniger konserviert als die Kernhistone. Die globuläre Domäne ist der am stärksten konservierte Teil von H1. [ 3 ]
Funktion
Im Gegensatz zu den anderen Histonen bildet H1 nicht die „Perle“ des Nukleosoms . Stattdessen liegt es auf der Struktur auf und fixiert die um das Nukleosom gewickelte DNA. H1 ist in der Hälfte der Menge der anderen vier Histone vorhanden, die jeweils zwei Moleküle zu jeder Nukleosomenperle beitragen. Zusätzlich zur Bindung an das Nukleosom bindet das H1-Protein an die Linker-DNA (etwa 20–80 Nukleotide lang) zwischen den Nukleosomen und trägt so zur Stabilisierung der zickzackförmigen, 30 nm breiten Chromatinfaser bei. [ 4 ] Studien an gereinigten Chromatinfasern haben viele Erkenntnisse über Histon H1 geliefert . Die ionische Extraktion von Linker-Histonen aus nativem oder rekonstituiertem Chromatin fördert dessen Entfaltung unter hypotonischen Bedingungen von 30 nm breiten Fasern zu perlschnurartigen Nukleosomenanordnungen. [ 5 ] [ 6 ] [ 7 ]
Es ist unklar, ob H1 eine solenoidartige Chromatinfaser fördert, in der die exponierte Linker-DNA verkürzt ist, oder ob es lediglich den Winkel benachbarter Nukleosomen verändert, ohne die Linkerlänge zu beeinflussen [ 8 ]. Es konnte jedoch gezeigt werden, dass Linker-Histone die Kompaktierung von Chromatinfasern vorantreiben, die in vitro mithilfe synthetischer DNA-Arrays des starken Nukleosomen-Positionierungselements „601“ rekonstituiert wurden [ 9 ]. Nukleaseverdau und DNA-Footprinting-Experimente legen nahe, dass die globuläre Domäne von Histon H1 in der Nähe der Nukleosomen-Dyade lokalisiert ist, wo sie etwa 15–30 Basenpaare zusätzlicher DNA schützt [ 10 ] [ 11 ] [ 12 ] [ 13 ]. Darüber hinaus zeigen Experimente an rekonstituiertem Chromatin ein charakteristisches Stammmotiv an der Dyade in Gegenwart von H1. [ 14 ] Trotz bestehender Wissenslücken hat sich ein allgemeines Modell herausgebildet, in dem die globuläre Domäne von H1 das Nukleosom durch Vernetzung von ein- und austretender DNA verschließt, während der Schwanz an die Linker-DNA bindet und deren negative Ladung neutralisiert. [ 8 ] [ 12 ]
Zahlreiche Experimente zur Funktion von H1 wurden an gereinigtem, prozessiertem Chromatin unter salzarmen Bedingungen durchgeführt, doch die Rolle von H1 in vivo ist weniger klar. Zelluläre Studien haben gezeigt, dass eine Überexpression von H1 zu einer veränderten Kernmorphologie und Chromatin-Struktur führen kann und dass H1 je nach Gen sowohl als positiver als auch als negativer Regulator der Transkription fungieren kann. [ 15 ] [ 16 ] [ 17 ] In Xenopus- Eizellextrakten führt die Reduktion von Linkerhistonen zu einer etwa zweifachen Längenverlängerung der mitotischen Chromosomen, während eine Überexpression eine Hyperkompaktierung der Chromosomen zu einer untrennbaren Masse bewirkt. [ 18 ] [ 19 ] Ein vollständiger Knockout von H1 in vivo konnte in vielzelligen Organismen aufgrund der Existenz mehrerer Isoformen, die in verschiedenen Genclustern vorkommen können, bisher nicht erreicht werden. Verschiedene Linker-Histon-Isoformen wurden jedoch in Tetrahymena , C. elegans, Arabidopsis, der Fruchtfliege und der Maus in unterschiedlichem Ausmaß reduziert, was zu verschiedenen organismenspezifischen Defekten in der Kernmorphologie, der Chromatin-Struktur, der DNA-Methylierung und/oder der Expression spezifischer Gene führte. [ 20 ] [ 21 ] [ 22 ]
Dynamik
Während der größte Teil des Histons H1 im Zellkern an Chromatin gebunden ist, pendeln H1-Moleküle mit relativ hoher Geschwindigkeit zwischen verschiedenen Chromatinregionen. [ 23 ] [ 24 ]
Es ist schwer nachzuvollziehen, wie ein so dynamisches Protein ein struktureller Bestandteil des Chromatins sein kann. Es wird jedoch vermutet, dass das Gleichgewicht im Zellkern die Assoziation zwischen H1 und Chromatin weiterhin stark begünstigt. Dies bedeutet, dass trotz seiner Dynamik der größte Teil von H1 zu jedem Zeitpunkt an Chromatin gebunden ist. [ 25 ] H1 verdichtet und stabilisiert die DNA unter Krafteinwirkung und während der Chromatinbildung. Dies legt nahe, dass die dynamische Bindung von H1 die DNA in Situationen schützen könnte, in denen Nukleosomen entfernt werden müssen. [ 26 ]
Zytoplasmatische Faktoren scheinen für den dynamischen Austausch von Histon H1 am Chromatin notwendig zu sein, sind aber noch nicht spezifisch identifiziert worden. [ 27 ] Die Dynamik von H1 wird möglicherweise teilweise durch O-Glykosylierung und Phosphorylierung vermittelt. Die O-Glykosylierung von H1 kann die Kondensation und Kompaktierung des Chromatins fördern. Es wurde gezeigt, dass die Phosphorylierung während der Interphase die Affinität von H1 zum Chromatin verringert und die Dekondensation des Chromatins sowie die aktive Transkription fördern kann. Während der Mitose hingegen erhöht die Phosphorylierung die Affinität von H1 zu den Chromosomen und fördert somit die mitotische Chromosomenkondensation. [ 19 ]
Isoformen
Die H1-Familie bei Tieren umfasst mehrere Varianten des Linker-Histons H1 . Diese Varianten oder Isoformen können in verschiedenen oder sich überschneidenden Geweben und Entwicklungsstadien innerhalb eines Organismus exprimiert werden. Der Grund für diese multiplen Isoformen ist noch unklar, doch sowohl ihre evolutionäre Konservierung vom Seeigel bis zum Menschen als auch signifikante Unterschiede in ihren Aminosäuresequenzen deuten darauf hin, dass sie nicht funktionell äquivalent sind. [ 28 ] [ 29 ] [ 3 ] Eine Isoform, Histon H5 , kommt ausschließlich in roten Blutkörperchen von Vögeln vor , die im Gegensatz zu denen von Säugetieren einen Zellkern besitzen . Eine weitere Isoform ist die oozytäre/ zygotische H1M-Isoform (auch bekannt als B4 oder H1foo), die in Seeigeln, Fröschen, Mäusen und Menschen vorkommt und im Embryo durch die somatischen Isoformen H1A–E und H10, das H5 ähnelt, ersetzt wird. [ 3 ] [ 30 ] [ 31 ] [ 32 ] Obwohl H1M mehr negative Ladungen als somatische Isoformen aufweist, bindet es in Xenopus- Eizellextrakten mit höherer Affinität an mitotische Chromosomen. [ 19 ]
Posttranslationale Modifikationen
Wie andere Histone wird auch die Histon-H1-Familie umfangreich posttranslational modifiziert (PTM). Dies umfasst Serin- und Threoninphosphorylierung, Lysinacetylierung, Lysinmethylierung und Ubiquitinierung. [ 33 ] Diese PTMs erfüllen vielfältige Funktionen, sind aber weniger gut erforscht als die PTMs anderer Histone.
Siehe auch
Referenzen
- ^ Ramakrishnan V, Finch JT, Graziano V, Lee PL, Sweet RM (März 1993). „Kristallstruktur der globulären Domäne von Histon H5 und ihre Bedeutung für die Nukleosomenbindung“. Nature . 362 ( 6417): 219–223 . Bibcode : 1993Natur.362..219R . doi : 10.1038/362219a0 . PMID 8384699. S2CID 4301198 .
- ^ Kasinsky HE, Lewis JD, Dacks JB, Ausió J (Januar 2001). „Ursprung der H1-Linker-Histone“ . FASEB-Journal . 15 (1): 34–42 . doi : 10.1096/fj.00-0237rev . PMID 11149891 . S2CID 10089116 .
- ^ a b c Izzo A, Kamieniarz K, Schneider R (April 2008). „Die Histon-H1-Familie: Spezifische Mitglieder, spezifische Funktionen?“ . Biological Chemistry . 389 (4): 333– 43. doi : 10.1515/BC.2008.037 . PMID 18208346 . S2CID 1516241 .
- ^ Jeon, Kwang W.; Berezney, Ronald (1995). Strukturelle und funktionelle Organisation der Kernmatrix . Boston: Academic Press. S. 214–217 . ISBN 978-0-12-364565-4Die
- ^ Finch JT, Klug A (Juni 1976). „Solenoidales Modell für die Überstruktur im Chromatin“ . Proceedings of the National Academy of Sciences of the United States of America . 73 (6): 1897–901 . Bibcode : 1976PNAS...73.1897F . doi : 10.1073 / pnas.73.6.1897 . PMC 430414. PMID 1064861 .
- ^ Thoma F, Koller T (September 1977). „Einfluss von Histon H1 auf die Chromatin-Struktur“ (PDF) . Cell . 12 (1): 101–7 . doi : 10.1016 / 0092-8674(77)90188-X . PMID 561660. S2CID 11155120 .
- ^ Thoma F, Koller T, Klug A (November 1979). „Beteiligung von Histon H1 an der Organisation des Nukleosoms und der salzabhängigen Superstrukturen des Chromatins“ . The Journal of Cell Biology . 83 (2 Pt 1): 403–27 . doi : 10.1083/jcb.83.2.403 . PMC 2111545. PMID 387806 .
- ^ a b van Holde K, Zlatanova J (Oktober 1996). „Was bestimmt die Faltung der Chromatinfaser?“ . Proceedings of the National Academy of Sciences of the United States of America . 93 (20): 10548– 55. Bibcode : 1996PNAS...9310548V . doi : 10.1073/pnas.93.20.10548 . PMC 38190 . PMID 8855215 .
- ^ Routh A, Sandin S, Rhodes D (Juli 2008). „Nukleosomen-Repeatlänge und Linker-Histon-Stöchiometrie bestimmen die Chromatinfaserstruktur“ . Proceedings of the National Academy of Sciences of the United States of America . 105 (26): 8872–7 . Bibcode : 2008PNAS..105.8872R . doi : 10.1073/pnas.0802336105 . PMC 2440727. PMID 18583476 .
- ^ Varshavsky AJ, Bakayev VV, Georgiev GP (Februar 1976). „Heterogenität von Chromatin-Untereinheiten in vitro und Lokalisation von Histon H1“ . Nucleic Acids Research . 3 (2): 477–92 . doi : 10.1093 / nar/3.2.477 . PMC 342917. PMID 1257057 .
- ^ Whitlock JP, Simpson RT (Juli 1976). „Entfernung von Histon H1 legt ein fünfzig Basenpaare langes DNA-Segment zwischen Nukleosomen frei“ . Biochemistry . 15 (15): 3307–14 . doi : 10.1021/bi00660a022 . PMID 952859 .
- ^ a b Allan J, Hartman PG, Crane-Robinson C, Aviles FX (Dezember 1980). „Die Struktur von Histon H1 und seine Lokalisation im Chromatin“. Nature . 288 ( 5792): 675–9 . Bibcode : 1980Natur.288..675A . doi : 10.1038/288675a0 . PMID 7453800. S2CID 4262304 .
- Staynov DZ, Crane-Robinson C (Dezember 1988). „Footprinting of linker histones H5 and H1 on the nucleosome“ . The EMBO Journal . 7 (12): 3685–91 . doi : 10.1002/j.1460-2075.1988.tb03250.x . PMC 454941. PMID 3208745 .
- ^ Bednar J, Horowitz RA, Grigoryev SA, Carruthers LM, Hansen JC, Koster AJ, Woodcock CL (November 1998). „Nukleosomen, Linker-DNA und Linker-Histon bilden ein einzigartiges Strukturmotiv, das die Faltung und Kompaktierung des Chromatins höherer Ordnung steuert“ . Proceedings of the National Academy of Sciences of the United States of America . 95 (24): 14173–8 . Bibcode : 1998PNAS...9514173B . doi : 10.1073/pnas.95.24.14173 . PMC 24346. PMID 9826673 .
- ^ Dworkin-Rastl E, Kandolf H, Smith RC (Februar 1994). „Die mütterliche Histon-H1-Variante H1M (B4-Protein) ist das vorherrschende H1-Histon in Xenopus-Prägastrula-Embryonen“. Developmental Biology . 161 (2): 425–39 . doi : 10.1006/dbio.1994.1042 . PMID 8313993 .
- ^ Brown DT, Alexander BT, Sittman DB (Februar 1996). „Differential effect of H1 variant overexpression on cell cycle progression and gene expression“ . Nucleic Acids Research . 24 (3): 486–93 . doi : 10.1093 / nar/24.3.486 . PMC 145659. PMID 8602362 .
- Gunjan A, Alexander BT, Sittman DB, Brown DT (Dezember 1999). „Effects of H1 histone variant overexpression on chromatin structure“ . The Journal of Biological Chemistry . 274 (53): 37950–6 . doi : 10.1074/jbc.274.53.37950 . PMID 10608862 .
- ^ Maresca TJ, Freedman BS, Heald R (Juni 2005). „Histon H1 ist essentiell für die mitotische Chromosomenarchitektur und -segregation in Xenopus laevis-Eizellextrakten“ . The Journal of Cell Biology . 169 (6): 859–69 . doi : 10.1083/jcb.200503031 . PMC 2171634. PMID 15967810 .
- Freedman BS , Heald R (Juni 2010). „ Funktioneller Vergleich von H1-Histonen in Xenopus zeigt isoformspezifische Regulation durch Cdk1 und RanGTP“ . Current Biology . 20 (11): 1048–52 . Bibcode : 2010CBio...20.1048F . doi : 10.1016 /j.cub.2010.04.025 . PMC 2902237. PMID 20471264 .
- ^ Shen X, Yu L, Weir JW, Gorovsky MA (Juli 1995). „Linkerhistone sind nicht essentiell und beeinflussen die Chromatin-Kondensation in vivo“ . Cell . 82 (1): 47–56 . doi : 10.1016 / 0092-8674(95)90051-9 . PMID 7606784. S2CID 14427681 .
- ^ Jedrusik MA, Schulze E (April 2001). „Eine einzelne Histon-H1-Isoform (H1.1) ist essentiell für die Chromatin-Stilllegung und die Keimbahnentwicklung in Caenorhabditis elegans“ . Development . 128 (7): 1069–80 . doi : 10.1242/dev.128.7.1069 . PMID 11245572 .
- ^ Lu X, Wontakal SN, Emelyanov AV, Morcillo P, Konev AY, Fyodorov DV, Skoultchi AI (Februar 2009). „Linker-Histon H1 ist essentiell für die Entwicklung von Drosophila, die Etablierung von perizentrischem Heterochromatin und eine normale Polytänchromosomenstruktur“ . Genes & Development . 23 (4): 452–65 . doi : 10.1101/gad.1749309 . PMC 2648648. PMID 19196654 .
- Misteli T, Gunjan A, Hock R, Bustin M, Brown DT (Dezember 2000). „Dynamische Bindung von Histon H1 an Chromatin in lebenden Zellen“. Nature . 408 ( 6814): 877–881 . Bibcode : 2000Natur.408..877M . doi : 10.1038/35048610 . PMID 11130729. S2CID 4428934 .
- ^ Chen D, Dundr M, Wang C, Leung A, Lamond A, Misteli T, Huang S (Januar 2005). „Kondensiertes mitotisches Chromatin ist für Transkriptionsfaktoren und Chromatin-Strukturproteine zugänglich“ . The Journal of Cell Biology . 168 (1): 41–54 . doi : 10.1083/jcb.200407182 . PMC 2171683. PMID 15623580 .
- ^ Bustin M, Catez F, Lim JH (März 2005). „Die Dynamik der Histon-H1-Funktion im Chromatin“ . Molecular Cell . 17 (5): 617–20 . doi : 10.1016/j.molcel.2005.02.019 . PMID 15749012 .
- ^ Xiao B, Freedman BS, Miller KE, Heald R, Marko JF (Dezember 2012). „Histon H1 verdichtet DNA unter Krafteinwirkung und während der Chromatinassemblierung“ . Molecular Biology of the Cell . 23 (24): 4864–71 . doi : 10.1091/mbc.E12-07-0518 . PMC 3521692. PMID 23097493 .
- ^ Freedman BS, Miller KE, Heald R (September 2010). Cimini D (Hrsg.). „Xenopus-Eizellextrakte erhöhen die Dynamik von Histon H1 auf Spermienchromatin“ . PLOS ONE . 5 (9) e13111. Bibcode : 2010PLoSO...513111F . doi : 10.1371/journal.pone.0013111 . PMC 2947519. PMID 20927327 .
- ^ Steinbach OC, Wolffe AP, Rupp RA (September 1997). „Somatische Linkerhistone verursachen den Verlust der mesodermalen Kompetenz in Xenopus“. Nature . 389 ( 6649): 395–9 . Bibcode : 1997Natur.389..395S . doi : 10.1038/38755 . PMID 9311783. S2CID 4390287 .
- ^ De S, Brown DT, Lu ZH, Leno GH, Wellman SE, Sittman DB (Juni 2002). „Histon-H1-Varianten hemmen die DNA-Replikation unterschiedlich durch eine Affinität zu Chromatin, die durch ihre Carboxyl-terminalen Domänen vermittelt wird“. Gene . 292 ( 1–2 ): 173–81 . doi : 10.1016/S0378-1119(02)00675-3 . PMID 12119111 .
- ^ Khochbin S (Juni 2001). „Histon-H1-Diversität: Verbindung regulatorischer Signale mit der Linker-Histon-Funktion“ . Gene . 271 (1): 1–12 . doi : 10.1016/S0378-1119(01)00495-4 . PMID 11410360 .
- ^ Godde JS, Ura K (März 2008). „Entschlüsselung des rätselhaften Linker-Histon-Codes“ . Journal of Biochemistry . 143 (3): 287–93 . doi : 10.1093/jb/mvn013 . PMID 18234717 .
- ^ Happel N, Doenecke D (Februar 2009). „Histon H1 und seine Isoformen: Beitrag zur Chromatin-Struktur und -Funktion“ . Gene . 431 ( 1–2 ): 1–12 . doi : 10.1016/j.gene.2008.11.003 . PMID 19059319 .
- ^ Harshman SW, Young NL, Parthun MR, Freitas MA (November 2013). „H1-Histone: Aktuelle Perspektiven und Herausforderungen“ . Nucleic Acids Research . 41 (21): 9593–609 . doi : 10.1093/nar/gkt700 . PMC 3834806. PMID 23945933 .