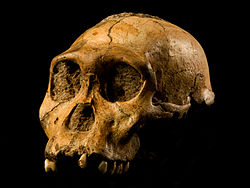
−10 — – −9 — – −8 — – −7 — – −6 — – −5 — – −4 — – −3 — – −2 — – −1 — – 0 — | ( O. praegens ) ( O. tugenensis ) ( Ar. kadabba ) ( Ar. ramidus ) H. habilis ( H. rudolfensis )( Au. garhi ) H. erectus ( H. antecessor )( H. ergaster )( Au. sediba ) |
| ||||||||||||||||||||||||||
Die menschliche Taxonomie ist die Klassifizierung der menschlichen Spezies innerhalb der zoologischen Taxonomie. Die systematische Gattung Homo umfasst sowohl anatomisch moderne Menschen als auch ausgestorbene Varianten archaischer Menschen . Heutige Menschen werden als Unterart des Homo sapiens klassifiziert und unterscheiden sich, einigen zufolge, vom direkten Vorfahren Homo sapiens idaltu (andere Forschungen ordnen idaltu und heutige Menschen hingegen derselben Unterart zu [ 1 ] [ 2 ] [ 3 ] ).
Seit der Einführung systematischer Nomenklatur im 18. Jahrhundert hat sich das Wissen über die menschliche Evolution deutlich erweitert, und im 20. und frühen 21. Jahrhundert wurden zahlreiche intermediäre Taxa vorgeschlagen. Die am weitesten verbreitete taxonomische Einteilung geht davon aus, dass die Gattung Homo vor zwei bis drei Millionen Jahren entstand und in mindestens zwei Arten unterteilt ist: den archaischen Homo erectus und den modernen Homo sapiens . Darüber hinaus gibt es etwa ein Dutzend weiterer Artenvorschläge, die jedoch keine allgemeine Anerkennung finden.
Die Gattung Homo gehört zusammen mit den Schimpansen ( Pan ) zum Tribus Hominini . Man geht davon aus, dass sich die beiden Gattungen im Laufe eines langen Zeitraums der Hybridisierung vor etwa 10 bis 6 Millionen Jahren auseinanderentwickelt haben , wobei eine Vermischung möglicherweise noch vor 4 Millionen Jahren stattfand. Ein Subtribus von unsicherer Gültigkeit, der archaische „vormenschliche“ oder „paramenschliche“ Arten umfasst, die jünger sind als die Trennung von Homo und Pan , ist Australopithecina (vorgeschlagen 1939).
Ein Vorschlag von Wood und Richmond (2000) sieht vor, Hominina als Subtribus neben Australopithecina einzuführen, wobei Homo die einzige bekannte Gattung innerhalb von Hominina wäre. Alternativ könnten, nach Cela-Conde und Ayala (2003), die „vormenschlichen“ oder „protomenschlichen“ Gattungen Australopithecus , Ardipithecus , Praeanthropus und möglicherweise Sahelanthropus gleichberechtigt neben die Gattung Homo gestellt werden . Eine noch extremere Ansicht lehnt die Aufteilung von Pan und Homo in separate Gattungen ab, was, basierend auf dem Prioritätsprinzip, die Umklassifizierung von Schimpansen als Homo paniscus (oder ähnlich) implizieren würde . [ 4 ]
Die Kategorisierung von Menschen anhand ihrer Phänotypen ist ein gesellschaftlich kontroverses Thema. Biologen klassifizierten Rassen ursprünglich als Unterarten , doch moderne Anthropologen lehnen das Konzept der Rasse als hilfreiches Instrument zum Verständnis der Menschheit ab und betrachten sie stattdessen als ein komplexes, genetisch eng miteinander verbundenes Kontinuum. Die Taxonomie der Homininen entwickelt sich stetig weiter. [ 5 ] [ 6 ]
Geschichte

Die menschliche Taxonomie befasst sich einerseits mit der Einordnung des Menschen in die Taxonomie der Hominiden (Menschenaffen) und andererseits mit der Unterteilung archaischer und moderner Menschen in Arten und gegebenenfalls Unterarten . Die moderne zoologische Taxonomie wurde von Carl von Linné in den 1730er- bis 1750er-Jahren entwickelt. Er war der Erste, der die Idee entwickelte, dass – wie andere biologische Einheiten – auch Gruppen von Menschen eine gemeinsame taxonomische Klassifizierung haben könnten. [ 7 ] Er benannte die menschliche Art 1758 als Homo sapiens , als einzige Art der Gattung Homo , unterteilt in mehrere Unterarten, die den großen Rassen entsprechen . Das lateinische Substantiv homō (Genitiv hominis ) bedeutet „Mensch“. Der systematische Name Hominidae für die Familie der Menschenaffen wurde 1825 von John Edward Gray eingeführt. [ 8 ] Gray nannte außerdem Hominini als Namen für den Stamm , zu dem sowohl Schimpansen (Gattung Pan ) als auch Menschen (Gattung Homo ) gehören.
Die Entdeckung der ersten ausgestorbenen archaischen Menschenart im Fossilienbestand datiert aus der Mitte des 19. Jahrhunderts: Homo neanderthalensis , klassifiziert 1864. Seither wurden zahlreiche weitere archaische Arten benannt, doch besteht kein allgemeiner Konsens über ihre genaue Anzahl. Nach der Entdeckung von H. neanderthalensis , der, obwohl er als „archaisch“ gilt, eindeutig als Mensch erkennbar ist, beschäftigte sich die Anthropologie vom späten 19. bis zum frühen 20. Jahrhundert eine Zeit lang mit der Suche nach dem vermeintlich „ fehlenden Bindeglied “ zwischen Homo und Pan . Der „ Piltdown-Mensch “-Schwindel von 1912 war die betrügerische Präsentation einer solchen Übergangsart. Seit Mitte des 20. Jahrhunderts ist das Wissen über die Entwicklung der Hominiden wesentlich detaillierter geworden, und die taxonomische Terminologie wurde mehrfach angepasst, um dies widerzuspiegeln.
Die Einführung von Australopithecus als dritte Gattung neben Homo und Pan innerhalb der Tribus Hominini geht auf Raymond Dart (1925) zurück. Die Subtribus Australopithecina , die neben Australopithecus auch Paranthropus umfasst ( Broom 1938), ist ein Vorschlag von Gregory & Hellman (1939). Zu den neueren Vorschlägen für die Subtribus Australopithecina gehören Ardipithecus (1995) und Kenyanthropus (2001). Die Stellung von Sahelanthropus (2002) innerhalb der Hominini im Verhältnis zu Australopithecina ist unklar. Cela-Conde und Ayala (2003) schlagen die Anerkennung von Australopithecus , Ardipithecus , Praeanthropus und Sahelanthropus (letzterer incertae sedis ) als eigenständige Gattungen vor . [ 9 ]
Weitere vorgeschlagene Gattungen, die heute größtenteils zu Homo gezählt werden , sind: Pithecanthropus (Dubois, 1894), Protanthropus (Haeckel, 1895), Sinanthropus (Black, 1927), Cyphanthropus (Pycraft, 1928), Africanthropus (Dreyer, 1935), [ 10 ] Telanthropus (Broom & Anderson 1949), Atlanthropus (Arambourg, 1954), Tchadanthropus (Coppens, 1965).
Die Gattung Homo entstand vermutlich vor etwa zwei Millionen Jahren, seit in den 1960er Jahren Steinwerkzeuge in der Olduvai-Schlucht in Tansania entdeckt wurden. Homo habilis (Leakey et al. , 1964) wäre definitionsgemäß die erste „menschliche“ Art (Mitglied der Gattung Homo ), deren Typusexemplar die Fossilien OH 7 sind . Die Entdeckung weiterer Fossilien dieses Typs hat jedoch die Debatte um die Abgrenzung von H. habilis von Australopithecus neu entfacht . Insbesondere das 2013 entdeckte Kieferknochenfossil LD 350-1 , datiert auf 2,8 Millionen Jahre, wird als Übergangsfossil zwischen den beiden diskutiert. [ 11 ] Es ist auch umstritten, ob H. habilis der erste Hominine war, der Steinwerkzeuge benutzte, da Australopithecus garhi , datiert auf etwa 2,5 Millionen Jahre, zusammen mit Steinwerkzeugen gefunden wurde. [ 12 ] Das Fossil KNM-ER 1470 (entdeckt 1972, von Alekseyev 1978 als Pithecanthropus rudolfensis bezeichnet ) wird heute entweder als dritte frühe Homo- Art (neben H. habilis und H. erectus ) vor etwa 2 Millionen Jahren oder alternativ als Übergangsform zwischen Australopithecus und Homo angesehen . [ 13 ]
Wood und Richmond (2000) schlugen vor, Grays Tribus Hominini („Homininen“) per Definition alle Arten nach dem letzten gemeinsamen Vorfahren von Schimpanse und Mensch zu umfassen, einschließlich Australopithecinen und anderer möglicher prä- oder para-menschlicher Arten (wie Ardipithecus und Sahelanthropus ), die zu Grays Zeiten unbekannt waren. [ 14 ] In diesem Vorschlag sollte die neue Subtribus Hominina ausschließlich die Gattung Homo umfassen, sodass Hominini zwei Subtriben, Australopithecina und Hominina, hätte, wobei Homo die einzige bekannte Gattung innerhalb von Hominina wäre . Orrorin (2001) wurde als möglicher Vorfahre von Hominina, jedoch nicht von Australopithecina, vorgeschlagen. [ 15 ]
Alternativ zu Hominina wurden folgende Bezeichnungen vorgeschlagen: Australopithecinae (Gregory & Hellman 1939) und Preanthropinae (Cela-Conde & Altaba 2002). [ 16 ] [ 17 ] [ 18 ]
Spezies
Mindestens ein Dutzend weitere Homo- Arten neben Homo sapiens wurden vorgeschlagen, wobei unterschiedlicher Konsens darüber herrscht. Die meisten dieser vorgeschlagenen Arten werden alternativ entweder Homo erectus oder Homo sapiens als Unterart zugeordnet. Dies betrifft insbesondere Homo ergaster . [ 19 ] [ 20 ] Ein Vorschlag unterteilt Homo erectus in eine afrikanische und eine asiatische Variante; die afrikanische ist Homo ergaster, die asiatische Homo erectus sensu stricto. (Die Einbeziehung von Homo ergaster in den asiatischen Homo erectus ergibt Homo erectus sensu lato. ) [ 21 ] Angesichts der Verfügbarkeit immer schwieriger zu klassifizierender Fossilien wie den Dmanisi-Schädeln (2013) oder den Homo-naledi -Fossilien (2015) scheint sich ein Trend abzuzeichnen, alle archaischen Varietäten unter Homo erectus zusammenzufassen . [ 22 ] [ 23 ] [ 24 ]
| Abstammungslinien | Zeitlicher Bereich ( kya ) | Lebensraum | Erwachsenengröße | Erwachsenenmasse | Schädelvolumen ( cm³ ) | Fossilienbestand | Entdeckung | Namensveröffentlichung |
|---|---|---|---|---|---|---|---|---|
| H. habilis Zugehörigkeit zu Homo unsicher | 2.100–1.500 [ a ] [ b ] | Tansania | 110–140 cm (3 Fuß 7 Zoll – 4 Fuß 7 Zoll) | 33–55 kg (73–121 lb) | 510–660 | Viele | 1960 | 1964 |
| Die Zugehörigkeit von H. rudolfensis zu Homo ist ungewiss | 1.900 | Kenia | 700 | 2 Standorte | 1972 | 1986 | ||
| H. gautengensis wird auch als H. habilis klassifiziert | 1900–600 | Südafrika | 100 cm (3 Fuß 3 Zoll) | 3 Personen [ 27 ] [ c ] | 2010 | 2010 | ||
| H. erectus | 2000–140 [ 28 ] [ d ] [ 30 ] [ e ] | Afrika , Eurasien | 180 cm (5 Fuß 11 Zoll) | 60 kg (130 lb) | 850 (früh) – 1.100 (spät) | Viele [ f ] [ g ] | 1891 | 1892 |
| H. ergaster Afrikanischer H. erectus | 1.800–1.300 [ 32 ] | Ost- und Südafrika | 700–850 | Viele | 1949 | 1975 | ||
| H. Vorgänger | 1.200–800 | Westeuropa | 175 cm (5 Fuß 9 Zoll) | 90 kg (200 lb) | 1.000 | 2 Standorte | 1994 | 1997 |
| H. heidelbergensis früher H. neanderthalensis | 600–300 [ h ] | Europa, Afrika | 180 cm (5 Fuß 11 Zoll) | 90 kg (200 lb) | 1.100–1.400 | Viele | 1907 | 1908 |
| H. cepranensis ein einzelnes Fossil, möglicherweise H. heidelbergensis | ca. 450 [ 33 ] | Italien | 1.000 | 1 Schädelkappe | 1994 | 2003 | ||
| H. longi | 309–138 [ 34 ] | Nordostchina | 1.420 [ 35 ] | 1 Einzelperson | 1933 | 2021 | ||
| H. rhodesiensis früher H. sapiens | ca. 300 | Sambia | 1.300 | Einzeln oder nur sehr wenige | 1921 | 1921 | ||
| H. naledi | ca. 300 [ 36 ] | Südafrika | 150 cm (4 Fuß 11 Zoll) | 45 kg (99 lb) | 450 | 15 Personen | 2013 | 2015 |
| Homo sapiens (anatomisch moderner Mensch) | ca. 300–heute [ i ] | Weltweit | 150–190 cm (4 Fuß 11 Zoll – 6 Fuß 3 Zoll) | 50–100 kg (110–220 lb) | 950–1.800 | (vorhanden) | — | 1758 |
| H. neanderthalensis | 240– 40 [ 39 ] [ j ] | Europa, Westasien | 170 cm (5 Fuß 7 Zoll) | 55–70 kg (121–154 lb) (kräftig gebaut) | 1.200–1.900 | Viele | 1829 | 1864 |
| Die Klassifizierung von H. floresiensis ist unsicher. | 190–50 | Indonesien | 100 cm (3 Fuß 3 Zoll) | 25 kg (55 lb) | 400 | 7 Personen | 2003 | 2004 |
| Nesher Ramla Homo -Klassifizierung unsicher | 140–120 | Israel | mehrere Personen | 2021 | ||||
| Penghu 1 möglicherweise H. erectus oder Denisova | ca. 100 [ k ] | Taiwan | 1 Einzelperson | 2008(?) | 2015 | |||
| H. luzonensis | c. 67 [ 42 ] [ 43 ] | Philippinen | 3 Personen | 2007 | 2019 | |||
| Denisova-Hominine | 40 | Sibirien | 2 Standorte | 2000 | 2010 [ l ] |
Unterart
Homo sapiens Unterart

Die Anerkennung oder Nichtanerkennung von Unterarten des Homo sapiens hat eine komplexe Geschichte. Der Rang der Unterarten in der Zoologie wurde aus praktischen Gründen und nicht aufgrund objektiver Kriterien eingeführt, sondern basiert auf pragmatischen Überlegungen zu Faktoren wie geografischer Isolation und sexueller Selektion . Der informelle taxonomische Rang der Rasse wird mal als gleichwertig, mal als untergeordnet zum Rang der Unterarten betrachtet, und die Einteilung des anatomisch modernen Menschen ( Homo sapiens ) in Unterarten ist eng mit der Anerkennung größerer Rassengruppen auf Grundlage menschlicher genetischer Variation verbunden .
Eine Unterart kann nicht unabhängig anerkannt werden: Eine Art wird entweder als ohne Unterarten oder mit mindestens zwei Unterarten (einschließlich ausgestorbener) anerkannt. Daher ist die Bezeichnung einer rezenten Unterart von Homo sapiens sapiens nur dann sinnvoll, wenn mindestens eine weitere Unterart anerkannt wird. H. s. sapiens wird gemäß dem taxonomischen Koordinationsprinzip auf Linnaeus (1758) zurückgeführt . [ 45 ] Vom 19. bis zur Mitte des 20. Jahrhunderts war es üblich, die Hauptgruppen des rezenten H. sapiens als Unterarten zu klassifizieren, in Anlehnung an Linnaeus (1758), der H. s. americanus , H. s. europaeus , H. s. asiaticus und H. s. afer als Gruppen der einheimischen Populationen Amerikas , Westeurasiens , Ostasiens bzw. Subsahara -Afrikas anerkannt hatte . Linnaeus erwähnte auch H. s. ferus für die „wilde“ Form, die er mit verwilderten Kindern gleichsetzte , sowie zwei weitere „wilde“ Formen für gemeldete Exemplare, die heute als sehr zweifelhaft gelten (siehe Kryptozoologie ): H. s. monstrosus und H. s. troglodytes . [ 46 ]
Es gab Variationen und Ergänzungen zu den Kategorien von Linnaeus, wie z. B. H. s. tasmanianus für die einheimische Bevölkerung Australiens. [ 47 ] Bory de St. Vincent erweiterte in seinem Essai sur l'Homme (1825) Linnés „ Rassen “-Kategorien auf bis zu fünfzehn: Leiotrichi („ glatthaarig “): japeticus (mit Unterrassen), arabicus , iranicus , indicus , sinicus , hyperboreus , neptunianus , australasicus , columbicus , Americanus , Patagonicus ; Oulotrichi („ Kraushaarig “): Aethiopicus , Cafer , Hottentotus , Melaninus . [ 48 ] In ähnlicher Weise hatte auch Georges Vacher de Lapouge (1899) Kategorien, die auf der Rasse basierten, wie z. B. Priscus , Spelaeus (usw.).
Homo sapiens neanderthalensis wurde von King (1864) als Alternative zu Homo neanderthalensis vorgeschlagen . [ 49 ] Seit ihrer Entdeckung in den 1860er Jahren gab es „taxonomische Auseinandersetzungen“ darüber, ob Neandertaler eine eigene Art darstellten. Pääbo (2014) bezeichnet diese Debatte als prinzipiell unlösbar, „da es keine Artdefinition gibt, die den Fall perfekt beschreibt“. [ 50 ] Louis Lartet (1869) schlugbasierend auf den Cro-Magnon-Fossilien Homo sapiens fossilis vor .
Im 20. Jahrhundert wurden mehrere Vorschläge für ausgestorbene Varietäten des Homo sapiens unterbreitet. Viele der ursprünglichen Vorschläge verwendeten keine explizite trinomiale Nomenklatur , obwohl sie von Wilson & Reeder (2005) weiterhin als gültige Synonyme von H. sapiens angeführt werden. [ 51 ] Dazu gehören: Homo grimaldii (Lapouge, 1906), Homo aurignacensis hauseri (Klaatsch & Hauser, 1910), Notanthropus eurafricanus (Sergi, 1911), Homo fossilis infrasp. proto-aethiopicus (Giuffrida-Ruggeri, 1915), Telanthropus capensis (Broom, 1917), [ 52 ] Homo wadjakensis (Dubois, 1921), Homo sapiens cro-magnonensis , Homo sapiens grimaldiensis (Gregory, 1921), Homo drennani (Kleinschmidt, 1931), [ 53 ] Homo galilensis (Joleaud, 1931) = Paleanthropus palestinus (McCown & Keith, 1932). [ 54 ] Rightmire (1983) schlug Homo sapiens rhodesiensis vor . [ 55 ]
Nach dem Zweiten Weltkrieg ging die Praxis, die Populationen des Homo sapiens in Unterarten zu unterteilen, zurück. Grzimeks Tierleben (1967–1972) war einer der ersten Wissenschaftler, der die Unterteilung des H. sapiens in Unterarten ausdrücklich vermied. [ 56 ] Ein späteres Beispiel für einen Wissenschaftler, der vorschlug, die menschlichen Rassen als taxonomische Unterarten zu betrachten, ist John Baker (1974). [ 57 ] Die trinomiale Nomenklatur Homo sapiens sapiens wurde in der zweiten Hälfte des 20. Jahrhunderts für „moderne Menschen“ populär, nachdem Neandertaler als Unterart des H. sapiens angesehen wurden . Sie leitet sich von der in den 1980er Jahren weit verbreiteten Konvention ab, zwei Unterarten zu unterscheiden: H. s. neanderthalensis und H. s. neanderthalensis. Die explizite Behauptung, dass „ H. s. sapiens die einzige noch existierende menschliche Unterart ist“, taucht Anfang der 1990er Jahre auf. [ 58 ]
Seit den 2000er Jahren genießt der ausgestorbene Homo sapiens idaltu (White et al. , 2003) breite Anerkennung als Unterart des Homo sapiens . Allerdings gibt es auch hier eine abweichende Meinung, die argumentiert, dass „die Schädel möglicherweise nicht charakteristisch genug sind, um einen neuen Unterartnamen zu rechtfertigen“. [ 59 ] H. s. neanderthalensis und H. s. rhodesiensis werden von einigen Experten weiterhin als separate Arten betrachtet. Die Entdeckung genetischer Beweise für die Vermischung archaischer Menschen mit modernen Menschen in den 2010er Jahren hat jedoch die Details der Taxonomie archaischer Menschen neu aufgerollt. [ 60 ]
Homo erectus Unterarten
Homo erectus wurde seit seiner Einführung im Jahr 1892 in zahlreiche Unterarten unterteilt, von denen viele früher als eigenständige Arten der Gattung Homo galten . Keine dieser Unterarten genießt unter Paläontologen allgemeine Anerkennung.
- Homo erectus erectus ( Java-Mensch ) (1970er Jahre) [ 61 ]
- Homo erectus yuanmouensis ( Yuanmou-Mensch ) (Li et al., 1977)
- Homo erectus lantianensis ( Lantian-Mensch ) (Woo Ju-Kang, 1964)
- Homo erectus nankinensis ( Nanjing-Mensch ) (1993)
- Homo erectus pekinensis ( Peking-Mensch ) (1970er Jahre) [ 61 ]
- Homo erectus palaeojavanicus ( Meganthropus ) (Tyler, 2001)
- Homo erectus soloensis ( Alleinmensch ) (Oppenoorth, 1932)
- Homo erectus tautavelensis ( Tautavel-Mensch ) (de Lumley und de Lumley, 1971)
- Homo erectus georgicus (1991)
- Homo erectus bilzingslebenensis (Vlček, 2002) [ 62 ]
- Homo erectus loganalis (2009)
Siehe auch
Fußnoten
- ^ Bestätigte Fossilien von Homo habilis stammen aus der Zeit zwischen 2,1 und 1,5 Millionen Jahren vor heute. Dieser Zeitraum überschneidet sich mit dem Auftreten von Homo erectus . [ 25 ] [ 26 ]
- ^ Homininen mit "proto-Homo"-Merkmalen könnten bereits vor 2,8 Millionen Jahren gelebt haben, wie ein im Jahr 2015 entdeckter fossiler Kieferknochen nahelegt, der als Übergangsform zwischen Australopithecus und Homo klassifiziert wird .
- ^ Eine im Jahr 2010 vorgeschlagene Art, basierend auf den Fossilienresten dreier Individuen, die auf ein Alter zwischen 1,9 und 0,6 Millionen Jahren datiert wurden. Dieselben Fossilien wurden von anderen Anthropologen auch als *H. habilis* , *H. ergaster* oder *Australopithecus* klassifiziert .
- Homo erectus existierte vermutlich vor etwa 2 Millionen Jahren. Fossilien, die auf ein Alter von bis zu 1,8 Millionen Jahren datiert sind, wurden sowohl in Afrika als auch in Südostasien gefunden, und einige der ältesten Fossilien (1,85 bis 1,77 Millionen Jahre alt) stammen aus dem Kaukasus. Das älteste bekannte Exemplar von Homo erectus ist ein 2,04 Millionen Jahre alter Schädel, DNH 134, aus Drimolen , Südafrika. [ 29 ]
- Homo erectus soloensis , gefunden auf Java , gilt als der letzte bekannte Überlebende von H. erectus . Früher wurde sein Aussterben auf 50.000 bis 40.000 Jahre vor heute datiert, doch eine Studie aus dem Jahr 2011 verschob das Datum des Aussterbens von H. e. soloensis auf spätestens 143.000 Jahre vor heute, wahrscheinlich aber eher vor 550.000 Jahren. [ 31 ]
- ^ Zu H. erectus gehörennun auch der Peking-Mensch (früher Sinanthropus pekinensis ) und der Java-Mensch (früher Pithecanthropus erectus ).
- ^ H. erectus wird heute in verschiedene Unterarten eingeteilt, darunter Homo erectus erectus , Homo erectus yuanmouensis , Homo erectus lantianensis , Homo erectus nankinensis , Homo erectus pekinensis , Homo erectus palaeojavanicus , Homo erectus soloensis , Homo erectus tautavelensis , Homo erectus georgicus . Die Abgrenzung zu Nachkommenarten wie Homo ergaster , Homo floresiensis , Homo antecessor , Homo heidelbergensis und eben auch Homo sapiens ist nicht ganz klar.
- Das Typusfossil ist Mauer 1 , datiert auf ca. 0,6 Millionen Jahre vor heute. Der Übergang von Homo heidelbergensis zu Homo neanderthalensis vor 300.000 bis 243.000 Jahren gilt als Standard und beruht auf der Tatsache, dass aus diesem Zeitraum keine Fossilien bekannt sind. Beispiele für Homo heidelbergensis sind Fossilienfunde aus Bilzingsleben (dort auch als Homo erectus bilzingslebensis klassifiziert ).
- Das Alter des Homo sapiens wurde lange Zeit auf etwa 200.000 Jahre geschätzt, doch seit 2017 gibt es mehrere Hinweise darauf, dass dieses Alter auf bis zu 300.000 Jahre ausgedehnt werden könnte. Fossilienfunde aus dem Jahr 2017 in Jebel Irhoud ( Marokko ) deuten darauf hin, dass sich der Homo sapiens bereits vor 315.000 Jahren abspaltete. [ 37 ] Genetische Belege sprechen für ein Alter von etwa 270.000 Jahren. [ 38 ]
- Die ersten Menschen mit „proto-neandertalerartigen Merkmalen“ lebten in Eurasien bereits vor 0,6 bis 0,35 Millionen Jahren (klassifiziert als *Homo heidelbergensis* , auch Chronospezies genannt , da sie eine chronologische Gruppierung darstellt und nicht auf klaren morphologischen Unterschieden zu *Homo erectus* oder * Homo neanderthalensis* basiert). In Europa besteht eine Fossilienlücke zwischen 300.000 und 243.000 Jahren vor heute; Fossilien, die jünger als 243.000 Jahre sind, werden üblicherweise als „Neandertaler“ bezeichnet. [ 40 ]
- ^ jünger als 450 kya, entweder zwischen 190–130 kya oder zwischen 70–10 kya [ 41 ]
- ^ vorläufige Namen Homo sp. Altai oder Homo sapiens ssp. Denisova .
Referenzen
- ^ Stringer, Chris (12. Juni 2003) . „Die menschliche Evolution: Aus Äthiopien heraus“. Nature . 423 (6941): 693–695 . Bibcode : 2003Natur.423..692S . doi : 10.1038/423692a . PMID 12802315. S2CID 26693109 .
- ^ „Herto-Schädel (Homo sapiens idaltu)“ . talkorigins org . Abgerufen am 7. Juni 2016 .
- ^ Stringer, C. (2016). „Der Ursprung und die Evolution des Homo sapiens“ . Philosophical Transactions of the Royal Society B: Biological Sciences . 371 (1698) 20150237. doi : 10.1098/rstb.2015.0237 . PMC 4920294. PMID 27298468 .
- ^ Jared Diamond in „ Der dritte Schimpanse “ (1991) und Morris Goodman (2003) . Hecht, Jeff (19. Mai 2003). „Schimpansen sind Menschen, wie eine Genstudie nahelegt“ . New Scientist . Abgerufen am 8. Dezember 2011 .
- ^ K. Wagner, Jennifer (2016). „Anthropologische Ansichten zu Rasse, Abstammung und Genetik“ . American Journal of Physical Anthropology . 162 (2): 318–327 . doi : 10.1002/ ajpa.23120 . PMC 5299519. PMID 27874171 .
- ^ „AAA-Erklärung zur Rassenfrage“ . Amerikanische Anthropologische Vereinigung .
- ^ Marks, Jonathan (Mai 2007). „ Der lange Schatten von Linnaeus’ menschlicher Taxonomie“ . Nature . 447 (7140): 28. Bibcode : 2007Natur.447Q..28M . doi : 10.1038/447028a . PMID 17476243. S2CID 33066198 .
- ^ Gray, J. E. (1825). „Ein Entwurf für den Versuch der Einteilung der Säugetiere in Stämme und Familien mit einer Liste der Gattungen, die anscheinend zu jedem Stamm gehören“. Annalen der Philosophie . Neue Serie: 337–344 . NAID 10026538759 .
- ^ Cela-Conde, CJ; Ayala, FJ (2003). „Genera of the human lineage“ . Proceedings of the National Academy of Sciences . 100 (13): 7684–7689 . Bibcode : 2003PNAS..100.7684C . doi : 10.1073 / pnas.0832372100 . PMC 164648. PMID 12794185 .
- ^ Eingeführt für den Florisbad-Schädel (entdeckt 1932, Homo florisbadensis oder Homo helmei ). Auch die Gattung , die Weinert (1938)für eine Reihe archaischer menschlicher Schädel vorschlug, die am Eyasi-See gefunden wurden. Leaky, Journal of the East Africa Natural History Society (1942), S. 43 .
- ^ Villmoare, B. (2015). „Früher Homo bei 2,8 Ma aus Ledi-Geraru, Afar, Äthiopien“ . Wissenschaft . 347 (6228): 1352–1355 . Bibcode : 2015Sci...347.1352V . doi : 10.1126/science.aaa1343 . PMID 25739410 . Einige Paläoanthropologen betrachten das Taxon H. habilis als ungültig, da es aus Fossilien von Australopithecus und Homo besteht . (Tattersall, I. & Schwartz, JH, Extinct Humans , Westview Press, New York, 2001, S. 111.)
- ^ De Heinzelin, J.; Clark, J. D.; White, T.; Hart, W.; Renne, P.; Woldegabriel, G.; Beyene, Y.; Vrba, E. (1999). „Umwelt und Verhalten von 2,5 Millionen Jahre alten Hominiden aus Bouri“. Science . 284 (5414): 625–629 . Bibcode : 1999Sci...284..625D . doi : 10.1126/science.284.5414.625 . PMID 10213682 .
- ^ Kaplan, Matt (8. August 2012). „Fossilien deuten auf eine große Familie menschlicher Vorfahren hin“. Nature . doi : 10.1038/nature.2012.11144 . S2CID 87482930 .
- ^ Wood, Bernard; Richmond, Brian G. (2000). „Die Evolution des Menschen: Taxonomie und Paläobiologie“ . Journal of Anatomy . 197 (Teil 1): 19–60 . doi : 10.1046/j.1469-7580.2000.19710019.x . PMC 1468107. PMID 10999270 .
- ^ Reynolds, Sally C.; Gallagher, Andrew (29. März 2012). Afrikanische Genesis: Perspektiven der Homininen-Evolution . Cambridge University Press. ISBN 978-1-107-01995-9Die
- ^ Brunet, Michel; Kerl, Franck; Pilbeam, David; Mackaye, Hassane Taisso; Likius, Andossa; Ahounta, Djimdoumalbaye; Beauvilain, Alain; Blondel, Cécile; Bocherens, Hervé; Boisserie, Jean-Renaud; De Bonis, Louis; Coppens, Yves; Dejax, Jean; Denys, Christiane; Whileer, Philippe; Eisenmann, Véra; Fanone, Gongdibé; Fronty, Pierre; Geraads, Denis; Lehmann, Thomas; Lihoreau, Fabrice; Louchart, Antoine; Mahamat, Adoum; Merceron, Gildas; Mouchelin, Guy; Otero, Olga; Campomanes, Pablo Pelaez; De Leon, Marcia Ponce; Wut, Jean-Claude; Sapanet, Michel; Schuster, Mathieu; Sudre, Jean; Tassy, Pascal; Valentin, Xavier; Vignaud, Patrick; Viriot, Laurent; Zazzo, Antoine; Zollikofer, Christoph (11. Juli 2002). „Ein neuer Hominide aus dem Obermiozän des Tschad, Zentralafrika“. Nature . 418 ( 6894): 145–151 . Bibcode : 2002Natur.418..145B . doi : 10.1038/nature00879 . PMID 12110880. S2CID 1316969 .
- ^ Cela-Conde, CJ; Ayala, FJ (2003). „ Genera of the human lineage“ . PNAS . 100 (13): 7684–7689 . Bibcode : 2003PNAS..100.7684C . doi : 10.1073/pnas.0832372100 . PMC 164648. PMID 12794185 .
- ^ Wood, B.; Lonergan, N. (2008). „Der Fossilienbestand der Homininen: Taxa, Grade und Kladen“ . Journal of Anatomy . 212 (4): 354–376 . doi : 10.1111/j.1469-7580.2008.00871.x . PMC 2409102. PMID 18380861 .
- ^ Hazarika, Manji (16.–30. Juni 2007). „ Homo erectus/ergaster und Out of Africa: Neuere Entwicklungen in der Paläoanthropologie und prähistorischen Archäologie“ (PDF) . Archiviert vom Original am 15. Oktober 2013.
- Klein , R. (1999). Die menschliche Laufbahn: Biologische und kulturelle Ursprünge des Menschen . Chicago, IL: University of Chicago Press . ISBN 0-226-43963-1Die
- ^ Antón, SC (2003). „Naturgeschichte des Homo erectus“ . American Journal of Physical Anthropology . 122 : 126–170 . doi : 10.1002/ajpa.10399 . PMID 14666536.
In den 1980er Jahren führte die wachsende Zahl von
Homo-erectus
-Funden, insbesondere in Afrika, zu der Erkenntnis, dass der asiatische
Homo erectus
(
Homoerectus sensu stricto
), der einst als so primitiv galt, tatsächlich entwickelter war als seine afrikanischen Verwandten. Diese morphologischen Unterschiede wurden von einigen als Hinweis darauf interpretiert, dass mehr als eine Art zu
*Homo erectus* sensu lato
gehören könnte
(z. B. Stringer, 1984; Andrews, 1984; Tattersall, 1986; Wood, 1984, 1991a, b; Schwartz und Tattersall, 2000). … Im Gegensatz zur europäischen Linie sind die taxonomischen Fragen bezüglich asiatischer und afrikanischer *Homo erectus* meiner Ansicht nach deutlich komplexer. Am deutlichsten wurde dieses Problem mit der Benennung von *Homo ergaster* auf Grundlage des Typus-Unterkiefers KNM-ER 992, aber auch unter Einbeziehung des Teilskeletts und einzelner Zähne von KNM-ER 803 sowie anderer Funde aus Koobi Fora (Groves und Mazak, 1975). Kürzlich wurde diese spezifische Bezeichnung für die meisten frühen afrikanischen und georgischen H. erectus-Funde verwendet, um deren im Vergleich zu asiatischen H. erectus weniger abgeleiteten Charakter zu würdigen (siehe Wood, 1991a, S. 268; Gabunia et al., 2000a). Zumindest Teile des Paratypus von H. ergaster (z. B. KNM-ER 1805) werden in den meisten aktuellen Auffassungen dieses Taxons nicht berücksichtigt. Die Frage um
H. ergaster
ist nach wie vor ungeklärt (z. B. Stringer, 1984; Tattersall, 1986; Wood, 1991a, 1994; Rightmire, 1998b; Gabunia et al., 2000a; Schwartz und Tattersall, 2000), nicht zuletzt, weil die ursprüngliche Diagnose keinen Vergleich mit den asiatischen Fossilienfunden vorsah.
- ^ Perkins, Sid (17. Oktober 2013). „Schädel deutet darauf hin, dass drei frühe menschliche Arten eine waren“. Nature . doi : 10.1038/nature.2013.13972 .
- ^ Lordkipanidze, David; Ponce de Leòn, Marcia S.; Margvelashvili, Ann; Rak, Yoel; Rightmire, G. Philip; Vekua, Abesalom; Zollikofer, Christoph PE (18. Oktober 2013). „Ein vollständiger Schädel aus Dmanisi, Georgien, und die Evolutionsbiologie des frühen Homo“. Science . 342 ( 6156): 326–331 . Bibcode : 2013Sci...342..326L . doi : 10.1126/science.1238484 . PMID 24136960. S2CID 20435482 .
- ^ Switek, Brian (17. Oktober 2013). „Wunderschöner Schädel löst Debatte über die Menschheitsgeschichte aus“ . National Geographic . Archiviert vom Original am 17. Oktober 2013. Abgerufen am 22. September 2014 .
- ^ Schrenk F, Kullmer O, Bromage T (2007). „Die frühesten mutmaßlichen Homo- Fossilien“. In: Henke W, Tattersall I (Hrsg.). Handbuch der Paläoanthropologie . Band 1. In Zusammenarbeit mit Thorolf Hardt. Berlin, Heidelberg: Springer . S. 1611–1631 . doi : 10.1007/978-3-540-33761-4_52 . ISBN 978-3-540-32474-4Die
- ^ DiMaggio EN, Campisano CJ, Rowan J, Dupont-Nivet G, Deino AL, Bibi F, et al. (März 2015). „Paläoanthropologie. Fossilienhaltige Sedimentaufzeichnungen des späten Pliozäns und der Umweltkontext des frühen Homo aus der Ferne, Äthiopien“. Wissenschaft . 347 (6228): 1355– 9. Bibcode : 2015Sci...347.1355D . doi : 10.1126/science.aaa1415 . PMID 25739409 . S2CID 43455561 .
- ^ Curnoe D (Juni 2010). „Eine Übersicht über frühe Homo-Arten im südlichen Afrika mit Schwerpunkt auf Schädel-, Unterkiefer- und Zahnresten sowie die Beschreibung einer neuen Art (Homo gautengensis sp. nov.)“. Homo . 61 (3): 151–77 . doi : 10.1016/j.jchb.2010.04.002 . PMID 20466364 .
- ^ Haviland WA, Walrath D, Prins HE , McBride B (2007). Evolution and Prehistory: The Human Challenge (8. Aufl.). Belmont, CA: Thomson Wadsworth . S. 162. ISBN 978-0-495-38190-7Die
- ^ Herries, Andy IR; Martin, Jesse M. (2020). „Gleichzeitigkeit von Australopithecus , Paranthropus und frühem Homo erectus in Südafrika“. Science . 368 ( 6486) eaaw7293. doi : 10.1126/science.aaw7293 . hdl : 11568/1040368 . PMID 32241925. S2CID 214763272 .
- ^ Ferring R, Oms O, Agustí J, Berna F, Nioradze M, Shelia T, et al. (Juni 2011). „Früheste menschliche Besiedlung in Dmanisi (Georgischer Kaukasus) datiert auf 1,85–1,78 Ma“ . Proceedings of the National Academy of Sciences of the United States of America . 108 (26): 10432–6 . Bibcode : 2011PNAS..10810432F . doi : 10.1073 / pnas.1106638108 . PMC 3127884. PMID 21646521 .
- ^ Indriati E, Swisher CC, Lepre C, Quinn RL, Suriyanto RA, Hascaryo AT, et al. (2011). „Das Alter der 20 Meter hohen Solo-Flussterrasse, Java, Indonesien und das Überleben des Homo erectus in Asien“ . PLUS EINS . 6 (6) e21562. Bibcode : 2011PLoSO...621562I . doi : 10.1371/journal.pone.0021562 . PMC 3126814 . PMID 21738710 .
- ^ Hazarika M (2007). „ Homo erectus/ergaster und Out of Africa: Neuere Entwicklungen in der Paläoanthropologie und prähistorischen Archäologie“ (PDF) . EAA Summer School eBook . Band 1. Europäische Anthropologische Vereinigung. S. 35–41 .
Intensivkurs in Biologischer Anthropologie, 1. Sommerschule der Europäischen Anthropologischen Vereinigung, 16.–30. Juni 2007, Prag, Tschechische Republik
- ^ Muttoni G, Scardia G, Kent DV, Swisher CC, Manzi G (2009). „Pleistozäne Magnetochronologie früher Homininenfundstätten in Ceprano und Fontana Ranuccio, Italien“. Earth and Planetary Science Letters . 286 ( 1–2 ): 255–268 . Bibcode : 2009E&PSL.286..255M . doi : 10.1016/j.epsl.2009.06.032 .
- ^ Ji Q, Wu W, Ji Y, Li Q, Ni X (25. Juni 2021). „Der spätmittelpleistozäne Schädel von Harbin repräsentiert eine neue Homo-Art“ . The Innovation . 2 (3) 100132. doi : 10.1016/j.xinn.2021.100132 . PMC 8454552. PMID 34557772 .
- ^ Ni X, Ji Q, Wu W, Shao Q, Ji Y, Zhang C, Liang L, Ge J, Guo Z, Li J, Li Q, Grün R, Stringer C (25. Juni 2021). „Massiver Schädel aus Harbin in Nordostchina begründet eine neue menschliche Abstammungslinie des Mittelpleistozäns“ . The Innovation . 2 (3) 100130. doi : 10.1016/j.xinn.2021.100130 . PMC 8454562. PMID 34557770 .
- ^ Dirks PH, Roberts EM, Hilbert-Wolf H, Kramers JD, Hawks J, Dosseto A, et al. (Mai 2017). „ Homo naledi und zugehörige Sedimente in der Rising Star Cave, Südafrika“ . eLife . 6 e24231. doi : 10.7554/eLife.24231 . PMC 5423772. PMID 28483040 .
- ^ Callaway, Ewan (7. Juni 2017). „Ältestes Homo-sapiens-Fossil: Die Behauptung, es sei das älteste Fossil unserer Spezies, schreibt die Geschichte unserer Spezies neu“ . Nature . doi : 10.1038/nature.2017.22114 . Abgerufen am 11. Juni 2017 .
- Posth C, Wißing C, Kitagawa K, Pagani L, van Holstein L, Racimo F, et al. (Juli 2017). „Tief divergentes archaisches mitochondriales Genom liefert untere Zeitgrenze für den afrikanischen Genfluss in Neandertaler“ . Nature Communications . 8 16046. Bibcode : 2017NatCo...816046P . doi : 10.1038/ncomms16046 . PMC 5500885. PMID 28675384 .
- ^ Bischoff JL, Shamp DD, Aramburu A, et al. (März 2003). „Die Hominiden von Sima de los Huesos datieren jenseits des U/Th-Gleichgewichts (>350 ka) und möglicherweise auf 400–500 ka: Neue radiometrische Datierungen“. Journal of Archaeological Science . 30 (3): 275–280 . doi : 10.1006/jasc.2002.0834 . ISSN 0305-4403 .
- Dean D, Hublin JJ, Holloway R, Ziegler R (Mai 1998). „Zur phylogenetischen Stellung des präneandertalischen Exemplars aus Reilingen, Deutschland“. Journal of Human Evolution . 34 (5): 485–508 . doi : 10.1006/jhev.1998.0214 . PMID 9614635 .
- ^ Chang CH, Kaifu Y, Takai M, Kono RT, Grün R, Matsu'ura S, et al. (Januar 2015). „Der erste archaische Homo aus Taiwan“ . Nature Communications . 6 : 6037. Bibcode : 2015NatCo...6.6037C . doi : 10.1038/ ncomms7037 . PMC 4316746. PMID 25625212 .
- ^ Détroit F, Mijares AS, Corny J, Daver G, Zanolli C, Dizon E, et al. (April 2019). „Eine neue Homo-Art aus dem späten Pleistozän der Philippinen“ (PDF) . Natur . 568 (7751): 181– 186. Bibcode : 2019Natur.568..181D . doi : 10.1038/s41586-019-1067-9 . PMID 30971845 . S2CID 106411053 .
- ^ Zimmer C (10. April 2019). „Eine neue Menschenart lebte einst in dieser philippinischen Höhle – Archäologen auf der Insel Luzon haben die Knochen einer entfernt verwandten Art, Homo luzonensis, entdeckt und damit den Stammbaum des Menschen erweitert . “ The New York Times . Abgerufen am 10. April 2019 .
- ^ Ralph, Bob (19. Februar 1987). „Conforming to type“ . New Scientist . Nr. 1548. S. 59.
Soweit ich weiß, existiert kein Typusmaterial für
Homo sapiens
. Um Linnaeus fairerweise zu erwähnen: Die Praxis, Typusexemplare beiseitezulegen, scheint sich erst etwa ein Jahrhundert später entwickelt zu haben.
- ^ „Artikel 46.1“. ICZN-Glossar (4. Aufl.). Internationaler Code der Zoologischen Nomenklatur . Archiviert vom Original am 03.03.2016 . Abgerufen am 04.06.2018 .
Erklärung des Koordinationsprinzips angewendet auf Artengruppennamen. Ein für ein Taxon einer der beiden Rangstufen der Artengruppe festgelegter Name gilt als gleichzeitig vom selben Autor für ein Taxon der anderen Rangstufe in der Gruppe festgelegt; beide nominellen Taxa haben denselben namensgebenden Typus, unabhängig davon, ob dieser Typus ursprünglich oder später festgelegt wurde.
Homo sapiens sapiens is rarely used before the 1940s. In 1946, John Wendell Bailey attributes the name to Linnaeus (1758) explicitly: "Linnaeus. Syst. Nat. ed. 10, Vol. 1. pp. 20, 21, 22, lists five races of man, viz: Homo sapiens sapiens (white — Caucasian) [...]", This is a misattribution, but H. s. sapiens has since often been attributed to Linnaeus. In actual fact, Linnaeus, Syst. Nat. ed. 10 Vol. 1. p. 21 does not have Homo sapiens sapiens, the "white" or "Caucasian" race being instead called Homo sapiens Europaeus. This is explicitly pointed out in Bulletin der Schweizerische Gesellschaft für Anthropologie und Ethnologie Volume 21 (1944), p. 18 (arguing not against H. s. sapiens but against "H. s. albus L." proposed by von Eickstedt and Peters): "die europide Rassengruppe, als Subspecies aufgefasst, [würde] Homo sapiens eurpoaeus L. heissen" ("the Europid racial group, considered as a subspecies, would be named H. s. europeaeus L."). See also: John R. Baker, Race, Oxford University Press (1974), 205. - ^Linné, Carl von (1758). Systema naturæ. Regnum animale (10 ed.). pp. 18ff.
- ^ See e.g. John Wendell Bailey, The Mammals of Virginia (1946), p. 356.; Journal of Mammalogy 26-27 (1945), p. 359.; J. Desmond Clark (ed.), The Cambridge History of Africa, Cambridge University Press (1982), p. 141 (with references).
- ^Annals of Philosophy 11, London (1826), p. 71
- ^Frederick S. Szalay, Eric Delson, Evolutionary History of the Primates (2013), 508
- ^Pääbo, Svante (2014). Neanderthal Man: In Search of Lost Genomes. New York: Basic Books. p. 237.
- ^Groves, C. P. (2005). Wilson, D. E.; Reeder, D. M. (eds.). Mammal Species of the World: A Taxonomic and Geographic Reference (3rd ed.). Baltimore: Johns Hopkins University Press. ISBN 0-801-88221-4. OCLC 62265494.
- ^Harrison, T. (2013). Kimbel, William H.; Martin, Lawrence B. (eds.). Species, Species Concepts and Primate Evolution. Springer. p. 361. ISBN 978-1-4899-3745-2.
- ^ MR Drennan, „Ein Australoidenschädel von den Cape Flats“, The Journal of the Royal Anthropological Institute of Great Britain and Ireland Vol. 59 (Jul. - Dez. 1929), 417-427.
- ^ Weitere Namen, die für Fossilien vorgeschlagen wurden, die später unter neanderthalensis subsumiert wurden , finden sich in: Delson, Eric; Tattersall, Ian; Couvering, John Van; Brooks, Alison S. (2004). Encyclopedia of Human Evolution and Prehistory (Zweite Auflage). Routledge . ISBN 978-1-135-58227-2Die
- ^ Rightmire, G. P. (3. Juni 1983). „Der Schädel vom Ndutu-See und frühe Homo sapiens in Afrika“. American Journal of Physical Anthropology . 61 (2): 245–54 . doi : 10.1002/ajpa.1330610214 . PMID 6410925 .
- ^ Englische Übersetzung (1972–1975): Grzimeks Tierleben-Enzyklopädie , Band 11, S. 55.
- ^ John R. Baker, Race , Oxford University Press (1974).
- ^ Kitahara, Michio (1991). Die Tragödie der Evolution: Der Mensch konfrontiert die moderne Gesellschaft . S. xi.
Wir sind die einzige überlebende Unterart des
Homo sapiens.
- ^ Stringer, Chris (12. Juni 2003). „ Die menschliche Evolution: Aus Äthiopien heraus“ . Nature . 423 (6941): 692–693 , 695. Bibcode : 2003Natur.423..692S . doi : 10.1038/423692a . PMID 12802315. S2CID 26693109 .
- ^ Hublin, JJ (2009). „ Der Ursprung der Neandertaler“ . Proceedings of the National Academy of Sciences . 106 (38): 16022–7 . Bibcode : 2009PNAS..10616022H . doi : 10.1073/pnas.0904119106 . JSTOR 40485013. PMC 2752594. PMID 19805257 . Harvati, K.; Frost, S. R.; McNulty, K. P. (2004). „Neandertaler-Taxonomie neu betrachtet: Implikationen von 3D-Primatenmodellen intra- und interspezifischer Unterschiede“ . Proceedings of the National Academy of Sciences . 101 (5): 1147–52 . Bibcode : 2004PNAS..101.1147H . doi : 10.1073/pnas.0308085100 . PMC 337021. PMID 14745010 .„ Homo neanderthalensis King, 1864“. Wiley-Blackwell Encyclopedia of Human Evolution . Chichester, West Sussex: Wiley-Blackwell . 2013. S. 328–331 .
- In den 1970er Jahren entwickelte sich die Tendenz, die javanische Variante von Homo erectus als Unterart, Homo erectus erectus , zu betrachten, während die chinesische Variante als Homo erectus pekinensis bezeichnet wurde . Siehe: Sartono, S. (12. Mai 2011). „ Implikationen aus Pithecanthropus VIII“ . In: Tuttle, Russell H. (Hrsg.). Paläoanthropologie: Morphologie und Paläoökologie . Walter de Gruyter. S. 328. ISBN 978-3-11-081069-1Die
- ↑ Emanuel Vlček: Der fossile Mensch von Bilzingsleben (= Bilzingsleben. Bd. 6 = Beiträge zur Ur- und Frühgeschichte Mitteleuropas 35). Beier & Beran, Langenweißbach 2002.