Immunglobulin M ( IgM ) ist der größte von mehreren Isotypen von Antikörpern (auch Immunglobulin genannt ), die von Wirbeltieren produziert werden . IgM ist der erste Antikörper, der als Reaktion auf den erstmaligen Kontakt mit einem Antigen auftritt ; [ 1 ] [ 2 ] weshalb er auch als Akute-Phase-Antikörper bezeichnet wird. Bei Menschen und anderen untersuchten Säugetieren sind Plasmazellen in der Milz die Hauptquelle für die spezifische IgM-Produktion. [ 3 ] [ 4 ]
Geschichte
1937 wurde bei Pferden, die mit Pneumokokken- Polysaccharid hyperimmunisiert worden waren, ein Antikörper beobachtet , der deutlich größer war als das typische γ-Globulin des Kaninchens [ 5 ] und ein Molekulargewicht von 990.000 Dalton aufwies [ 6 ] . Aufgrund seiner Größe wurde der neue Antikörper zunächst als γ-Makroglobulin und später als IgM bezeichnet – M für „Makro“. Die V-Domänen normaler Immunglobuline sind hochgradig heterogen, was ihre Rolle beim Schutz vor der großen Vielfalt infektiöser Mikroorganismen widerspiegelt. Diese Heterogenität erschwerte eine detaillierte Strukturanalyse von IgM. In der Folge wurden zwei Quellen für homogenes IgM entdeckt. Erstens wurde das von einigen Patienten mit multiplem Myelom produzierte Protein mit hohem Molekulargewicht als tumorproduziertes γ-Makroglobulin identifiziert. Da es sich bei dem Tumor um einen Klon handelt , ist das von ihm produzierte IgM homogen. [ 7 ] In den 1960er Jahren wurden Methoden zur Induktion von Immunglobulin-produzierenden Tumoren (Plasmozytomen) in Mäusen entwickelt, wodurch eine Quelle homogener Immunglobuline verschiedener Isotypen, einschließlich IgM, geschaffen wurde (siehe Übersicht in [ 8 ] ). In jüngerer Zeit kann die Expression von gentechnisch veränderten Immunglobulingenen in Zellkulturen genutzt werden, um IgM mit spezifischen Veränderungen herzustellen und so die molekularen Voraussetzungen für gewünschte Merkmale zu identifizieren.
Struktur
Immunglobuline bestehen aus leichten und schweren Ketten. Die leichte Kette (λ oder κ) ist ein Protein aus etwa 220 Aminosäuren und setzt sich aus einer variablen Domäne (VL, ca. 110 Aminosäuren) und einer konstanten Domäne (CL, ebenfalls ca. 110 Aminosäuren) zusammen. Die μ-schwere Kette des IgM ist ein Protein aus etwa 576 Aminosäuren und umfasst eine variable Domäne (VH, ca. 110 Aminosäuren), vier verschiedene konstante Domänen (Cμ1, Cμ2, Cμ3, Cμ4, jeweils ca. 110 Aminosäuren) und ein „Schwanzstück“ von ca. 20 Aminosäuren. Die μ-schwere Kette trägt Oligosaccharide an fünf Asparaginresten. Die Oligosaccharide von Maus- und humanem IgM wurden teilweise mit verschiedenen Techniken charakterisiert, darunter NMR, Lektinbindung, diverse chromatographische Systeme und enzymatische Sensitivitätsanalysen (Übersicht in [ 9 ] ). Die Struktur der Oligosaccharide variiert an den einzelnen Positionen im Detail, und die vorherrschenden Oligosaccharide – biantennäre, triantennäre und hochmannosereiche – unterscheiden sich je nach Position.

Die multimere Struktur von IgM ist in Abbildung 1 schematisch dargestellt. Abbildung 1A zeigt das „Heterodimer“, das aus einer leichten Kette (L) und einer schweren Kette (μ) besteht. Die schwere und die leichte Kette werden sowohl durch Disulfidbrücken (dargestellt als rote Dreiecke) als auch durch nicht-kovalente Wechselwirkungen zusammengehalten.
Abbildung 1B zeigt zwei μL-Einheiten, die in den Cμ2-Domänen durch eine Disulfidbrücke verbunden sind; diese (μL)2-Struktur wird oft als IgM-"Monomer" bezeichnet, da sie in gewisser Weise analog zur Struktur von Immunglobulin G (IgG) ist .
Aufgrund seiner Sedimentationsgeschwindigkeit und seines Erscheinungsbildes in Elektronenmikroskopaufnahmen wurde geschlossen, dass IgM üblicherweise als Pentamer vorliegt, d. h. als Polymer aus fünf Monomeren [(μL)₂]₅. Dies wurde ursprünglich in den Modellen in Abbildung 1C und 1D dargestellt, mit Disulfidbrücken zwischen den Cμ₃-Domänen und den Cμ₃-Endgruppen. [ 11 ] [ 12 ] Es ist außerdem dargestellt, dass pentameres IgM ein drittes Protein, die J-Kette, enthält. Die J-Kette (J für Joining) wurde als kovalent gebundener Bestandteil von polymerem IgA und IgM entdeckt. [ 13 ] [ 14 ] Die J-Kette ist ein kleines (~137 Aminosäuren), saures Protein. Wie dargestellt, verbindet die J-Kette zwei μ-Ketten über Disulfidbrücken, an denen Cysteine in den Cμ₃-Endgruppen beteiligt sind. [ 15 ]
Molekulare Voraussetzungen für die Bildung von polymerem IgM
Man ging zunächst davon aus, dass die J-Kette für die Bildung polymerer Immunglobuline wichtig sei, und tatsächlich hängt die Polymerisation von IgA stark (aber nicht absolut) von der J-Kette ab. [ 16 ] [ 17 ] Im Gegensatz dazu bildet sich polymeres IgM effizient auch ohne die J-Kette. [ 18 ] [ 19 ]
Die vorherrschende Form von humanem und Maus-IgM ist das Pentamer. Zum Vergleich: Die Struktur von IgM aus Fröschen (Xenopus) ist überwiegend hexamer [ 20 , 21 ] , IgM aus Knochenfischen überwiegend tetramer und IgM aus Knorpelfischen (hauptsächlich Haien) überwiegend pentamer [ 22 , 23 ] . Obwohl die pentamere Form bei Mäusen und Menschen überwiegt, wurde auch die hexamere Form beobachtet [ 24 , 25 ] . Nachfolgende Studien mit rekombinanten DNA-Expressionssystemen zeigten , dass ein Hexamer die Hauptform von Maus-IgM ist, wenn das IgM unter Bedingungen produziert wird , die den Einbau der J-Kette verhindern. Dies geschieht entweder durch die Produktion von IgM in Zellen ohne J-Kette [ 18 ] oder durch die Produktion von IgM mit einer μ-Schwerkette, der das Cystein im Schwanzsegment fehlt. [ 26 ] [ 27 ] Zusammenfassend lässt sich sagen, dass hexameres IgM niemals die J-Kette enthält; pentameres IgM kann so gebildet werden, dass es die J-Kette enthält oder nicht. [ 28 ]
Ein wichtiger Unterschied zwischen den μ- und γ-Schwerketten liegt in der Verfügbarkeit von Cysteinresten zur Bildung von Disulfidbrücken zwischen den Schwerketten. Bei der γ-Schwerkette werden die einzigen intermolekularen Bindungen durch Cysteinreste im Scharnierbereich gebildet, sodass jede γ-Kette nur an eine andere γ-Kette bindet. Im Gegensatz dazu enthalten die Cμ2- und Cμ3-Domänen sowie das C-terminale Ende jeweils ein Cystein, das eine Disulfidbrücke mit einer anderen μ-Kette bildet. Die Cysteinreste in den Cμ2-Domänen vermitteln die Bildung von monomerem IgM (μL)₂. Das C-terminale Ende ist zusammen mit dem darin enthaltenen Cystein notwendig und hinreichend für die Bildung polymerer Immunglobuline. Das heißt, die Deletion des C-terminalen Endes der μ-Schwerkette verhindert die Bildung von polymerem IgM. [ 29 ] Umgekehrt produzieren Zellen, die eine γ-Schwerkette exprimieren, die so modifiziert wurde, dass sie das C-terminale Ende enthält, polymeres IgG. [ 30 ] [ 31 ] [ 32 ]
Die Rolle des Cysteins in der Cμ3-Domäne ist komplexer. Abbildung 1C und 1D zeigen mögliche Modelle für pentameres IgM. In diesen Modellen bindet jede μ-Kette an zwei andere μ-Ketten. Allerdings kann keines der Modelle allein die Struktur von polymerem IgM vollständig erklären. Beispielsweise sagt das Modell in Abbildung 1C voraus, dass die Disulfidbrücke zwischen den Cμ2-Domänen für die Bildung von disulfidverbrücktem polymerem IgM essenziell ist. Das Modell in Abbildung 1D sagt voraus, dass die Disulfidbrücke zwischen den Cμ3-Domänen essenziell ist. Disulfidverbrücktes, polymeres IgM kann auch dann gebildet werden, wenn eines der drei Cysteine fehlt. Im Kontext von Modellen, in denen jede μ-Kette nur mit zwei anderen μ-Ketten interagiert, legen diese Ergebnisse nahe, dass manche Moleküle dem Modell in Abbildung 1C und andere dem in Abbildung 1D ähneln. Die Verfügbarkeit von drei Cysteinresten für die Bindung zwischen den μ-Ketten legt jedoch nahe, dass jede μ-Kette drei weitere μ-Ketten binden könnte, wie in Abbildung 2 dargestellt. In diesem Sinne zeigt Abbildung 2C ein Modell für ein J-Ketten-haltiges Pentamer, das Hinweise darauf liefert, dass die J-Kette μ-Ketten verbindet, die nicht über die Cysteinreste in den Cμ3-Domänen mit anderen μ-Ketten verbunden sind. Diese und weitere reguläre und irreguläre Modelle werden an anderer Stelle diskutiert. [ 27 ] [ 33 ]

Pentameres IgM wird üblicherweise als solches mit einer einzelnen J-Kette pro Polymer dargestellt, tatsächlich variiert die gemessene J-Ketten-Stöchiometrie jedoch zwischen einem und drei J-Molekülen pro Polymer. [ 34 ] [ 35 ] [ 36 ] [ 37 ] Diese große Spanne könnte auf technische Probleme wie unvollständige Radiomarkierung oder ungenaue Quantifizierung einer Ouchterlony-Linie zurückzuführen sein. Die Variation könnte aber auch durch Heterogenität der IgM-Präparationen bedingt sein, d. h. die verschiedenen Präparationen könnten sich hinsichtlich ihres Gehalts an J-haltigen und J-defizienten Polymeren erheblich unterscheiden.
Tertiär- und Quartärstruktur des μ-Konstantbereichs
Einzelne C2-, C3- und C4tp-Domänen wurden unabhängig voneinander in E. coli generiert und anschließend mit verschiedenen Methoden, darunter Sedimentationsratenmessungen, Röntgenkristallographie und NMR-Spektroskopie , untersucht, um Einblicke in die detaillierte dreidimensionale Struktur der Kette zu gewinnen. Die Domänen der schweren Kette weisen, wie die anderer Immunglobuline, die charakteristischen übereinanderliegenden β-Faltblätter aus sieben Strängen auf, die durch intradomänäre Disulfidbrücken stabilisiert werden. Insgesamt besitzt die konstante Region von IgM eine pilzartige Form, wobei die C2-C3-Domänen eine Scheibe bilden, die dem Pilzkopf ähnelt, und die C4tp-Domänen wie ein kurzer Stiel hervorstehen. [ 38 ]
Funktion
IgM interagiert mit verschiedenen anderen physiologischen Molekülen:
- IgM kann an die Komplementkomponente C1 binden und den klassischen Weg aktivieren , was zur Opsonisierung von Antigenen und zur Zytolyse führt .
- IgM bindet an den Polyimmunglobulinrezeptor (pIgR) und gelangt so zu Schleimhautoberflächen wie dem Darmlumen und in die Muttermilch. Diese Bindung ist von der J-Kette abhängig. [ 39 ]
- Two other Fc receptors that bind IgM—Fcα/μ-R and Fcμ-R -- have been detected. Fcα/μ-R, like pIgR, binds polymeric IgM and IgA. Fcα/μ-R can mediate endocytosis, and its expression in the gut suggests a role in mucosal immunity. Fcμ-R (formerly known as Toso/Faim3) binds IgM exclusively and can mediate cellular uptake of IgM-conjugated antigen.[40] Inactivation of the corresponding genes in knock-out mice produces a phenotype, but the physiological functions of these receptors are still uncertain[41]
Regulation of the immune response
Spezifische Immunglobuline , die Tieren zusammen mit ihrem Antigen injiziert werden , können die Antikörperantwort auf dasselbe Antigen beeinflussen. [ 42 ] Endogene Antikörper, die nach einer Primärimmunisierung gebildet werden, können ebenfalls die Antikörperantwort auf eine Auffrischungsimpfung beeinflussen, was darauf hindeutet, dass ähnliche Effekte unter physiologischen Bedingungen auftreten. Die „regulatorischen“ Effekte können positiv oder negativ sein. Das heißt, abhängig von der Art des Antigens und dem Isotyp des Antikörpers kann die Antikörperantwort unterdrückt oder verstärkt werden. Solche Effekte werden gut durch Experimente mit der Immunisierung mit xenogenen (fremden) Erythrozyten (roten Blutkörperchen) veranschaulicht. Wird beispielsweise IgG zusammen mit xenogenen Erythrozyten verabreicht, führt diese Kombination zu einer nahezu vollständigen Unterdrückung der erythrozytenspezifischen Antikörperantwort. Dieser Effekt wird klinisch genutzt, um zu verhindern, dass Rh-negative Mütter gegen fetale Rh-positive Erythrozyten immunisiert werden, und seine Anwendung hat die Häufigkeit hämolytischer Erkrankungen bei Neugeborenen drastisch gesenkt. [ 43 ] Im Gegensatz zur Wirkung von IgG kann antigenspezifisches IgM die Antikörperantwort erheblich verstärken, insbesondere bei großen Antigenen. [ 44 ] Wird Tieren (einschließlich Menschen) erythrozytenspezifisches IgM zusammen mit Erythrozyten injiziert, wird daher eine deutlich stärkere Antikörperantwort gegen die Erythrozyten ausgelöst als bei alleiniger Gabe von Erythrozyten. Verschiedene Befunde deuten darauf hin, dass die Fähigkeit von IgM zur Komplementaktivierung für seine verstärkende Wirkung erforderlich ist. Das heißt, die IgM-vermittelte Verstärkung tritt weder bei Tieren auf, denen die Komplementkomponente C3 fehlt, noch bei Mutanten, denen die Komplementrezeptoren 1 und 2 fehlen. Ebenso verstärkt mutiertes IgM, das das Komplementsystem nicht aktivieren kann, die Immunantwort nicht. Eine mögliche Erklärung für die IgM-vermittelte Verstärkung ist, dass B-Lymphozyten IgM-Antigen-Komplement-Komplexe aufnehmen und in Bereiche der Milz transportieren, in denen effiziente Immunantworten generiert werden. Da IgM früh in einer Immunantwort produziert wird, könnte dies für die Einleitung von Antikörperreaktionen von Bedeutung sein.
Synthese
In Keimzellen (Spermien und Eizellen) liegen die Gene, die später für Immunglobuline kodieren, noch nicht in funktionsfähiger Form vor (siehe V(D)J-Rekombination ). Im Fall der schweren Kette werden drei Keimbahnsegmente, V, D und J genannt, miteinander verknüpft und an die DNA angefügt, die die konstante Region der μ-schweren Kette kodiert. Früh in der Ontogenese exprimieren B-Zellen sowohl die μ- als auch die δ-schwere Kette. Die Koexpression dieser beiden schweren Ketten, die jeweils dieselbe V-Domäne tragen, hängt von alternativem Spleißen und alternativen Poly-A-Anheftungsstellen ab. Die Expression der anderen Isotypen (γ, ε und α) wird durch eine andere Art der DNA-Umlagerung beeinflusst, einen Prozess, der als Immunglobulin-Klassenwechsel bezeichnet wird . [ 45 ]
Klinische Bedeutung
IgM ist das erste Immunglobulin, das im menschlichen Fötus (etwa in der 20. Woche) exprimiert wird [ 46 ] und phylogenetisch der früheste Antikörper, der sich entwickelt. [ 47 ]
IgM-Antikörper treten früh im Verlauf einer Infektion auf und können nach erneuter Exposition in geringerem Maße wieder auftreten. IgM-Antikörper passieren die menschliche Plazenta nicht (nur der Isotyp IgG ). [ 48 ]
Diese beiden biologischen Eigenschaften von IgM machen es nützlich für die Diagnose von Infektionskrankheiten. Der Nachweis von IgM-Antikörpern im Serum eines Patienten deutet auf eine kürzlich erfolgte Infektion hin, während der Nachweis im Serum eines Neugeborenen auf eine intrauterine Infektion (z. B. angeborenes Rötelnsyndrom ) hinweist.
Die Entwicklung von Anti-Donor-IgM nach einer Organtransplantation ist nicht mit einer Transplantatabstoßung verbunden, könnte aber eine schützende Wirkung haben. [ 49 ]
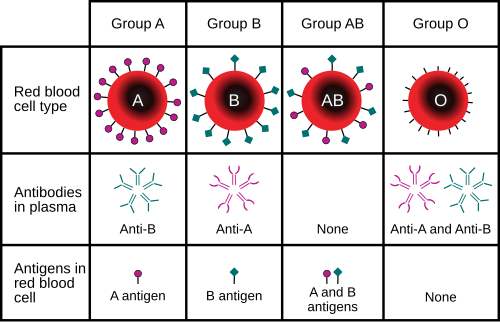
IgM im normalen Serum bindet häufig an spezifische Antigene, selbst ohne vorherige Immunisierung. [ 50 ] Daher wird IgM mitunter als „natürlicher Antikörper“ bezeichnet. Dieses Phänomen beruht wahrscheinlich auf der hohen Avidität von IgM, die es ihm ermöglicht, selbst an schwach kreuzreagierende, natürlich vorkommende Antigene nachweisbar zu binden. Beispielsweise könnten die IgM-Antikörper, die an die A- und B-Antigene der roten Blutkörperchen binden, bereits in der frühen Kindheit durch die Exposition gegenüber A- und B-ähnlichen Substanzen gebildet werden, die in Bakterien oder möglicherweise auch in Pflanzen vorkommen.
IgM-Antikörper sind hauptsächlich für die Verklumpung ( Agglutination ) roter Blutkörperchen verantwortlich , wenn der Empfänger einer Bluttransfusion Blut erhält, das nicht mit seiner Blutgruppe kompatibel ist .
Eine Mutation der μ-Kette innerhalb von IgM verursacht eine autosomal-rezessive Agammaglobulinämie . [ 51 ]
Das Vorhandensein von IgM oder, seltener, IgG ist eines der obligaten Kriterien für die Diagnose des Schnitzler-Syndroms . [ 52 ] [ 53 ]
Siehe auch
- Immundefekt mit Hyperimmunglobulin M
- Immunglobulin A (IgA)
- Immunglobulin E (IgE)
- Immunglobulin G (IgG)
- Immunglobulin-M-Mangel
- Immunsystem
Referenzen
- ^ „Immunglobulin M“. The American Heritage Dictionary of the English Language (4. Aufl.). Houghton Mifflin Company. 2004. ISBN 978-0618082308Die
- ^ Alberts, B.; Johnson, A.; Lewis, J.; Walter, P.; Raff, M.; Roberts, K. (2002). „Kapitel 24“ . Molekularbiologie der Zelle (4. Aufl.). Routledge. ISBN 978-0-8153-3288-6Die
- ^ Capolunghi, F.; Rosado, MM; Sinibaldi, M.; Aranburu, A.; Carsetti, R. (2013). „Warum brauchen wir IgM-Gedächtnis-B-Zellen?“. Immunology Letters . 152 (2): 114–20 . doi : 10.1016/j.imlet.2013.04.007 . PMID 23660557 .
- ^ Williams, N.; O'Connell, PR (2008). „Kapitel 62“. Bailey & Love's Short Practice of Surgery (25. Aufl.). CRC Press. S. 1102. ISBN 9780340939321Die
- Heidelberger , M.; Pedersen, KO (1937). „Das Molekulargewicht von Antikörpern“ . Journal of Experimental Medicine . 65 (3): 393–414 . doi : 10.1084 / jem.65.3.393 . PMC 2133497. PMID 19870608 .
- ^ Kabat, EA (1939). „Das Molekulargewicht von Antikörpern“ . Journal of Experimental Medicine . 69 (1): 103–118 . doi : 10.1084 / jem.69.1.103 . PMC 2133729. PMID 19870830 .
- ^ Waldenström, J. (1943). „Incipiente Myelomatis oder „essentielle“ Hyperglobulinämie mit Fibrinogenopenie – ein neues Syndrom?“. Acta Medica Scandinavica . 142 ( 3–4 ): 216–247 . doi : 10.1111/j.0954-6820.1944.tb03955.x .
- Potter , M. (2007). Die Frühgeschichte der Plasmazelltumoren bei Mäusen, 1954–1976 . Band 98, S. 17–51 . doi : 10.1016/S0065-230X(06)98002-6 . ISBN 9780123738967PMID 17433907 .
{{cite book}}:|journal=ignoriert ( Hilfe ) - Monica , TJ; Williams, SB; Goochee, CF; Maiorella, BL (1995). „Charakterisierung der Glykosylierung eines humanen IgM, das von einem Mensch-Maus-Hybridom produziert wird“. Glycobiology . 5 (2): 175–185 . doi : 10.1093/glycob/5.2.175 . PMID 7780192 .
- Heyman , B.; Shulman, MJ (2016). „Struktur, Funktion und Produktion von Immunglobulin M (IgM)“. In: Ratcliffe, M. (Hrsg.). Encyclopedia of Immunobiology . Band 2. Elsevier. S. 1–14 . doi : 10.1016/B978-0-12-374279-7.05001-3 . ISBN 978-0-12-374279-7Die
- ^ Beale, D.; Feinstein, A. (1969). „Studien zur Reduktion eines humanen 19S-Immunglobulins M“ . Biochemical Journal . 112 (2): 187–194 . doi : 10.1042/bj1120187 . PMC 1187691. PMID 4979347 .
- ^ Milstein, CP; et al. (1975). „Interchain disulfide bridges of mouse Immunoglobulin M“ . Biochemical Journal . 151 (3): 615–624 . doi : 10.1042/ bj1510615 . PMC 1172409. PMID 766753 .
- ^ Halpern, MS; Koshland, ME ( 1970). „Neue Untereinheit des sekretorischen IgA“. Nature . 228 (5278): 1276–1278 . Bibcode : 1970Natur.228.1276H . doi : 10.1038/2281276a0 . PMID 5530654. S2CID 36189290 .
- ^ Mestecky, J.; Zikin, J.; Butler, W. T. (1971). „Immunoglobulin M und sekretorisches Immunglobulin A: Vorhandensein einer gemeinsamen Polypeptidkette, die sich von den leichten Ketten unterscheidet“. Science . 171 ( 3976): 1163–1165 . Bibcode : 1971Sci...171.1163M . doi : 10.1126/science.171.3976.1163 . PMID 5544873. S2CID 6834561 .
- ^ Frutiger, S.; et al. (1992). „Zuordnung von Disulfidbrücken in der humanen J-Kette und ihre kovalente Paarung mit Immunglobulin M“. Biochemistry . 31 (50): 12643–12647 . doi : 10.1021/bi00165a014 . PMID 1472500 .
- ^ Johansen, F. E.; Braathen, R.; Brandtzaeg, P. (2000). „Rolle der J-Kette bei der Bildung sekretorischer Immunglobuline“ . Scandinavian Journal of Immunology . 52 (3): 240–248 . doi : 10.1046/j.1365-3083.2000.00790.x . PMID 10972899 .
- ^ Sørensen, V.; et al. (2000). „Strukturelle Anforderungen für den Einbau der J-Kette in humanes IgM und IgA“ . International Immunology . 12 (1): 19–27 . doi : 10.1093/intimm/12.1.19 . PMID 10607746 .
- ^ a b Cattaneo, A.; Neuberger, MS (1987). „Polymeres Immunglobulin M wird von Transfektanten nicht-lymphoider Zellen in Abwesenheit der Immunglobulin-J-Kette sezerniert“ . The EMBO Journal . 6 (9): 2753–2758 . doi : 10.1002/j.1460-2075.1987.tb02569.x . PMC 553699. PMID 3119328 .
- ^ Fazel, S.; Wiersma, EJ; Shulman, MJ (1997). „Wechselwirkung der J-Kette und Disulfidbrücken bei der Assemblierung von polymerem IgM“ . International Immunology . 9 (8): 1149–1158 . doi : 10.1093/intimm/9.8.1149 . hdl : 1807/11898 . PMID 9263012 .
- ^ Parkhouse, R.; Askonas, BA; Dourmashkin, RR (1970). „Elektronenmikroskopische Untersuchungen von Maus-Immunglobulin M; Struktur und Rekonstitution nach Reduktion“ . Immunology . 18 ( 4): 575–584 . PMC 1455497. PMID 5421036 .
- ^ Schwager, J.; Hadji-Azlmi, I. (1984). „Mitogen-induzierte B-Zell-Differenzierung in Xenopus laevis“. Differentiation . 27 (3): 182–188 . doi : 10.1111/j.1432-0436.1984.tb01426.x . PMID 6334001 .
- ^ Fillatreau, S.; et al. (2013). „Die erstaunliche Diversität der Ig-Klassen und B-Zell-Repertoires bei Teleostiern“ . Frontiers in Immunology . 4 : 1–14 . doi : 10.3389/fimmu.2013.00028 . PMC 3570791. PMID 23408183 .
- ^ Getahun, A.; et al. (1999). „Einfluss der C-terminalen Sequenz der μ-Kette auf die Polymerisation von Immunglobulin M“ . Immunology . 97 (3): 408–413 . doi : 10.1046 / j.1365-2567.1999.00797.x . PMC 2326861. PMID 10447761 .
- ^ Dolder, F. (1971). „Vorkommen, Isolierung und intermolekulare Brücken von natürlichem 7-S-Immunglobulin M im menschlichen Serum“. Biochimica et Biophysica Acta . 236 (3): 675–685 . PMID 4997811 .
- ^ Eskeland, T.; Christensen, TB (1975). „IgM-Moleküle mit und ohne J-Kette im Serum und nach Reinigung, untersucht mittels Ultrazentrifugation , Elektrophorese und Elektronenmikroskopie“. Scandinavian Journal of Immunology . 4 (3): 217–228 . doi : 10.1111/j.1365-3083.1975.tb02620.x . PMID 807966. S2CID 8246173 .
- ^ Davis, AC; Roux, KH; Shulman , MJ (1988). „Zur Struktur von polymerem IgM“. European Journal of Immunology . 18 (7): 1001–1008 . doi : 10.1002/eji.1830180705 . PMID 3136022. S2CID 34679165 .
- ^ a b Davis, AC; et al. (1989). „Intermolekulare Disulfidbindung in IgM: Auswirkungen des Austauschs von Cysteinresten in der μ-Schwerkette“ . The EMBO Journal . 8 (9): 2519–2526 . doi : 10.1002/j.1460-2075.1989.tb08389.x . PMC 401247. PMID 2511005 .
- Collins , C.; Tsui, FW; Shulman, MJ (2002). „Differenzielle Aktivierung des Komplementsystems von Mensch und Meerschweinchen durch pentameres und hexameres IgM“ . European Journal of Immunology . 32 (6): 1802–1810 . doi : 10.1002/1521-4141(200206)32:6<1802::AID-IMMU1802>3.0.CO;2-C . PMID 12115664 .
- ^ Davis, AC; et al. (1989). „Mutationen der Maus-mH-Kette, die die Polymerbildung verhindern“ . Journal of Immunology . 43 (4): 1352–1357 . doi : 10.4049/jimmunol.143.4.1352 . PMID 2501393. S2CID 40558731 .
- ^ Smith, RIF; Coloma, MJ; Morrison, SL (1995). „Die Anfügung eines μ-Schwanzstücks an IgG führt zu polymeren Antikörpern mit verstärkten Effektorfunktionen , einschließlich der komplementvermittelten Zytolyse durch IgG4“ . Journal of Immunology . 154 (5): 2226–2236 . doi : 10.4049/jimmunol.154.5.2226 . PMID 7868896. S2CID 10506582 .
- ^ Sørensen, V.; et al. (1996). „Einfluss der sekretorischen Domänen von IgM und IgA auf die Polymerisation und Sekretion von IgM und IgG“ . Journal of Immunology . 156 (8): 2858–2865 . doi : 10.4049/jimmunol.156.8.2858 . PMID 8609405. S2CID 23601980 .
- ^ Smith, R.; Morrison, SL (1994). „Rekombinantes polymeres IgG: Ein Ansatz zur Entwicklung potenterer Antikörper“. Nature Biotechnology . 12 (7): 683–688 . doi : 10.1038/nbt0794-683 . PMID 7764912. S2CID 19055205 .
- ^ Wiersma, EJ; Shulman, MJ (1995). „Assemblierung von IgM: Rolle von Disulfidbrücken und nichtkovalenten Wechselwirkungen“ . Journal of Immunology . 154 (10): 5265–5272 . doi : 10.4049/jimmunol.154.10.5265 . PMID 7730630. S2CID 22148157 .
- ^ Chapuis, RM; Koshland, ME (1974). „Mechanism of IgM polymerization“ . Proc. Natl. Acad. Sci. USA 71 (3): 657–661 . Bibcode : 1974PNAS...71..657C . doi : 10.1073 / pnas.71.3.657 . PMC 388071. PMID 4207070 .
- ^ Mihaesco, C.; Mihaesco, E.; Metzger, H. (1973). „Variabler J-Kettengehalt im humanen IgM“ . FEBS Letters . 37 (2): 303–306 . Bibcode : 1973FEBSL..37..303M . doi : 10.1016 / 0014-5793(73)80483-1 . PMID 4202824. S2CID 41601548 .
- ^ Brandtzaeg, P. (1976). „Komplexbildung zwischen sekretorischer Komponente und humanem Immunglobulin in Abhängigkeit von deren Gehalt an J-Kette“. Scandinavian Journal of Immunology . 5 (4): 411–419 . doi : 10.1111/j.1365-3083.1976.tb00295.x . PMID 821140. S2CID 39847718 .
- ^ Grubb, AO (1978). „Quantifizierung der J-Kette in menschlichen Körperflüssigkeiten mittels eines einfachen immunchemischen Verfahrens“. Acta Medica Scandinavica . 204 ( 1–6 ): 453–465 . doi : 10.1111/j.0954-6820.1978.tb08473.x . PMID 104551 .
- Müller , R.; et al. (2013). „Hochauflösende Strukturen der IgM-Fc-Domänen enthüllen Prinzipien ihrer Hexamerbildung“ . Proc . Natl. Acad. Sci. USA 110 (25): 10183–10188 . Bibcode : 2013PNAS..11010183M . doi : 10.1073/pnas.1300547110 . PMC 3690842. PMID 23733956 .
- ^ Johansen, F. E.; Braathen, R.; Brandtzaeg, P. (2000). „Rolle der J-Kette bei der Bildung sekretorischer Immunglobuline“ . Scandinavian Journal of Immunology . 52 (3): 240–248 . doi : 10.1046/j.1365-3083.2000.00790.x . PMID 10972899 .
- ^ Shima, H.; et al. (2010). „Identifizierung von TOSO/FAIM3 als Fc-Rezeptor für IgM“ . Int. Immunol. 22 (3): 149–56 . doi : 10.1093/intimm/dxp121 . PMID 20042454 .
- Ouchida , R.; et al. (2012). „Die entscheidende Rolle des IgM-Fc-Rezeptors in der IgM-Homöostase, dem Überleben von B-Zellen und humoralen Immunantworten“ . Proc . Natl. Acad. Sci. USA 109 (40): E2699–706. Bibcode : 2012PNAS..109E2699O . doi : 10.1073/pnas.1210706109 . PMC 3479561. PMID 22988094 .
- ^ Heyman, B (2013). Antikörpervermittelte Regulation der humoralen Immunität . In: Nimmerjahn, F. (Hrsg.) Molekulare und zelluläre Mechanismen der Antikörperaktivität: Springer.
- ^ Urbaniak, SJ & Greiss, MA (2000). „RhD-hämolytische Erkrankung des Fötus und des Neugeborenen“. Blood Rev. 14 ( 1): 33–61 . doi : 10.1054/blre.1999.0123 . PMID 10805260 .
{{cite journal}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - ^ Sörman A, Zhang L, Ding Z, Heyman, B. (2014). „Wie Antikörper das Komplementsystem nutzen, um Antikörperreaktionen zu regulieren“ . Mol. Immunol . 61 (2): 79–88 . doi : 10.1016/j.molimm.2014.06.010 . PMID 25001046 .
{{cite journal}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - ^ Murphy, K.; Weaver, C. (2016). Janeways Immunbiologie . New York, NY: Garland Science/Taylor and Francis. S. 195. ISBN 9780815345053Die
- ^ van Furth, R.; Schuit, HR; Hijmans, W. (1965). „Die immunologische Entwicklung des menschlichen Fötus“ . Journal of Experimental Medicine . 122 (6): 1173–88 . doi : 10.1084/jem.122.6.1173 . PMC 2138097. PMID 4159036 .
- ^ Rezension von „Medical Physiology“ von William Francis Ganong
- Matthews , T. G.; O'Herlihy, C. (November 1978). „Bedeutung erhöhter Immunglobulin-M-Spiegel im Nabelschnurblut von untergewichtigen Säuglingen“ . Archives of Disease in Childhood . 53 (11): 895–898 . doi : 10.1136/adc.53.11.895 . ISSN 1468-2044 . PMC 1545275. PMID 727813 .
- ^ McAlister, CC; et al. (2004). „Protektive Anti-Donor-IgM-Produktion nach kreuzprobenpositiver Leber-Nierentransplantation“ . Liver Transplantation . 10 (2): 315–9 . doi : 10.1002/lt.20062 . PMID 14762873 .
- Jayasekera , JP; Moseman, EA; Carroll, MC (2007). „Natürliche Antikörper und Komplement vermitteln die Neutralisierung des Influenzavirus in Abwesenheit einer vorherigen Immunität“ . Journal of Virology . 81 (7): 3487–94 . doi : 10.1128/JVI.02128-06 . PMC 1866020. PMID 17202212 .
- ^ „OMIM-Eintrag – Nr. 601495 – AGAMMAGLOBULINEMIE 1, AUTOSOMAL REZESSIV; AGM1“ . omim.org . Abgerufen am 25.03.2021 .
- ^ Gusdorf, L.; Lipsker, D. (17. Juli 2017). „Schnitzler-Syndrom: Ein Überblick“. Current Rheumatology Reports . 19 (8): 46. doi : 10.1007/s11926-017-0673-5 . PMID 28718061. S2CID 13780498 .
- Simon , A.; Asli, B.; Braun-Falco, M.; Koning, H. De; Fermand, J.-P.; Grattan, C.; Krause, K.; Lachmann, H.; Lenormand, C.; Martinez-Taboada, V.; Maurer, M.; Peters, M.; Rizzi, R.; Rongioletti, F.; Ruzicka, T.; Schnitzler, L.; Schubert, B.; Sibilia, J.; Lipsker, D. (2013). „Schnitzler-Syndrom: Diagnose, Behandlung und Nachsorge“ . Allergy . 68 (5): 562–568 . doi : 10.1111 / all.12129 . PMID 23480774. S2CID 12831354 .
Externe Links
- Immunoglobulin+M in den Medical Subject Headings (MeSH) der US National Library of Medicine
- Informationen zum Immunglobulin-M-Mangel von Medscape.com