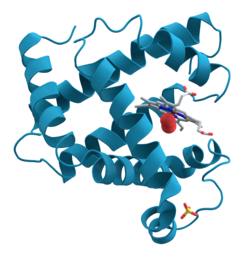
In der Molekularbiologie bezeichnet der Begriff makromolekulare Anordnung ( MA ) massive chemische Strukturen wie Viren und nicht-biologische Nanopartikel , Zellorganellen und -membranen sowie Ribosomen etc. , die komplexe Gemische aus Polypeptiden , Polynukleotiden , Polysacchariden oder anderen polymeren Makromolekülen darstellen . Sie bestehen in der Regel aus mehr als einem dieser Typen und die Gemische sind räumlich (d. h. hinsichtlich ihrer chemischen Form) sowie hinsichtlich ihrer zugrundeliegenden chemischen Zusammensetzung und Struktur definiert . Makromoleküle kommen in lebenden und nicht-lebenden Organismen vor und bestehen aus Hunderten oder Tausenden von Atomen , die durch kovalente Bindungen zusammengehalten werden ; sie sind oft durch sich wiederholende Einheiten charakterisiert (d. h. sie sind Polymere ). Anordnungen dieser Moleküle können ebenfalls biologisch oder nicht-biologisch sein, wobei der Begriff MA häufiger in der Biologie und der Begriff supramolekulare Anordnung häufiger in nicht-biologischen Kontexten (z. B. in der supramolekularen Chemie und Nanotechnologie ) verwendet wird. Molekülaggregate (MAs) von Makromolekülen werden durch nicht-kovalente intermolekulare Wechselwirkungen (statt kovalenter Bindungen ) in ihrer definierten Form gehalten und können entweder nicht-repetitive Strukturen (z. B. wie im Ribosom (Abbildung) und in der Zellmembranarchitektur) oder repetitive lineare, kreisförmige, spiralförmige oder andere Muster aufweisen (z. B. wie in Aktinfilamenten und dem Flagellenmotor (Abbildung)). Der Prozess der MA-Bildung wird als molekulare Selbstorganisation bezeichnet , ein Begriff, der insbesondere in nicht-biologischen Kontexten Anwendung findet. Für die Untersuchung von MAs existiert eine Vielzahl physikalischer/biophysikalischer, chemischer/biochemischer und computergestützter Methoden. Angesichts der Größenordnung (molekulare Dimensionen) von MAs stehen die Bemühungen, ihre Zusammensetzung und Struktur aufzuklären und die Mechanismen ihrer Funktionen zu verstehen, im Mittelpunkt der modernen Strukturforschung.
Biomolekularer Komplex

Ein biomolekularer Komplex , auch biomakromolekularer Komplex genannt , ist ein biologischer Komplex, der aus mehr als einem Biopolymer ( Protein , RNA , DNA , [ 5 ] Kohlenhydrat ) oder großen nicht-polymeren Biomolekülen ( Lipid ) besteht. Die Wechselwirkungen zwischen diesen Biomolekülen sind nicht-kovalent. [ 6 ] Beispiele:
- Proteinkomplexe , von denen einige Multienzymkomplexe sind : Proteasom , DNA-Polymerase-III-Holoenzym , RNA-Polymerase-II-Holoenzym , symmetrische Viruskapside , Chaperoninkomplex GroEL - GroES , Photosystem I , ATP-Synthase , Ferritin .
- RNA-Protein-Komplexe: Ribosom , Spliceosom , Vault , SnRNP . Solche Komplexe im Zellkern werden Ribonukleoproteine (RNPs) genannt.
- DNA-Protein-Komplexe: Nukleosom .
- Protein-Lipid-Komplexe: Lipoprotein . [ 7 ] [ 8 ]
Die biomakromolekularen Komplexe werden strukturell mittels Röntgenkristallographie , NMR-Spektroskopie von Proteinen , Kryo-Elektronenmikroskopie und anschließender Einzelpartikelanalyse sowie Elektronentomographie untersucht . [ 9 ] Die mittels Röntgenkristallographie und biomolekularer NMR-Spektroskopie gewonnenen Atomstrukturmodelle können in die wesentlich größeren Strukturen biomolekularer Komplexe eingepasst werden , die mit weniger auflösenden Techniken wie Elektronenmikroskopie, Elektronentomographie und Kleinwinkel-Röntgenstreuung gewonnen werden . [ 10 ]
Komplexe aus Makromolekülen kommen in der Natur allgegenwärtig vor und sind am Aufbau von Viren und allen lebenden Zellen beteiligt. Darüber hinaus spielen sie eine fundamentale Rolle in allen grundlegenden Lebensprozessen ( Proteinbiosynthese , Zellteilung , Vesikeltransport , intra- und interzellulärer Stoffaustausch usw.). In all diesen Funktionen organisieren sich komplexe Gemische auf spezifische strukturelle und räumliche Weise. Während die einzelnen Makromoleküle durch eine Kombination aus kovalenten Bindungen und intramolekularen nicht-kovalenten Kräften zusammengehalten werden (d. h. Wechselwirkungen zwischen Teilen innerhalb jedes Moleküls über Ladungs-Ladungs-Wechselwirkungen , Van-der-Waals-Kräfte und Dipol-Dipol-Wechselwirkungen wie Wasserstoffbrückenbindungen ), werden Makromolekülkomplexe (MAs) definitionsgemäß ausschließlich durch nicht-kovalente Kräfte zusammengehalten , mit Ausnahme der Wechselwirkungen zwischen den Molekülen (d. h. intermolekulare Wechselwirkungen ).
MA-Skalen und Beispiele
Die obigen Abbildungen geben einen Hinweis auf die Zusammensetzung und die Dimensionen von MAs, verdeutlichen aber nur die Komplexität dieser Strukturen. Prinzipiell besteht jede lebende Zelle aus MAs und ist selbst auch ein MA. In den Beispielen und ähnlichen Komplexen und Anordnungen weisen die MAs oft Molekulargewichte von mehreren Millionen Dalton (Megadalton, d. h. Millionen Mal so viel wie das Gewicht eines einzelnen Atoms) auf, besitzen aber dennoch messbare Komponentenverhältnisse ( Stöchiometrien ) mit einer gewissen Genauigkeit. Wie in den Bildunterschriften erwähnt, lassen sich MAs oder ihre Subkomplexe nach entsprechender Präparation häufig kristallisieren und mittels Proteinkristallographie und verwandten Methoden oder anderen physikalischen Methoden (z. B. Spektroskopie , Mikroskopie ) untersuchen.
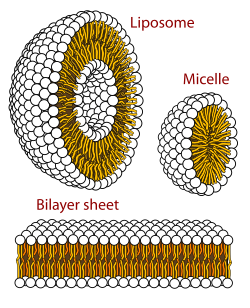

Virus structures were among the first studied MAs; other biologic examples include ribosomes (partial image above), proteasomes, and translation complexes (with protein and nucleic acid components), procaryotic and eukaryotic transcription complexes, and nuclear and other biological pores that allow material passage between cells and cellular compartments. Biomembranes are also generally considered MAs, though the requirement for structural and spatial definition is modified to accommodate the inherent molecular dynamics of membrane lipids, and of proteins within lipid bilayers.[15]
Virus assembly
During assembly of the bacteriophage (phage) T4virion, the morphogenetic proteins encoded by the phage genes interact with each other in a characteristic sequence. Maintaining an appropriate balance in the amounts of each of these proteins produced during viral infection appears to be critical for normal phage T4 morphogenesis.[16] Phage T4 encoded proteins that determine virion structure include major structural components, minor structural components and non-structural proteins that catalyze specific steps in the morphogenesis sequence[17]
Non-biologic counterparts
Schließlich beschränkt sich die Forschung an molekularen Maschinen nicht allein auf die Biologie. Auch die supramolekulare Chemie und die Nanotechnologie haben Bereiche entwickelt, die die in biologischen molekularen Maschinen erstmals demonstrierten Prinzipien weiterentwickeln und ausbauen. Von besonderem Interesse in diesen Bereichen ist die Ausarbeitung der grundlegenden Prozesse molekularer Maschinen und die Übertragung bekannter Maschinendesigns auf neue Typen und Prozesse.
Siehe auch
- Mehrzustandsmodellierung von Biomolekülen
- Quartärstruktur
- Multiproteinkomplex
- Organelle : Die weitestgehende Definition von „Organelle“ umfasst nicht nur membrangebundene Zellstrukturen, sondern auch sehr große biomolekulare Komplexe.
- Mehrzustandsmodellierung von Biomolekülen
Referenzen
- ^ Ban N, Nissen P, Hansen J, Moore PB, Steitz TA (August 2000). „Die vollständige Atomstruktur der großen ribosomalen Untereinheit mit einer Auflösung von 2,4 Å“. Science . 289 (5481): 905–920 . Bibcode : 2000Sci...289..905B . CiteSeerX 10.1.1.58.2271 . doi : 10.1126/science.289.5481.905 . PMID 10937989 .
- ^ McClure W. „50S Ribosomen-Untereinheit“ . Archiviert vom Original am 24.11.2005 . Abgerufen am 09.10.2019 .
- ^ Osborne AR, Rapoport TA, van den Berg B (2005). „Proteintranslokation durch den Sec61/SecY-Kanal“. Annual Review of Cell and Developmental Biology . 21 : 529–550 . doi : 10.1146/annurev.cellbio.21.012704.133214 . PMID 16212506 .
- ^ Legende, Titelbild, J. Bacteriol., Oktober 2006.
- ^ Kleinjung J, Fraternali F (Juli 2005). „POPSCOMP: eine automatisierte Interaktionsanalyse biomolekularer Komplexe“ . Nucleic Acids Research . 33 (Webserver-Ausgabe): W342– W346 . doi : 10.1093/nar/gki369 . PMC 1160130. PMID 15980485 .
- ^ Moore PB (2012). „Wie sollten wir über das Ribosom nachdenken?“. Annual Review of Biophysics . 41 (1): 1–19 . doi : 10.1146/annurev-biophys-050511-102314 . PMID 22577819 .
- ^ Neuman N (Januar 2016). „Der komplexe makromolekulare Komplex“ . Trends in Biochemical Sciences . 41 (1): 1–3 . doi : 10.1016/j.tibs.2015.11.006 . PMID 26699226 .
- ^ Dutta S, Berman HM (März 2005). „Große makromolekulare Komplexe in der Proteindatenbank: ein Statusbericht“ . Structure . 13 (3): 381–388 . doi : 10.1016/j.str.2005.01.008 . PMID 15766539 .
- Russell RB, Alber F, Aloy P, Davis FP, Korkin D, Pichaud M, et al. (Juni 2004). „Eine strukturelle Perspektive auf Protein-Protein-Interaktionen“. Current Opinion in Structural Biology . 14 (3): 313–324 . doi : 10.1016/j.sbi.2004.04.006 . PMID 15193311 .
- ^ van Dijk AD, Boelens R, Bonvin AM (Januar 2005). „Datengetriebenes Docking zur Untersuchung biomolekularer Komplexe“. The FEBS Journal . 272 (2): 293–312 . doi : 10.1111 / j.1742-4658.2004.04473.x . hdl : 1874/336958 . PMID 15654870. S2CID 20148856 .
- ^ „Struktur von fluiden Lipiddoppelschichten“ . Blanco.biomol.uci.edu. 10.11.2009 . Abgerufen am 9.10.2019 .
- ^ Experimentelles System: Dioleoylphosphatidylcholin - Doppelschichten. Die hydrophobe Kohlenwasserstoffregion des Lipids ist ca. 30 Å (3,0 nm) dick, wie durch eine Kombination aus Neutronen- und Röntgenstreuung bestimmt wurde; die polare Grenzflächenregion (Glyceryl-, Phosphat- und Kopfgruppenreste mit ihrer kombinierten Hydratation) ist beidseitig ca. 15 Å (1,5 nm) dick , was einer Gesamtdicke entspricht, die in etwa der der Kohlenwasserstoffregion entspricht. Siehe SH White (vorhergehende und nachfolgende Literaturangaben).
- ^ Wiener MC, White SH (Februar 1992). „Struktur einer fluiden Dioleoylphosphatidylcholin-Doppelschicht, bestimmt durch gemeinsame Verfeinerung von Röntgen- und Neutronenbeugungsdaten. III. Vollständige Struktur“ . Biophysical Journal . 61 (2): 434–447 . Bibcode : 1992BpJ....61..434W . doi : 10.1016/ S0006-3495 (92)81849-0 . PMC 1260259. PMID 1547331 .
- ^ Die Dimensionen der Kohlenwasserstoffe variieren mit der Temperatur, der mechanischen Belastung, der PL-Struktur und den Coformulierungsmitteln usw. um einstellige bis niedrige zweistellige Prozentwerte dieser Werte.
- ^ Gerle C (Juni 2019). „Essay on Biomembrane Structure“ . The Journal of Membrane Biology . 252 ( 2–3 ): 115–130 . doi : 10.1007/s00232-019-00061-w . PMC 6556169. PMID 30877332 .
- ^ Floor E (Februar 1970). „Interaktion morphogenetischer Gene des Bakteriophagen T4“. Journal of Molecular Biology . 47 (3): 293–306 . doi : 10.1016/0022-2836(70)90303-7 . PMID 4907266 .
- ^ Snustad DP (August 1968). „Dominanzinteraktionen in Escherichia coli-Zellen, die mit Bakteriophage T4D Wildtyp und Amber-Mutanten gemischt infiziert sind, und ihre möglichen Auswirkungen auf die Art der Genproduktfunktion: katalytisch vs. stöchiometrisch“. Virology . 35 (4): 550–63 . doi : 10.1016/0042-6822(68)90285-7 . PMID 4878023 .
Weiterführende Literatur
Allgemeine Rezensionen
- Williamson JR (August 2008). „Kooperativität bei der makromolekularen Assemblierung“. Nature Chemical Biology . 4 (8): 458–465 . doi : 10.1038/nchembio.102 . PMID 18641626 .
- Perrakis A, Musacchio A, Cusack S, Petosa C (August 2011). „Untersuchung eines makromolekularen Komplexes: Das Methodenrepertoire“. Journal of Structural Biology . 175 (2): 106–112 . doi : 10.1016/j.jsb.2011.05.014 . PMID 21620973 .
- Dafforn TR (Januar 2007). „Wie erkennt man einen makromolekularen Komplex?“ Acta Crystallographica . Section D, Biological Crystallography . 63 (Pt 1): 17–25 . doi : 10.1107/S0907444906047044 . PMC 2483502. PMID 17164522 .
- Wohlgemuth I, Lenz C, Urlaub H (März 2015). „Untersuchung der Stöchiometrie makromolekularer Komplexe mittels Peptid-basierter Massenspektrometrie“ . Proteomics . 15 ( 5–6 ): 862–79 . doi : 10.1002/pmic.201400466 . PMC 5024058. PMID 25546807 .
- Sinha C, Arora K, Moon CS, Yarlagadda S, Woodrooffe K, Naren AP (Oktober 2014). „Förster-Resonanzenergietransfer – ein Ansatz zur Visualisierung der räumlich-zeitlichen Regulation der Bildung makromolekularer Komplexe und der kompartimentierten Zellsignalisierung“ . Biochimica et Biophysica Acta (BBA) – General Subjects . 1840 (10): 3067–72 . doi : 10.1016/j.bbagen.2014.07.015 . PMC 4151567. PMID 25086255 .
- Berg JM, Tymoczko J, Stryer L (2002). Biochemie (5. Aufl.). New York: WH Freeman. ISBN 978-0-7167-4955-4Die
- Lehninger AL, Cox M, Nelson DL (2005). Lehninger Principles of Biochemistry (4. Aufl.). New York: WH Freeman. ISBN 978-0-7167-4339-2Die
Rezensionen zu bestimmten MAs
- Valle M (Mai 2011). „Beinahe in der Übersetzung verloren gegangen. Kryo-EM eines dynamischen makromolekularen Komplexes: das Ribosom“. European Biophysics Journal . 40 (5): 589–97 . doi : 10.1007/s00249-011-0683-6 . PMID 21336521. S2CID 26027815 .
- Monie TP (2017). „Das kanonische Inflammasom: Ein makromolekularer Komplex als Treiber der Entzündung“. Macromolecular Protein Complexes . Subcellular Biochemistry. Band 83. S. 43–73 . doi : 10.1007/978-3-319-46503-6_2 . ISBN 978-3-319-46501-2PMID 28271472 .
- Perino A, Ghigo A, Damilano F, Hirsch E (August 2006). „Identifizierung des makromolekularen Komplexes, der für die PI3Kgamma-abhängige Regulation des cAMP-Spiegels verantwortlich ist“. Biochemical Society Transactions . 34 (Pt 4): 502–3 . doi : 10.1042/BST0340502 . PMID 16856844 .
Primärquellen
- Lasker K, Förster F, Bohn S, Walzthoeni T, Villa E, Unverdorben P, et al. (Januar 2012). „Molekulare Architektur des 26S-Proteasom-Holokomplexes, bestimmt durch einen integrativen Ansatz“ . Proceedings of the National Academy of Sciences of the United States of America . 109 (5): 1380–1387 . Bibcode : 2012PNAS..109.1380L . doi : 10.1073 / pnas.1120559109 . PMC 3277140. PMID 22307589 .
- Russel D, Lasker K, Webb B, Velázquez-Muriel J, Tjioe E, Schneidman-Duhovny D, et al. (Januar 2012). „Die Puzzleteile zusammensetzen: Integrative Modellierungsplattform-Software zur Strukturbestimmung makromolekularer Komplexe“ . PLOS Biology . 10 (1) e1001244. doi : 10.1371/ journal.pbio.1001244 . PMC 3260315. PMID 22272186 .
- Barhoum S, Palit S, Yethiraj A (Mai 2016). „Diffusions-NMR-Studien zur Bildung makromolekularer Komplexe, zur sterischen Hinderung und zum Einschluss in weichen Materialien“. Progress in Nuclear Magnetic Resonance Spectroscopy . 94–95 : 1–10 . Bibcode : 2016PNMRS..94....1B . doi : 10.1016/j.pnmrs.2016.01.004 . PMID 27247282 .
Andere Quellen
- Nobelpreise für Chemie (2012), Der Nobelpreis für Chemie 2009, Venkatraman Ramakrishnan, Thomas A. Steitz, Ada E. Yonath, Der Nobelpreis für Chemie 2009 , abgerufen am 13. Juni 2011.
- Nobelpreise für Chemie (2012), Der Nobelpreis für Chemie 1982, Aaron Klug, Der Nobelpreis für Chemie 1982 , abgerufen am 13. Juni 2011.
Externe Links
- Beck Group (2019), Struktur und Funktion großer makromolekularer Komplexe (Homepage der Beck Group), Beck Group - Struktur und Funktion großer molekularer Komplexe - EMBL , abgerufen am 13. Juni 2011.
- DMA Group (2019), Dynamik der makromolekularen Assemblierung (DMA Group Homepage), Abschnitt Dynamik der makromolekularen Assemblierung | Nationales Institut für biomedizinische Bildgebung und Bioengineering , abgerufen am 13. Juni 2011.