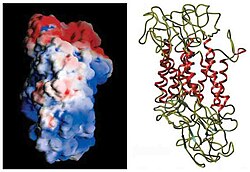
| Solutträgerfamilie 12 Mitglied 2 | |||||||
|---|---|---|---|---|---|---|---|
| Kennungen | |||||||
| Symbol | SLC12A2 | ||||||
| Alternativsymbole | NKCC1 | ||||||
| NCBI-Gen | 6558 | ||||||
| HGNC | 10911 | ||||||
| OMIM | 600840 | ||||||
| Orthologe | 20283 | ||||||
| RefSeq | NM_001046 | ||||||
| UniProt | P55011 | ||||||
| Andere Daten | |||||||
| Ort | Chr. 5 q23.3 | ||||||
| |||||||

Der Na-K-Cl- Cotransporter ( NKCC ) ist ein Transportprotein , das den sekundär aktiven Transport von Natrium , Kalium und Chlorid in die Zellen unterstützt . [ 1 ] Beim Menschen existieren zwei Isoformen dieses Membrantransportproteins , NKCC1 und NKCC2 , die von zwei verschiedenen Genen ( SLC12A2 bzw. SLC12A1 ) kodiert werden. Die beiden Isoformen des NKCC1/Slc12a2-Gens entstehen dadurch, dass Exon 21 im finalen Genprodukt erhalten bleibt (Isoform 1) oder übersprungen wird (Isoform 2). [ 2 ]
NKCC1 ist im gesamten menschlichen Körper weit verbreitet und erfüllt wichtige Funktionen in Organen , die Flüssigkeiten sezernieren . Im Gegensatz dazu findet sich NKCC2 spezifisch in der Niere , wo es Natrium, Kalium und Chlorid aus dem Urin extrahiert, damit diese wieder ins Blut aufgenommen werden können . [ 3 ]
Funktion
NKCC-Proteine sind Membrantransportproteine , die Natrium- (Na), Kalium- (K) und Chloridionen (Cl) durch die Zellmembran transportieren . Da sie alle gelösten Stoffe in die gleiche Richtung transportieren, werden sie als Symporter bezeichnet . Sie erhalten die Elektroneutralität aufrecht, indem sie zwei positiv geladene gelöste Stoffe (Natrium und Kalium) zusammen mit zwei Teilen eines negativ geladenen gelösten Stoffes (Chlorid) transportieren. Die Stöchiometrie der transportierten Stoffe beträgt somit 1Na:1K:2Cl. Obwohl die Riesenaxone des Tintenfischs mit einer Stöchiometrie von 2Na:1K:3Cl die einzige nennenswerte Ausnahme darstellen, bleibt die Elektroneutralität über den Proteintransporter hinweg erhalten. [ 3 ] Die Transportrate dieser Ionen wird durch Phosphorylierungsstellen reguliert , die auf beiden NKCC-Isoformen vorhanden sind. [ 4 ]
NKCC1
Die NKCC1-Isoform besteht aus etwa 1200 Aminosäuren , wobei etwa 500 Aminosäurereste zwölf hydrophobe Transmembranregionen bilden . [ 5 ] Der Nachweis eines kürzeren NKCC1 -mRNA- Transkripts (6,7 kb bis 7–7,5 kb) in Skelettmuskelzellen stützt jedoch die Annahme, dass weitere NKCC1-Varianten gewebespezifisch existieren. [ 6 ] Der C-Terminus des NKCC1-Cotransporters enthält mehrere Phosphorylierungsstellen und ist über verschiedene Spezies hinweg hochkonserviert, während der N-Terminus mindestens eine Phosphorylierungsstelle aufweist und im Gegensatz dazu nur schwach konserviert ist . [ 5 ] Mutagenese -induzierte Affinitätsstudien haben gezeigt, dass die zweite Transmembranregion die Kationenaffinität bestimmt, während die Chloridaffinität durch die Transmembranregionen vier bis sieben bestimmt wird. [ 5 ] Darüber hinaus wurde festgestellt, dass Bumetanid , ein Schleifendiuretikum , an die Transmembranregionen 2 bis 7, 11 und 12 bindet. [ 5 ]
NKCC1 ist im gesamten Körper weit verbreitet, insbesondere in Organen, die Flüssigkeiten sezernieren , den sogenannten exokrinen Drüsen . [ 7 ] In den Zellen dieser Organe findet sich NKCC1 üblicherweise in der basolateralen Membran [ 8 ] , dem Teil der Zellmembran, der den Blutgefäßen am nächsten liegt . Exon 21 besitzt eine Translokationssequenz , die NKCC1 zur basolateralen Membran dirigiert. [ 9 ] Daher werden NKCC1-Cotransporter, die durch alternatives Spleißen so verändert wurden, dass Exon 21 fehlt, zur apikalen Membran anstatt zur basolateralen Membran transloziert. Durch seine basolaterale Lokalisation kann NKCC1 Natrium, Kalium und Chlorid aus dem Blut in die Zelle transportieren. Andere Transporter unterstützen den Transport dieser gelösten Stoffe aus der Zelle über die apikale Membranoberfläche. Das Endergebnis ist, dass gelöste Stoffe aus dem Blut, insbesondere Chlorid, in das Lumen dieser exokrinen Drüsen abgegeben werden, wodurch die Konzentration gelöster Stoffe im Lumen ansteigt und Wasser durch Osmose ausgeschieden wird .
Neben exokrinen Drüsen ist NKCC1 für die Bildung der kaliumreichen Endolymphe notwendig , die einen Teil der Cochlea , eines für das Hören essenziellen Organs, umspült. Die Hemmung von NKCC1, beispielsweise durch Furosemid oder andere Schleifendiuretika , kann zu Taubheit führen . [ 8 ] In der Cochlea ist NKCC1 insbesondere in der Stria vascularis , dem Ligamentum spirale und den Spiralganglien vorhanden . [ 8 ] Auch hier nimmt die NKCC1-Expression mit dem Alter ab , was zu fortschreitendem Hörverlust führt . [ 10 ] Darüber hinaus ist NKCC1 in den dunklen Zellen des Vestibulums vorhanden und trägt zur Bildung der Endolymphe des Vestibularsystems bei . [ 11 ]
NKCC1 wird während der frühen Entwicklung in vielen Hirnregionen exprimiert , nicht jedoch im Erwachsenenalter. [ 12 ] Diese Veränderung der NKCC1-Präsenz scheint für den Wechsel der Reaktionen auf die Neurotransmitter GABA und Glycin von exzitatorisch zu inhibitorisch verantwortlich zu sein, was für die frühe neuronale Entwicklung als wichtig angesehen wird. Solange NKCC1-Transporter überwiegend aktiv sind, ist die intrazelluläre Chloridkonzentration in Neuronen im Vergleich zur Konzentration im Erwachsenenalter erhöht. Dies ist wichtig für die GABA- und Glycin-Reaktionen, da die entsprechenden ligandengesteuerten Anionenkanäle für Chlorid permeabel sind. Mit steigender intrazellulärer Chloridkonzentration erhöht sich die Triebkraft für den Chloridionenausstrom, wodurch sich die Kanäle öffnen und Chlorid die Zelle verlässt, was zu einer Depolarisation führt. Anders ausgedrückt: Eine erhöhte intrazelluläre Chloridkonzentration erhöht das Umkehrpotenzial für Chlorid gemäß der Nernst-Gleichung . Im weiteren Verlauf der Entwicklung nimmt die Expression von NKCC1 ab, während die Expression des K-Cl-Cotransporters KCC2 zunimmt, wodurch die intrazelluläre Chloridkonzentration in Neuronen auf die Werte im Erwachsenenalter sinkt. [ 13 ]
Es wird angenommen, dass die aktivitätsabhängige Regulation von NKCC1 während der frühen neuronalen Entwicklung zusammen mit der Hochregulation von KCC2 zur entwicklungsbedingten Verschiebung der GABAergen Signalübertragung von depolarisierenden zu hyperpolarisierenden Reaktionen beiträgt. [ 14 ] [ 15 ]
NKCC1 wurde in Sertoli-Zellen , Spermatozyten und Spermatiden des männlichen Fortpflanzungssystems nachgewiesen . [ 16 ] Die Funktion von NKCC1 scheint für die Spermatogenese entscheidend zu sein , da die Reduktion von NKCC1 in Mäusen dazu führt, dass Spermatozyten nicht zu Spermien reifen und somit Unfruchtbarkeit entsteht . [ 16 ] Darüber hinaus weisen NKCC1- Knockdown- Mäuse im Vergleich zu Wildtyp- Mäusen eine verringerte Hodengröße auf . [ 16 ] Der Mechanismus der NKCC1-abhängigen männlichen Fertilität ist unklar. Es ist möglich, dass die beobachtete verringerte Spermienzahl entweder auf einen Mangel an NKCC1-Cotransport im Hoden oder auf ein Versagen der Freisetzung von Gonadotropin-Releasing-Hormon durch NKCC1-exprimierende Neuronen im Hypothalamus zurückzuführen ist . [ 4 ]
NKCC2
Die NKCC2-Isoform ist mit 121 kDa kleiner als NKCC1 mit 195 kDa , hauptsächlich weil NKCC2 die 80 Aminosäuren umfassende Sequenz am N-Terminus von NKCC1 nicht enthält. [ 3 ] Zudem fehlt der NKCC2-Isoform Exon 21, wodurch NKCC2 zur apikalen Membran transloziert wird . [ 4 ] Im Vergleich zu NKCC1 ist Exon 1 in NKCC2 in zwei separate Exons unterteilt, und Exon 4 wird alternativ in die Formen A, B und F gespleißt, die alle exklusiv für NKCC2 sind. [ 4 ] Die Expression von NKCC2 beschränkt sich vermutlich auf Nierenzellen , dies wurde jedoch aufgrund möglicher Expression in pankreatischen β-Zellen in Frage gestellt . [ 17 ]
NKCC2 findet sich spezifisch in den Zellen des dicken aufsteigenden Astes der Henle-Schleife und der Macula densa der Nephrone , den funktionellen Grundeinheiten der Niere . Innerhalb dieser Zellen befindet sich NKCC2 in der apikalen Membran [ 18 ] , die an das Lumen des Nephrons , den mit Urin gefüllten Hohlraum, angrenzt . Es spielt somit sowohl bei der Natriumresorption als auch bei der tubuloglomerulären Rückkopplung eine Rolle .
Der dicke aufsteigende Ast der Henle-Schleife beginnt im tieferen Bereich des äußeren Nierenmarks. Hier weist der Urin eine relativ hohe Natriumkonzentration auf. Beim Abfließen des Urins in die oberflächlicheren Bereiche des dicken aufsteigenden Astes ist NKCC2 das wichtigste Transportprotein für die Natriumrückresorption. Diese Auswärtsbewegung von Natrium und die geringe Wasserdurchlässigkeit des dicken aufsteigenden Astes führen zu einem verdünnteren Urin. [ 19 ] Gemäß der oben beschriebenen Stöchiometrie werden für jedes rückresorbierte Natriumion ein Kaliumion und zwei Chloridionen freigesetzt. Das Natrium wird anschließend ins Blut zurückresorbiert , wo es zur Aufrechterhaltung des Blutdrucks beiträgt .
Furosemid und andere Schleifendiuretika hemmen die Aktivität von NKCC2 und beeinträchtigen dadurch die Natriumrückresorption im dicken aufsteigenden Ast der Henle-Schleife. Die Wirkung dieser Schleifendiuretika reduziert zudem die Kaliumrückresorption über den NKCC2-Cotransporter und erhöht folglich die tubuläre Flussrate, was die Kaliumausscheidung steigert und den hypokaliämischen Effekt verstärkt.
Eine gestörte Natriumrückresorption erhöht die Diurese über drei Mechanismen:
- Erhöht die Menge an aktiven Osmolyten im Urin durch Verringerung der Natriumaufnahme
- Löscht den Papillengradienten
- Hemmt die tubuloglomeruläre Rückkopplung
Schleifendiuretika führen daher letztendlich zu einem sinkenden Blutdruck.
Das Hormon Vasopressin stimuliert auch die Aktivität von NKCC2. Vasopressin fördert die Natriumchlorid-Rückresorption im dicken aufsteigenden Ast des Nephrons durch Aktivierung von Signalwegen. Es erhöht den Transport von NKCC2 zur Membran und phosphoryliert Serin- und Threoninreste am cytoplasmatischen N-Terminus des in der Membran befindlichen NKCC2, wodurch dessen Aktivität gesteigert wird. Die erhöhte NKCC2-Aktivität unterstützt die Wasserrückresorption im Sammelrohr über Aquaporin-2 -Kanäle durch die Bildung eines hypo-osmotischen Filtrats. [ 20 ] [ 21 ]
Genetik
NKCC1 und NKCC2 werden von Genen auf den langen Armen der Chromosomen 5 [ 5 ] bzw. 15 [ 22 ] kodiert . Eine Funktionsverlustmutation von NKCC2 führt zum Bartter-Syndrom , einer autosomal-rezessiven Erkrankung, die durch hypokaliämische metabolische Alkalose mit normalem bis niedrigem Blutdruck gekennzeichnet ist. [ 22 ]
Der Promotor des Gens SLC12A2, das für NKCC1 kodiert, enthält Bindungsstellen für die Homeobox -Transkriptionsfaktoren SIX1 und SIX4 , die nach Bindung die NKCC1-mRNA-Expression erhöhen. [ 23 ] Darüber hinaus wird die NKCC1-Expression durch die Hypomethylierung des SLC12A2-Promotors aufgrund der Bindung des Transkriptionsfaktors Sp1 hochreguliert . [ 24 ]
Im Gegensatz zu SLC12A2 enthält der Promotor des Gens SLC12A1, das für NKCC2 kodiert, weder eine TATA-Box noch Sp1- Bindungsstellen. [ 4 ] Zu den regulatorischen Bindungsstellen im NKCC2-Promotor gehören Stellen für den Hepatozyten-Nuklearfaktor 1 (HNF1) , das cAMP-Response-Element-bindende Protein ( CREB) , CCAAT-Enhancer-bindende Proteine (CEE) und basische Helix-Loop-Helix- Proteine (BHLP). [ 4 ]
Kinetik
Die für den Transport von gelösten Stoffen durch die Zellmembran benötigte Energie wird durch den elektrochemischen Natriumgradienten bereitgestellt . Dieser Gradient wird durch die Na/K-ATPase , ein ATP -abhängiges Enzym , aufgebaut . Da NKCC-Proteine den Natriumgradienten nutzen, ist ihre Aktivität indirekt von ATP abhängig; daher spricht man bei NKCC-Proteinen vom sekundär aktiven Transport von gelösten Stoffen . Es existieren drei Isoformen von NKCC2, die durch alternatives Spleißen entstehen (NKCC2A, B und F). Jede dieser Isoformen wird in unterschiedlichen Abschnitten des dicken aufsteigenden Astes der Henle-Schleife exprimiert und weist eine unterschiedliche Affinität zu Natrium auf, die mit ihrer Lokalisation korreliert. Die Isoform F ist im tieferen Abschnitt des dicken aufsteigenden Astes, wo die Natriumkonzentration sehr hoch ist, vorherrschend. NKCC2F besitzt die geringste Affinität zu Natrium, wodurch der Cotransporter in dieser natriumreichen Umgebung aktiv sein kann. Umgekehrt wird NKCC2B im oberflächlicheren Bereich des dicken aufsteigenden Astes und der Macula densa exprimiert und weist die höchste Affinität zu Natrium auf. Dadurch kann NKCC2B in dieser natriumarmen Umgebung ohne Sättigung funktionieren. Die NKCC2A-Isoform zeigt eine intermediäre Verteilung und Affinität zu Natrium. [ 25 ] Auf diese Weise kann NKCC2 im gesamten Bereich der Natriumkonzentrationen entlang des dicken aufsteigenden Astes ordnungsgemäß funktionieren.
Siehe auch
Referenzen
- ^ Haas M (Oktober 1994). „Die Na-K-Cl-Cotransporter“. Am . J. Physiol . 267 (4 Pt 1): C869–85. doi : 10.1152/ajpcell.1994.267.4.C869 . PMID 7943281. S2CID 22680398 .
- Hebert , SC; Mount, DB; Gamba, G (Februar 2004). „Molekulare Physiologie des kationengekoppelten Cl⁻ - Cotransports: die SLC12-Familie“. Pflügers Archiv: European Journal of Physiology . 447 (5): 580–593 . doi : 10.1007/s00424-003-1066-3 . PMID 12739168. S2CID 21998913 .
- Russell , JM ( Januar 2000). „Natrium-Kalium-Chlorid-Cotransport“. Physiological Reviews . 80 ( 1): 211–276 . doi : 10.1152/physrev.2000.80.1.211 . ISSN 0031-9333 . PMID 10617769. S2CID 8909659 .
- ^ a b c d e f Terjung, Ronald, Hrsg. (17.01.2011). Umfassende Physiologie (1. Aufl.). Wiley. doi : 10.1002/cphy.c170018 . ISBN 978-0-470-65071-4PMID 29687903 .
- Payne , John A.; Forbush, Bliss (1995-01-01). „Molekulare Charakterisierung der epithelialen Na-K-Cl-Cotransporter-Isoformen“ . Current Opinion in Cell Biology . 7 (4): 493–503 . doi : 10.1016/0955-0674(95) 80005-0 . ISSN 0955-0674 . PMID 7495568 .
- Payne , John A.; Xu, Jian-Chao; Haas, Melanie; Lytle, Christian Y.; Ward, David; Forbush, Bliss (Juli 1995). „Primärstruktur, funktionelle Expression und chromosomale Lokalisation des Bumetanid-sensitiven Na-K-Cl-Cotransporters im menschlichen Kolon“ . Journal of Biological Chemistry . 270 (30): 17977–17985 . doi : 10.1074/jbc.270.30.17977 . ISSN 0021-9258 . PMID 7629105 .
- ^ Haas M, Forbush B (2000). „Der Na-K-Cl-Cotransporter sekretorischer Epithelien“. Annu. Rev. Physiol . 62 : 515–34 . doi : 10.1146/annurev.physiol.62.1.515 . PMID 10845101 .
- ^ a b c Delpire E, Lu J, England R, Dull C, Thorne T (Juni 1999). „Taubheit und Gleichgewichtsstörungen in Verbindung mit der Inaktivierung des sekretorischen Na-K-2Cl - Cotransporters“. Nat. Genet . 22 (2): 192–5 . doi : 10.1038/9713 . PMID 10369265. S2CID 23779936 .
- ^ Carmosino, Monica; Giménez, Ignacio; Caplan, Michael; Forbush, Biff (Oktober 2008). Mostov, Keith E. (Hrsg.). „Exonverlust erklärt die differentielle Sortierung von Na -K-Cl-Cotransportern in polarisierten Epithelzellen“ . Molecular Biology of the Cell . 19 (10): 4341–4351 . doi : 10.1091/mbc.e08-05-0478 . ISSN 1059-1524 . PMC 2555935. PMID 18667527 .
- ^ Diaz, Rodney C.; Vazquez, Ana Elena; Dou, Hongwei; Wei, Dongguang; Cardell, Emma Lou; Lingrel, Jerry; Shull, Gary E.; Doyle, Karen Jo; Yamoah, Ebenezer N. (2007-11-02). „Erhaltung des Hörvermögens durch simultane Mutation der Na,K-ATPase und NKCC1“ . Journal of the Association for Research in Otolaryngology . 8 (4): 422–434 . doi : 10.1007/s10162-007-0089-4 . ISSN 1525-3961 . PMC 2538340. PMID 17674100 .
- ^ Ciuman, RR (Februar 2009). „Stria vascularis und vestibuläre Dunkelzellen: Charakterisierung der Hauptstrukturen, die für die Homöostase des Innenohrs verantwortlich sind, und ihre pathophysiologischen Beziehungen“ . The Journal of Laryngology & Otology . 123 (2): 151–162 . doi : 10.1017/S0022215108002624 . ISSN 0022-2151 . PMID 18570690 .
- ^ Dzhala VI, Talos DM, Sdrulla DA, Brumback AC, Mathews GC, Benke TA, Delpire E, Jensen FE, Staley KJ (November 2005). „NKCC1-Transporter erleichtert Krampfanfälle im sich entwickelnden Gehirn“. Nat. Med . 11 (11): 1205–1213 . doi : 10.1038 / nm1301 . PMID 16227993. S2CID 25348736 .
- ^ Ben-Ari Y, Gaiarsa JL, Tyzio R, Khazipov R (Oktober 2007). „GABA: ein Pioniertransmitter, der unreife Neuronen erregt und primitive Oszillationen erzeugt“. Physiol. Rev. 87 ( 4): 1215–84 . doi : 10.1152/physrev.00017.2006 . PMID 17928584 .
- ^ Rivera C, Voipio J, Payne JA, Ruusuvuori E, Lahtinen H, Lamsa K, Pirvola U, Saarma M, Kaila K (1999). „Der K+/Cl−-Cotransporter KCC2 sorgt dafür, dass GABA während der neuronalen Reifung hyperpolarisiert.“ Zeitschrift für Neurowissenschaften. 19 (12): 4695–4704. doi:10.1038/16697.
- ^ Ben-Ari Y (2002). „Erregende Wirkungen von GABA während der Entwicklung: Der Einfluss der Umwelt“. Nature Reviews Neuroscience. 3 (9): 728–739. doi:10.1038/nrn920.
- Pace , Amy J.; Lee, Eddie; Athirakul, Krairek; Coffman, Thomas M.; O'Brien, Deborah A.; Koller, Beverly H. (15.02.2000). „ Fehlfunktion der Spermatogenese bei Mauslinien mit Defekt im Na+-K+-2Cl–-Cotransporter“ . Journal of Clinical Investigation . 105 (4): 441–450 . doi : 10.1172/JCI8553 . ISSN 0021-9738 . PMC 289162. PMID 10683373 .
- ^ Alshahrani, Saeed; Almutairi, Mohammed Mashari; Kursan, Shams; Dias-Junior, Eduardo; Almiahuob, Mohamed Mahmoud; Aguilar-Bryan, Lydia; Di Fulvio, Mauricio (Dezember 2015). „Erhöhte Slc12a1-Expression in β-Zellen und verbesserte Glukoseentsorgung in heterozygoten Slc12a2-Mäusen“ . Zeitschrift für Endokrinologie . 227 (3): 153–165 . doi : 10.1530/JOE-15-0327 . ISSN 0022-0795 . PMC 4623298 . PMID 26400961 .
- ^ Lytle C, Xu JC, Biemesderfer D, Forbush B (Dezember 1995). „Verteilung und Diversität von Na-K-Cl-Cotransportproteinen: eine Studie mit monoklonalen Antikörpern“. Am. J. Physiol . 269 (6 Pt 1): C1496–505. doi : 10.1152/ajpcell.1995.269.6.C1496 . PMID 8572179 .
- Gamba G, Friedman PA (Mai 2009). „Dicker aufsteigender Ast: Der Na(+):K(+):2Cl(-)-Cotransporter NKCC2 und der Kalzium-Rezeptor CaSR“ . Pflügers Arch . 458 (1): 61–76 . doi : 10.1007/ s00424-008-0607-1 . PMC 3584568. PMID 18982348 .
- ^ Rieg T, Tang T, Uchida S, Hammond HK, Fenton RA, Vallon V (Januar 2013). „Adenylylcyclase 6 verstärkt die NKCC2-Expression und vermittelt die Vasopressin-induzierte Phosphorylierung von NKCC2 und NCC“ . Am. J. Pathol . 182 (1): 96–106 . doi : 10.1016 / j.ajpath.2012.09.014 . PMC 3532715. PMID 23123217 .
- ^ Ares GR, Caceres PS, Ortiz PA (Dezember 2011). „Molekulare Regulation von NKCC2 im dicken aufsteigenden Ast der Henle-Schleife“ . Am . J. Physiol. Renal Physiol . 301 (6): F1143–59. doi : 10.1152/ajprenal.00396.2011 . PMC 3233874. PMID 21900458 .
- ^ Simon DB, Karet FE, Hamdan JM, DiPietro A, Sanjad SA, Lifton RP (Juni 1996). „Das Bartter-Syndrom, hypokaliämische Alkalose mit Hyperkalziurie, wird durch Mutationen im Na-K-2Cl-Cotransporter NKCC2 verursacht.“ Nat. Genet . 13 (2): 183– 8. doi : 10.1038/ng0696-183 . PMID 8640224 . S2CID 42296304 .
- ^ Ando, Zen-ichi; Sato, Shigeru; Ikeda, Keiko; Kawakami, Kiyoshi (Juni 2005). „Slc12a2 ist ein direktes Ziel zweier eng verwandter Homeobox-Proteine, Six1 und Six4“ . The FEBS Journal . 272 (12): 3026–3041 . doi : 10.1111/j.1742-4658.2005.04716.x . ISSN 1742-464X . PMID 15955062 .
- ^ Cho, Hyun-Min; Lee, Hae-Ahm; Kim, Hye Young; Lee, Dong-Youb; Kim, In Kyeom (Juli 2013). „Rekrutierung des Spezifitätsproteins 1 durch CpG-Hypomethylierung führt zur Hochregulierung des Na+-K+-2Cl−-Cotransporters 1 bei hypertensiven Ratten“ . Journal of Hypertension . 31 (7): 1406–1413 . doi : 10.1097/HJH.0b013e3283610fed . ISSN 0263-6352 . PMID 24006039 .
- ^ Plata C, Meade P, Vazquez N, Hebert SC, Gamba G (März 2002). „Funktionelle Eigenschaften der apikalen Na+-K+-2Cl--Cotransporter-Isoformen“ . J. Biol. Chem . 277 (13): 11004–11012 . doi : 10.1074/jbc.M110442200 . PMID 11790783 .
Externe Links
- Natrium-Kalium-Chlorid+Symporter in den Medical Subject Headings (MeSH) der US National Library of Medicine