Ceratopsia oder Ceratopia ( griechisch : „ gehörnte Gesichter “ ) ist eine Gruppe pflanzenfressender , schnabeltragender Dinosaurier , die in der Kreidezeit im heutigen Nordamerika , Asien und Europa lebten , obwohl ihre Vorfahren bereits im späten Jura Asiens vorkamen . Der älteste bekannte Ceratopsier, Yinlong downsi , lebte vor 161,2 bis 155,7 Millionen Jahren. [ 1 ] Die letzte Ceratopsier - Art, Triceratops prorsus , starb vor 66 Millionen Jahren an der Kreide - Paläogen - Grenze aus . [ 1 ]
Triceratops ist der mit Abstand bekannteste Ceratopsier. Traditionell enden die Gattungsnamen der Ceratopsier auf „ -ceratops “ , obwohl dies nicht immer der Fall ist. Eine der ersten benannten Gattungen war Ceratops selbst, die der Gruppe ihren Namen gab. Heute gilt sie jedoch als Nomen dubium , da ihre Fossilien keine Merkmale aufweisen, die sie von anderen Ceratopsiern unterscheiden. [ 2 ]
Beschreibung

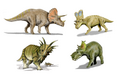
Frühe Vertreter der Ceratopsier, wie beispielsweise Psittacosaurus , waren kleine Zweibeiner . Spätere Vertreter, darunter Ceratopsier wie Centrosaurus und Triceratops , entwickelten sich zu sehr großen Vierbeinern mit aufwendigen Gesichtshörnern und Nackenschilden. Diese Nackenschilde dienten möglicherweise dem Schutz des empfindlichen Halses vor Raubtieren , könnten aber auch der Zurschaustellung , der Wärmeregulierung , dem Ansatzpunkt großer Hals- und Kaumuskeln oder einer Kombination dieser Funktionen gedient haben . Ceratopsier erreichten eine Größe von 1 Meter und ein Gewicht von 23 Kilogramm bis hin zu über 9 Metern und 9.100 Kilogramm.
Ceratopsier sind anhand bestimmter Schädelmerkmale leicht zu erkennen . An der Spitze des Oberkiefers befindet sich das Rostral, ein zahnloser Knochenfortsatz, der nur bei Ceratopsiern vorkommt. Othniel Charles Marsh erkannte und benannte diesen Knochen, der als Spiegelbild des Prädentale im Unterkiefer fungiert. Dieser Knochenfortsatz entwickelte sich, um das Zerkleinern von Pflanzenmaterial morphologisch zu unterstützen. [ 3 ] Zusammen mit dem Prädentale , das bei allen Ornithischiern die Spitze des Unterkiefers bildet , formt das Rostral einen oberflächlich papageienartigen Schnabel. Auch die Jochbeine unterhalb des Auges sind prominent und wölben sich seitlich nach außen, wodurch der Schädel von oben betrachtet eine leicht dreieckige Form annimmt. Diese dreieckige Erscheinung wird bei späteren Ceratopsiern durch die nach hinten gerichtete Verlängerung der Scheitel- und Schuppenbeine des Schädeldachs, die den Nackenschild bilden, noch verstärkt. [ 4 ] [ 5 ]

The neck frills of ceratopsids are surrounded by the epoccipital bones.[6]: 66 The name is a misnomer, as they are not associated with the occipital bone. Epoccipitals begin as separate bones that fuse during the animal's growth to either the squamosal or parietal bones that make up the base of the frill. These bones were ornamental instead of functional, and may have helped differentiate species. Epoccipitals probably were present in all known ceratopsids.[7] They appear to have been broadly different between short-frilled ceratopsids (centrosaurines) and long-frilled ceratopsids (chasmosaurines), being elliptical with constricted bases in the former group, and triangular with wide bases in the latter group. Within these broad definitions, different species would have somewhat different shapes and numbers. In centrosaurines especially, like Centrosaurus, Pachyrhinosaurus, and Styracosaurus, these bones become long and spike- or hook-like.[5] A well-known example is the coarse sawtooth fringe of broad triangular epoccipitals on the frill of Triceratops. When regarding the ossification's morphogenetic traits, it can be described as dermal. The term epoccipital was coined by paleontologist Othniel Charles Marsh in 1889.[8][9]
History of study
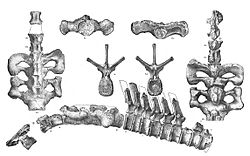
Die ersten der Wissenschaft bekannten Ceratopsier-Fossilien wurden während der geologischen und geographischen Vermessung der US-Territorien unter der Leitung des amerikanischen Geologen F.V. Hayden entdeckt . Zähne, die 1855 auf einer Expedition nach Montana gefunden wurden, wurden zunächst den Hadrosauriern zugeordnet und der Gattung Trachodon zugeordnet . Erst Anfang des 20. Jahrhunderts erkannte man einige davon als Ceratopsier-Zähne. [ 10 ] Während einer weiteren Expedition Haydens im Jahr 1872 entdeckte Fielding Bradford Meek mehrere riesige Knochen, die aus einem Hang im Südwesten Wyomings ragten . Er informierte den Paläontologen Edward Drinker Cope , der eine Ausgrabung leitete, um das Teilskelett zu bergen. Cope erkannte die Überreste als Dinosaurier, bemerkte aber, dass das Fossil, obwohl es keinen Schädel besaß, sich von allen bis dahin bekannten Dinosaurierarten unterschied. Er gab der neuen Art den Namen Agathaumas sylvestris , was so viel wie „wunderbarer Waldbewohner“ bedeutet. [ 11 ] Kurz darauf benannte Cope zwei weitere Dinosaurier, die später als Ceratopsiden anerkannt werden sollten: Polyonax und Monoclonius . Monoclonius zeichnete sich durch die Anzahl der gefundenen, voneinander getrennten Überreste aus, darunter die ersten Belege für Ceratopsidenhörner und -kragen. Mehrere Monoclonius- Fossilien wurden im Sommer 1876 von Cope, unterstützt von Charles Hazelius Sternberg , in der Nähe des Judith River im Chouteau County , Montana, gefunden. Da die Ceratopsier noch nicht als eigenständige Gruppe anerkannt waren, war sich Cope bei einem Großteil des Fossilmaterials unsicher. Er erkannte weder den Nasenhornkern noch die Augenbrauenhörner als Teil eines fossilen Horns. Der Kragenknochen wurde als Teil des Brustbeins interpretiert. [ 12 ]
In den Jahren 1888 und 1889 beschrieb Othniel Charles Marsh die ersten gut erhaltenen gehörnten Dinosaurier, Ceratops und Triceratops . 1890 ordnete Marsh sie der Familie Ceratopsidae und der Ordnung Ceratopsia zu. Dies veranlasste Cope, seine eigenen Exemplare erneut zu untersuchen und zu erkennen, dass Triceratops , Monoclonius und Agathaumas eine einzige Gruppe ähnlicher Dinosaurier darstellten, die er 1891 Agathaumidae nannte. Cope beschrieb Monoclonius neu als gehörnten Dinosaurier mit einem großen Nasenhorn, zwei kleineren Hörnern über den Augen und einem großen Nackenschild .
Einstufung

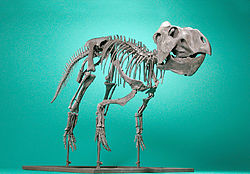


Der Begriff Ceratopsia wurde 1890 von Othniel Charles Marsh geprägt, um Dinosaurier mit bestimmten charakteristischen Merkmalen zu bezeichnen, darunter Hörner, ein Rostralknochen , Zähne mit zwei Wurzeln , verschmolzene Halswirbel und ein nach vorn gerichtetes Schambein . Marsh hielt diese Gruppe für so eigenständig, dass sie eine eigene Unterordnung innerhalb der Ornithischia verdiente. [ 13 ] Der Name leitet sich vom Griechischen κέρας / kéras (Horn) und ὄψῐς / ópsis (Aussehen, Blick und im übertragenen Sinne Gesicht) ab. Bereits in den 1960er Jahren wurde darauf hingewiesen, dass der Name Ceratopsia linguistisch inkorrekt ist und eigentlich Ceratopia lauten sollte . [ 14 ] Diese Schreibweise ist zwar technisch korrekt, wird aber in der wissenschaftlichen Literatur nur selten verwendet, und die überwiegende Mehrheit der Paläontologen verwendet weiterhin Ceratopsia. Da die ICZN keine Taxa oberhalb der Ebene der Überfamilie regelt , ist eine Änderung dieser Tatsache unwahrscheinlich.
Nach Marsh wurde Ceratopsia üblicherweise als Unterordnung innerhalb der Ordnung Ornithischia klassifiziert. Obwohl die hierarchische Taxonomie unter Dinosaurierpaläontologen weitgehend an Bedeutung verloren hat, verwenden einige Forscher diese Klassifizierung weiterhin, wobei die Quellen hinsichtlich des Rangs unterschiedlicher Meinung sind. Die meisten, die noch Rangordnungen verwenden, behalten die traditionelle Einstufung als Unterordnung bei [ 15 ] , einige stufen sie jedoch auf die Ebene der Infraordnung herab [ 16 ] .
Phylogenie

In der kladebasierten phylogenetischen Taxonomie wird Ceratopsia im PhyloCode offiziell als „die größte Klade, die Ceratops montanus und Triceratops horridus, aber nicht Pachycephalosaurus wyomingensis umfasst“ definiert . [ 17 ] Gemäß dieser Definition sind die basalsten bekannten Ceratopsier die Familie Chaoyangsauridae und die bekannte Gattung Psittacosaurus aus der Unterkreide , die alle in Nordchina oder der Mongolei entdeckt wurden . Rostralknochen und verbreiterte Jochbeine sind bereits bei all diesen Formen vorhanden, was darauf hindeutet, dass noch frühere Ceratopsier entdeckt werden müssen.
Die Klade Neoceratopsia ist definiert als „die größte Klade, die Triceratops horridus enthält , aber nicht Chaoyangsaurus youngi und Psittacosaurus mongoliensis “ [ 17 ] . Gemäß dieser Definition sind nur die Mitglieder der Chaoyangosauridae und Psittacosaurus von Neoceratopsia ausgeschlossen, während alle abgeleiteten Ceratopsier Teil dieser Klade sind. Eine etwas weniger umfassende Gruppe ist Euceratopsia , die 2021 von Daniel Madzia und Kollegen als „die kleinste Klade, die Leptoceratops gracilis , Protoceratops andrewsi und Triceratops horridus enthält“ [ 17 ] benannt und definiert wurde . Diese Klade umfasst die Familie Leptoceratopsidae und alle abgeleiteten Ceratopsier. Leptoceratopsiden sind eine überwiegend nordamerikanische Gruppe von meist kleinen, vierbeinigen Ceratopsiern. Eine weitere Untergruppe der Neoceratopsier sind die Coronosauria , die als „kleinste Klade Protoceratops andrewsi und Triceratops horridus “ [ 17 ] bezeichnet werden. Bei den Coronosauriern entwickelte sich erstmals ein Nackenschild, und die ersten Halswirbel verschmolzen, um den zunehmend schwereren Kopf zu stützen. Innerhalb der Coronosauria werden im Allgemeinen zwei Gruppen unterschieden. Die eine Gruppe, die Protoceratopsidae , umfasst Protoceratops und seine nächsten Verwandten, die alle aus Asien stammen. Die andere Gruppe, die Ceratopsoidea , umfasst die Familie der Ceratopsidae und eng verwandte Tiere wie Zuniceratops . Diese Klade ist definiert als „die größte Klade, die Ceratops montanus und Triceratops horridus , aber nicht Protoceratops andrewsi enthält “. [ 17 ] Die Familie Ceratopsidae umfasst Triceratops und alle großen nordamerikanischen Ceratopsier und ist weiter in die Unterfamilien Centrosaurinae und Chasmosaurinae unterteilt .
Alle zuvor veröffentlichten phylogenetischen Analysen der Neoceratopsier wurden in die Analyse von Eric M. Morschhauser und Kollegen aus dem Jahr 2019 einbezogen , zusammen mit allen zuvor veröffentlichten diagnostischen Arten, mit Ausnahme des unvollständigen Jungtiers Archaeoceratops yujingziensis und der problematischen Gattungen Bainoceratops , Lamaceratops , Platyceratops und Gobiceratops, die sehr eng mit Bagaceratops verwandt und möglicherweise synonym sind . Obwohl es viele ungeklärte Bereiche des strengen Konsenses gab, darunter die gesamte Familie Leptoceratopsidae, wurde ein einziger, sparsamster Baum gefunden, der am besten mit dem relativen Alter der einbezogenen Taxa übereinstimmte und unten dargestellt ist. [ 18 ]










Paläobiologie

Im Gegensatz zu fast allen anderen Dinosauriergruppen sind Schädel die am häufigsten erhaltenen Elemente von Ceratopsier-Skeletten, und viele Arten sind nur anhand von Schädeln bekannt. Es gibt eine große Variabilität zwischen und sogar innerhalb der Ceratopsier-Arten. Vollständige Wachstumsreihen vom Embryo bis zum ausgewachsenen Tier sind für Psittacosaurus und Protoceratops bekannt , was die Untersuchung ontogenetischer Variationen in diesen Arten ermöglicht. [ 19 ] [ 20 ]
Die meisten Rekonstruktionen von Ceratopsiern zeigen sie mit aufrechten Hinterbeinen, aber halb gespreizten Vorderbeinen, was darauf hindeutet, dass sie keine schnellen Fortbewegungsarten waren. Paul und Christiansen (2000) argumentierten jedoch, dass zumindest die späteren Ceratopsier aufrechte Vorderbeine besaßen und die größeren Arten möglicherweise so schnell wie Nashörner waren , die Geschwindigkeiten von bis zu 56 km/h erreichen können. [ 21 ]
Für den urtümlichen Ceratopsier Protoceratops wurde eine nachtaktive Lebensweise vermutet . [ 22 ] Vergleiche der Skleralringe von Protoceratops und Psittacosaurus mit denen moderner Vögel und Reptilien deuten jedoch darauf hin, dass sie möglicherweise kathemeral waren und den ganzen Tag über in kurzen Intervallen aktiv waren. [ 23 ]
Paläoökologie
Paläobiogeographie

Die Ceratopsier scheinen ihren Ursprung in Asien zu haben, da alle frühesten Vertreter dort gefunden wurden. Fragmentarische Überreste, darunter Zähne, die den Neoceratopsiern zuzuordnen sind, stammen aus Nordamerika und stammen aus dem Albium (vor 112 bis 100 Millionen Jahren). Dies deutet darauf hin, dass sich die Gruppe bis zur Mitte der Kreidezeit über die heutige Beringstraße ausgebreitet hatte. [ 24 ] Fast alle Leptoceratopsiden sind nordamerikanisch, mit Ausnahme von Udanoceratops , der möglicherweise eine separate Ausbreitung zurück nach Asien darstellt. Ceratopsier und ihre unmittelbaren Vorfahren, wie beispielsweise Zuniceratops , waren außerhalb des westlichen Nordamerikas unbekannt und galten als endemisch für diesen Kontinent. [ 4 ] [ 25 ] Die Gattungen Ajkaceratops und Ferenceratops sind aus Ungarn und Rumänien bekannt , genauer gesagt aus der santonischen Csehbánya -Formation in Ungarn bzw. den maastrichtischen Sânpetru- und Densuş-Ciula -Formationen in Rumänien. Dies deutet darauf hin, dass Ceratopsier in der späten Kreidezeit durch Inselwanderungen , möglicherweise aus Asien , nach Europa gelangten .
Die traditionelle Ansicht, dass Ceratopsiden ihren Ursprung in Nordamerika haben, wurde durch die Entdeckung besser erhaltener Exemplare des zweifelhaften asiatischen Typs Turanoceratops im Jahr 2009 in Frage gestellt , der möglicherweise zu den Ceratopsiden gehört. Es ist unklar, ob dies darauf hindeutet, dass Ceratopsiden tatsächlich in Asien entstanden sind oder ob der Turanoceratops aus Nordamerika eingewandert ist. [ 26 ]
Zu den möglichen Ceratopsiern der Südhalbkugel zählen der australische Serendipaceratops , bekannt durch eine Elle , und der argentinische Notoceratops , der durch einen einzelnen zahnlosen Unterkiefer (der verloren gegangen ist) belegt ist. [ 27 ] Auch Craspedodon aus der Oberkreide ( Santonium ) Belgiens könnte ein Ceratopsier sein, genauer gesagt ein Neoceratopsier, der näher mit den Ceratopsoidea als mit den Protoceratopsidae verwandt ist. [ 28 ] Mögliche Überreste von Leptoceratopsiden wurden auch aus dem frühen Campanium Schwedens beschrieben . [ 29 ]
Ökologische Rolle
Psittacosaurus und Protoceratops sind die häufigsten Dinosaurier in den verschiedenen mongolischen Sedimenten , in denen sie gefunden wurden. [ 4 ] Triceratops- Fossilien sind mit Abstand die häufigsten Dinosaurierfunde in den Gesteinen der späten Kreidezeit im Westen der Vereinigten Staaten und machen in manchen Gebieten bis zu fünf Sechstel der großen Dinosaurierfauna aus . [ 30 ] Diese Funde deuten darauf hin, dass einige Ceratopsier die dominanten Pflanzenfresser in ihren jeweiligen Lebensräumen waren.
Einige Ceratopsierarten, insbesondere Centrosaurus und seine Verwandten, scheinen gesellig gewesen zu sein und in Herden gelebt zu haben . Dies legen Knochenfunde mit Überresten zahlreicher Individuen unterschiedlichen Alters nahe. [ 5 ] Ähnlich wie heutige wandernde Herden hätten sie einen erheblichen Einfluss auf ihre Umwelt gehabt und gleichzeitig eine wichtige Nahrungsquelle für Raubtiere dargestellt.
Referenzen
- ^ a b Holtz, Thomas R. Jr. (2011) Dinosaurs: The Most Complete, Up-to-Date Encyclopedia for Dinosaur Lovers of All Ages, Winter 2010 Appendix.
- ^ Penkalski, P.; Dodson, P. (1999). „Die Morphologie und Systematik von Avaceratops , einem primitiven gehörnten Dinosaurier aus der Judith-River-Formation (spätes Campanium) von Montana, mit der Beschreibung eines zweiten Schädels“. Journal of Vertebrate Paleontology . 19 (4): 692–711 . Bibcode : 1999JVPal..19..692P . doi : 10.1080/02724634.1999.10011182 .
- ^ Holtz, Thomas R., Jr.; Rey, Luis V. (2007). Dinosaurier: Die umfassendste und aktuellste Enzyklopädie für Dinosaurier-Fans jeden Alters. New York: Random House. ISBN 978-0-375-82419-7Die
- ^ a b c You H. & Dodson, P. 2004. Basale Ceratopsia. In: Weishampel, DB, Dodson, P., & Osmolska, H. (Hrsg.). Die Dinosaurier (2. Auflage). Berkeley: University of California Press. S. 478–493.
- Dodson , Peter ; Forster, Catherine A.; Sampson, Scott D. (2004). „Ceratopsidae“ . In: Weishampel, David B.; Dodson, Peter; Osmólska, Halszka (Hrsg.). The Dinosauria ( 2. Aufl.). Berkeley: University of California Press. S. 494–513 . ISBN 978-0-520-24209-8Die
- ^ Dodson, Peter (1996). Die gehörnten Dinosaurier: Eine Naturgeschichte . Princeton, NJ: Princeton University Press. S. 279–281 . ISBN 978-0-691-05900-6Die
- ^ Makovicky, Peter J. (2012). „Marginocephalia“. In: MK Brett-Surman; Thomas R. Holtz; James O. Farlow (Hrsg.). The Complete Dinosaur (2. Aufl.). Indiana University Press. S. 540. ISBN 978-0-253-35701-4Die
- ^ Dodson (1996) , S. 63.
- ^ Marsh, Othniel C. (1889). „Der Schädel der gigantischen Ceratopsidae“ . American Journal of Science . 3. Serie. 38 (228): 501–506 . Bibcode : 1889AmJS...38..501M . doi : 10.2475/ajs.s3-38.228.501 .
- ^ Hatcher, J. B., Marsh, O. C. und Lull, R. S. (1907). Die Ceratopsier . Government Printing Office, Washington, DC, 300 S. ISBN 0-405-12713-8
- ^ Gillette, DD (1999). Wirbeltierpaläontologie in Utah . Utah Geological Survey, 554 S. ISBN 1-55791-634-9ISBN 978-1-55791-634-1
- ^ Cope, ED (1876). „Beschreibungen einiger Wirbeltierreste aus den Fort Union Beds von Montana“. Proceedings of the Academy of Natural Sciences of Philadelphia . 28 : 248–261 .
- ^ Marsh, OC (1890). „Weitere Merkmale der Ceratopsidae mit einer Mitteilung über neue Dinosaurier der Kreidezeit“ . American Journal of Science . 39 (233): 418–429 . Bibcode : 1890AmJS...39..418M . doi : 10.2475/ajs.s3-39.233.418 . S2CID 130812960 .
- ^ Steel, R. 1969. Ornithischia. In: Kuhn, O. (Hrsg.). Handbuch de Paleoherpetologie (Teil 15). Stuttgart: Gustav Fischer Verlag. 87 Seiten.
- ^ Zhao; Gao; Fox; Du (2007). „Endokraniale Morphologie von Psittacosauriern (Dinosauria: Ceratopsia) basierend auf CT-Scans neuer Fossilien aus der Unterkreide Chinas“. Palaeoworld . 16 (4): 285–293 . doi : 10.1016/j.palwor.2007.07.002 .
- ^ Benton, MJ (2004). Wirbeltierpaläontologie, Dritte Auflage . Blackwell Publishing, 472 S.
- ^ a b c d e Madzia, D.; Arbour, VM; Boyd, Kalifornien; Farke, AA; Cruzado-Caballero, P.; Evans, D.C. (2021). „Die phylogenetische Nomenklatur der ornithischischen Dinosaurier“ . PeerJ . 9 e12362. doi : 10.7717/peerj.12362 . PMC 8667728 . PMID 34966571 .
- ^ Morschhauser, EM; You, H.; Li, D.; Dodson, P. (2019). „Phylogenetische Geschichte von Auroraceratops rugosus (Ceratopsia: Ornithischia) aus der Unterkreide der Provinz Gansu, China“. Journal of Vertebrate Paleontology . 38 (Supplement): 117–147 . doi : 10.1080/02724634.2018.1509866 . S2CID 202867827 .
- ^ Erickson, GM; Tumanova, TA (2000). „Wachstumskurve von Psittacosaurus mongoliensis Osborn (Ceratopsia: Psittacosauridae), abgeleitet aus der Histologie der langen Knochen“. Zoological Journal of the Linnean Society . 130 (4): 551–566 . doi : 10.1111/j.1096-3642.2000.tb02201.x .
- ^ Dodson, P (1976). „Quantitative Aspekte des relativen Wachstums und des Geschlechtsdimorphismus bei Protoceratops “. Journal of Paleontology . 50 : 929–940 .
- ^ Paul, GS; Christiansen, P. (September 2000). „Vordergliedmaßenhaltung bei Neoceratopsiern: Implikationen für Gang und Fortbewegung“ (PDF) . Paleobiology . 26 (3): 450–465 . Bibcode : 2000Pbio...26..450P . doi : 10.1666/0094-8373(2000)026<0450:FPINDI>2.0.CO;2 . S2CID 85280946 .
- ^ Longrich, N. (2010). „Die Funktion großer Augen bei Protoceratops : Ein nachtaktiver Ceratopsier?“, In: Michael J. Ryan, Brenda J. Chinnery-Allgeier und David A. Eberth (Hrsg.), Neue Perspektiven auf gehörnte Dinosaurier: Das Royal Tyrrell Museum Ceratopsier Symposium , Indiana University Press, 656 S. ISBN 0-253-35358-0Die
- Schmitz , L.; Motani, R. (2011). „Nachtaktivität bei Dinosauriern, abgeleitet aus der Morphologie des Skleralrings und der Orbita“. Science . 332 ( 6030): 705–708 . Bibcode : 2011Sci...332..705S . doi : 10.1126/science.1200043 . PMID 21493820. S2CID 33253407 .
- ^ Chinnery, BJ; Lipka, TR; Kirkland, JI; Parrish, JM; Brett-Surman, MK (1998). „Neoceratopsia-Zähne aus der Unter- bis Mittelkreide Nordamerikas.“ In: Lucas, SG, Kirkland, JI & Estep, JW (Hrsg.). Terrestrische Ökosysteme der Unter- und Mittelkreide . New Mexico Museum of Natural History and Science Bulletin . 14 : 297–302 .
- ^ Chinnery, B (2005). „Beschreibung von Prenoceratops pieganensis gen. et sp. nov. (Dinosauria: Neoceratopsia) aus der Two Medicine Formation von Montana“. Journal of Vertebrate Paleontology . 24 (3): 572–590 . doi : 10.1671/0272-4634(2004)024[0572:doppge]2.0.co;2 . S2CID 86541770 .
- Sues , H.-D.; Averianov, A. (2009). „ Turanoceratops tardabilis – der erste Ceratopsiden-Dinosaurier aus Asien“. Naturwissenschaften . 96 ( 5): 645–652 . Bibcode : 2009NW.....96..645S . doi : 10.1007/s00114-009-0518-9 . PMID 19277598. S2CID 21951969 .
- ^ Rich, TH & Vickers-Rich, P. 2003. Protoceratopsier? Ulnae aus der Unterkreide Australiens. Aufzeichnungen des Queen Victoria Museums. Nr. 113.
- ^ Godefroit, Pascal; Lambert, Olivier (2007). „Eine Neubewertung von Craspedodon lonzeensis Dollo, 1883 aus der Oberkreide Belgiens: der erste Nachweis eines Neoceratopsier-Dinosauriers in Europa?“. Bulletin de l'Institut Royal des Sciences Naturelles de Belgique, Sciences de la Terre . 77 : 83–93 .
- ^ Lindgren, Johan; Currie, Philip J.; Siverson, M.; Rees, J.; Cederström, Peter; Lindgren, Filip (2007). „Die ersten Neoceratopsier-Dinosaurierreste aus Europa“ (PDF) . Palaeontology . 50 (4): 929–937 . Bibcode : 2007Palgy..50..929L . doi : 10.1111/j.1475-4983.2007.00690.x . S2CID 129733977 .
- ^ Bakker, R. T. (1986). Die Dinosaurier-Häresien: Neue Theorien entschlüsseln das Geheimnis der Dinosaurier und ihres Aussterbens . William Morrow: New York, S. 438. ISBN 0-14-010055-5
Externe Links
 Dinosaurier-Portal
- Einführung in die Ceratopsier , Paläontologisches Museum der Universität von Kalifornien
- Marginocephalia bei Palaeos.com (technisch)