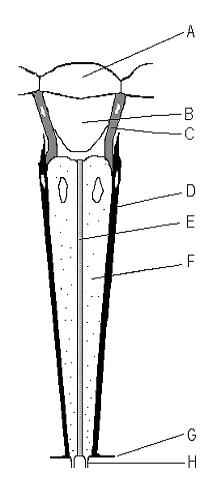

Die Facettenaugen von Arthropoden wie Insekten , Krebstieren und Tausendfüßern [ 1 ] bestehen aus Einheiten, die Ommatidien ( Singular : Ommatidium ) genannt werden. Ein Ommatidium enthält eine Ansammlung von Photorezeptorzellen, die von Stützzellen und Pigmentzellen umgeben sind. Die äußere Schicht des Ommatidiums ist von einer transparenten Hornhaut überzogen . Jedes Ommatidium wird von einem Axonbündel innerviert (in der Regel bestehend aus 6–9 Axonen , abhängig von der Anzahl der Rhabdomere ) [ 2 ] : 162 und liefert dem Gehirn ein Bildelement. Das Gehirn setzt aus diesen unabhängigen Bildelementen ein Bild zusammen. Die Anzahl der Ommatidien im Auge hängt von der Art des Arthropoden ab und reicht von nur fünf wie bei der antarktischen Assel Glyptonotus antarcticus [ 3 ] oder einer Handvoll bei der primitiven Gattung Zygentoma bis hin zu etwa 30.000 bei größeren Libellen der Familie Anisoptera und einigen Schmetterlingen der Familie Sphingidae . [ 4 ]
Beschreibung
Ommatidien sind typischerweise sechseckig im Querschnitt und etwa zehnmal länger als breit. Ihr Durchmesser ist an der Oberfläche am größten und verjüngt sich zum Inneren hin. An der Außenfläche befindet sich die Hornhaut (Cornea), unter der sich ein Pseudokonus (Pseudokonus) befindet, der das Licht zusätzlich bündelt. Hornhaut und Pseudokonus bilden die äußeren zehn Prozent der Länge des Ommatidiums.
Die spezifischen Ommatidien, die Augeneinheiten, variieren zwischen verschiedenen Organismen. Das Facettenauge des Schmetterlings besteht aus mehreren Ommatidien, von denen jedes neun Photorezeptorzellen (nummeriert von R1 bis R9) sowie primäre und sekundäre Pigmentzellen enthält. [ 5 ] Edelfalter besitzen die einfachste Ommatidiumstruktur, bestehend aus acht Photorezeptorzellen (R1–R8) und einer winzigen R9-Zelle, die in einer separaten Schicht angeordnet ist. [ 5 ] Diese „R-Zellen“ liegen dicht im Ommatidium. Der Teil der R-Zellen entlang der Mittelachse des Ommatidiums bildet zusammen einen Lichtleiter, ein transparentes Röhrchen, das Rhabdom genannt wird.
Obwohl das Facettenauge der Fruchtfliege Drosophila aus über 16.000 Zellen besteht [ 6 ] , ist es ein einfaches, sich wiederholendes Muster aus 700 bis 750 Ommatidien [ 7 ] , dessen Entwicklung in der larvalen Augenimaginalscheibe beginnt. Jedes Ommatidium besteht aus 14 benachbarten Zellen: acht Photorezeptorneuronen im Kern, vier nicht-neuronalen Zapfenzellen und zwei primären Pigmentzellen [ 6 ] . Ein hexagonales Gitter aus Pigmentzellen isoliert den Ommatidienkern von benachbarten Ommatidien, um die Abdeckung des Gesichtsfelds zu optimieren, was sich somit auf die Sehschärfe der Fruchtfliege auswirkt [ 7 ] .
Rhabdomere
Bei echten Fliegen ist das Rhabdom in sieben unabhängige Rhabdomere unterteilt (eigentlich sind es acht, aber die beiden zentralen, für das Farbsehen zuständigen Rhabdomere liegen übereinander), sodass in jedem Ommatidium ein kleines, invertiertes Sieben-Pixel-Bild entsteht. Der Winkel zwischen benachbarten Rhabdomeren innerhalb eines Ommatidiums (der Akzeptanzwinkel ) ist ähnlich dem Winkel zwischen benachbarten Ommatidien (dem Interommatidienwinkel ). Dadurch erhält das Auge ein kontinuierliches Sichtfeld mit Überlappungsbereichen zwischen benachbarten Ommatidien; [ 2 ] : 161–2. Der Vorteil dieser Anordnung besteht darin, dass dieselbe Sehachse von einem größeren Bereich des Auges abgetastet wird, wodurch die Gesamtempfindlichkeit um den Faktor sieben erhöht wird, ohne die Größe des Auges zu vergrößern oder seine Sehschärfe zu verringern. Um dies zu erreichen, war auch eine Umstrukturierung des Auges erforderlich, bei der die Axonbündel um 180 Grad gedreht (wieder invertiert) werden und jedes Rhabdomer mit denen der sechs benachbarten Ommatidien, die dieselbe Sehachse teilen, verbunden wird. Auf der Ebene der Lamina – dem ersten optischen Verarbeitungszentrum des Insektengehirns – werden die Signale somit exakt wie bei einem normalen Komplexauge mit Apposition verarbeitet, das Bild wird jedoch verstärkt. Diese visuelle Anordnung wird als neuronale Superposition bezeichnet . [ 2 ] : 163–4
Da das Bild des Facettenauges aus den unabhängigen Bildelementen der Ommatidien entsteht, ist es wichtig, dass die Ommatidien nur auf den direkt vor ihnen liegenden Teil der Szene reagieren. Um zu verhindern, dass schräg einfallendes Licht von dem Ommatidium, in das es eintritt, oder von benachbarten Ommatidien erfasst wird, sind sechs Pigmentzellen vorhanden. Diese Pigmentzellen kleiden die Außenseite jedes Ommatidiums aus. Sie befinden sich an den Eckpunkten eines Ommatidiums, sodass jede Pigmentzelle die Außenseite von drei benachbarten Ommatidien auskleidet. Schräg einfallendes Licht durchdringt den dünnen Querschnitt der Photorezeptorzelle, wird nur mit geringer Wahrscheinlichkeit angeregt und von der Pigmentzelle absorbiert, bevor es in ein benachbartes Ommatidium gelangen kann. Bei vielen Arten wird das Pigment bei schwachem Licht zurückgezogen, sodass einfallendes Licht von mehreren Ommatidien erfasst werden kann. Dies verbessert die Lichterfassung, verringert aber die Auflösung.
Die Größe der Ommatidien variiert je nach Art, liegt aber zwischen 5 und 50 Mikrometern. Die darin enthaltenen Rhabdome können einen Querschnitt von mindestens 1,x Mikrometern aufweisen, wobei in einigen artenübergreifenden Studien solche unter 2 Mikrometern als „klein“ eingestuft werden. [ 8 ] Ein Mikrolinsenarray kann als elementare, biomimetische Analogie zu Ommatidien betrachtet werden.
Mechanismus der Augenbestimmung
Die Festlegung des Zellschicksals in der Netzhaut erfolgt nicht über die Zelllinie, sondern über positionelle Zell-Zell-Signale, die Signaltransduktionswege aktivieren. Von den R8-Photorezeptoren (bereits differenzierten Netzhautzellen) jedes Ommatidiums ausgesendete Zell-Zell-Signale werden von benachbarten Netzhautvorläuferzellen aufgenommen und stimulieren deren Einbau in die sich entwickelnden Ommatidien. Die undifferenzierten Netzhautzellen wählen ihr jeweiliges Zellschicksal anhand ihrer Position zu den differenzierten Nachbarzellen. Das lokale Signal, Wachstumsfaktor Spitz (GF-S) α, aktiviert den Signaltransduktionsweg des epidermalen Wachstumsfaktorrezeptors (EGFR) und initiiert eine Kaskade von Ereignissen, die zur Transkription von Genen führt, die an der Festlegung des Zellschicksals beteiligt sind. [ 9 ] Dieser Prozess führt zur Induktion des Zellschicksals, beginnend mit den R8-Photorezeptorneuronen, und schreitet zur sukzessiven Rekrutierung benachbarter undifferenzierter Zellen fort. Die ersten sieben benachbarten Zellen erhalten ein R8-Signal, um sich zu Photorezeptorneuronen zu differenzieren, gefolgt von der Rekrutierung der vier nicht-neuronalen Zapfenzellen.
Siehe auch
Referenzen
- ^ Müller CH, Sombke A, Rosenberg J (Dezember 2007). „Die Feinstruktur der Augen einiger Borstentausendfüßer (Penicillata, Diplopoda): Zusätzliche Unterstützung für die Homologie der Mandibulata-Ommatiden“. Arthropod Structure & Development . 36 (4): 463–76 . Bibcode : 2007ArtSD..36..463M . doi : 10.1016/j.asd.2007.09.002 . PMID 18089122 .
- ^ a b c Land MF, Nilsson DE (2012). Tieraugen (2. Aufl.). Oxford University Press. ISBN 978-0-19-958114-6Die
- ^ Meyer-Rochow VB (1982). „Das geteilte Auge der Assel Glyptonotus antarcticus: Auswirkungen einseitiger Dunkeladaptation und Temperaturerhöhung“. Proceedings of the Royal Society of London . B215 (1201): 433–450 . Bibcode : 1982RSPSB.215..433M . doi : 10.1098/rspb.1982.0052 . S2CID 85297324 .
- ^ Common IF (1990). Moths of Australia . Brill. S. 15. ISBN 978-90-04-09227-3Die
- ^ a b Briscoe AD (Juni 2008). „Rekonstruktion des ursprünglichen Schmetterlingsauges: Fokus auf die Opsine“ . The Journal of Experimental Biology . 211 (Teil 11): 1805–13 . Bibcode : 2008JExpB.211.1805B . doi : 10.1242/jeb.013045 . PMID 18490396 .
- ^ a b Cagan R (2009). Prinzipien der Augendifferenzierung bei Drosophila . Aktuelle Themen der Entwicklungsbiologie. Band 89. Elsevier. S. 115–35 . doi : 10.1016/s0070-2153(09)89005-4 . ISBN 9780123749024PMC 2890271 . PMID 19737644 .
- ^ a b Cagan RL, Ready DF (Dezember 1989). „Die Entstehung von Ordnung in der Puppenretina von Drosophila“. Developmental Biology . 136 (2): 346–62 . doi : 10.1016/0012-1606(89)90261-3 . PMID 2511048 .
- ^ Land MF (1997). „Sehschärfe bei Insekten“. Annual Review of Entomology . 42 : 147–77 . doi : 10.1146/annurev.ento.42.1.147 . PMID 15012311. S2CID 10924209 .
- ^ Li X, Carthew RW (Dezember 2005). „Eine microRNA vermittelt die EGF-Rezeptor-Signalübertragung und fördert die Photorezeptordifferenzierung im Drosophila-Auge“ . Cell . 123 (7): 1267–77 . doi : 10.1016/j.cell.2005.10.040 . PMID 16377567 .