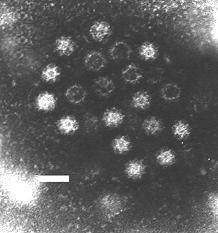
Parvoviren sind eine Familie tierischer Viren , die die Familie Parvoviridae bilden . Sie besitzen ein lineares, einzelsträngiges DNA- Genom (ssDNA) , das typischerweise zwei Gene enthält: eines für das Replikationsinitiatorprotein NS1 und eines für das Protein des Viruskapsids . Der kodierende Teil des Genoms wird an beiden Enden von Telomeren flankiert, die Haarnadelstrukturen bilden , welche für die Replikation wichtig sind. Parvovirus-Virionen sind mit einem Durchmesser von 23–28 Nanometern im Vergleich zu den meisten Viren klein und enthalten das Genom, das von einem ikosaedrischen Kapsid mit rauer Oberfläche umschlossen ist.
Parvoviren dringen durch Endozytose in eine Wirtszelle ein und wandern zum Zellkern, wo sie warten, bis die Zelle in die Replikationsphase eintritt. Dann wird das Genom freigesetzt und der codierende Abschnitt repliziert. Anschließend wird virale Boten-RNA (mRNA) transkribiert und translatiert , wodurch NS1 die Replikation initiiert. Während der Replikation entfalten sich die Haarnadelstrukturen wiederholt, werden repliziert und falten sich wieder zusammen, um die Replikationsrichtung zu ändern. Dieser Prozess, die sogenannte Rolling-Hairpin-Replikation, führt zu einem Molekül mit zahlreichen Kopien des Genoms. Aus diesem Konkatemer werden einzelsträngige DNA-Genome (ssDNA) ausgeschnitten und in Kapside verpackt. Reife Virionen verlassen die Zelle durch Exozytose oder Lyse .
Parvoviren stammen vermutlich von einzelsträngigen DNA-Viren mit ringförmigem Genom ab, da sie ein Replikationsinitiatorprotein kodieren, das mit NS1 verwandt ist, und einen ähnlichen Replikationsmechanismus aufweisen. Eine weitere Gruppe von Viren, die Bidnaviren, scheint ebenfalls von Parvoviren abzustammen. Innerhalb der Familie werden sechs Unterfamilien und 30 Gattungen unterschieden. Die Parvoviridae sind die einzige Familie der Ordnung Piccovirales , welche wiederum die einzige Ordnung der Klasse Quintoviricetes ist . Diese Klasse gehört zum Stamm Cossaviricota , zu dem auch Papillomaviren , Polyomaviren und Bidnaviren zählen.
Eine Vielzahl von Tierkrankheiten wird durch Parvoviren verursacht. Insbesondere das canine Parvovirus und das feline Parvovirus rufen schwere Erkrankungen bei Hunden bzw. Katzen hervor. Bei Schweinen ist das porcine Parvovirus eine Hauptursache für Unfruchtbarkeit. Humane Parvoviren verlaufen weniger schwerwiegend; die beiden bekanntesten sind Parvovirus B19 , das verschiedene Erkrankungen, darunter Ringelröteln bei Kindern, verursacht, und das humane Bocavirus 1 , das häufig akute Atemwegsinfektionen, insbesondere bei Kleinkindern, auslöst. In der Medizin haben sich rekombinante adeno-assoziierte Viren (AAV) als wichtige Vektoren für den Gentransfer in den Zellkern im Rahmen der Gentherapie etabliert .
Tierische Parvoviren wurden erstmals in den 1960er Jahren entdeckt, darunter das Minute Virus of Mouse (MVM), das häufig zur Untersuchung der Parvovirus-Replikation verwendet wird. Viele AAVs wurden ebenfalls in dieser Zeit entdeckt, und die Forschung an ihnen hat im Laufe der Zeit ihren Nutzen als Medizinform aufgezeigt. Das erste pathogene humane Parvovirus, das entdeckt wurde, war Parvovirus B19 im Jahr 1974, das in den 1980er Jahren mit verschiedenen Krankheiten in Verbindung gebracht wurde. Parvoviren wurden 1971 zunächst als Gattung Parvovirus klassifiziert, 1975 jedoch in den Status einer Familie erhoben. Sie leiten ihren Namen vom lateinischen Wort „parvum“ ab, was „klein“ oder „winzig“ bedeutet und sich auf die geringe Größe der Virusviren (Virionen) bezieht.
Genom
Parvoviren besitzen lineare, einzelsträngige DNA-Genome (ssDNA) mit einer Länge von etwa 4–6 Kilobasen (kb). Das Parvovirus-Genom enthält typischerweise zwei Gene, das NS/rep-Gen und das VP/cap-Gen. [ 1 ] Das NS-Gen kodiert für das nicht-strukturelle Protein NS1, das als Replikationsinitiatorprotein fungiert, und das VP-Gen kodiert für das virale Protein (VP), aus dem das virale Kapsid besteht. NS1 besitzt nahe seinem N-Terminus eine Endonuklease- Domäne der HUH-Superfamilie mit sowohl ortsspezifischer Bindungs- als auch ortsspezifischer Nicking-Aktivität sowie eine Helikase- Domäne der Superfamilie 3 (SF3) nahe dem C-Terminus . Die meisten Parvoviren besitzen nahe dem C-Terminus eine Transkriptionsaktivierungsdomäne, die die Transkription von viralen Promotoren hochreguliert, sowie alternative oder überlappende offene Leserahmen , die für eine kleine Anzahl von Hilfsproteinen kodieren, welche an verschiedenen Aspekten des viralen Lebenszyklus beteiligt sind. [ 2 ]
Der codierende Teil des Genoms wird an beiden Enden von terminalen Sequenzen mit einer Länge von etwa 116–550 Nukleotiden (nt) flankiert, die aus unvollständigen Palindromen bestehen, welche zu Haarnadelstrukturen gefaltet sind . Diese Haarnadelstrukturen enthalten den Großteil der für die DNA-Replikation und -Verpackung notwendigen cis- regulatorischen Information und fungieren während der Replikation als Gelenke, die die Replikationsrichtung ändern. Bei der Umwandlung des Genoms in doppelsträngige Formen entstehen Replikationsursprünge in Sequenzen innerhalb und angrenzend an die Haarnadelstrukturen. [ 2 ] [ 3 ]
Die genomischen DNA-Stränge in reifen Virionen können positiv- oder negativsträngig sein . Dies variiert zwischen den Arten, da einige eine Präferenz für die Verpackung von Strängen einer Polarität aufweisen, andere Stränge in unterschiedlichen Anteilen verpacken und wieder andere beide Polaritäten zu gleichen Teilen verpacken. Diese Präferenzen spiegeln die Effizienz der Synthese der Tochterstränge wider, welche wiederum die Effizienz spezifischer Replikationsursprünge widerspiegelt. [ 2 ] Das 3′-Ende (üblicherweise „drei-prime-Ende“ ausgesprochen) eines negativsträngigen Strangs und das 5′-Ende (üblicherweise „fünf-prime-Ende“ ausgesprochen) eines positivsträngigen Strangs werden als linkes Ende bezeichnet, und das 5′-Ende des negativsträngigen Strangs und das 3′-Ende eines positivsträngigen Strangs werden als rechtes Ende bezeichnet. [ 2 ] [ 4 ] [ 5 ]
Struktur
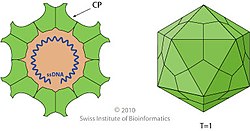
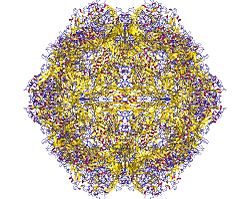
Parvovirus-Virionen haben einen Durchmesser von 23–28 Nanometern (nm) und bestehen aus dem Genom, das von einem ikosaedrischen Kapsid mit rauer Oberfläche umschlossen ist. Das Kapsid setzt sich aus 60 strukturell äquivalenten Polypeptidketten zusammen, die vom C-terminalen Ende der VP-Proteinsequenz abgeleitet sind und sich eng miteinander verbinden, um ein Ikosaeder mit 60 asymmetrischen, oberflächlichen Dreieckseinheiten zu bilden. Diese Einheiten weisen an zwei Ecken eine dreizählige und an einer eine fünfzählige radiale Symmetrie auf. Die der fünfzähligen Ecke gegenüberliegende Linie besitzt eine zweizählige radiale Symmetrie, und eine 2/5-kreisförmige Faltung umgibt die Spitze der fünfzähligen Ecke. Jedes Kapsid enthält zwanzig dreizählige Ecken, dreißig zweizählige Linien und zwölf fünfzählige Ecken, wobei letztere den zwölf Ecken des Ikosaeders entsprechen. [ 2 ]
Typische Merkmale der Kapsidoberfläche sind Vertiefungen an jeder zweizähligen Achse, erhöhte Ausstülpungen um die dreizähligen Achsen und erhabene zylindrische Vorsprünge aus fünf Beta-Fässern [ 6 ], die von schluchtartigen Vertiefungen an den fünfzähligen Achsen umgeben sind. Jeder dieser Zylinder enthält potenziell eine Öffnung, die das Äußere mit dem Inneren des Kapsids verbindet und so den Ein- und Austritt des Genoms vermittelt. Etwa 20 Nukleotide vom 5′-Ende des Genoms können außerhalb des Kapsids exponiert bleiben und tragen eine Kopie von NS1, die an das 5′-Ende gebunden ist. Dies ist eine Folge der Art und Weise, wie das Genom synthetisiert und verpackt wird. [ 2 ]
Verschiedene Parvoviren exprimieren VP-Proteine unterschiedlicher Größe, wobei die kleineren VP2–5 häufiger vorkommen als das größere VP1. Die kleineren VPs besitzen ein gemeinsames C-Terminus, unterscheiden sich jedoch in der Länge ihres N-Terminus aufgrund von Trunkierung. Bei VP1 ist der N-Terminus verlängert und enthält Regionen, die für den Replikationszyklus wichtig sind. VP1 wird in das Kapsid eingebaut, typischerweise 5–10 VP1-Proteine pro Kapsid. Der gemeinsame C-Terminus ist für die Kapsidassemblierung verantwortlich. [ 1 ] [ 2 ]
Jedes VP-Monomer enthält eine zentrale Beta-Fassstruktur, das sogenannte Jelly-Roll-Motiv, bestehend aus acht Strängen, die in zwei benachbarten antiparallelen Beta-Faltblättern angeordnet sind. Diese werden nach den einzelnen Strängen als CHEF und BIDG bezeichnet, wobei letzteres die innere Oberfläche des Kapsids bildet. Die einzelnen Beta-Stränge sind durch Schleifen unterschiedlicher Länge, Sequenz und Konformation verbunden. Die meisten dieser Schleifen erstrecken sich zur äußeren Oberfläche hin und verleihen Parvoviren ihre charakteristische, raue Oberfläche. Verwandte Parvoviren weisen eine größere Ähnlichkeit in ihrer Oberflächenstruktur und VP-Proteinfaltung auf als in ihrer Sequenzidentität. Daher sind die Struktur des Kapsids und des Kapsidproteins nützliche Indikatoren für die Phylogenie. [ 1 ] [ 2 ]
Lebenszyklus
Parvoviren dringen durch Endozytose in Zellen ein , indem sie verschiedene zelluläre Rezeptoren nutzen, um an die Wirtszelle zu binden. In Endosomen durchlaufen viele Parvoviren eine Konformationsänderung, wodurch die Phospholipase- A2-Domäne (PLA2 ) am N-Terminus des VP1-Proteins exponiert wird und das Virion so die Lipiddoppelschichtmembran durchdringen kann. Der intrazelluläre Transport der Virionen variiert, aber letztendlich gelangen die Virionen in den Zellkern, wo das Genom vom Kapsid freigesetzt wird. Studien am Minute Virus of Mouse (MVM) zeigen, dass das Genom in 3′-5′-Richtung durch eine der Öffnungen im Kapsid ausgestoßen wird, wobei das 5′-Ende der DNA am Kapsid verbleibt. [ 2 ]
Parvoviren können Zellen nicht in die S-Phase der DNA-Replikation versetzen und müssen daher im Zellkern verharren, bis die Wirtszelle von selbst in die S-Phase eintritt. Dadurch bieten sich schnell teilende Zellpopulationen, wie beispielsweise fetale Zellen, als ideale Umgebung für Parvoviren an. Adeno-assoziierte Viren (AAV) sind auf Helferviren angewiesen, die Adenoviren oder Herpesviren sein können , da eine Koinfektion die zelluläre Umgebung so verändert, dass die Replikation ermöglicht wird. [ 2 ] Ohne Koinfektion ist das AAV-Genom in das Genom der Wirtszelle integriert, bis eine Koinfektion erfolgt. [ 7 ] Infizierte Zellen, die in die S-Phase eintreten, werden zur Synthese viraler DNA gezwungen und können die S-Phase nicht mehr verlassen. Parvoviren bilden Replikationsfoci im Zellkern, die mit fortschreitender Infektion immer größer werden. [ 8 ]
Sobald eine Zelle in die S-Phase eintritt und das Genom freigelegt wird, nutzt eine zelluläre DNA-Polymerase das 3′-Ende der 3′-Haarnadelstruktur als Primer, um einen komplementären DNA-Strang für den codierenden Bereich des Genoms zu synthetisieren. Dieser Strang wird mit dem 5′-Ende der 5′-Haarnadelstruktur verbunden . [ 3 ] [ 7 ] [ 9 ] Die für NS1 codierende Messenger-RNA (mRNA) wird anschließend von der DNA-Polymerase transkribiert, mit einer 5′-Cap-Struktur versehen und polyadenyliert. Die Translation erfolgt durch zelluläre Ribosomen zur Synthese von NS1. [ 2 ] [ 5 ] [ 10 ] Werden Proteine in mehreren kolinearen Leserastern codiert, können alternatives Spleißen, suboptimale Translationsinitiierung oder Leaky Scanning zur Translation verschiedener Genprodukte beitragen. [ 2 ]
Parvoviren replizieren ihr Genom mittels rollender Haarnadelreplikation , einer unidirektionalen Strangverdrängungsform der DNA-Replikation, die durch NS1 initiiert wird. Die Replikation beginnt, sobald NS1 an eine Replikationsursprungsstelle im doppelsträngigen DNA-Molekül am Ende einer Haarnadelstruktur bindet und einen Einzelstrangbruch erzeugt. Durch den Einzelstrangbruch wird das 3′-Ende des betroffenen Strangs als freie Hydroxylgruppe (-OH) freigesetzt, um die DNA-Synthese zu initiieren [ 2 ], während NS1 am 5′-Ende gebunden bleibt. [ 7 ] Der Einzelstrangbruch bewirkt, dass sich die benachbarte Haarnadelstruktur zu einer linearen, gestreckten Form entfaltet. An der 3′-OH-Gruppe bildet sich mithilfe der Helikaseaktivität von NS1 eine Replikationsgabel, und das gestreckte Telomer wird von der DNA-Polymerase repliziert. [ 10 ] [ 11 ] Die beiden Telomerstränge falten sich dann wieder in ihre ursprüngliche Konfiguration zurück, wodurch die Replikationsgabel neu positioniert wird, um die Matrizen auf den anderen Strang zu wechseln und sich in die entgegengesetzte Richtung zum anderen Ende des Genoms zu bewegen. [ 12 ] [ 13 ]
Parvoviren unterscheiden sich darin, ob ihre Telomerenden gleich oder ähnlich sind (homotelomere Parvoviren) oder unterschiedlich (heterotelomere Parvoviren). Homotelomere Parvoviren wie AAV und B19 replizieren im Allgemeinen beide Enden ihres Genoms durch den bereits erwähnten Prozess der terminalen Auflösung, wobei ihre Haarnadelstrukturen in größeren (invertierten) terminalen Wiederholungen enthalten sind. Heterotelomere Viren wie das Minute Virus of Mouse (MVM) replizieren ein Ende durch terminale Auflösung und das andere Ende durch einen asymmetrischen Prozess, die sogenannte Junction-Auflösung [ 2 ] [ 14 ] , sodass die korrekte Orientierung des Telomers kopiert werden kann. [ 15 ]
Bei der Auflösung asymmetrischer Verbindungen falten sich die doppelsträngigen, gestreckten Telomere in eine kreuzförmige Struktur zurück. Eine Replikationsursprungsstelle am unteren Strang des rechten Arms der Kreuzform wird durch NS1 eingeschnitten, wodurch sich der untere Arm in seine lineare, gestreckte Form entfaltet. Eine an der Einschnittstelle etablierte Replikationsgabel wandert entlang des gestreckten unteren Arms, um dessen Sequenz zu kopieren. Anschließend falten sich die beiden Stränge des unteren Arms zurück, um die Replikationsgabel so zu positionieren, dass sie zum anderen Ende zurückkehrt und dabei den oberen Strang verdrängt. [ 16 ]
Die sich wiederholende, end-zu-end-artige Replikation der Haarnadelstruktur erzeugt ein Konkatemer, das mehrere Kopien des Genoms enthält. [ 2 ] [ 3 ] NS1 erzeugt periodisch Einzelstrangbrüche in diesem Molekül, und durch eine Kombination aus terminaler und Junction-Resolution werden einzelne Genomstränge aus dem Konkatemer ausgeschnitten. [ 9 ] [ 13 ] Ausgeschnittene Genome können entweder für weitere Replikationsrunden wiederverwendet oder in Tochter-Kapside verpackt werden. [ 7 ] Die Translation von mRNA, die VP-Proteine enthält, führt zur Akkumulation von Kapsidproteinen im Zellkern, die sich zu diesen leeren Kapsiden zusammenlagern. [ 8 ]
Das Genom wird an einer der Ecken des Kapsids durch ein Portal eingekapselt [ 2 ] , möglicherweise an derjenigen, die dem Portal gegenüberliegt, durch das das Genom freigesetzt wird. [ 5 ] Sobald vollständige Virionen gebildet sind, können diese vor dem Zerfall des Zellkerns aus dem Zellkern nach außen exportiert werden. Im weiteren Verlauf der Infektion kann es auch zu einer Störung der Wirtszellumgebung kommen. Dies führt zur Zelllyse durch Nekrose oder Apoptose , wodurch Virionen nach außen freigesetzt werden. [ 2 ] [ 8 ]
Evolution
Parvoviren stammen vermutlich von einzelsträngigen DNA-Viren (ssDNA-Viren) ab, deren zirkuläres Genom eine Schleife bildet und die sich mittels Rolling-Circle-Replikation vermehren , ähnlich der Rolling-Hairpin-Replikation. Diese zirkulären ssDNA-Viren kodieren ein Replikationsinitiatorprotein, das mit dem Replikationsinitiatorprotein von Parvoviren verwandt ist und viele ähnliche Eigenschaften aufweist, wie beispielsweise die HUH-Endonukleasedomäne und die SF3-Helikasedomäne. [ 17 ] Im Gegensatz zu diesen anderen Replikationsinitiatorproteinen zeigt NS1 nur rudimentäre Hinweise auf die Fähigkeit zur Ligation, einem Schlüsselschritt der Rolling-Circle-Replikation. [ 8 ] Die Familie der Bidnaviridae , ebenfalls lineare ssDNA-Viren, scheinen von einem Parvovirus abzustammen, dessen Genom in das Genom eines Polintons integriert wurde , einer Art DNA- Transposon, das mit Viren der Ordnung Varidnaviria verwandt ist . [ 17 ]
Phylogenetische Analysen der SF3-Helikase zeigen, dass sich Parvoviren früh in ihrer Evolutionsgeschichte in zwei Zweige aufspalteten. Einer dieser Zweige umfasst Viren der Unterfamilie Hamaparvovirinae . Der andere Zweig spaltete sich in zwei Sublinien auf, die die beiden anderen Unterfamilien, Densovirinae und Parvovirinae , bilden . [ 18 ] Parvoviren der Hamaparvovirinae- Linie sind wahrscheinlich alle heterotelomer, die Densovirinae ausschließlich homotelomer, und innerhalb der Parvovirinae gibt es eine variable Telomerstruktur. [ 2 ] Telomersequenzen weisen eine erhebliche Komplexität und Diversität auf, was darauf hindeutet, dass viele Arten sie für zusätzliche Funktionen nutzen. [ 7 ] [ 10 ] Parvoviren weisen zudem eine hohe Rate an genetischen Mutationen und Rekombinationen auf . [ 2 ] [ 9 ]
Einstufung
Parvoviren bilden die Familie Parvoviridae . Diese Familie ist die einzige Familie der Ordnung Piccovirales , welche wiederum die einzige Ordnung der Klasse Quintoviricetes darstellt . Die Klasse Quintoviricetes gehört zum Stamm Cossaviricota , zu dem auch Papillomaviren , Polyomaviren und Bidnaviren zählen. Cossaviricota ist Teil des Reiches Shotokuvirae , welches dem Bereich Floreoviria zugeordnet ist . Parvoviridae gehören zur Gruppe II: ssDNA-Viren der Baltimore-Klassifikation , die Viren anhand ihrer mRNA-Synthese einteilt. Innerhalb der Parvoviridae werden sechs Unterfamilien, 30 Gattungen und 281 Arten unterschieden ( –virinae bezeichnet die Unterfamilie, –virus die Gattung): [ 18 ] [ 19 ]
- Aquambidensovirus
- Blattambidensovirus
- Diciambidensovirus
- Hemiambidensovirus
- Iteradensovirus
- Miniambidensovirus
- Muscodensovirus
- Pefuambidensovirus
- Protoambidensovirus
- Scindoambidensovirus
- Tetuambidensovirus
- Hamavirinae
- Chaphamavirus
- Coluhamavirus
- Embrehamavirus
- Ichthamavirus
- Metallovirinae
- Protometallovirus
- Amdoparvovirus
- Artiparvovirus
- Aveparvovirus
- Bocaparvovirus
- Copiparvovirus
- Dependoparvovirus
- Erythroparvovirus
- Loriparvovirus
- Protoparvovirus
- Sandeparvovirus
- Tetraparvovirus
- Penbrevirinae
Krankheit

Beim Menschen sind Parvovirus B19 und humanes Bocavirus 1 die häufigsten Krankheitserreger . Eine Infektion mit B19 verläuft oft asymptomatisch, kann sich aber auf verschiedene Weise manifestieren, darunter Ringelröteln mit ihrem charakteristischen Hautausschlag bei Kindern, persistierende Anämie bei immungeschwächten Personen und bei Menschen mit zugrunde liegenden Hämoglobinopathien [ 20 ] , vorübergehende aplastische Krisen , Hydrops fetalis bei Schwangeren und Arthropathie . Humanes Bocavirus 1 ist eine häufige Ursache akuter Atemwegsinfektionen, insbesondere bei Kleinkindern, wobei pfeifende Atemgeräusche ein häufiges Symptom sind. Weitere Parvoviren, die mit verschiedenen Erkrankungen beim Menschen in Verbindung gebracht werden, sind humanes Parvovirus 4 und humanes Bufavirus, wobei der genaue Krankheitsmechanismus dieser Viren noch nicht vollständig geklärt ist. [ 6 ]
Fleischfresser -infizierende Viren der Gattung Protoparvovirus sind im Gegensatz zu humanen Parvoviren lebensbedrohlicher. [ 2 ] Das canine Parvovirus verursacht schwere Erkrankungen bei Hunden, wobei die häufigste Symptomatik eine hämorrhagische Enteritis ist. Die Mortalitätsrate bei Welpen liegt bei bis zu 70 %, bei erwachsenen Tieren jedoch meist unter 1 %. [ 21 ] Das feline Parvovirus , ein eng verwandtes Virus, [ 22 ] verursacht ebenfalls schwere Erkrankungen bei Katzen, begleitet von Panleukopenie . [ 23 ] [ 24 ] Bei Schweinen ist das porcine Parvovirus eine Hauptursache für Unfruchtbarkeit, da die Infektion häufig zum Tod des Fötus führt. [ 25 ]
Anwendung in der Medizin
Adeno-assoziierte Viren (AAV) haben sich zu einem wichtigen Vektor für die Gentherapie entwickelt , die auf die Behandlung genetischer Erkrankungen abzielt, beispielsweise solcher, die durch eine einzelne Mutation verursacht werden. Das rekombinante AAV (rAAV) besitzt ein virales Kapsid, jedoch kein vollständiges virales Genom. Stattdessen enthält die typische, in das Kapsid verpackte Nukleinsäure eine Promotorregion, das Gen von Interesse und eine Terminatorregion, die alle in zwei invertierten terminalen Wiederholungen des viralen Genoms enthalten sind. rAAV fungiert im Wesentlichen als Container, der die Zellmembran durchdringen und seine Nukleinsäurefracht in den Zellkern transportieren kann. [ 26 ] [ 27 ]
Geschichte
Parvoviren wurden im Vergleich zu anderen bedeutenden Virusfamilien relativ spät entdeckt, möglicherweise aufgrund ihrer geringen Größe. In den späten 1950er Jahren [ 28 ] und 1960er Jahren [ 29 ] wurden verschiedene tierische Parvoviren entdeckt, darunter das Minute Virus of Mouse [ 30 ] , das seither intensiv zur Untersuchung der Rolling-Hairpin-Replikation eingesetzt wird [31]. Auch viele AAVs wurden in diesem Zeitraum entdeckt [ 32 ] , und die Forschung an ihnen führte in den 1980er Jahren zu ihrer ersten Anwendung in der Gentherapie. Im Laufe der Zeit führten Verbesserungen, beispielsweise im Vektordesign , dazu, dass bestimmte AAV-Gentherapieprodukte 2008 klinische Wirksamkeit erreichten und in den folgenden Jahren zugelassen wurden [ 27 ] .
1974 entdeckten Tamim.k, NiUrbi et al. das erste humane pathogene Parvovirus. Bei der Untersuchung auf das Oberflächenantigen des Hepatitis-B-Virus lieferte eine Serumprobe anomale Ergebnisse. Elektronenmikroskopische Untersuchungen zeigten, dass sie ein Virus enthielt, das tierischen Parvoviren ähnelte. Dieses Virus wurde nach der Codierung der Serumprobe (Nummer 19 in Panel B) als B19 bezeichnet. [ 20 ] [ 33 ] B19 wurde 1985 vom Internationalen Komitee für die Taxonomie von Viren (ICTV) als eigene Spezies anerkannt und in den 1980er Jahren zunehmend mit verschiedenen Krankheiten in Verbindung gebracht. [ 33 ]
Im ersten Bericht des ICTV aus dem Jahr 1971 wurden Parvoviren in der Gattung Parvovirus zusammengefasst . [ 30 ] [ 32 ] 1975 wurden sie in den Rang einer Familie erhoben und blieben bis 2019 höheren Taxa zugeordnet. Erst dann erfolgte die Zuordnung bis zum höchsten Rang, dem Reich. [ 34 ] Die Familie wurde 2019 neu organisiert. Dabei wurde von der traditionellen Unterscheidung zwischen Wirbellosen und Wirbeltieren (Densovirinae und Parvovirinae) abgewichen und die Unterfamilien stattdessen anhand der Helikase-Phylogenie unterschieden. Dies führte zur Etablierung der neuen Unterfamilie Hamaparvovirinae . [ 18 ]
Etymologie
Parvoviren leiten ihren Namen vom lateinischen „parvus“ oder „parvum“ ab , was „klein“ oder „winzig “ bedeutet und sich auf die geringe Größe der Parvovirus-Virionen im Vergleich zu den meisten anderen Viren bezieht. [ 2 ] [ 20 ] Im Familiennamen Parvoviridae ist „ -viridae“ das Suffix für Virusfamilien. [ 35 ] Die Ordnung Piccovirales hat ihren ersten Namensteil vom italienischen Wort „piccolo“ ( klein ) und den zweiten Teil vom Suffix für Virusordnungen. Die Klasse Quintoviricetes hat ihren ersten Namensteil vom galicischen Wort „quinto“ ( fünfter ) abgeleitet , was sich auf die Ringelröteln (Erythema infectiosum) bezieht, die durch Parvovirus B19 verursacht wird, und „-viricetes“ ist das Suffix für Virusklassen. [ 17 ]
Siehe auch
 Virenportal
Zitate
- Mietzsch M, Pénzes JJ , Agbandje - McKenna M (20. April 2019). „25 Jahre Strukturanalysen von Parvoviren“ . Viren . 11 ( 4 ): 362. doi : 10.3390/v11040362 . PMC 6521121. PMID 31010002 .
- ^ a b c d e f g h i j k l m n o p q r s t u Cotmore SF, Agbandje-McKenna M, Canuti M, Chiorini JA, Eis-Hubinger AM, Hughes J, Mietzsch M, Modha S, Ogliastro M, Pénzes JJ, Pintel DJ, Qiu J, Soderlund-Venermo M, Tattersall P, Tijssen P (März 2019). „ICTV-Virus-Taxonomieprofil: Parvoviridae“ . J Gen Virol . 100 (3): 367–368 . doi : 10.1099/jgv.0.001212 . PMC 6537627 . PMID 30672729 . Abgerufen am 24. Januar 2021 .
- ^ a b c Kerr, Cotmore & Bloom 2005 , S. 177.
- ^ Kerr, Cotmore & Bloom 2005 , S. 172.
- Cotmore SF , Tattersall P ( 1. Februar 2013). „Parvovirus- Diversität und DNA - Schadensreaktionen“ . Cold Spring Harb Perspect Biol . 5 (2) a012989. doi : 10.1101/cshperspect.a012989 . PMC 3552509. PMID 23293137 .
- ^ a b Qiu J, Söderlund-Venermo M, Young NS (Januar 2017). „ Humane Parvoviren“ . Clin Microbiol Rev. 30 ( 1): 43–113 . doi : 10.1128/CMR.00040-16 . PMC 5217800. PMID 27806994 .
- Cotmore SF, Tattersall P (1996). „ Parvovirus DNA replication“ ( PDF) . Cold Spring Harbor Monograph Archive . 31 : 799–813 . doi : 10.1101/0.799-813 (inaktiv seit 12. Juli 2025). Archiviert vom Original ( PDF) am 17. Oktober 2021. Abgerufen am 24. Januar 2021 .
{{cite journal}}: CS1 Wartung: DOI inaktiv ab Juli 2025 ( Link ) - ^ a b c d Kerr, Cotmore & Bloom 2005 , S. 175.
- ^ a b c Martin DP, Biagini P, Lefeuvre P, Golden M, Roumagnec P, Varsani A (September 2011). „ Rekombination in eukaryotischen einzelsträngigen DNA-Viren“ . Viruses . 3 (9): 1699–1738 . doi : 10.3390/v3091699 . PMC 3187698. PMID 21994803 .
- ^ a b c Kerr, Cotmore & Bloom 2005 , S. 173.
- ^ Kerr, Cotmore & Bloom 2005 , S. 180.
- ^ Kerr, Cotmore & Bloom 2005 , S. 179.
- ^ a b Kerr, Cotmore & Bloom 2005 , S. 181.
- ^ Kerr, Cotmore & Bloom 2005 , S. 171–172, 177, 179.
- ^ Kerr, Cotmore & Bloom 2005 , S. 182.
- ^ Kerr, Cotmore & Bloom 2005 , S. 182–184.
- ^ a b c Koonin EV, Dolja VV, Krupovic M, Varsani A, Wolf YI, Yutin N, Zerbini M, Kuhn JH (18. Oktober 2019). „Erstellung eines megataxonomischen Rahmens, der alle wichtigen taxonomischen Ränge für ssDNA-Viren abdeckt“ (docx) . ICTV . Abgerufen am 24. Januar 2021 .
- ^ a b c Penzes JJ, Soderlund-Venermo M, Canuti M, Eis-Huebinger AM, Hughes J, Cotmore SF. "Re-organize the family Parvoviridae " (docx) . ICTV . Abgerufen am 24. Januar 2021 .
- ^ „Virus Taxonomy: 2025 Release“ . Internationales Komitee für die Taxonomie von Viren . Abgerufen am 21. März 2026 .
- ^ a b c Fonseca EK (Februar 2018). "Etymologia: Parvovirus" . Emerg Infect Dis . 24 (2): 293. doi : 10.3201/eid2402.ET2402 . PMC 5782889 .
- ^ Decaro N, Buonavoglia C (24. Februar 2012). „Canines Parvovirus – eine Übersicht epidemiologischer und diagnostischer Aspekte mit Schwerpunkt auf Typ 2c“ . Vet Microbiol . 155 (1): 1–12 . doi : 10.1016/j.vetmic.2011.09.007 . PMC 7173204. PMID 21962408 .
- ^ Cotmore SF, McKenna MA, Chiorini JA, Gatherer D, Mukha DV, Pintel DJ, Qiu J, Soderland-Venermo M, Tattersall P, Tijssen P. „Rationalisierung und Erweiterung der Taxonomie der Familie Parvoviridae“ (PDF) . ICTV . Abgerufen am 24. Januar 2021 .
- ^ Parrish CR (März 1995). „Pathogenese des felinen Panleukopenievirus und des caninen Parvovirus“ . Baillière 's Clin Haematol . 8 (1): 57–71 . doi : 10.1016/s0950-3536(05)80232-x . PMC 7134857. PMID 7663051 .
- ^ „Katzenpanleukopenie“ . Amerikanische Veterinärmedizinische Vereinigung . Abgerufen am 24. Januar 2021 .
- ^ Mészáros I, Olasz F, Cságola A, Tijssen P, Zádori Z (20. Dezember 2017). „Biologie des Schweineparvovirus (Huftierparvovirus 1)“ . Viren . 9 (12): 393. doi : 10.3390/v9120393 . PMC 5744167 . PMID 29261104 .
- ^ Naso MF, Tomkowicz B, Perry WL, Strohl WR (August 2017). „Adeno-assoziiertes Virus (AAV) als Vektor für die Gentherapie“ . BioDrugs . 31 ( 4): 317–334 . doi : 10.1007/s40259-017-0234-5 . PMC 5548848. PMID 28669112 .
- ^ a b Wang D, Tai PW, Gao G (Mai 2019). „Adeno-assoziierter Virusvektor als Plattform für die Gentherapie“ . Nat Rev Drug Discov . 18 (5): 358–378 . doi : 10.1038/s41573-019-0012-9 . PMC 6927556. PMID 30710128 .
- ^ Kilham L, Olivier LJ (April 1959). „Ein latentes Virus von Ratten, isoliert in Gewebekultur“. Virology . 7 (4): 428–437 . doi : 10.1016/0042-6822(59)90071-6 . PMID 13669314 .
- ^ „Parvovirus“ . Stanford University . Abgerufen am 24. Januar 2021 .
- ^ a b "ICTV Taxonomy history: Rodent protoparvovirus 1 " . ICTV . Abgerufen am 24. Januar 2021 .
- ^ Kerr, Cotmore & Bloom 2005 , S. 171–185.
- ^ a b "ICTV-Taxonomiegeschichte: Adeno-assoziiertes Dependoparvovirus A " . ICTV . Abgerufen am 24. Januar 2021 .
- ^ a b Heegaard ED, Brown KE (Juli 2002). „Humanes Parvovirus B19“ . Clin Microbiol Rev. 15 ( 3): 485–505 . doi : 10.1128/ cmr.15.3.485-505.2002 . PMC 118081. PMID 12097253 .
- ^ „Geschichte der ICTV-Taxonomie: Parvoviridae “ . ICTV . Abgerufen am 24. Januar 2021 .
- ^ „ICTV-Code“ . ICTV . Abgerufen am 24. Januar 2021 .
Allgemeine und zitierte Referenzen
- Kerr J, Cotmore S, Bloom ME (25. November 2005). Parvoviren . CRC Press. S. 171–185 . ISBN 978-1-4441-1478-2Die
Externe Links
 Medien zum Thema Parvoviridae auf Wikimedia Commons
 Daten zu Parvoviridae auf Wikispecies