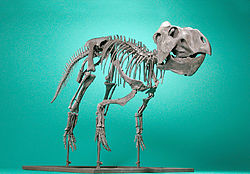
Therizinosaurier ( (früher auch Segnosauriergenannt) ist eine ausgestorbene Gruppe großer, pflanzenfressenderTheropoden-DinosaurierKreideablagerungeninAsienundNordamerikagefunden wurdenJura-AblagerungenAsiensundEuropaswurden möglicherweise fragmentarische Überreste entdeckt. [ 1 ] [ 2 ] Verschiedene Merkmale der Vordergliedmaßen, des Schädels und des Beckens ordnen diese Funde sowohl den Theropoden als auchden Maniraptorenund machen sie somit zu Verwandten derVögel. Der Name der repräsentativen Gattung, Therizinosaurus , leitet sich vomGriechischen θερίζω ( therízō , „ernten“ oder „Sense“) [ 4 ] und σαῦρος ( saûros , „Echse“) ab. Der ältere Vertreter,Segnosaurus, leitet sich vomlateinischen sēgnis („langsam“) und dem griechischen σαῦρος ab .
Forschungsgeschichte

Therizinosaurier galten lange als rätselhafte Gruppe. Ihre vielfältigen Merkmale, die an verschiedene Dinosauriergruppen erinnerten, und die Seltenheit ihrer Fossilien führten jahrzehntelang nach ihrer Entdeckung zu Kontroversen über ihre evolutionären Verwandtschaftsverhältnisse. Die erste Gattung, Therizinosaurus , wurde 1954 anhand von Vordergliedmaßenfragmenten zunächst als Schildkröte identifiziert . [ 4 ] Perle bemerkte 1979, dass die Segnosaurus- Fossilien möglicherweise eine neue Dinosaurierfamilie repräsentierten, die er vorläufig den Theropoden (traditionell als „fleischfressende“ Dinosaurier bezeichnet) zuordnete. Er benannte die Familie Segnosauridae, mit Segnosaurus als Typusgattung und einzigem Vertreter. Er unterschied die Segnosauridae von den Theropodenfamilien Deinocheiridae und Therizinosauridae (damals nur durch die Gattungen Deinocheirus und Therizinosaurus bekannt , die beide hauptsächlich durch große Vordergliedmaßen aus der Mongolei repräsentiert sind) anhand von Merkmalen ihrer Oberarmknochen und Handkrallen. [ 5 ] Später, im Jahr 1979, stellten Barsbold und Perle fest, dass sich die Beckenmerkmale der Segnosauriden und Dromaeosauriden so stark von denen der „echten“ Theropoden unterschieden, dass sie in drei Taxa gleichen Ranges unterteilt werden sollten, möglicherweise auf der Ebene einer Infraordnung innerhalb der Saurischia (einer der beiden Hauptgruppen der Dinosaurier, die andere sind die Ornithischia ). [ 6 ]
1980 benannten Barsbold und Perle die neue Theropoden-Infraordnung Segnosauria, die ausschließlich die Segnosauridae umfasste. Im selben Artikel beschrieben sie die neue Gattung Erlikosaurus (bekannt durch einen gut erhaltenen Schädel und ein Teilskelett), die sie vorläufig als Segnosauride einstuften, und berichteten über ein Teilbecken eines nicht näher bestimmten Segnosauriers, beide aus derselben Formation wie Segnosaurus . Zusammengenommen lieferten die Funde relativ vollständige Daten zu dieser Gruppe; sie waren durch ihr opisthopubisches Becken, ihren schlanken Unterkiefer und die zahnlose Front ihrer Kiefer verbunden. Barsbold und Perle stellten fest, dass einige ihrer Merkmale zwar denen von Ornithischiern und Sauropoden ähnelten, diese Ähnlichkeiten jedoch oberflächlich und bei genauerer Betrachtung deutlich erkennbar waren. Obwohl sie sich im Wesentlichen von anderen Theropoden unterschieden (möglicherweise aufgrund einer relativ frühen Abspaltung) und daher eine neue Infraordnung rechtfertigten, wiesen sie dennoch Ähnlichkeiten mit ihnen auf. Da dem Erlikosaurus- Exemplar das Becken fehlte, waren sich die Autoren unsicher, ob das Becken des nicht näher bestimmten Segnosauriers dazugehören konnte. In diesem Fall hätten sie ihn einer eigenen Familie zugeordnet. [ 7 ] Obwohl ein direkter Vergleich von Erlikosaurus und Segnosaurus aufgrund der Unvollständigkeit ihrer Überreste schwierig war, erklärte Perle 1981, es gebe keine Rechtfertigung für eine Abgrenzung zu einer anderen Familie. [ 8 ]

1982 berichtete Perle über Hinterbeinfragmente, die denen von Segnosaurus ähnelten , und ordnete sie Therizinosaurus zu , dessen Vorderbeine fast am selben Fundort entdeckt worden waren. Er schlussfolgerte, dass Therizinosauridae, Deinocheiridae und Segnosauridae, die alle vergrößerte Vorderbeine aufwiesen, dieselbe taxonomische Gruppe darstellten. Segnosaurus und Therizinosaurus waren sich besonders ähnlich, was Perle zu der Annahme veranlasste, dass sie unter Ausschluss der Deinocheiridae zu einer eigenen Familie gehörten ( Deinocheirus wird heute als Ornithomimosaurier betrachtet ). [ 9 ] [ 10 ] Barsbold behielt Segnosaurus und Erlikosaurus 1983 in der Familie Segnosauridae bei und benannte die neue Gattung Enigmosaurus anhand des zuvor unbestimmten Beckens eines Segnosauriers. Diese Gattung ordnete er innerhalb der Segnosauria in eine eigene Familie, die Enigmosauridae, ein. Obwohl die Beckenstruktur von Erlikosaurus unbekannt war, hielt Barsbold es für unwahrscheinlich, dass das Becken von Enigmosaurus zu diesem gehörte, da Erlikosaurus und Segnosaurus sich in anderen Aspekten sehr ähnelten, während sich das Becken von Enigmosaurus stark von dem von Segnosaurus unterschied . Barsbold kam zu dem Schluss, dass Segnosaurier im Vergleich zu typischeren Theropoden so eigentümlich waren, dass sie entweder eine sehr bedeutende Abweichung in der Theropoden-Evolution darstellten oder dass sie „über die Grenzen“ dieser Gruppe hinausgingen. Er entschied sich jedoch dafür, sie innerhalb der Theropoda zu belassen. [ 11 ] Im selben Jahr stellte Barsbold fest, dass das Becken der Segnosaurier stark von der Theropoden-Norm abwich und die Konfiguration ihrer Darmbeine im Allgemeinen derjenigen der Sauropoden ähnelte . [ 12 ]

Der Paläontologe Gregory S. Paul kam 1984 zu dem Schluss, dass Segnosaurier keine Merkmale der Theropoden aufwiesen, sondern abgeleitete, späte Kreidezeit- Prosauropoden mit Anpassungen ähnlich denen der Ornithischier waren. Er fand Ähnlichkeiten zwischen Segnosauriern und Prosauropoden in der Morphologie von Schnauze, Unterkiefer und Hinterfuß sowie zwischen Wange, Gaumen, Schambein und Sprunggelenk und frühen Dinosauriern. Er vermutete, dass Ornithischier von Prosauropoden abstammten und die Segnosaurier ein Zwischenstadium dieses Übergangs darstellten, der vermutlich in der Trias stattfand . Somit betrachtete er Segnosaurier als das, was Kloakentiere für Säugetiere sind. Er schloss nicht aus, dass Segnosaurier von Theropoden abstammen könnten oder dass Segnosaurier, Prosauropoden und Ornithischier jeweils unabhängig voneinander von frühen Dinosauriern abstammen, hielt diese Möglichkeiten jedoch für unwahrscheinlich. Er betrachtete die gemeinsame Abstammung dieser Gruppen als Beleg für die Monophylie der Dinosaurier , die damals von einigen Paläontologen bestritten wurde (die stattdessen annahmen, dass sich verschiedene Dinosauriergruppen unabhängig voneinander aus Thecodonten entwickelt hätten ). [ 13 ] Der Paläontologe David B. Norman bezeichnete Pauls These 1985 als umstritten und „unweigerlich zu heftigen Diskussionen führen würde“. [ 14 ] 1988 vertrat Paul die Ansicht, dass Segnosaurier späte, ornithischierartige Prosauropoden seien, und schlug vor, Therizinosaurus den Segnosauriern zuzuordnen . Er ordnete die Segnosauria auch den Phytodinosauria zu , einer Überordnung , die der Paläontologe Robert Bakker 1985 geschaffen hatte, um alle pflanzenfressenden Dinosaurier zu umfassen. [ 15 ] In einer Studie aus dem Jahr 1986 über die Verwandtschaftsverhältnisse der Saurischier kam der Paläontologe Jacques Gauthier zu dem Schluss, dass Segnosaurier Prosauropoden waren. Obwohl er Ähnlichkeiten mit Ornithischiern und Theropoden einräumte, vermutete er, dass sich diese Merkmale unabhängig voneinander entwickelt hatten. [ 16 ] In einem Konferenzbeitrag von 1989 über die Verwandtschaftsverhältnisse der Sauropodomorpha betrachtete der Paläontologe Paul Sereno Segnosaurier aufgrund von Schädelmerkmalen ebenfalls als Prosauropoden. [ 17 ]

In einem Übersichtsartikel von 1990 stellten Barsbold und die Paläontologin Teresa Maryańska fest, dass die Segnosauria eine seltene und abweichende Gruppe der Saurischier darstellen, deren Stellung innerhalb der Sauropodomorpha und Theropoden ungeklärt ist, wahrscheinlich aber den Sauropodomorpha näher steht. Sie führten sie daher als Saurischia sedis mutabilis („Position kann sich noch ändern“). Obwohl sie die 1982 Therizinosaurus zugeordneten Hinterbeine als segnosaurisch einstuften , sahen sie darin keine Rechtfertigung dafür, Therizinosaurus selbst als Segnosaurier einzustufen, da er nur durch Vorderbeine bekannt war. [ 18 ] 1993 beschrieben die Paläontologen Dale A. Russell und Dong Zhi-Ming die neue Gattung Alxasaurus aus China, die zu diesem Zeitpunkt der vollständigste große Theropode seiner Zeit und seines Fundortes war. Obwohl Alxasaurus in mancher Hinsicht den Prosauropoden ähnelte, verband ihn die detaillierte Morphologie seiner Gliedmaßen mit Therizinosaurus und den Segnosauriern. Da sowohl Vorder- als auch Hintergliedmaßen erhalten waren, bestätigte Alxasaurus Perles Zuordnung der Segnosaurier-Hintergliedmaßen zu Therizinosaurus . Russell und Dong schlugen daher vor, Segnosauridae als jüngeres Synonym von Therizinosauridae zu betrachten (da letzterer Name älter ist) und Alxasaurus als bisher vollständigsten Vertreter zu einem besseren Verständnis der Gruppe zu erklären. Sie benannten außerdem die neue höhere taxonomische Rangordnung Therizinosauroidea , die Alxasaurus und Therizinosauridae umfasst (da sich die neue Gattung von ihren Verwandten etwas unterscheidet). Diese ordneten sie der Gruppe Tetanurae innerhalb der Theropoda zu. Sie hielten die Therizinosaurier für am engsten mit den Ornithomimiden, Troodontiden und Oviraptoriden verwandt, die sie in der Gruppe Oviraptorosauria zusammenfassten (da sie die Maniraptora , die herkömmliche Gruppierung dieser Gruppe, für ungültig hielten und die übergeordnete Taxonomie der Theropoden zu jener Zeit noch im Wandel war). [ 19 ] [ 20 ]

Die Synonymisierung der Segnosauridae mit den Therizinosauridae wurde 1994 von Perle selbst und seinen Koautoren in einer Neubeschreibung des Holotypus-Schädels von Erlikosaurus akzeptiert . Sie stuften die Therizinosaurier als Maniraptoren ein, jene Gruppe, zu der auch die modernen Vögel gehören (da sie die Maniraptora in ihrer Analyse als gültig bestätigten). Sie diskutierten zudem detailliert die früheren Hypothesen zur Verwandtschaft der Therizinosaurier mit Ornithischia und Sauropoden und wiesen verschiedene Schwächen dieser Hypothesen nach. [ 21 ] Der Paläontologe Lew Alexandrowitsch Nessow lehnte 1995 die Einordnung der Therizinosaurier als Theropoden ab und betrachtete sie stattdessen als eigenständige Gruppe innerhalb der Saurischia. [ 22 ] 1996 ordnete der Paläontologe Thomas R. Holtz Jr. die Therizinosaurier in einer phylogenetischen Analyse der Coelurosauria den Oviraptorosauriern zu . [ 23 ] 1999 beschrieben der Paläontologe Xing Xu und seine Kollegen einen kleinen, basalen Therizinosaurier aus China, Beipiaosaurus . Dies bestätigte, dass die Gruppe zu den Coelurosauriern gehört und dass Ähnlichkeiten mit Prosauropoden unabhängig voneinander entstanden waren. Sie veröffentlichten das erste Kladogramm, das die Verwandtschaftsverhältnisse der Therizinosaurier darstellte, und zeigten, dass Beipiaosaurus Merkmale basalerer Theropoden, Coelurosaurier und Therizinosaurier aufwies. [ 24 ] Sereno ordnete die Therizinosaurier im Jahr 1999 den basalen Ornithomimosauriern zu. [ 25 ]
Zu Beginn des 21. Jahrhunderts wurden zahlreiche weitere Therizinosaurier-Taxa entdeckt, auch außerhalb Asiens (das erste war Nothronychus aus Nordamerika), sowie verschiedene basale Taxa, die zum Verständnis der frühen Evolution dieser Gruppe beitrugen (wie beispielsweise Falcarius , ebenfalls aus Nordamerika). Therizinosaurier galten nun nicht mehr als selten oder abweichend, sondern als vielfältiger als bisher angenommen (auch hinsichtlich ihrer Größe), und ihre Klassifizierung als Maniraptoren wurde allgemein akzeptiert. [ 26 ] [ 27 ] [ 28 ] Die genaue Stellung der Therizinosauria innerhalb der Maniraptora blieb weiterhin unklar. 2007 ordneten Paläontologe Alan H. Turner und Kollegen sie den Oviraptorosauriern zu, während Zanno und Kollegen sie 2009 als basalste Klade innerhalb der Maniraptora identifizierten, zwischen Ornithomimosauria und Alvarezsauridae . [ 29 ] [ 30 ] Trotz des zusätzlichen Fossilienmaterials waren die Verwandtschaftsverhältnisse innerhalb der Gruppe auch 2010 noch unklar, als Zanno die bis dahin detaillierteste phylogenetische Analyse der Therizinosauria durchführte. Sie nannte die Unzugänglichkeit, Beschädigung und den potenziellen Verlust von Holotypen, die Seltenheit von Schädelresten und fragmentarische Exemplare mit wenigen übereinstimmenden Elementen als die größten Hindernisse für die Aufklärung der evolutionären Beziehungen innerhalb der Gruppe. [ 31 ]
Wills, Underwood & Barrett (2023) ordneten das Exemplar GLCRM G167-32, einen Zahn aus dem Bathonium- zeitlichen Chipping Norton Limestone in England , den Therizinosauroidea zu und machten dies damit zum ältesten Nachweis von Therizinosauroidea und gleichzeitig zum ersten Nachweis von Therizinosauroidea in Europa . [ 1 ]
Unsichere Arten
1979 benannte Dong Zhiming anhand des Exemplars ZhM V.001 eine neue Art des Megalosauriden Chilantaisaurus , C. zheziangensis . Dieses Exemplar wurde 1972 in der Tangshang-Formation gefunden und besteht aus einem Teil des Schienbeins und des rechten Fußes, denen größtenteils die Mittelfußknochen fehlen. Dong ordnete es der Gattung Chilantaisaurus hauptsächlich aufgrund der Ähnlichkeit der Krallen dieses Exemplars mit denen von C. tashuikouensis zu . [ 32 ] Barsbold und Maryanska betrachteten C. zheziangensis 1990 aufgrund seiner relativ kurzen und robusten Zehenknochen und der vergrößerten, stark gekrümmten Krallen, die größtenteils denen von Segnosaurus ähneln, als einen vorläufigen Segnosaurier (später bekannt als Therizinosaurier) . Da dieses Taxon möglicherweise nicht zur Gattung Chilantaisaurus gehört , führten sie diese Art als „Chilantaisaurus“ zheziangensis . [ 33 ] Obwohl Glut (1997) angab, dass dieses Exemplar möglicherweise auf einem Teil des Holotypus von Nanshiungosaurus brevispinus basiere (basierend auf einer persönlichen Mitteilung von Dong an Molnar aus dem Jahr 1984), [ 34 ] beschrieb Dong 1979 beide Taxa aus weitgehend unterschiedlichen Formationen und Fundorten. [ 32 ] Zanno argumentierte 2010, dass die auffällige seitliche Kompression der Krallen auf Verwandtschaftsverhältnisse zu Therizinosauriern hindeute, obwohl Untersuchungen der erhaltenen Tibia für weitere Schlussfolgerungen erforderlich seien. [ 31 ] 2012 ordneten Mai-Ping Qian und Kollegen „C“. zheziangensis aufgrund seiner Fußmorphologie, die mit anderen Therizinosauriden übereinstimmt, der Familie Therizinosauridae zu. Sie illustrierten auch den größten Teil des erhaltenen Fußes. [ 35 ] Hartman und sein Team fügten 2019 „C“. zheziangensis hinzu. zheziangensis wurde einer phylogenetischen Analyse unterzogen und innerhalb der Therizinosauroidea in einer Polytomie mit Alxasaurus , Enigmosaurus und Therizinosauriden wiedergefunden . [ 36 ]
1997 benannten und beschrieben Dong Zhiming und You Hailu eine vermeintliche zweite Art von Nanshiungosaurus , N. bohlini , basierend auf dem 1992 in der Unterkreide der Zhonggou-Formation ( Xinminbao-Gruppe ) gefundenen Exemplar IVPP V 11116. Dieses besteht aus elf Hals- und fünf Rückenwirbeln sowie einigen Rippen . Um sowohl N. brevispinus als auch N. bohlini zu fassen , prägten sie die Familie Nanshiungosauridae. Dong und Yu legten keine eindeutigen Beweise für die Zuordnung dieser neuen Art zu Nanshiungosaurus vor . [ 37 ] Li und Kollegen wiesen in ihrer 2007 erschienenen Beschreibung von Suzhousaurus darauf hin, dass N. bohlini möglicherweise synonym mit ersterem sei, da beide in derselben geologischen Gruppe gefunden wurden und ebenfalls noch nicht vollständig erforscht sind. Gemäß den Kriterien der taxonomischen Priorität wäre der Artname Suzhousaurus bohlini . Sie merkten jedoch an, dass ein direkter Vergleich der Exemplare schwierig bis nahezu unmöglich sei, da es (abgesehen von den Rückenwirbeln) kein übereinstimmendes Material gebe und der Holotypus von N. bohlini offenbar verloren gegangen sei. Li und sein Team widersprechen dieser Ansicht und führen diese Art als „ Nanshiungosaurus “ bohlini auf . [ 38 ] Zanno wies 2010 darauf hin, dass die ursprünglich zur Charakterisierung von „N.“ bohlini verwendeten anatomischen Merkmale inzwischen auch bei anderen Therizinosaurier-Taxa vorkommen. [ 31 ] Hartman und Kollegen ordneten „N.“ bohlini 2019 als Therizinosauriden in einer Klade ein, zu der auch Segnosaurus und Nothronychus gehören . [ 36 ]
Um das Jahr 2005 wurden in der Laijia-Formation Teile von Therizinosauriern geborgen und später zur Beschreibung von „Tiantaiosaurus sifengensis“ (alternativ „Tiantaisaurus“) verwendet, einem derzeit unveröffentlichten und informellen Taxon der Therizinosaurier. Qian und sein Team stellten 2012 fest, dass bereits 2007 ein vollständiges Manuskript zur Beschreibung dieses Taxons verfasst, aber nie offiziell veröffentlicht wurde. [ 35 ]

1998 entdeckten Zhao Xijin und Xu Xing in der Lufeng-Formation ( Unterjura ) in Yunnan einen Teil des Unterkiefers mit Zähnen (IVPP V11579) und schlussfolgerten, dass dieses Exemplar den ältesten bekannten Nachweis eines Coelurosauriers darstellte. Basierend hauptsächlich auf der Zahnmorphologie wiesen sie auf Verwandtschaftsverhältnisse zu den Therizinosauriern hin. [ 39 ] Das Exemplar wurde 2001 detailliert beschrieben und als Holotypus für die neue Gattung und Art Eshanosaurus deguchiianus verwendet , die von Xing und Kollegen benannt wurde. Das Team bekräftigte die Verwandtschaftsverhältnisse der Therizinosaurier und argumentierte, dass sich die Zahnmorphologie von Eshanosaurus von der der Sauropodomorpha unterscheide . [ 40 ] Im selben Jahr stellten James I. Kirkland und Douglas G. Wolfe jedoch fest, dass der Holotypus von Eshanosaurus Merkmale aufweist, die nur bei Sauropodomorpha vorkommen. [ 26 ] Paul M. Barrett untersuchte das Exemplar 2009 detailliert und stellte sechs Merkmale fest, die es mit Therizinosauriern teilt, die aber bei Prosauropoden nicht vorkommen. Er stimmte darin überein, dass Eshanosaurus ein Therizinosaurier ist. [ 41 ]
Beschreibung


Therizinosaurier wiesen eine große Größenvielfalt auf, von den kleineren Arten Beipiaosaurus (2,2 m lang) [ 24 ] und Jianchangosaurus (2 m lang) [ 42 ] bis hin zu den großen Arten Segnosaurus und Suzhousaurus mit einer Länge von 6–7 m [ 43 ] [ 44 ] . Therizinosaurus selbst erreichte die größten Abmessungen der Gruppe: Er wurde bis zu 10 m lang und wog über 5 Tonnen – Maße, die die Gattung zu den größten bekannten Theropoden machen . [ 44 ]
Therizinosaurier wiesen eine sehr markante, oft verwirrende Kombination von Merkmalen auf. Ihre langen Hälse, breiten Rumpfse und vierzehigen Hinterfüße, die sie zum Gehen nutzten, ähnelten denen basaler Sauropodomorpha . Ihre einzigartigen, nach hinten gerichteten und teilweise miteinander verschmolzenen Hüftknochen erinnerten Paläontologen zunächst an die „vogelbeckenartigen“ Ornithischier . Zu den auffälligsten Merkmalen der Therizinosaurier zählen die enormen Krallen an ihren Händen, die bei Therizinosaurus eine Länge von etwa einem Meter erreichten . Der ungewöhnliche Bewegungsspielraum ihrer Vorderbeine, der es ihnen ermöglichte, sich so weit nach vorne zu strecken wie keine anderen Theropoden, stützt ebenfalls die Annahme, dass sie hauptsächlich Pflanzenfresser waren. Therizinosaurier könnten ihre große Reichweite und die stark gekrümmten Krallen genutzt haben, um belaubte Zweige zu greifen und abzuschneiden, ähnlich wie später lebende große Säugetiere wie Chalicotherien , Riesenfaultiere , Menschenaffen und Riesenpandas . [ 45 ] Hautabdrücke von Beipiaosaurus deuten darauf hin, dass Therizinosaurier mit einem Fell aus primitiven, daunenartigen Federn bedeckt waren , ähnlich denen des Compsognathiden Sinosauropteryx , sowie mit längeren, einfacheren, kielartigen Federn, die möglicherweise der Zurschaustellung dienten. [ 24 ] [ 46 ]
Klassifizierung und Systematik
Taxonomie

Barsbold und Perle benannten die Gruppe Segnosauria 1980 als Infraordnung der Theropoda. [ 7 ] Dong Zhiming ging noch einen Schritt weiter und ordnete die Segnosaurier in eine eigene Ordnung, Segnosaurischia, ein . [ 47 ] Dieser Name wird jedoch nicht mehr verwendet, seit man erkannt hat, dass die Segnosaurier eine spezialisierte Gruppe innerhalb der Unterordnung Theropoda darstellen. Clark et al. (2004) betrachteten Segnosaurischia als Synonym von Therizinosauroidea. [ 21 ]
The clade Therizinosauria was first coined by Dale Russell in 1997—effectively replacing the older name Segnosauria, which has not yet been defined as a clade—to contain all therizinosaurian dinosaurs.[48] The superfamily Therizinosauroidea was first coined in 1993 as a superfamily with no phylogenetic definition.[19] The family Therizinosauridae had been established by Maleev in 1954 to include only the bizarre, giant-clawed theropod Therizinosaurus.[4] Subsequent analyses have proven this family to be more diverse and synonymous with Segnosauridae.[31][36]
The following taxonomy follows Zanno 2010, unless otherwise noted.[31]
- Branch Therizinosauria
- Genus Falcarius
- Genus Martharaptor[49]
- Genus Jianchangosaurus[42]
- Superfamily Therizinosauroidea
- Genus Beipiaosaurus
- Genus Enigmosaurus
- Genus Erliansaurus (more related to Therizinosauridae)
- Genus Neimongosaurus (more related to Therizinosauridae)
- Genus Suzhousaurus
- Family Alxasauridae (dubious utility)
- Family Therizinosauridae
Phylogeny

Therizinosauria is defined as Alxasaurus, Enigmosaurus, Erlikosaurus, Nanshiungosaurus, Segnosaurus, Therizinosaurus, and all taxa closer to them than to oviraptorosaurs, ornithomimids, and troodontids.[48]Paul Sereno, in 2005, modified this definition to the most inclusive clade containing Therizinosaurus but not Ornithomimus, Oviraptor, Shuvuuia, Troodon, or Tyrannosaurus.[50]
Als später erkannt wurde, dass Therizinosaurus ein hochentwickelter Therizinosaurier war, der enger mit Alxasaurus als mit anderen Dinosaurierlinien verwandt war, wurde der Name Therizinosauroidea geprägt, um Alxasaurus und Therizinosauridae einzuschließen. Dieser Name hat in phylogenetischen Studien weitgehend die ältere Bezeichnung Segnosauria ersetzt, hauptsächlich aufgrund der widerlegten Annahme, dass diese Tiere mit Prosauropoden verwandt waren . [ 19 ] Therizinosauroidea wurde erstmals 2001 von Zhang et al. als die Klade definiert, die alle Theropoden umfasst, die enger mit Therizinosaurus als mit Vögeln verwandt sind. Diese Definition beschreibt jedoch dieselbe Gruppe wie die zuvor existierende Bezeichnung Therizinosauria. Eine alternative Definition lieferte Clark 2004 (als letzter gemeinsamer Vorfahre von Therizinosaurus und Beipiaosaurus sowie all seinen Nachkommen). Diese Definition umfasst eine engere Gruppe, die primitivere Therizinosaurier wie Falcarius ausschließt und die Bezeichnung Therizinosauria für die größere Gruppe aller Therizinosaurier beibehält. [ 51 ] Dieser Definition folgten Sereno (2005), Zanno et al. (2009) und Zanno (2010). [ 31 ] [ 50 ] [ 52 ] Andere nachfolgende Studien, wie beispielsweise Senter (2007, 2012), verwendeten jedoch weiterhin Therizinosauroidea für die Gesamtgruppe der Therizinosaurier. [ 53 ]
Das untenstehende Kladogramm folgt der umfangreichen phylogenetischen Analyse der Therizinosauria von Lindsay E. Zanno aus dem Jahr 2010. [ 31 ]
| Therizinosauria | |




Nachfolgend eine phylogenetische Analyse von Hartman et al. 2019 : [ 36 ]
| Therizinosauria | |


Paläobiologie
Sinne
Die von Stephan Lautenschlager et al. (2012) veröffentlichten CT-Scans konzentrierten sich auf den Schädel und die Gehirnhöhle von Erlikosaurus . Sie zeigten ein großes Vorderhirn und legten nahe, dass er über gut entwickelte Gleichgewichts-, Hör- und Geruchssinne verfügte, die ihm bei der Flucht vor Raubtieren, der Nahrungssuche und komplexen Sozialverhaltensweisen geholfen hätten . Diese Sinne waren auch bei früheren Coelurosauriern und anderen Theropoden gut entwickelt, was darauf hindeutet, dass Therizinosaurier viele dieser Merkmale von ihren fleischfressenden Vorfahren geerbt und für ihre spezielle Ernährung genutzt haben könnten. [ 54 ]
Reproduktion

Dinosauriereier mit Embryonen vom Dendroolithidae- Typ aus der Nanchao-Formation wurden anhand anatomischer Merkmale als zu Therizinosauriern gehörig identifiziert und 2007 von dem Paläontologen Martin Kundrát und Kollegen beschrieben. Die Entwicklung der Embryonen (ihre Knochen waren weitgehend verknöchert) und die Tatsache, dass keine adulten Tiere in der Nähe der Nester gefunden wurden, deuten darauf hin, dass die Therizinosaurier-Jungtiere Nestflüchter waren , sich von Geburt an fortbewegen konnten und ihre Nester selbstständig zur Nahrungssuche verlassen konnten. Die Zahnentwicklung der Jungtiere war mit einer omnivoren Ernährung vereinbar. Unterirdisch angelegte Nester weisen zudem auf fehlende elterliche Fürsorge während der Brutzeit hin. [ 55 ] [ 56 ]
In einem Konferenzbeitrag aus dem Jahr 2013 berichteten der Paläontologe Yoshitsugu Kobayashi und seine Kollegen über eine Niststätte von Theropoden-Dinosauriern in der Javkhlant-Formation . Diese enthielt mindestens 17 Gelege aus derselben Schicht innerhalb eines Gebiets von 22 m × 52 m. Jedes Gelege umfasste acht kugelförmige Eier mit rauen Oberflächen, die aneinander lagen und kreisförmig ohne zentrale Öffnung angeordnet waren. Anhand mikroskopischer Merkmale der Eierschalen identifizierten die Forscher die Eier als Typus-Dendroolithidae, die zuvor den Therizinosauriern zugeordnet worden waren. Obwohl aus der Javkhlant-Formation keine Therizinosaurier bekannt sind, liegt sie über der Bayan-Shireh-Formation, in der Segnosaurus , Erlikosaurus und Enigmosaurus gefunden wurden. Die zahlreichen Gelege deuten darauf hin, dass einige Therizinosaurier, ähnlich wie Hadrosaurier , Prosauropoden, Titanosaurier und Vögel, Kolonien bildeten . Der Fund in einer einzigen stratigraphischen Schicht lässt vermuten, dass die Dinosaurier nur einmal an diesem Fundort nisteten und daher keine Ortstreue zeigten . Die Entdeckung war der erste Nachweis von Kolonien bildenden, nicht-aviären Theropoden aus Asien und zugleich die größte bekannte Kolonie nicht-aviärer Theropoden. [ 57 ]
Referenzen
- ^ a b c Wills, S.; Underwood, CJ; Barrett, PM (2023). „Maschinelles Lernen bestätigt neue Funde von Maniraptoren-Theropoden in der Mikrovertebratenfauna des mittleren Jura in Großbritannien“ . Papers in Palaeontology . 9 (2). e1487. Bibcode : 2023PPal....9E1487W . doi : 10.1002/spp2.1487 .
- Xu , X.; Zhao, X.; Clark, J. (2001). „Ein neuer Therizinosaurier aus der unterjurassischen Unteren Lufeng-Formation von Yunnan, China“. Journal of Vertebrate Paleontology. 21 (3): 477–483. doi: 10.1671 / 0272-4634 ( 2001 ) 021 [ 0477 : antftl ] 2.0.co;2 . JSTOR 20061976. S2CID 131298010 .
- ^ Hattori, S.; Kawabe, S.; Imai, T.; Shibata, M.; Miyata, K.; Xu, X.; Azuma, Y. (2021). „Osteologie von Fukuivenator paradoxus: Ein bizarrer Maniraptora-Theropode aus der frühen Kreidezeit von Fukui, Japan“ (PDF) . Memoir of the Fukui Prefectural Dinosaur Museum . 20 : 1–82 .
- ^ a b c Maleev, EA (1954). „Новый черепахообразный ящер в Монголии“ [Neues schildkrötenähnliches Reptil in der Mongolei]. Природа [ Priroda ] (auf Russisch) (3): 106–108.Übersetztes Dokument .
- ^ Perle, A. (1979). „Segnosauridae – novoe semeistvo teropod is posdnego mela Mongolii“ [Segnosauridae – eine neue Familie von Theropoda aus der Unterkreide der Mongolei] (PDF) . Trudy – Sovmestnaya Sovetsko-Mongol'skaya Paleontologicheskaya Ekspeditsiya (auf Russisch). 8 . Übersetzt von Siskron, C.; Welles, SP: 45–55 . Archiviert (PDF) vom Original am 28.11.2012 . Abgerufen am 18.10.2016 .
- ^ Barsbold, R.; Perle, A. (1979). „Modiphikatsiy tasa sayrisziy i parallelinoe rasvitie zishchnich dinosavrov. MODIFICATION IN THE SAURISCHIAN PELVIS AND THE PARALLEL DEVELOPMENT OF PREDATORY DINOSAURS“. Transactions of the Joint Soviet Mongolian Paleontological Expedition . 8 : 39–44 .
- ^ ein b Barsbold, R.; Perle, A. (1980). „Segnosauria, eine neue Infraordnung fleischfressender Dinosaurier“ (PDF) . Acta Palaeontologica Polonica . 25 (2): 190–192 .
- ^ Altangerel Perle (1981). „Noviy segnozavrid iz verchnego mela Mongolii“. Trudy – Sovmestnaya Sovetsko-Mongol'skaya Paleontologicheskaya Ekspeditsiya . 15 : 50–59 .
- Perle , A. (1982). „Ein Hinterbein von Therizinosaurus aus der Oberkreide der Mongolei“. Probleme der mongolischen Geologie (in Russisch). 5 : 94–98 .Übersetztes Dokument
- ^ Lee, YN; Barsbold, R. ; Currie, PJ ; Kobayashi, Y.; Lee, HJ; Godefroit, P. ; Escuillié, FO; Chinzorig, T. (2014). „Lösung der seit langem bestehenden Rätsel eines riesigen Ornithomimosauriers Deinocheirus mirificus “. Natur . 515 (7526): 257–260 . Bibcode : 2014Natur.515..257L . doi : 10.1038/nature13874 . PMID 25337880 . S2CID 2986017 .
- ^ Barsbold, R. (1983). „Хищные динозавры мела Монголии“ [Fleischfressende Dinosaurier aus der Kreidezeit der Mongolei] (PDF) . Transaktionen der Gemeinsamen sowjetisch-mongolischen paläontologischen Expedition (auf Russisch). 19:89 .Übersetztes Dokument
- ^ Barsbold, R. (1983). „O ptich'ikh chertakh v stroyenii khishchnykh dinozavrov“ [Vogelmerkmale in der Morphologie von Raubdinosauriern]. Transaktionen der Gemeinsamen Sowjetischen Mongolischen Paläontologischen Expedition (auf Russisch). 24 : 96–103 .Übersetztes Dokument
- ^ Paul, GS (1984). „Die Segnosaurier: Relikte des Übergangs von Prosauropoden zu Ornithischiern?“. Journal of Vertebrate Paleontology . 4 (4): 507–515 . Bibcode : 1984JVPal...4..507P . doi : 10.1080/02724634.1984.10012026 . ISSN 0272-4634 . JSTOR 4523011 .
- Norman, D. B. (1985). „Dromaeosauriden“. In: Die illustrierte Enzyklopädie der Dinosaurier: Ein origineller und fesselnder Einblick in das Leben im Dinosaurierreich . New York: Crescent Books. S. 52–53 . ISBN 978-0-517-46890-6Die
- ^ Paul, GS (1988). Raubtiere der Dinosaurier der Welt . New York: Simon & Schuster. S. 185, 283. ISBN 978-0-671-61946-6Die
- ^ Gauthier, J. (1986). „Die Monophylie der Saurischier und der Ursprung der Vögel“ . Memoirs of the California Academy of Sciences . 8 : 45. Archiviert vom Original am 16.08.2019 . Abgerufen am 03.12.2019 .
- ^ Sereno, P. (1989). „Monophylie der Prosauropoden und Phylogenie der basalen Sauropodomorpha“. Abstract der Beiträge. 49. Jahrestagung der Society of Vertebrate Paleontology . Journal of Vertebrate Paleontology . Band 9, Nr. 3 Supplement. S. 39A. ISSN 0272-4634 . JSTOR 4523276 .
- ^ Barsbold, R. (1990). „Saurischia Sedis Mutabilis: Segnosauria“. In: Weishampel, D. B.; Osmolska, H.; Dodson, P. (Hrsg.). The Dinosauria (1. Aufl.). Berkeley: University of California Press. S. 408–415 . ISBN 978-0-520-06727-1Die
- Russell , D. A .; Dong, Z.-M. (1993). „Die Verwandtschaft eines neuen Theropoden aus der Alxa - Wüste, Innere Mongolei, Volksrepublik China“. Canadian Journal of Earth Sciences . 30 (10): 2107–2127 . Bibcode : 1993CaJES..30.2107R . doi : 10.1139/e93-183 .
- Russell , D. A. (1997). „Therizinosauria“. In: Currie, Philip J.; Padian, Kevin (Hrsg.). Encyclopedia of Dinosaurs . San Diego: Academic Press. S. 729–730 . ISBN 978-0-12-226810-6Die
- ^ a b Clark, JM; Perle, A.; Norell, M. (1994). „Der Schädel von Erlicosaurus andrewsi, einem spätkretazischen „Segnosaurier“ (Theropoda, Therizinosauridae) aus der Mongolei“. American Museum Novitates (3115): 1– 39. hdl : 2246/3712 .
- ^ Nessov, L. A., 1995, Dinosaurier Nordeurasiens: Neue Daten zu Vergesellschaftungen, Ökologie und Paläobiogeographie. Sankt Petersburg
- Holtz , TR (1996). „Phylogenetische Taxonomie der Coelurosauria (Dinosauria: Theropoda)“. Journal of Paleontology . 70 (3): 536–538 . Bibcode : 1996JPal...70..536H . doi : 10.1017/ S0022336000038506 . ISSN 0022-3360 . JSTOR 1306452. S2CID 87599102 .
- Xu , X.; Tang, Z.; Wang , X. (1999). „Ein Therizinosaurier mit Hautstrukturen aus China“. Nature . 399 (6734): 350–354 . Bibcode : 1999Natur.399..350X . doi : 10.1038 /20670 . S2CID 204993327 .
- ^ Sereno, Paul C. (1999). „Die Evolution der Dinosaurier“ . Science . 284 (5423): 2137–2147 . doi : 10.1126/science.284.5423.2137 . PMID 10381873 .
- ^ a b Kirkland, James I.; Wolfe, Douglas G. (2001). „Erster definitiver Therizinosaurider (Dinosauria; Theropoda) aus Nordamerika“. Journal of Vertebrate Paleontology . 21 (3): 410–414 . doi : 10.1671/0272-4634(2001)021[0410:FDTDTF]2.0.CO;2 . ISSN 0272-4634 . JSTOR 20061971. S2CID 85705529 .
- ^ Zhang, X.-H.; Xu, X.; Zhao, Z.-J.; Sereno, PC; Kuang, X.-W.; Tan, L. (2001). „Ein langhalsiger Therizinosaurier aus der oberkretazischen Iren-Dabasu-Formation der Inneren Mongolei, Volksrepublik China“ (PDF) . Vertebrata PalAsiatica . 39 (4): 282–290 .
- Kirkland , JI; Zanno, LE; Sampson, SD; Clark, JM; DeBlieux, DD (2005). „Ein primitiver Therizinosaurier aus der frühen Kreidezeit von Utah“ ( PDF) . Nature . 435 (7038): 84–87 . Bibcode : 2005Natur.435...84K . doi : 10.1038/nature03468 . PMID 15875020. S2CID 4428196 .
- ^ Turner, AH; Pol, D; Clarke, JA; Erickson, GM; Norell, MA (2007). „Ein basaler Dromaeosaurier und die Größenentwicklung vor dem Vogelflug“ . Science . 317 (5843): 1378–1381 . Bibcode : 2007Sci...317.1378T . doi : 10.1126/science.1144066 . PMID 17823350 .
- ^ Zanno, LE; Gillette, DD; Albright, LB; Titus, AL (2009). „Ein neuer nordamerikanischer Therizinosaurier und die Rolle der Pflanzenfresserei in der Evolution ‚räuberischer‘ Dinosaurier“ . Proceedings : Biological Sciences . 276 (1672): 3505–3511 . doi : 10.1098/rspb.2009.1029 . ISSN 0962-8452 . JSTOR 30244145. PMC 2817200. PMID 19605396 .
- Zanno , LE (2010). „Eine taxonomische und phylogenetische Neubewertung der Therizinosauria (Dinosauria: Maniraptora)“. Journal of Systematic Palaeontology . 8 ( 4 ): 503–543 . Bibcode : 2010JSPal...8..503Z . doi : 10.1080 / 14772019.2010.488045 . S2CID 53405097 .
- ^ a b Dong, Z. (1979). „Kreidezeitliche Dinosaurierfossilien in Südchina“. In: Institut für Wirbeltierpaläontologie und Paläoanthropologie; Nanjing Institut für Paläontologie (Hrsg.). Mesozoische und känozoische Rotsedimente in Südchina (in Chinesisch). Peking: Science Press. S. 342–350 .Übersetztes Dokument
- ^ Barsbold, R.; Maryańska, T. (1990). „Saurischia Sedis Mutabilis: Segnosauria“. In: Weishampel, D. B.; Osmolska, H.; Dodson, P. (Hrsg.). The Dinosauria (1. Aufl.). Berkeley: University of California Press. S. 408–415. ISBN 978-0-520-06727-1Die
- ^ Glut, 1997. Dinosaurier - Die Enzyklopädie. McFarland Press. 1076 S.
- ^ Qian , M. -P.; Zhang, Z.-Y.; Jiang, Y.; Jiang, Y.-G.; Zhang, Y.-J.; Chen, R.; Xing, G.-F. (2012). „浙江白垩纪镰刀龙类恐龙“ [Kreidezeitliche Therizinosaurier in Zhejiang im Osten Chinas]. Zeitschrift für Geologie (auf Chinesisch). 36 (4): 337–348.
- Hartman , S.; Mortimer, M.; Wahl, WR; Lomax, DR; Lippincott, J.; Lovelace, DM (2019). „ Ein neuer paravianer Dinosaurier aus dem späten Jura Nordamerikas unterstützt die These eines späten Erwerbs des Vogelflugs“ . PeerJ . 7 e7247 . doi : 10.7717/peerj.7247 . PMC 6626525. PMID 31333906 .
- ^ Dong, Z.; You, H. (1997). „Ein neuer Segnosaurier aus dem Mazhongshan-Gebiet, Provinz Gansu, China“. In: Dong, ZM (Hrsg.). Chinesisch-Japanische Seidenstraßen-Dinosaurier-Expedition . Peking: China Ocean Press. S. 90–95.
- ^ Li, D.; Peng, C.; You, H.; Lamanna, MC; Harris, JD; Lacovara, KJ; Zhang, J. (2007). „Ein großer Therizinosauroide (Dinosauria: Theropoda) aus der Unterkreide Nordwestchinas“ . Acta Geologica Sinica (Englische Ausgabe) . 81 (4): 539–549. Bibcode : 2007AcGlS..81..539L . doi : 10.1111/j.1755-6724.2007.tb00977.x . ISSN 1000-9515 . S2CID 130262869 .
- ^ Zhao, X.; Xu, X. (1998). „Der älteste Coelurosaurier“. Nature . 394 (6690): 234–235. Bibcode : 1998Natur.394..234Z . doi : 10.1038/28300 . S2CID 4424059 .
- Xu , X.; Zhao, X.; Clark, JM (2001). „Ein neuer Therizinosaurier aus der unterjurassischen unteren Lufeng-Formation von Yunnan, China“. Journal of Vertebrate Paleontology . 21 (3): 477–483. doi : 10.1671 / 0272-4634(2001)021[0477:ANTFTL]2.0.CO;2 . JSTOR 20061976. S2CID 131298010 .
- ^ Barrett, PM (2009). „Die Verwandtschaftsverhältnisse des rätselhaften Dinosauriers Eshanosaurus deguchiianus aus dem Unterjura der Provinz Yunnan, Volksrepublik China“. Palaeontology . 52 (4): 681–688. Bibcode : 2009Palgy..52..681B . doi : 10.1111/j.1475-4983.2009.00887.x . S2CID 129151707 .
- ^ a b Pu, H.; Kobayashi, Y.; Lü, J.; Xu, L.; Wu, Y.; Chang, H.; Zhang, J.; Jia, S. (2013). „Ein ungewöhnlicher basaler Therizinosaurier mit ornithischischer Zahnanordnung aus Nordostchina“ . PLOS ONE . 8 (5) e63423. Bibcode : 2013PLoSO...863423P . doi : 10.1371/ journal.pone.0063423 . PMC 3667168. PMID 23734177 .
- ^ Holtz, TR; Rey, LV (2007). Dinosaurier: Die umfassendste und aktuellste Enzyklopädie für Dinosaurier-Fans jeden Alters . Random House. ISBN 978-0-375-82419-7DieGattungsliste für Holtz 2012 Gewichtsinformationen
- ^ a b Paul, GS (2016). The Princeton Field Guide to Dinosaurs (2. Aufl.). Princeton, New Jersey: Princeton University Press. S. 162–168 . ISBN 978-0-691-16766-4Die
- ^ Burch, SH (2006). „Der Bewegungsumfang des Glenohumeralgelenks des Therizinosauriers Neimongosaurus yangi (Dinosauria: Theropoda)“ . Journal of Vertebrate Paleontology . 26 (Suppl. 3): 46A. doi : 10.1080/02724634.2006.10010069 . S2CID 220413406 .
- Xu , X.; Zheng, X.; You, HL (2009). „Ein neuer Federtyp bei einem nicht-aviären Theropoden und die frühe Evolution der Federn“ . Proceedings of the National Academy of Sciences . 106 (3): 832–4 . Bibcode : 2009PNAS..106..832X . doi : 10.1073 / pnas.0810055106 . PMC 2630069. PMID 19139401 .
- ^ Dong, Z. (1992). Dinosaurierfaunen Chinas . Peking: China Ocean Press. S. 187. ISBN 3-540-52084-8Die
- ^ a b Russell, DA (1997). „Therizinosauria“. In: Currie, PJ; Padian, K. (Hrsg.). Encyclopedia of Dinosaurs . San Diego: Academic Press. S. 729–730. ISBN 978-0-12-226810-6Die
- ^ Senter, P.; Kirkland, JI; Deblieux, DD (2012). „Martharaptor greenriverensis, ein neuer Theropode aus der Unterkreide von Utah“ . PLOS ONE . 7 (8) e43911. Bibcode : 2012PLoSO...743911S . doi : 10.1371/journal.pone.0043911 . PMC 3430620. PMID 22952806 .
- ^ a b Sereno, PC 2005. Stamm Archosauria—TaxonSearch Archiviert 2009-01-15 bei der Wayback Machine [Version 1.0, 7. November 2005]
- ^ Clark, JM, Maryanska, T. und Barsbold, R. (2004). „Therizinosauroidea.“ S. 151–164 in: Weishampel, DB, Dodson, P. und Osmólska, H. (Hrsg.). The Dinosauria , Zweite Auflage. University of California Press, 861 S.
- ^ Zanno, LE; Gillette, DD; Albright, LB; Titus, AL (2009). „Ein neuer nordamerikanischer Therizinosaurier und die Rolle der Pflanzenfresserei in der Evolution räuberischer Dinosaurier“ . Proceedings of the Royal Society B. 276 ( 1672): 3505–3511. doi : 10.1098 / rspb.2009.1029 . JSTOR 30244145. PMC 2817200. PMID 19605396 .
- ^ Senter, P. (2007). „Ein neuer Blick auf die Phylogenie der Coelurosauria (Dinosauria: Theropoda)“. Journal of Systematic Palaeontology . 5 (4): 429–463 . Bibcode : 2007JSPal...5..429S . doi : 10.1017/S1477201907002143 . S2CID 83726237 .
- ^ Lautenschlager, S.; Emily, JR; Perle, A.; Lindsay, EZ; Lawrence, MW (2012). „Die endokraniale Anatomie der Therizinosaurier und ihre Bedeutung für sensorische und kognitive Funktionen“ . PLOS ONE . 7 (12) e52289. Bibcode : 2012PLoSO...752289L . doi : 10.1371/ journal.pone.0052289 . PMC 3526574. PMID 23284972 .
- ^ Kundrát, M.; Cruickshank, ARI; Manning, TW; Nudds, J. (2007). „Embryonen von Therizinosauroiden aus der Oberkreide Chinas: Diagnose und Analyse der Ossifikationsmuster“. Acta Zoologica . 89 (3): 231–251 . doi : 10.1111/j.1463-6395.2007.00311.x .
- ^ Clark, JM; Maryańska, T.; Barsbold, R. (2004). „Therizinosauroidea“. In: Weishampel, DB; Dodson, P.; Osmolska, H. (Hrsg.). The Dinosauria (2. Aufl.). Berkeley: University of California Press. S. 151–164 . ISBN 978-0-520-24209-8Die
- ^ „Erster Nachweis einer Dinosaurier-Nistkolonie aus der Mongolei enthüllt das Nistverhalten von Therizinosauriern“ . Universität Hokkaido . 2013.