
Zelloberflächenrezeptoren ( Membranrezeptoren , Transmembranrezeptoren ) sind Rezeptoren , die in die Plasmamembran von Zellen eingebettet sind . [ 1 ] Sie sind an der Zellsignalisierung beteiligt, indem sie extrazelluläre Moleküle binden . Es handelt sich um spezialisierte integrale Membranproteine , die die Kommunikation zwischen der Zelle und dem extrazellulären Raum ermöglichen . Bei den extrazellulären Molekülen kann es sich um Hormone , Neurotransmitter , Zytokine , Wachstumsfaktoren , Zelladhäsionsmoleküle oder Nährstoffe handeln ; sie reagieren mit dem Rezeptor und induzieren so Veränderungen im Stoffwechsel und der Aktivität der Zelle. Im Prozess der Signaltransduktion bewirkt die Ligandenbindung eine Kaskade chemischer Reaktionen durch die Zellmembran.
Struktur und Mechanismus
Viele Membranrezeptoren sind Transmembranproteine . Es gibt verschiedene Arten, darunter Glykoproteine und Lipoproteine . [ 2 ] Hunderte verschiedener Rezeptoren sind bekannt, und viele weitere sind noch unerforscht. [ 3 ] [ 4 ] Transmembranrezeptoren werden typischerweise anhand ihrer Tertiärstruktur (dreidimensionalen Struktur) klassifiziert. Ist die dreidimensionale Struktur unbekannt, erfolgt die Klassifizierung anhand der Membrantopologie . Bei den einfachsten Rezeptoren durchqueren Polypeptidketten die Lipiddoppelschicht einmal, während andere, wie beispielsweise G-Protein-gekoppelte Rezeptoren , diese bis zu sieben Mal durchqueren. Jede Zellmembran kann mehrere Arten von Membranrezeptoren mit unterschiedlicher Oberflächenverteilung aufweisen. Ein einzelner Rezeptor kann je nach Membrantyp und Zellfunktion an verschiedenen Membranpositionen unterschiedlich verteilt sein. Rezeptoren sind häufig eher auf der Membranoberfläche gehäuft als gleichmäßig verteilt. [ 5 ] [ 6 ]
Mechanismus
Zur Erklärung des Wirkungsmechanismus von Transmembranrezeptoren wurden zwei Modelle vorgeschlagen.
- Dimerisierung : Das Dimerisierungsmodell geht davon aus, dass Rezeptoren vor der Ligandenbindung in monomerer Form vorliegen. Bei der Agonistenbindung verbinden sich die Monomere zu einem aktiven Dimer .
- Rotation : Die Ligandenbindung an den extrazellulären Teil des Rezeptors induziert eine Rotation (Konformationsänderung) eines Teils der Transmembranhelices des Rezeptors. Durch die Rotation ändert sich, welche Teile des Rezeptors auf der intrazellulären Seite der Membran exponiert sind, wodurch sich die Interaktion des Rezeptors mit anderen Proteinen innerhalb der Zelle verändert. [ 7 ]
Domänen
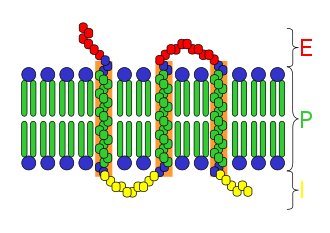
Transmembranrezeptoren in der Plasmamembran lassen sich üblicherweise in drei Teile unterteilen.
Extrazelluläre Domänen
Die extrazelluläre Domäne befindet sich außerhalb der Zelle oder des Organells . Durchquert die Polypeptidkette die Lipiddoppelschicht mehrmals, besteht die extrazelluläre Domäne aus Schleifen, die sich durch die Membran winden. Definitionsgemäß besteht die Hauptfunktion eines Rezeptors darin, einen bestimmten Liganden zu erkennen und darauf zu reagieren. Beispielsweise können Neurotransmitter , Hormone oder Ionen jeweils als Liganden an die extrazelluläre Domäne binden. Klotho ist ein Enzym, das einen Rezeptor zur Erkennung des Liganden ( FGF23 ) veranlasst .
Transmembrandomänen
Die beiden häufigsten Klassen von Transmembranrezeptoren sind G-Protein-gekoppelte Rezeptoren (GPCR) und Einzelpass-Transmembranproteine . [ 8 ] [ 9 ] Bei einigen Rezeptoren, wie dem nikotinischen Acetylcholinrezeptor , bildet die Transmembrandomäne eine Proteinpore durch die Membran oder um den Ionenkanal herum . Nach Aktivierung einer extrazellulären Domäne durch Bindung des entsprechenden Liganden wird die Pore für Ionen zugänglich, die dann diffundieren. Bei anderen Rezeptoren erfahren die Transmembrandomänen bei der Bindung eine Konformationsänderung, die intrazelluläre Bedingungen beeinflusst. Bei einigen Rezeptoren, wie beispielsweise Mitgliedern der 7TM-Superfamilie , enthält die Transmembrandomäne eine Ligandenbindungstasche.
Intrazelluläre Domänen
Die intrazelluläre (oder zytoplasmatische ) Domäne des Rezeptors interagiert mit dem Zellinneren oder dem Inneren des Organells und leitet das Signal weiter. Es gibt zwei grundlegende Wege für diese Interaktion:
- Die intrazelluläre Domäne kommuniziert über Protein-Protein-Interaktionen mit Effektorproteinen , die ihrerseits ein Signal an das Ziel weiterleiten.
- Bei enzymgekoppelten Rezeptoren besitzt die intrazelluläre Domäne enzymatische Aktivität . Häufig handelt es sich dabei um Tyrosinkinase- Aktivität. Die enzymatische Aktivität kann aber auch von einem mit der intrazellulären Domäne assoziierten Enzym herrühren.
Signalübertragung

Signaltransduktionsprozesse über Membranrezeptoren umfassen die externen Reaktionen, bei denen der Ligand an einen Membranrezeptor bindet, und die internen Reaktionen, bei denen eine intrazelluläre Antwort ausgelöst wird. [ 10 ] [ 11 ]
Die Signalübertragung durch Membranrezeptoren erfordert vier Teile:
- Extrazelluläres Signalmolekül: Ein extrazelluläres Signalmolekül wird von einer Zelle produziert und ist zumindest in der Lage, zu benachbarten Zellen zu gelangen.
- Rezeptorprotein: Zellen müssen über Zelloberflächenrezeptorproteine verfügen, die an das Signalmolekül binden und die Kommunikation nach innen in die Zelle ermöglichen.
- Intrazelluläre Signalproteine: Diese leiten das Signal an die Organellen der Zelle weiter. Die Bindung des Signalmoleküls an das Rezeptorprotein aktiviert intrazelluläre Signalproteine, die eine Signalkaskade auslösen.
- Zielproteine: Die Konformationen oder andere Eigenschaften der Zielproteine werden verändert, wenn ein Signalweg aktiv ist, und verändern das Verhalten der Zelle. [ 11 ]

Membranrezeptoren werden hauptsächlich anhand ihrer Struktur und Funktion in 3 Klassen unterteilt: den Ionenkanal-gekoppelten Rezeptor , den Enzym-gekoppelten Rezeptor und den G-Protein-gekoppelten Rezeptor .
- Ionenkanal-gekoppelte Rezeptoren besitzen Ionenkanäle für Anionen und Kationen und bilden eine große Familie von mehrfach transmembranären Proteinen. Sie sind an schnellen Signalprozessen beteiligt, die typischerweise in elektrisch aktiven Zellen wie Neuronen vorkommen . Sie werden auch als ligandengesteuerte Ionenkanäle bezeichnet . Das Öffnen und Schließen der Ionenkanäle wird durch Neurotransmitter reguliert .
- Enzymgekoppelte Rezeptoren sind entweder selbst Enzyme oder aktivieren direkt assoziierte Enzyme. Typischerweise handelt es sich um Einzelpass-Transmembranrezeptoren, wobei die enzymatische Komponente des Rezeptors intrazellulär lokalisiert ist. Die meisten enzymgekoppelten Rezeptoren sind Proteinkinasen oder interagieren mit ihnen.
- G-Protein-gekoppelte Rezeptoren sind integrale Membranproteine mit sieben Transmembranhelices. Diese Rezeptoren aktivieren nach Agonistenbindung ein G-Protein , welches wiederum die Rezeptorwirkung auf intrazelluläre Signalwege vermittelt.
Ionenkanal-gekoppelter Rezeptor
Bei der Signaltransduktion in einem Neuron bindet der Neurotransmitter an den Rezeptor und verändert dessen Konformation. Dadurch öffnet sich der Ionenkanal, wodurch extrazelluläre Ionen in die Zelle gelangen. Die Ionenpermeabilität der Plasmamembran ändert sich, was das extrazelluläre chemische Signal in ein intrazelluläres elektrisches Signal umwandelt und somit die Erregbarkeit der Zelle beeinflusst . [ 12 ]
Der Acetylcholinrezeptor ist ein an einen Kationenkanal gekoppelter Rezeptor. Das Protein besteht aus vier Untereinheiten: Alpha (α), Beta (β), Gamma (γ) und Delta (δ). Es gibt zwei α-Untereinheiten mit jeweils einer Acetylcholin- Bindungsstelle. Dieser Rezeptor kann in drei Konformationen vorliegen. Der geschlossene und unbesetzte Zustand ist die native Proteinkonformation. Binden zwei Acetylcholinmoleküle an die Bindungsstellen der α-Untereinheiten, ändert sich die Konformation des Rezeptors, der Kanal öffnet sich und ermöglicht den Eintritt zahlreicher Ionen und kleiner Moleküle. Dieser offene und besetzte Zustand ist jedoch nur von kurzer Dauer; anschließend schließt sich der Kanal wieder und der Rezeptor kehrt in den geschlossenen und besetzten Zustand zurück. Die beiden Acetylcholinmoleküle dissoziieren bald darauf vom Rezeptor und dieser nimmt wieder den nativen, geschlossenen und unbesetzten Zustand an. [ 13 ] [ 14 ]
Enzymgekoppelte Rezeptoren

Stand 2009 sind sechs Typen von enzymgekoppelten Rezeptoren bekannt : Rezeptor -Tyrosinkinasen , Tyrosinkinase-assoziierte Rezeptoren, Rezeptor-ähnliche Tyrosinphosphatasen , Rezeptor- Serin / Threonin- Kinasen , Rezeptor- Guanylylcyclasen und Histidinkinase -assoziierte Rezeptoren. Rezeptor-Tyrosinkinasen bilden die größte Gruppe und finden die breiteste Anwendung. Die meisten dieser Moleküle sind Rezeptoren für Wachstumsfaktoren wie den epidermalen Wachstumsfaktor (EGF), den vom Blutplättchen stammenden Wachstumsfaktor (PDGF), den Fibroblasten-Wachstumsfaktor (FGF), den Hepatozyten-Wachstumsfaktor (HGF) und den Nervenwachstumsfaktor (NGF) sowie für Hormone wie Insulin . Die meisten dieser Rezeptoren dimerisieren nach der Bindung ihrer Liganden, um weitere Signaltransduktionsprozesse zu aktivieren. Nachdem beispielsweise der epidermale Wachstumsfaktor -Rezeptor (EGFR) an seinen Liganden EGF gebunden hat, dimerisieren die beiden Rezeptoren und werden anschließend an den Tyrosinresten im enzymatischen Teil jedes Rezeptormoleküls phosphoryliert . Dies aktiviert die Tyrosinkinase und katalysiert weitere intrazelluläre Reaktionen.
G-Protein-gekoppelte Rezeptoren
G-Protein-gekoppelte Rezeptoren bilden eine große Familie von Transmembranrezeptoren . Sie kommen ausschließlich in Eukaryoten vor . [ 15 ] Zu den Liganden , die an diese Rezeptoren binden und sie aktivieren, gehören: lichtempfindliche Verbindungen, Duftstoffe , Pheromone , Hormone und Neurotransmitter . Diese variieren in ihrer Größe von kleinen Molekülen über Peptide bis hin zu großen Proteinen . G-Protein-gekoppelte Rezeptoren sind an vielen Krankheiten beteiligt und daher Zielstrukturen zahlreicher moderner Medikamente. [ 16 ]
Es gibt zwei Hauptsignalwege, die G-Protein-gekoppelte Rezeptoren einbeziehen: den cAMP -Signalweg und den Phosphatidylinositol -Signalweg. [ 17 ] Beide werden durch die Aktivierung des G-Proteins vermittelt . Das G-Protein ist ein trimeres Protein mit drei Untereinheiten, α, β und γ. Bei Rezeptoraktivierung gibt die α-Untereinheit gebundenes Guanosindiphosphat (GDP) ab, welches durch Guanosintriphosphat (GTP) verdrängt wird . Dadurch wird die α-Untereinheit aktiviert und dissoziiert von den β- und γ-Untereinheiten. Die aktivierte α-Untereinheit kann intrazelluläre Signalproteine beeinflussen oder direkt auf funktionelle Proteine einwirken.
Membranrezeptor-bedingte Erkrankung
Sind Membranrezeptoren denaturiert oder defekt, kann die Signaltransduktion beeinträchtigt werden und Krankheiten verursachen. Einige Krankheiten beruhen auf Funktionsstörungen von Membranrezeptoren. Dies ist auf einen Mangel oder Abbau des Rezeptors zurückzuführen, bedingt durch Veränderungen der Gene, die das Rezeptorprotein kodieren und regulieren. Der Membranrezeptor TM4SF5 beeinflusst die Migration von Leberzellen und Leberzellkarzinomen [ 18 ] . Auch der kortikale NMDA-Rezeptor beeinflusst die Membranfluidität und ist bei Alzheimer verändert [ 19 ] . Wird eine Zelle von einem nicht-umhüllten Virus infiziert, bindet das Virus zunächst an spezifische Membranrezeptoren und gelangt dann selbst oder eine subvirale Komponente auf die zytoplasmatische Seite der Zellmembran. Im Falle des Poliovirus ist in vitro bekannt, dass die Interaktion mit Rezeptoren Konformationsänderungen hervorruft, die zur Freisetzung des Virionproteins VP4 führen. Der N-Terminus von VP4 ist myristyliert und somit hydrophob ( Myristinsäure = CH₃ ( CH₂ ) ₁₂COOH ) . Es wird angenommen, dass die durch die Rezeptorbindung induzierten Konformationsänderungen zur Anlagerung von Myristinsäure an VP4 und zur Bildung eines Kanals für RNA führen.
Strukturorientiertes Wirkstoffdesign

Durch Methoden wie Röntgenkristallographie und NMR-Spektroskopie hat sich das Wissen über die 3D-Strukturen von Zielmolekülen und damit auch über die Strukturinformationen ihrer Liganden drastisch erweitert. Dies treibt die rasante Entwicklung des strukturorientierten Wirkstoffdesigns voran . Einige dieser neuen Wirkstoffe zielen auf Membranrezeptoren ab. Aktuelle Ansätze des strukturorientierten Wirkstoffdesigns lassen sich in zwei Kategorien einteilen. Die erste Kategorie befasst sich mit der Bestimmung von Liganden für einen bestimmten Rezeptor. Dies geschieht üblicherweise durch Datenbankabfragen, biophysikalische Simulationen und den Aufbau chemischer Bibliotheken. In jedem Fall wird eine große Anzahl potenzieller Ligandenmoleküle gescreent, um diejenigen zu finden, die in die Bindungstasche des Rezeptors passen. Dieser Ansatz wird üblicherweise als ligandenbasiertes Wirkstoffdesign bezeichnet. Der entscheidende Vorteil der Datenbanksuche liegt in der Zeit- und Energieersparnis bei der Gewinnung neuer wirksamer Verbindungen. Ein weiterer Ansatz des strukturorientierten Wirkstoffdesigns ist die kombinatorische Zuordnung von Liganden, das sogenannte rezeptorbasierte Wirkstoffdesign. Hierbei werden Ligandenmoleküle schrittweise aus kleinen Bausteinen zusammengesetzt und so innerhalb der Grenzen einer Bindungstasche konstruiert. Diese Bausteine können entweder Atome oder Moleküle sein. Der entscheidende Vorteil dieser Methode liegt darin, dass neuartige Strukturen entdeckt werden können. [ 20 ] [ 21 ] [ 22 ]
Weitere Beispiele
- Adrenerger Rezeptor
- Geruchsrezeptoren
- Rezeptor-Tyrosinkinasen
- Epidermaler Wachstumsfaktorrezeptor
- Insulinrezeptor
- Fibroblasten-Wachstumsfaktor-Rezeptoren ,
- Hochaffine Neurotrophinrezeptoren
- Ephrin-Rezeptoren
- Integrine
- Nervenwachstumsfaktor-Rezeptor mit niedriger Affinität
- NMDA-Rezeptor
- Mehrere Immunrezeptoren
Siehe auch
Referenzen
- ^ „9.3: Signalmoleküle und zelluläre Rezeptoren – Rezeptortypen“ . Biology LibreTexts . 12. Juli 2018. Abgerufen am 24. Juli 2023 .
- ^ Cuatrecasas P. (1974). „Membranrezeptoren“. Annual Review of Biochemistry . 43 : 169–214 . doi : 10.1146/annurev.bi.43.070174.001125 . PMID 4368906. S2CID 44727052 .
- ^ Dautzenberg FM, Hauger RL (Februar 2002). „Die CRF-Peptidfamilie und ihre Rezeptoren: Weitere Partner entdeckt“. Trends Pharmacol. Sci. 23 (2): 71–77 . doi : 10.1016/S0165-6147(02)01946-6 . PMID 11830263 .
- ^ Rivière S, Challet L, Fluegge D, Spehr M, Rodriguez I (Mai 2009). „Formylpeptidrezeptor-ähnliche Proteine sind eine neue Familie von Vomeronasal-Chemosensoren“. Nature . 459 (7246): 574–7 . Bibcode : 2009Natur.459..574R . doi : 10.1038/nature08029 . PMID 19387439 .
- Rothberg KG; Ying YS; Kamen BA; Anderson RG (1990). „Cholesterin steuert die Clusterbildung des Glycophospholipid-verankerten Membranrezeptors für 5-Methyltetrahydrofolat“ . The Journal of Cell Biology . 111 (6): 2931–2938 . doi : 10.1083/jcb.111.6.2931 . PMC 2116385. PMID 2148564 .
- ^ Jacobson C.; Côté PD; Rossi SG; Rotundo RL; Carbonetto S. (2001). „Der Dystroglykan-Komplex ist notwendig für die Stabilisierung von Acetylcholinrezeptor-Clustern an neuromuskulären Verbindungen und die Bildung der synaptischen Basalmembran“ . The Journal of Cell Biology . 152 (3): 435–450 . doi : 10.1083/jcb.152.3.435 . PMC 2195998. PMID 11157973 .
- ^ Maruyama, Ichiro N. (01.09.2015). „Aktivierung von Transmembran-Zelloberflächenrezeptoren über einen gemeinsamen Mechanismus? Das „Rotationsmodell““" . BioEssays . 37 (9): 959– 967. doi : 10.1002/bies.201500041 . ISSN 1521-1878 . PMC 5054922 . PMID 26241732 .
- ^ Superfamilien von Einzelpass-Transmembranrezeptoren in der Membranome-Datenbank
- ^ Superfamilien von Einzelpass-Transmembranproteinliganden und Regulatoren von Rezeptoren in der Membranome-Datenbank
- ^ Ullricha A., Schlessingerb J.; Schlessinger, J (1990). „Signaltransduktion durch Rezeptoren mit Tyrosinkinaseaktivität“. Cell . 61 (2): 203–212 . doi : 10.1016/0092-8674(90)90801-K . PMID 2158859 .
- ^ a b Kenneth B. Storey (1990). Funktioneller Stoffwechsel . Wiley-IEEE. S. 87–94 . ISBN 978-0-471-41090-4Die
- ^ Hille B. (2001). Ionenkanäle erregbarer Membranen . Sunderland, Mass. ISBN 978-0-87893-321-1Die
- ^ Miyazawa A.; Fujiyoshi Y.; Unwin N. (2003). „Struktur und Öffnungsmechanismus der Acetylcholinrezeptorpore“. Nature . 423 (6943): 949–955 . Bibcode : 2003Natur.423..949M . doi : 10.1038/nature01748 . PMID 12827192 .
- Akabas MH; Stauffer DA; Xu M; Karlin A. (1992). „Untersuchung der Acetylcholinrezeptor-Kanalstruktur in Cystein-Substitutionsmutanten“. Science . 258 (5080): 307–310 . Bibcode : 1992Sci...258..307A . doi : 10.1126/science.1384130 . PMID 1384130 .
- ^ King N, Hittinger CT, Carroll SB (2003). „Die Evolution wichtiger Zellsignal- und Adhäsionsproteinfamilien geht den tierischen Ursprüngen voraus“. Science . 301 (5631): 361–363 . Bibcode : 2003Sci...301..361K . doi : 10.1126/science.1083853 . PMID 12869759 .
- ^ Filmore, David (2004). „It's a GPCR world“ . Modern Drug Discovery . 2004 (November): 24–28 .
- ^ Gilman AG (1987). „G-Proteine: Transduktoren rezeptorgenerierter Signale“. Annual Review of Biochemistry . 56 : 615–649 . doi : 10.1146/annurev.bi.56.070187.003151 . PMID 3113327. S2CID 33992382 .
- ^ Müller-Pillascha F.; Wallrappa C.; Lachera U.; Friessb H.; Büchlerb M.; Adlera G.; Gress TM (1998). „Identifizierung eines neuen tumorassoziierten Antigens TM4SF5 und seine Expression bei menschlichem Krebs“. Gen. 208 (1): 25–30 . doi : 10.1016/S0378-1119(97)00633-1 . PMID 9479038 .
- ^ Scheuer K.; Marasb A.; Gattazb WF; Cairnsc N.; Förstlb H.; Müller WE (1996). „Cortical NMDA Receptor Properties and Membrane Fluidity Are Altered in Alzheimer's Disease“. Dementia . 7 (4): 210–214 . doi : 10.1159/000106881 . PMID 8835885 .
- ^ Wang R.; Gao Y.; Lai L. (2000). „LigBuilder: Ein Mehrzweckprogramm für strukturorientiertes Wirkstoffdesign“. Journal of Molecular Modeling . 6 ( 7–8 ): 498–516 . doi : 10.1007/s0089400060498 .
- ^ Schneider G.; Fechner U. (2005). „Computergestütztes De-novo-Design von arzneimittelähnlichen Molekülen“. Nature Reviews Drug Discovery . 4 (8): 649–663 . doi : 10.1038/nrd1799 . PMID 16056391 .
- ^ Jorgensen WL (2004). „ Die vielfältigen Rollen der Computergestützten Forschung in der Arzneimittelentwicklung“. Science . 303 (5665): 1813–1818 . Bibcode : 2004Sci...303.1813J . doi : 10.1126/science.1096361 . PMID 15031495. S2CID 1307935 .
Externe Links
- Die IUPHAR GPCR-Datenbank wurde am 23.03.2019 im Internetarchiv (Wayback Machine) archiviert .
- Zell-Oberflächen-Rezeptoren in den Medical Subject Headings (MeSH) der US National Library of Medicine