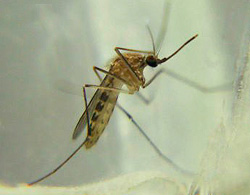
Der Anopheles-gambiae- Komplex umfasst mindestens sieben morphologisch nicht unterscheidbare Mückenarten der Gattung Anopheles . Der Komplex wurde in den 1960er Jahren beschrieben und beinhaltet die wichtigsten Überträger der Malaria in Subsahara-Afrika , insbesondere des gefährlichsten Malariaerregers Plasmodium falciparum . [ 2 ] Er zählt zu den effizientesten bekannten Malariaüberträgern . Die Anopheles-gambiae- Mücke überträgt zudem Wuchereria bancrofti , den Erreger der lymphatischen Filariose , deren Symptom unter anderem Elephantiasis ist . [ 3 ]
Entdeckung und Elemente
Der Anopheles-gambiae- Komplex bzw. Anopheles gambiae sensu lato wurde erst in den 1960er Jahren als Artenkomplex anerkannt. Der A.-gambiae -Komplex besteht aus: [ 4 ]
- Anopheles arabiensis Patton, 1905
- Anopheles bwambae White, 1985
- Anopheles melas Theobald, 1903
- Anopheles merus Dönitz, 1902
- Anopheles quadriannulatus (Theobald, 1911) [ 5 ] [ 6 ]
- Anopheles gambiae Giles, 1902 im engeren Sinne (ss) [ 7 ]
- Anopheles coluzzii Coetzee & Wilkerson in Coetzee et al., 2013
- Anopheles amharicus Hunt, Wilkerson & Coetzee in Coetzee et al., 2013
Die einzelnen Arten des Komplexes sind morphologisch schwer voneinander zu unterscheiden, obwohl dies bei Larven und adulten Weibchen möglich ist. Die Arten weisen unterschiedliche Verhaltensmerkmale auf. So ist beispielsweise Anopheles quadriannulatus sowohl eine Salzwasser- als auch eine Mineralwasserart. A. melas und A. merus sind Salzwasserarten, während die übrigen Süßwasserarten sind. [ 8 ] Anopheles quadriannulatus ernährt sich im Allgemeinen von Tieren ( zoophil ), wohingegen Anopheles gambiae sensu stricto sich in der Regel von Menschen ernährt und somit als anthropophil gilt . Die Identifizierung bis auf die Ebene der einzelnen Arten mithilfe der molekularen Methoden von Scott et al. (1993) [ 9 ] kann wichtige Auswirkungen auf nachfolgende Bekämpfungsmaßnahmen haben.
Anopheles gambiae im engeren Sinne
Es wurde festgestellt, dass sich An. gambiae sensu stricto (ss) derzeit in zwei verschiedene Arten aufspaltet – die Stämme Mopti (M) und Savannah (S) –, obwohl die beiden Stämme im Jahr 2007 noch als eine einzige Art betrachtet wurden. [ 10 ] [ 11 ]
Ein Mechanismus zur Artenerkennung mittels der von den Flügeln erzeugten und vom Johnston-Organ identifizierten Laute wurde 2010 vorgeschlagen [ 12 ] , jedoch konnte dieser Mechanismus seither nicht bestätigt werden, und die zugrundeliegende Theorie des Mechanismus durch „harmonische Konvergenz“ wurde in Frage gestellt. [ 13 ] [ 14 ]
Genom
Das Genom von An. gambiae ss wurde dreimal sequenziert: einmal für den M-Stamm, einmal für den S-Stamm und einmal für einen Hybridstamm. [ 10 ] [ 11 ] Aktuell wurden in der Literatur etwa 90 miRNAs für An. gambiae ss vorhergesagt (38 davon sind offiziell in miRBase gelistet), basierend auf konservierten Sequenzen von miRNAs aus Drosophila . Holt et al. (2002) und Neafsey et al. (2016) fanden heraus, dass transponierbare Elemente etwa 13 % des Genoms ausmachen, ähnlich wie bei Drosophila melanogaster (ebenfalls eine Zweiflüglerart ). [ 15 ] Sie stellten jedoch fest, dass sich das Verhältnis der TE-Typen deutlich von D. melanogaster unterscheidet, wobei die Zusammensetzung von LTR-Retrotransposons , NTR-Retrotransposons und DNA-Transposons annähernd gleich ist . [ 15 ] Diese Verhältnisse gelten als repräsentativ für die Gattung. [ 15 ]
Die Genetik und Genomik der Geschlechtschromosomen wurden von Windbichler et al. , 2007 und Galizi et al. , 2014 (eine Physarum polycephalum Homing-Endonuklease , die X-Chromosomen zerstört ), Windbichler et al. , 2008 und Hammond et al. , 2016 (Methoden zur Reduzierung der weiblichen Population), Windbichler et al. , 2011 ( Transfer aus Hefe), Bernardini et al. , 2014 (eine Methode zur Erhöhung der männlichen Population), Kyrou et al. , 2018 (ein für Frauen notwendiges Exon und eine Homing-Endonuklease, die es steuert), Taxiarchi et al. , 2019 (Dynamik der Geschlechtschromosomen im Allgemeinen) und Simoni et al. , 2020 (eine X-Chromosom-zerstörende ortsspezifische Nuklease ) entdeckt und untersucht. [ 16 ] Siehe § Gene Drive weiter unten für ihre Anwendungen.
An. gambiae weist einen hohen Polymorphismusgrad auf . Dies gilt insbesondere für die Cytochrom-P450-Enzyme (Wilding et al. , 2009), die einen Einzelnukleotid-Polymorphismus (SNP) pro 26 Basenpaaren fanden. Diese Art besitzt den höchsten Polymorphismusgrad in den CYPs aller bekannten Insekten, wobei ein Großteil davon in sogenannten „Scaffolds“ zu finden ist, die nur in bestimmten Subpopulationen vorkommen. Diese werden von Holt et al. (2002), die die DNA sequenzierten, als „Dual-Haplotype-Regionen“ bezeichnet.PEST- Stamm. [ 17 ] : 241
Wie viele andere Chromosomen codiert auch An. gambiae für Spindel- und Kinetochor-assoziierte Proteine . Hanisch et al. (2006) lokalisieren AgSka1 , das Gen für das Spindel- und Kinetochor-assoziierte Protein 1 , an Position EAL39257 . [ 18 ]
Ob die gesamte Familie der Stechmücken (Culicidae) epigenetische Mechanismen konserviert, ist bis 2012 ungeklärt. [ 19 ] Um diese Frage zu beantworten, verglichen Marhold et al. (2004) ihre früheren Arbeiten an Drosophila melanogaster mit neuen Sequenzen von D. pseudoobscura und An. gambiae . [ 19 ] Sie fanden heraus, dass alle drei das DNA-Methylierungsenzym DNMT2 ( DmDNMT2 , DpDNMT2 und DmDNMT2 ) gemeinsam haben.AgDNMT2 ). [ 19 ] Dies legt nahe, dass alleZweiflüglerein epigenetisches System konservieren, das Dnmt2 verwendet. [ 19 ]
Gastgeber
Zu den Wirten zählen Rinder , Ziegen , Schafe und Wildschweine . [ 20 ]
Parasiten
Zu den Parasiten gehören Plasmodium berghei (für den es auch als Vektor dient ) [ 21 ] [ 22 ] [ 23 ] sowie die bioinsektiziden / entomopathogenen Pilze Metarhizium robertsii [ 21 ] und Beauveria bassiana [ 21 ] . Alle drei Parasiten interagieren mit Insektiziden und reduzieren so die Fitness – siehe Abschnitt „Insektizide“ weiter unten. [ 21 ] CRISPR/Cas9 und U6-gRNA werden zunehmend (Stand 2020) gemeinsam für Knockout-Experimente an Stechmücken eingesetzt . [ 23 ] Dong et al. (2018) entwickelten und präsentierten eine neue U6-gRNA+Cas9-Technik in Anopheles gambiae und nutzten diese, um das Fibrinogen-verwandte Protein 1 (FREP1) auszuschalten und dadurch die Infektion der Stechmücke mit P. berghei und P. falciparum stark zu reduzieren . [ 23 ] Dies belegt jedoch auch die zentrale Bedeutung von FREP1 für den Überlebenserfolg des Insekts, da es alle gemessenen Aktivitäten in allen Lebensstadien beeinträchtigt. [ 23 ] Yang et al. (2020) verwendeten die Dong-Methode, um dasselbe mit mosGILT zu erreichen . Auch sie reduzierten die Plasmodium- Infektion der Mücke stark, stellten aber gleichzeitig fest, dass ein lebenswichtiger Prozess beeinträchtigt wird, im Fall von mosGILT die Eierstockentwicklung . [ 23 ]
Kontrolle
Insektizide
Parasiten/Bioinsektizide und chemische Insektizide reduzieren synergistisch die Fitness . Saddler et al. (2015) fanden heraus, dass selbst An. gambiae mit Knockdown-Resistenz ( kdr ) anfälliger für DDT sind , wenn sie zuvor mit Plasmodium berghei infiziert wurden [ 21 , 22 ] . Farenhorst et al. (2009) beobachteten dasselbe für Metarhizium robertsii oder Beauveria bassiana [ 21 ] . Dies ist wahrscheinlich auf einen Effekt zurückzuführen, der von Félix et al. (2010) und Stevenson et al. (2011) beschrieben wurde: An. gambiae verändert verschiedene Aktivitäten – insbesondere von CYP6M2 – als Reaktion auf die Infektion mit P. berghei . CYP6M2 ist bekanntermaßen an der Pyrethroidresistenz beteiligt , und Pyrethroide und DDT weisen einen gemeinsamen Wirkmechanismus auf [ 22 ] .
Genantrieb
Forschungen zur Entwicklung von Gen-Drive- Kontrollen von Anopheles gambiae wurden von Windbichler et al. (2007, 2008, 2011 ), Bernardini et al . (2014), Galizi et al. (2014 ), Hammond et al. (2016), Kyrou et al. (2018) , Taxiarchi et al. ( 2019) und Simoni et al. (2020) durchgeführt. [ 16 ] Spezifische Gene sind im Abschnitt „Genom“ oben aufgeführt. Diese können alle zur Schädlingsbekämpfung eingesetzt werden, da sie Unfruchtbarkeit induzieren . [ 16 ]
Fruchtbarkeit
Die Fruchtbarkeit von Anopheles gambiae hängt von der Entgiftung reaktiver Sauerstoffspezies (ROS) durch Katalase ab . [ 24 ] Eine verminderte Katalaseaktivität reduziert die Reproduktionsrate weiblicher Mücken signifikant, was darauf hindeutet, dass Katalase eine zentrale Rolle beim Schutz von Oozyten und frühen Embryonen vor ROS-Schäden spielt. [ 24 ]
Historische Anmerkung
Anopheles gambiae drang 1930 in den Nordosten Brasiliens ein und führte 1938/39 zu einer Malariaepidemie. [ 25 ] Die brasilianische Regierung, unterstützt von der Rockefeller-Stiftung, konnte diese Mücken in einem von Fred Soper geleiteten Programm in diesem Gebiet ausrotten. Dieses Vorgehen orientierte sich an den früheren Erfolgen bei der Ausrottung von Aedes aegypti im Rahmen des Gelbfieberbekämpfungsprogramms . Die genaue Art, die an dieser Epidemie beteiligt war, wurde als Anopheles arabiensis identifiziert . [ 26 ]
Peptidhormone
Kaufmann und Brown (2008) fanden heraus, dass das Adipokinetische Hormon (AKH) von Anopheles gambiae Kohlenhydrate , nicht aber Lipide mobilisiert . AKH/Corazonin-Peptid (ACP) hingegen mobilisiert weder Kohlenhydrate noch hemmt es deren Mobilisierung. Mugumbate et al. (2013) präsentierten mittels Kernspinresonanzspektroskopie Strukturen in Lösung und in Membranbindung . [ 27 ]
Referenzen
- ^ Giles, GM (1902). Ein Handbuch der Mücken oder Stechmücken, das die Anatomie und Lebensgeschichte der Culicidae zusammen mit Beschreibungen aller bis zum heutigen Tag bekannten Arten enthält . London, Vereinigtes Königreich: John Bale, Sons & Danielsson.
- ^ „ Anopheles gambiae- Komplex“ . Walter Reed Army Institute of Research . Archiviert vom Original am 29.09.2007.
- ^ „Lymphatische Filariose“ . www.who.int . Abgerufen am 10. April 2020 .
- ^ " Anopheles gambiae Giles, 1902" . The Walter Reed Biosystematics Unit (WRBU) . 2021. Abgerufen am 27.03.2025 .
- ^ Besansky NJ, Powell JR, Caccone A, Hamm DM, Scott JA, Collins FH (Juli 1994). „Molekulare Phylogenie des Anopheles-gambiae- Komplexes deutet auf genetische Introgression zwischen den wichtigsten Malariavektoren hin“ . Proceedings of the National Academy of Sciences . 91 (15): 6885–8 . Bibcode : 1994PNAS...91.6885B . doi : 10.1073/pnas.91.15.6885 . PMC 44302. PMID 8041714 .
- ^ Wilkins EE, Howell PI, Benedict MQ (2006). „IMP-PCR-Primer detektieren Einzelnukleotid-Polymorphismen zur Speziesidentifizierung von Anopheles gambiae , Mopti- und Savanna-rDNA-Typen sowie Dieldrinresistenz bei Anopheles arabiensis “ . Malaria Journal . 5 (1) 125. doi : 10.1186/1475-2875-5-125 . PMC 1769388. PMID 17177993 .
- ^ Yakob, Laith (2011). „Epidemiologische Konsequenzen einer neu entdeckten kryptischen Untergruppe von Anopheles gambiae “ . Biology Letters . 7 (6): 947–949 . doi : 10.1098/ rsbl.2011.0453 . PMC 3210673. PMID 21693489 .
- ^ GB White (1974). „ Anopheles-gambiae- Komplex und Krankheitsübertragung in Afrika“. Transactions of the Royal Society of Tropical Medicine and Hygiene . 68 (4): 278–298 . doi : 10.1016/0035-9203(74)90035-2 . PMID 4420769 .
- ^ C. Fanello; F. Santolamazza; A. Della Torre (2002). „Simultane Identifizierung von Arten und molekularen Formen des Anopheles-gambiae- Komplexes mittels PCR-RFLP“. Medical and Veterinary Entomology . 16 (4): 461–464 . doi : 10.1046/j.1365-2915.2002.00393.x . PMID 12510902. S2CID 28983355 .
- ^ a b " Anopheles gambiae : Erstes Genom eines Vektors für eine parasitäre Erkrankung" . Genoscope . Archiviert vom Original am 7. August 2011.
- ^ a b Lawniczak, MK; et al. (22. Okt. 2010). „Weit verbreitete Divergenz zwischen entstehenden Anopheles gambiae- Arten, aufgedeckt durch vollständige Genomsequenzen“ . Science . 330 (6003): 512–4 . Bibcode : 2010Sci...330..512L . doi : 10.1126/science.1195755 . PMC 3674514. PMID 20966253 .
- ^ Pennetier, Cédric; Warren, Ben; Dabiré, K. Roch; Russell, Ian J.; Gibson, Gabriella (2010). "„Singen im Flug“ als Mechanismus zur Artenerkennung bei der Malariamücke Anopheles gambiae . Current Biology . 20 ( 2): 131–136 . Bibcode : 2010CBio...20..131P . doi : 10.1016/j.cub.2009.11.040 . PMID 20045329. S2CID 15185976 .
- Somers , Jason; Georgiades, Marcos; Su, Matthew P.; Bagi, Judit; Andrés, Marta; Alampounti, Alexandros; Mills, Gordon; Ntabaliba, Watson; Moore, Sarah J.; Spaccapelo, Roberta; Albert, Joerg T. (14.01.2022). „Den richtigen Ton zur richtigen Zeit treffen: Die zirkadiane Kontrolle der Hörbarkeit in Paarungsschwärmen von Anopheles-Mücken wird durch Flugtöne vermittelt“ . Science Advances . 8 (2) eabl4844. Bibcode : 2022SciA....8.4844S . doi : 10.1126/sciadv.abl4844 . ISSN 2375-2548 . PMC 8754303. PMID 35020428 .
- ^ Feugère, L.; Simões, PMV; Russell, IJ; Gibson, G. (18.12.2022), „Kapitel 26: Die Rolle des Gehörs im Verhalten von Stechmücken“ , in: Ignell, R.; Lazzari, CR; Lorenzo, MG; Hill, SR (Hrsg.), Sensorische Ökologie von Krankheitsüberträgern , Brill | Wageningen Academic, S. 683–708 , doi : 10.3920/978-90-8686-932-9_26 , ISBN 978-90-8686-380-8abgerufen am 30.05.2024
- ^ a b c Gilbert, Clément; Peccoud, Jean; Cordaux, Richard (2021-01-07). „Transposable Elements and the Evolution of Insects“ (PDF) . Annual Review of Entomology . 66 (1): 355–372 . doi : 10.1146/annurev - ento-070720-074650 . ISSN 0066-4170 . PMID 32931312. S2CID 221747772 .
- Hay , Bruce A.; Oberhofer, Georg; Guo , Ming (07.01.2021). „Engineering the Composition and Fate of Wild Populations with Gene Drive“ . Annual Review of Entomology . 66 ( 1): 407–434 . doi : 10.1146/annurev - ento-020117-043154 . ISSN 0066-4170 . PMID 33035437. S2CID 222257628 .
- ^ Gilbert, Lawrence I., Hrsg. (2012). Insektenmolekularbiologie und -biochemie . Amsterdam Boston : Academic Press. S. x+563. ISBN 978-0-12-384747-8OCLC 742299021 .
- ^ Cheeseman, Iain M.; Desai, Arshad (2008). „Molekulare Architektur der Kinetochor-Mikrotubuli-Grenzfläche“. Nature Reviews Molecular Cell Biology . 9 (1). Nature Portfolio : 33–46 . doi : 10.1038/nrm2310 . ISSN 1471-0072 . PMID 18097444. S2CID 34121605 .
- Severson , David W.; Behura, Susanta K. (07.01.2012). „Moskito-Genomik: Fortschritte und Herausforderungen“. Annual Review of Entomology . 57 ( 1). Annual Reviews : 143–166 . doi : 10.1146 / annurev - ento-120710-100651 . ISSN 0066-4170 . PMID 21942845 .
- ^ " Anopheles gambiae " . Kompendium invasiver Arten . CABI . 24.11.2019 . Abgerufen am 26.01.2022 .
- ^ a b c d e f Alout, Haoues; Labbé, Pierrick; Chandre, Fabrice; Cohuet, Anna (2017). „Malaria-Vektorkontrolle ist trotz Insektizidresistenz immer noch wichtig“ . Trends in der Parasitologie . 33 (8): 610–618 . doi : 10.1016/j.pt.2017.04.006 . ISSN 1471-4922 . PMID 28499699 . S2CID 32524464 .
- Minetti , Corrado ; Ingham, Victoria A.; Ranson, Hilary (2020). „Effects of insecticide resistance and exposure on Plasmodium development in Anopheles mosquitoes“ (PDF) . Current Opinion in Insect Science . 39 : 42–49 . Bibcode : 2020COIS...39...42M . doi : 10.1016 /j.cois.2019.12.001 . ISSN 2214-5745 . PMID 32109860. S2CID 211563675 .
- ^ a b c d e Caragata, EP; Dong, S.; Dong, Y.; Simões, ML; Tikhe, CV; Dimopoulos, G. (08.09.2020). „Perspektiven und Fallstricke: Werkzeuge der nächsten Generation zur Bekämpfung von durch Mücken übertragenen Krankheiten“ . Annual Review of Microbiology . 74 (1). Annual Reviews : 455–475 . doi : 10.1146/annurev-micro- 011320-025557 . ISSN 0066-4227 . PMID 32905752. S2CID 221625690 .
- ^ a b DeJong RJ, Miller LM, Molina-Cruz A, Gupta L, Kumar S, Barillas-Mury C (Februar 2007). „Die Entgiftung reaktiver Sauerstoffspezies durch Katalase ist ein wichtiger Faktor für die Fruchtbarkeit der Stechmücke Anopheles gambiae “ . Proceedings of the National Academy of Sciences . 104 (7): 2121–6 . Bibcode : 2007PNAS..104.2121D . doi : 10.1073 / pnas.0608407104 . PMC 1892935. PMID 17284604 .
- ^ Killeen GF (Oktober 2003). „In Sopers Fußstapfen: Nordostbrasilien 63 Jahre nach der Ausrottung von Anopheles gambiae “. The Lancet Infectious Diseases . 3 (10): 663–666 . doi : 10.1016/S1473-3099(03)00776-X . PMID 14522266 .
- ^ Parmakelis A, Russello MA, Caccone A, et al. (Januar 2008). „Historische Analyse einer Beinahe-Katastrophe: Anopheles gambiae in Brasilien“ . The American Journal of Tropical Medicine and Hygiene . 78 (1): 176–178 . doi : 10.4269/ajtmh.2008.78.176 . PMID 18187802 .
- ^ Strand, MR; Brown, MR; Vogel, KJ (2016). „Mosquito Peptide Hormones“. Advances in Insect Physiology . Band 51. Elsevier . S. 145–188 . doi : 10.1016/bs.aiip.2016.05.003 . ISBN 978-0-12-802457-7ISSN 0065-2806 . PMC 6338476 . PMID 30662099 . S2CID 58546659 .
Externe Links
- " Anopheles gambiae " . VectorBase . Archiviert vom Original am 27.01.2019 . Abgerufen am 12.07.2013 .
- Die Genomsequenz von anoGam1 kann im UCSC Genome Browser eingesehen werden.
- DiArk