| Insekten-Frostschutzprotein (CfAFP) | |||||||
|---|---|---|---|---|---|---|---|
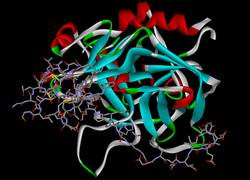
 Struktur des Beta-Helix-Frostschutzproteins von Choristoneura fumiferana (Fichtenknospenwickler) [ 2 ] | |||||||
| Kennungen | |||||||
| Symbol | CfAFP | ||||||
| Pfam | PF05264 | ||||||
| InterPro | IPR007928 | ||||||
| SCOP2 | 1m8n / SCOPe / SUPFAM | ||||||
| |||||||
| Fisch-Frostschutzprotein, Typ I | |||||||
|---|---|---|---|---|---|---|---|
| Kennungen | |||||||
| Symbol | ? | ||||||
| InterPro | IPR000104 | ||||||
| SCOP2 | 1wfb / SCOPe / SUPFAM | ||||||
| |||||||
| Fisch-Frostschutzprotein, Typ II | |||||||
|---|---|---|---|---|---|---|---|
| Kennungen | |||||||
| Symbol | ? | ||||||
| InterPro | IPR002353 | ||||||
| Kath | 2py2 | ||||||
| SCOP2 | 2afp / SCOPe / SUPFAM | ||||||
| |||||||
| Fisch-Frostschutzprotein, Typ III | |||||||
|---|---|---|---|---|---|---|---|
| Kennungen | |||||||
| Symbol | ? | ||||||
| InterPro | IPR006013 | ||||||
| SCOP2 | 1hg7 / SCOPe / SUPFAM | ||||||
| |||||||
| Siehe auch die SAF-Domäne ( InterPro : IPR013974 ). | |||||||
| Eisbindendes Protein-ähnlich (Meereisorganismus) | |||||||
|---|---|---|---|---|---|---|---|
| Kennungen | |||||||
| Symbol | DUF3494 | ||||||
| Pfam | PF11999 | ||||||
| InterPro | IPR021884 | ||||||
| |||||||
Frostschutzproteine ( AFPs ) oder Eisstrukturproteine sind eine Klasse von Polypeptiden, die von bestimmten Tieren , Pflanzen , Pilzen und Bakterien produziert werden und ihnen das Überleben bei Temperaturen unter dem Gefrierpunkt von Wasser ermöglichen. AFPs binden an kleine Eiskristalle und hemmen so deren Wachstum und Rekristallisation , die andernfalls tödlich wäre. [ 3 ] Es gibt zudem zunehmend Hinweise darauf, dass AFPs mit Säugetierzellmembranen interagieren und diese vor Kälteschäden schützen. Diese Erkenntnisse deuten auf eine Beteiligung von AFPs an der Kälteakklimatisierung hin . [ 4 ]
Nicht-kolligative Eigenschaften
Im Gegensatz zum weit verbreiteten Kfz-Frostschutzmittel Ethylenglykol senken AFPs den Gefrierpunkt nicht proportional zu ihrer Konzentration. Vielmehr wirken sie nicht- kolligativ . Dieses Phänomen ermöglicht es ihnen, bereits in Konzentrationen von 1/300 bis 1/500 der Konzentrationen anderer gelöster Stoffe als Frostschutzmittel zu wirken. Ihre geringe Konzentration minimiert ihren Einfluss auf den osmotischen Druck . [ 4 ] Die ungewöhnlichen Eigenschaften von AFPs werden auf ihre selektive Affinität zu spezifischen kristallinen Eisformen und die daraus resultierende Blockade der Eisbildung zurückgeführt. [ 5 ]
Thermische Hysterese
AFPs erzeugen eine Differenz zwischen Schmelzpunkt und Gefrierpunkt (Zersetzungstemperatur von AFP-gebundenen Eiskristallen), die als thermische Hysterese bekannt ist. Die Anlagerung von AFPs an der Grenzfläche zwischen festem Eis und flüssigem Wasser hemmt das thermodynamisch begünstigte Wachstum des Eiskristalls. Das Eiswachstum wird kinetisch gehemmt, da die AFPs die wasserzugänglichen Oberflächen des Eises bedecken. [ 5 ]
Die thermische Hysterese lässt sich im Labor leicht mit einem Nanoliter-Osmometer messen . Organismen unterscheiden sich in ihren Werten der thermischen Hysterese. Die maximale thermische Hysterese, die bei Fischen beobachtet wird, beträgt etwa −3,5 °C (Sheikh Mahatabuddin et al., SciRep) (29,3 °F). Im Gegensatz dazu sind Wasserorganismen nur Temperaturen von −1 bis −2 °C unter dem Gefrierpunkt ausgesetzt. Während der extremen Wintermonate widersteht der Fichtenknospenwickler dem Gefrieren bei Temperaturen um −30 °C. [ 6 ]
Die Abkühlungsrate kann den Wert der thermischen Hysterese von AFPs beeinflussen. Schnelle Abkühlung kann den Nichtgleichgewichts-Gefrierpunkt und damit den Wert der thermischen Hysterese erheblich verringern. Folglich können sich Organismen bei einem abrupten Temperaturabfall nicht unbedingt an ihre Umgebung unter Null Grad anpassen. [ 4 ]
Frosttoleranz versus Frostvermeidung
Arten, die AFPs enthalten, können wie folgt klassifiziert werden:
Frostresistent : Diese Arten können verhindern, dass ihre Körperflüssigkeiten vollständig gefrieren. Im Allgemeinen kann diese Schutzfunktion bei extrem niedrigen Temperaturen außer Kraft gesetzt werden, was zu rascher Eisbildung und schließlich zum Tod führt.
Frosttolerant : Diese Arten können das Gefrieren ihrer Körperflüssigkeiten überleben . Es wird angenommen, dass einige frosttolerante Arten AFPs als Kryoprotektiva nutzen, um Schäden durch das Gefrieren zu verhindern, jedoch nicht vollständig einzufrieren. Der genaue Mechanismus ist noch unbekannt. Man vermutet jedoch, dass AFPs die Rekristallisation hemmen und Zellmembranen stabilisieren, um Schäden durch Eis zu verhindern. [ 7 ] Sie könnten in Verbindung mit Eiskeimbildungsproteinen (INPs) die Ausbreitungsgeschwindigkeit des Eises nach dem Gefrieren kontrollieren. [ 7 ]
Diversität
Es gibt viele bekannte nicht-homologe AFP-Typen.
Fisch-AFPs

Frostschutzglykoproteine ( AFGPs ) kommen in antarktischen Notothenioiden und im Nordkabeljau vor . Ihre Größe beträgt 2,6–3,3 kDa. [ 8 ] AFGPs entwickelten sich unabhängig voneinander in Notothenioiden und im Nordkabeljau. In Notothenioiden entstand das AFGP-Gen aus einem ursprünglichen Trypsinogen-ähnlichen Serinprotease- Gen. [ 9 ]
- Typ-I-AFP kommt in Winterflunder , Langhorn-Groppe und Kurzhorn-Groppe vor . Es ist das am besten dokumentierte AFP, da seine dreidimensionale Struktur als erste aufgeklärt wurde. [ 10 ] Typ-I-AFP besteht aus einer einzelnen, langen, amphipathischen Alpha-Helix mit einer Größe von etwa 3,3–4,5 kDa. Die 3D-Struktur besitzt drei Seitenflächen: die hydrophobe, die hydrophile und die Thr-Asx-Seite. [ 10 ]
- Typ-I-hyp-AFP (hyp steht für hyperaktiv) kommt in verschiedenen Flunderarten vor. Es hat eine Größe von ca. 32 kDa (zwei dimere Moleküle à 17 kDa). Das Protein wurde aus dem Blutplasma der Winterflunder isoliert. Es senkt den Gefrierpunkt deutlich besser als die meisten anderen Fisch-AFPs. [ 11 ] Diese Fähigkeit beruht teilweise auf den zahlreichen Wiederholungen der Typ-I-Eisbindungsstelle. [ 12 ]
- Typ-II-AFPs (z. B. P05140 ) kommen in Seeraben , Stinten und Heringen vor . Es handelt sich um cysteinreiche, globuläre Proteine mit fünf Disulfidbrücken . [ 13 ] Typ-II-AFPs entwickelten sich wahrscheinlich aus calciumabhängigen (c-Typ-) Lektinen . [ 14 ] Seeraben, Stinte und Heringe stellen recht unterschiedliche Linien der Teleostier dar . Wäre das AFP-Gen im letzten gemeinsamen Vorfahren dieser Linien vorhanden gewesen, ist es ungewöhnlich, dass es innerhalb dieser Linien verstreut vorkommt, in einigen Ordnungen vorhanden und in anderen nicht. Es wurde vermutet, dass horizontaler Gentransfer für diese Diskrepanz verantwortlich sein könnte, sodass der Stint das Typ-II-AFP-Gen vom Hering erworben hat. [ 15 ]
- Typ-III-AFPs kommen in der Antarktischen Aalmutter vor . Sie weisen an Eisbindungsstellen eine ähnliche Hydrophobizität wie Typ-I-AFPs auf und haben eine Größe von etwa 6 kDa. [ 8 ] Typ-III-AFPs entwickelten sich wahrscheinlich aus einem in der Antarktischen Aalmutter vorhandenen Sialinsäure- Synthase-(SAS)-Gen. Durch eine Genduplikation entwickelte sich dieses Gen – das selbst eine gewisse Eisbindungsaktivität aufweist – durch den Verlust des N-terminalen Teils zu einem effektiven AFP-Gen. [ 16 ]
- Typ-IV-AFPs ( P80961 ) kommen in Langhorn-Groppen vor. Es handelt sich um α-helikale Proteine, die reich an Glutamat und Glutamin sind. [ 17 ] Dieses Protein hat eine Größe von etwa 12 kDa und besteht aus einem 4-Helix-Bündel. [ 17 ] Seine einzige posttranslationale Modifikation ist ein Pyroglutamatrest , ein cyclisierter Glutaminrest am N-Terminus . [ 17 ]
Pflanzen-AFPs
Die Klassifizierung der AFPs wurde komplizierter, als Frostschutzproteine aus Pflanzen entdeckt wurden. [ 18 ] Pflanzliche AFPs unterscheiden sich in folgenden Aspekten deutlich von den anderen AFPs:
- Sie weisen im Vergleich zu anderen AFPs eine deutlich schwächere thermische Hystereseaktivität auf. [ 19 ]
- Ihre physiologische Funktion besteht wahrscheinlich eher in der Hemmung der Rekristallisation von Eis als in der Verhinderung der Eisbildung. [ 19 ]
- Bei den meisten handelt es sich um evolvierte, pathogenesebezogene Proteine, die teilweise auch antimykotische Eigenschaften aufweisen. [ 19 ]
Insekten-AFPs
Es gibt eine Reihe von AFPs in Insekten, darunter solche von Dendroides- , Tenebrio- und Rhagium- Käfern , Fichtenknospenwicklern und Blassen Schönheitsfaltern sowie Zuckmücken . Insekten-AFPs weisen gewisse Ähnlichkeiten auf: Die meisten besitzen eine höhere Aktivität (d. h. einen höheren thermischen Hysteresewert, daher hyperaktiv) und eine repetitive Struktur mit einer flachen Eisbindungsfläche. Die AFPs der eng verwandten Tenebrio- und Dendroides- Käfer sind homolog, und jede 12–13 Aminosäuren umfassende Wiederholungseinheit wird durch eine interne Disulfidbrücke stabilisiert. Isoformen besitzen 6 bis 10 dieser Wiederholungseinheiten, die eine Spirale oder ein β-Solenoid bilden. Eine Seite des Solenoids weist eine flache Eisbindungsfläche auf, die aus einer doppelten Reihe von Threoninresten besteht. [ 7 ] [ 20 ] Andere Käfer (Gattung Rhagium ) besitzen längere Wiederholungssequenzen ohne interne Disulfidbrücken, die ein komprimiertes β-Solenoid (β-Sandwich) mit vier Reihen von Threoninresten bilden. [ 21 ] Dieses AFP ist strukturell ähnlich dem für das nicht-homologe AFP des Blassen Schönfalters modellierten. [ 22 ] Im Gegensatz dazu ist das AFP des Fichtennadelwicklers ein Solenoid, das oberflächlich dem Tenebrio -Protein ähnelt und eine ähnliche Eisbindungsfläche aufweist, jedoch einen dreieckigen Querschnitt mit längeren Wiederholungssequenzen ohne interne Disulfidbrücken besitzt. Das AFP von Zuckmücken ist strukturell ähnlich dem von Tenebrio und Dendroides , jedoch besteht das disulfidverbrückte β-Solenoid aus kürzeren 10-Aminosäure-Wiederholungen, und anstelle von Threonin besteht die Eisbindungsfläche aus einer einzelnen Reihe von Tyrosinresten . [ 23 ] Springschwänze ( Collembola ) sind keine Insekten, aber wie diese sechsbeinige Arthropoden. Eine in Kanada vorkommende Art, die oft als „Schneeflocke“ bezeichnet wird, produziert hyperaktive AFPs. [ 24 ] Obwohl auch diese repetitiv sind und eine flache Eisbindungsfläche besitzen, enden die Ähnlichkeiten hier. Etwa 50 % der Aminosäurereste sind Glycin (Gly), mit Wiederholungen von Gly-Gly-X oder Gly-XX, wobei X für eine beliebige Aminosäure steht. Jede 3-Aminosäure-Wiederholung bildet eine Windung einer Polyprolin-Typ-II-Helix. Die Helices falten sich dann zusammen und bilden ein Bündel, das aus zwei Helices besteht und dessen Eisbindungsfläche eher von kleinen hydrophoben Resten wie Alanin als von Threonin dominiert wird. [ 25 ]Andere Insekten, wie beispielsweise ein Alaska-Käfer, produzieren hyperaktive Frostschutzmittel, die sich noch weniger unterscheiden, da sie aus Zuckerpolymeren ( Xylomannan ) und nicht aus Aminosäurepolymeren (Proteinen) bestehen. [ 26 ] Zusammengenommen deutet dies darauf hin, dass die meisten AFPs und Frostschutzmittel erst nach der Aufspaltung der Abstammungslinien entstanden sind, aus denen diese verschiedenen Insekten hervorgegangen sind. Die vorhandenen Ähnlichkeiten sind das Ergebnis konvergenter Evolution.
Meereisorganismen AFPs
Viele im Meereis lebende Mikroorganismen besitzen AFPs, die einer einzigen Familie angehören. Die Kieselalgen Fragilariopsis cylindrus und F. curta spielen eine Schlüsselrolle in den polaren Meereisgemeinschaften und dominieren sowohl die Zusammensetzung der Plättchenschicht als auch des Packeises. AFPs sind in diesen Arten weit verbreitet, und das Vorkommen von AFP -Genen als Multigenfamilie unterstreicht die Bedeutung dieser Gruppe für die Gattung Fragilariopsis . [ 27 ] Die in F. cylindrus identifizierten AFPs gehören zu einer AFP-Familie, die in verschiedenen Taxa vertreten ist und auch in anderen mit Meereis assoziierten Organismen ( Colwellia spp., Navicula glaciei , Chaetoceros neogracile und Stephos longipes sowie Leucosporidium antarcticum ) [ 28 ] [ 29 ] und in Bakterien des antarktischen Inlandeises ( Flavobacteriaceae ) [ 30 ] [ 31 ] sowie in kältetoleranten Pilzen ( Typhula ishikariensis , Lentinula edodes und Flammulina populicola ) [ 32 ] [ 33 ] vorkommt.
Mehrere Strukturen von Meereis-AFPs wurden aufgeklärt. Diese Proteinfamilie faltet sich zu einer Beta-Helix , die eine flache Eisbindungsfläche bildet. [ 34 ] Im Gegensatz zu den anderen AFPs gibt es kein einheitliches Sequenzmotiv für die Eisbindungsstelle. [ 35 ]
Das aus dem Metagenom des Ciliaten Euplotes focardii und psychrophiler Bakterien stammende AFP hemmt effizient die Eisrekristallisation. [ 36 ] 1 μM des Eisbindungsproteins des Euplotes focardii- Konsortiums ( Efc IBP) reicht aus, um die Eisrekristallisation bei −7,4 °C vollständig zu unterdrücken. Diese Hemmung der Eisrekristallisation trägt zur Toleranz der Bakterien gegenüber Eis bei, anstatt die Eisbildung zu verhindern. Efc IBP erzeugt auch eine thermische Hystereselücke, die jedoch weniger effizient ist als die Hemmung der Eisrekristallisation. Efc IBP schützt sowohl gereinigte Proteine als auch ganze Bakterienzellen bei Gefriertemperaturen. Grünes fluoreszierendes Protein bleibt nach mehreren Gefrier- und Auftauzyklen funktionsfähig, wenn es mit Efc IBP inkubiert wird . Escherichia coli überlebt längere Zeiträume bei 0 °C, wenn das efcIBP- Gen in das E. coli -Genom inseriert wird . [ 36 ] Efc IBP besitzt eine typische AFP-Struktur, bestehend aus mehreren Beta-Faltblättern und einer Alpha-Helix . Außerdem befinden sich alle eisbindenden polaren Aminosäurereste an derselben Stelle des Proteins. [ 36 ]
Evolution
Die bemerkenswerte Vielfalt und Verbreitung der Antifrost-Glykoproteine (AFPs) deutet darauf hin, dass sich die verschiedenen Typen erst kürzlich als Reaktion auf die Vereisung des Meeresspiegels vor 1–2 Millionen Jahren auf der Nordhalbkugel und vor 10–30 Millionen Jahren in der Antarktis entwickelt haben. Daten aus Tiefseebohrungen belegen, dass sich der Antarktische Zirkumpolarstrom vor über 30 Millionen Jahren bildete. [ 37 ] Die durch diesen Strom verursachte Abkühlung der Antarktis führte zu einem Massenaussterben von Knochenfischarten, die den Minustemperaturen nicht standhalten konnten. [ 38 ] Notothenioide mit dem Antifrost-Glykoprotein überlebten die Vereisung und besiedelten neue ökologische Nischen. [ 38 ] [ 9 ]
Diese unabhängige Entwicklung ähnlicher Anpassungen wird als konvergente Evolution bezeichnet . [ 4 ] Belege für konvergente Evolution beim Nordkabeljau ( Gadidae ) und den Notothenioiden liefern Befunde unterschiedlicher Spacer-Sequenzen und einer abweichenden Organisation von Introns und Exons sowie nicht übereinstimmender AFGP-Tripeptidsequenzen. Diese entstanden durch Duplikationen kurzer Vorläufersequenzen, die von jeder Gruppe unterschiedlich permutiert wurden (für dasselbe Tripeptid). Die beiden Gruppen trennten sich vor etwa 7–15 Millionen Jahren. Kurz darauf (vor 5–15 Millionen Jahren) entwickelte sich das AFGP-Gen bei den Notothenioiden aus einem Vorläufergen des Pankreastrypsinogens. Die Trennung der AFGP- und Trypsinogengene erfolgte durch eine Sequenzdivergenz – eine Anpassung, die mit der Abkühlung und schließlich dem Gefrieren des Antarktischen Ozeans einherging. Die Evolution des AFGP-Gens im Nordkabeljau erfolgte relativ spät (vor etwa 3,2 Millionen Jahren) und entstand aus einer nicht-kodierenden Sequenz durch Tandemduplikationen in einer Thr-Ala-Ala-Einheit. Antarktische Notothenioide und der Arktische Kabeljau ( Boreogadus saida ) gehören zwei verschiedenen Ordnungen an und besitzen sehr ähnliche Frostschutzglykoproteine. [ 39 ] Obwohl die beiden Fischordnungen ähnliche Frostschutzproteine aufweisen, enthalten Kabeljauarten Arginin im AFG-Gen, während dies bei antarktischen Notothenioiden nicht der Fall ist. [ 39 ] Die Rolle von Arginin als Enhancer wurde im Frostschutzprotein (DAFP-1) von Dendroides canadensis durch Beobachtung der Wirkung einer chemischen Modifikation mit 1,2-Cyclohexandion untersucht. [ 40 ] Frühere Forschungen identifizierten verschiedene Enhancer dieses Frostschutzproteins, darunter ein Thaumatin-ähnliches Protein und Polycarboxylate. [ 41 ] [ 42 ] Modifikationen von DAFP-1 mit dem argininspezifischen Reagenz führten zum teilweisen und vollständigen Verlust der thermischen Hysterese in DAFP-1, was darauf hindeutet, dass Arginin eine entscheidende Rolle bei der Steigerung seiner Aktivität spielt. [ 40 ] Verschiedene Verstärkermoleküle von DAFP-1 weisen unterschiedliche thermische Hystereseaktivität auf. [ 42 ] Amornwittawat et al. (2008) fanden heraus, dass die Anzahl der Carboxylatgruppen in einem Molekül die verstärkende Wirkung von DAFP-1 beeinflusst. [ 42 ] Optimale Aktivität in der thermischen Hysterese korreliert mit einer hohen Konzentration an Verstärkermolekülen. [ 42 ] Li et al. (1998) untersuchten die Auswirkungen von pH-Wert und gelösten Stoffen auf die thermische Hysterese in Frostschutzproteinen aus Dendrioides canadensis. [ 43 ]Die TH-Aktivität von DAFP-4 wurde durch den pH-Wert nicht beeinflusst, außer bei niedriger Konzentration des gelösten Stoffes (pH 1), bei der die TH-Aktivität abnahm. [ 43 ] Der Einfluss von fünf gelösten Stoffen – Succinat, Citrat, Malat, Malonat und Acetat – auf die TH-Aktivität wurde untersucht. [ 43 ] Von diesen fünf gelösten Stoffen zeigte Citrat die stärkste Steigerung der Aktivität. [ 43 ]
Dies ist ein Beispiel für ein Proto-ORF-Modell, ein seltenes Phänomen, bei dem neue Gene als geformter offener Leserahmen vorliegen, bevor das regulatorische Element existiert, das zu ihrer Aktivierung benötigt wird.
Bei Fischen ist horizontaler Gentransfer für das Vorkommen von Typ-II-AFP-Proteinen in einigen Gruppen verantwortlich, die keine gemeinsame Abstammung aufweisen. Bei Hering und Stint sind bis zu 98 % der Introns dieses Gens identisch; der Gentransfer erfolgt vermutlich während der Paarung durch Spermien, die fremder DNA ausgesetzt sind. [ 44 ] Die Transferrichtung ist vom Hering zum Stint bekannt, da Heringe achtmal so viele Kopien des AFP-Gens besitzen wie Stinte (1) und die Genabschnitte im Stint transponierbare Elemente enthalten , die ansonsten charakteristisch für Heringe sind und dort häufig vorkommen, aber nicht in anderen Fischen. [ 44 ]
Es gibt zwei Gründe, warum viele Arten von AFPs trotz ihrer Verschiedenheit dieselbe Funktion erfüllen können:
- Obwohl Eis einheitlich aus Wassermolekülen besteht, weist es viele verschiedene Oberflächen auf, die für die Bindung von Proteinen zugänglich sind. Unterschiedliche Arten von AFPs können mit unterschiedlichen Oberflächen interagieren.
- Obwohl sich die fünf AFP-Typen in ihrer Aminosäure- Primärstruktur unterscheiden , weisen sie nach der Faltung zu einem funktionsfähigen Protein möglicherweise Ähnlichkeiten in ihrer dreidimensionalen oder Tertiärstruktur auf , die die gleichen Wechselwirkungen mit Eis ermöglichen. [ 4 ] [ 45 ]
Die Aktivität von Frostschutzglykoproteinen wurde bei verschiedenen Strahlenflossern, darunter Aalmuttern, Groppen und Kabeljauarten, beobachtet. [ 46 ] [ 47 ] Fischarten, die über dieses Frostschutzglykoprotein verfügen, weisen unterschiedliche Aktivitätsniveaus auf. [ 48 ] Der Polardorsch ( Boreogadus saida) zeigt eine ähnliche Proteinaktivität und ähnliche Eigenschaften wie die antarktische Art T. borchgrevinki . [ 48 ] Beide Arten weisen eine höhere Proteinaktivität als der Safrandorsch ( Eleginus gracilis ) auf. [ 48 ] Es wurde berichtet, dass Frostschutzproteine in Kieselalgenarten dazu beitragen, den Gefrierpunkt der Proteine von Organismen zu senken. [ 27 ] Bayer-Giraldi et al. (2010) fanden 30 Arten aus verschiedenen Taxa mit Homologen von Frostschutzproteinen. [ 27 ] Die Diversität stimmt mit früheren Untersuchungen überein, die das Vorkommen dieser Gene in Krebstieren, Insekten, Bakterien und Pilzen beobachtet haben. [ 9 ] [ 49 ] [ 50 ] Horizontaler Gentransfer ist für das Vorkommen von Eis-Frostschutzproteinen in zwei Kieselalgenarten, F. cylindrus und F. curta, verantwortlich. [ 27 ]
Wirkungsmechanismen
Es wird angenommen, dass AFPs das Eiswachstum durch einen Adsorptionshemmungsmechanismus hemmen . [ 51 ] Sie adsorbieren an nicht- basalen Ebenen von Eis und hemmen so das thermodynamisch begünstigte Eiswachstum. [ 52 ] Das Vorhandensein einer flachen, starren Oberfläche bei einigen AFPs scheint deren Wechselwirkung mit Eis durch Van-der-Waals-Kräfte und Oberflächenkomplementarität zu erleichtern . [ 53 ]
Bindung an Eis
Normalerweise weisen in Lösung gezüchtete Eiskristalle nur die Basalfläche (0001) und die Prismenfläche (1010) auf und erscheinen als runde, flache Scheiben. [ 5 ] Die Anwesenheit von AFPs legt jedoch offenbar weitere Flächen frei. Die Eisoberfläche (2021) scheint die bevorzugte Bindungsfläche zu sein, zumindest für AFP Typ I. [ 54 ] Untersuchungen an AFP Typ I legten zunächst nahe, dass Eis und AFP über Wasserstoffbrückenbindungen interagieren (Raymond und DeVries, 1977). Wurden jedoch Teile des Proteins mutiert, die diese Wasserstoffbrückenbindungen vermitteln sollten, konnte die erwartete Abnahme der Frostschutzwirkung nicht beobachtet werden. Neuere Daten deuten darauf hin, dass hydrophobe Wechselwirkungen die Hauptrolle spielen könnten. [ 55 ] Aufgrund der komplexen Wasser-Eis-Grenzfläche ist es schwierig, den genauen Bindungsmechanismus zu ermitteln. Derzeit wird versucht, den präzisen Mechanismus mithilfe von Molekülmodellierungsprogrammen ( Molekulardynamik oder Monte-Carlo-Methode ) aufzuklären. [ 3 ] [ 5 ]
Bindungsmechanismus und Frostschutzfunktion
Laut einer Struktur- und Funktionsstudie des Frostschutzproteins aus Pseudopleuronectes americanus [ 56 ] beruht der Frostschutzmechanismus des Typ-I-AFP-Moleküls auf der reißverschlussartigen Bindung an eine Eiskeimbildungsstruktur durch Wasserstoffbrückenbindungen der Hydroxylgruppen seiner vier Threoninreste an die Sauerstoffatome entlang der Eisgitterrichtung. Dadurch wird das Wachstum der Eispyramiden gestoppt oder verlangsamt, was zu einer Senkung des Gefrierpunkts führt. [ 56 ]

Der oben beschriebene Mechanismus kann genutzt werden, um die Struktur-Funktions-Beziehung anderer Frostschutzproteine mit den folgenden zwei gemeinsamen Merkmalen zu erklären:
- Wiederkehren eines Thr- Restes (oder eines anderen polaren Aminosäurerests, dessen Seitenkette eine Wasserstoffbrücke mit Wasser bilden kann) in einem 11 Aminosäuren umfassenden Abschnitt der betreffenden Sequenz, und
- ein hoher Anteil an Ala- Restkomponente darin. [ 56 ]
Geschichte
In den 1950er Jahren machte sich der norwegische Wissenschaftler Scholander daran, zu erklären, wie arktische Fische in Wasser überleben können, das kälter ist als der Gefrierpunkt ihres Blutes. Seine Experimente führten ihn zu der Annahme, dass sich im Blut arktischer Fische ein „Frostschutzmittel“ befindet. [ 3 ] Ende der 1960er Jahre gelang es dem Tierbiologen Arthur DeVries, dieses Frostschutzprotein durch seine Untersuchungen antarktischer Fische zu isolieren. [ 57 ] Diese Proteine wurden später als Frostschutzglykoproteine (AFGPs) oder Frostschutzglykopeptide bezeichnet, um sie von den neu entdeckten, nicht-glykoproteinischen biologischen Frostschutzmitteln (AFPs) zu unterscheiden. DeVries arbeitete 1970 mit Robert Feeney zusammen, um die chemischen und physikalischen Eigenschaften der Frostschutzproteine zu charakterisieren. [ 58 ] 1992 dokumentierten Griffith et al. ihre Entdeckung von AFP in Winterroggenblättern. [ 18 ] Etwa zur gleichen Zeit dokumentierten Urrutia, Duman und Knight (1992) das Vorkommen von thermischen Hystereseproteinen in Angiospermen. [ 59 ] Im darauffolgenden Jahr stellten Duman und Olsen fest, dass AFPs auch in über 23 Angiospermenarten , darunter auch von Menschen verzehrten, entdeckt worden waren. [ 60 ] Sie berichteten außerdem über deren Vorkommen in Pilzen und Bakterien.
Namensänderung
Es wurden Versuche unternommen, Frostschutzproteine als Eisstrukturproteine umzubenennen, um ihre Funktion genauer darzustellen und jegliche angenommene negative Beziehung zwischen AFPs und dem Kfz-Frostschutzmittel Ethylenglykol auszuräumen . Diese beiden Stoffe sind völlig unterschiedliche Einheiten und weisen nur in ihrer Funktion eine lose Ähnlichkeit auf. [ 61 ]
Kommerzielle und medizinische Anwendungen
Zahlreiche Anwendungsbereiche könnten von der Verhinderung von Gewebeschäden durch Einfrieren profitieren. Unternehmen untersuchen derzeit den Einsatz dieser Proteine in folgenden Bereichen:
- Erhöhung der Frosttoleranz von Nutzpflanzen und Verlängerung der Erntesaison in kühleren Klimazonen
- Verbesserung der Fischzucht in kühleren Klimazonen
- Verlängerung der Haltbarkeit von Tiefkühlkost
- Verbesserung der Kryochirurgie
- Verbesserung der Gewebekonservierung für Transplantationen oder Transfusionen in der Medizin [ 24 ]
- Therapie bei Unterkühlung
- Kryokonservierung des Menschen (Kryonik)
Unilever hat in Großbritannien, den USA, der EU, Mexiko, China, den Philippinen, Australien und Neuseeland die Zulassung erhalten, gentechnisch veränderte Hefe zur Herstellung von Frostschutzproteinen aus Fisch für die Speiseeisproduktion einzusetzen. [ 62 ] [ 63 ] Diese Proteine werden auf dem Etikett als „ISP“ (Eisstrukturprotein) anstelle von AFP (Frostschutzprotein) bezeichnet.
Aktuelle Nachrichten
Ein aktuelles, erfolgreiches Geschäftsfeld ist die Einführung von AFPs in Eiscreme- und Joghurtprodukten. Dieser als Eisstrukturprotein bezeichnete Inhaltsstoff ist von der US-amerikanischen Lebensmittel- und Arzneimittelbehörde (FDA) zugelassen . Die Proteine werden aus Fisch isoliert und in größerem Maßstab in gentechnisch veränderter Hefe vervielfältigt. [ 64 ]
Organisationen, die sich gegen gentechnisch veränderte Organismen (GVO) aussprechen , äußern Bedenken , dass Frostschutzproteine Entzündungen hervorrufen könnten. [ 65 ] Die Aufnahme von Frostschutzproteinen über die Nahrung ist in den meisten nördlichen und gemäßigten Regionen wahrscheinlich bereits beträchtlich. [ 8 ] Angesichts des bekannten historischen Konsums von Frostschutzproteinen kann man davon ausgehen, dass deren funktionelle Eigenschaften keine toxikologischen oder allergenen Wirkungen beim Menschen hervorrufen. [ 8 ]
Die transgene Herstellung von Proteinen mittels Eisstrukturierung ist in der Gesellschaft weit verbreitet. Insulin und Lab werden mithilfe dieser Technologie produziert. Das Verfahren beeinträchtigt das Produkt nicht; es steigert lediglich die Effizienz der Produktion und verhindert das Töten von Fischen, die andernfalls zur Proteingewinnung getötet werden müssten.
Unilever verwendet derzeit AFPs in einigen seiner amerikanischen Produkte, darunter bestimmte Popsicle -Eissorten und eine neue Linie von Breyers Light Double Churned Eisriegeln. In Speiseeis ermöglichen AFPs die Herstellung von besonders cremigem, dichtem und fettreduziertem Eis mit weniger Zusatzstoffen. [ 66 ] Sie verhindern das durch das Auftauen an der Laderampe oder auf dem Küchentisch verursachte Eiskristallwachstum, welches die Texturqualität beeinträchtigt. [ 67 ]
Im November 2009 veröffentlichten die Proceedings of the National Academy of Sciences die Entdeckung eines Moleküls in einem Käfer aus Alaska, das sich wie AFPs verhält, aber aus Sacchariden und Fettsäuren besteht . [ 26 ]
Eine Studie aus dem Jahr 2010 demonstrierte die Stabilität überhitzter Wassereiskristalle in einer AFP-Lösung und zeigte, dass die Proteine nicht nur das Gefrieren, sondern auch das Schmelzen hemmen können. [ 68 ] Im Jahr 2021 haben Wissenschaftler der EPFL und der Universität Warwick eine künstliche Nachbildung von Frostschutzproteinen gefunden. [ 69 ]
Referenzen
- ^ Daley ME, Spyracopoulos L, Jia Z, Davies PL, Sykes BD (April 2002). „Struktur und Dynamik eines β-helikalen Frostschutzproteins“. Biochemistry . 41 (17): 5515–25 . doi : 10.1021/bi0121252 . PMID 11969412 .
- ^ Leinala EK, Davies PL, Doucet D, Tyshenko MG, Walker VK, Jia Z (September 2002). „Eine β-helikale Antifrostprotein-Isoform mit erhöhter Aktivität. Strukturelle und funktionelle Einblicke“ . The Journal of Biological Chemistry . 277 (36): 33349–52 . doi : 10.1074/jbc.M205575200 . PMID 12105229 .
- ^ a b c Goodsell D (Dezember 2009). „Molekül des Monats: Frostschutzproteine“ . The Scripps Research Institute und die RCSB PDB . doi : 10.2210/rcsb_pdb/mom_2009_12 . Archiviert vom Original am 4. November 2015. Abgerufen am 30. Dezember 2012 .
- Fletcher GL , Hew CL, Davies PL ( 2001). „Antifreeze proteins of teleost fishes“. Annual Review of Physiology . 63 : 359–90 . doi : 10.1146/annurev.physiol.63.1.359 . PMID 11181960 .
- ^ a b c d Jorov A, Zhorov BS, Yang DS (Juni 2004). „Theoretische Studie zur Wechselwirkung des Frostschutzproteins der Winterflunder mit Eis“ . Protein Science . 13 (6): 1524–37 . doi : 10.1110/ps.04641104 . PMC 2279984. PMID 15152087 .
- ^ Béliveau C; Gagné P; Picq S; Vernygora O; Keeling CI; Pinkney K; Doucet D; Wen F; Spencer Johnston J; Maaroufi H; Boyle B; Laroche J; Dewar K; Juretic N; Blackburn G; Nisole A; Brunet B; Brandão M; Lumley L; Duan J; Quan G; Lucarotti CJ; Roe AD; Sperling FAH; Levesque RC; Cusson M (2022). „Das Genom des Fichtenknospenwicklers: Rekonstruktion der Evolutionsgeschichte von Frostschutzproteinen“ . Genome Biology and Evolution . 14 (6) evac087. doi : 10.1093/gbe/evac087 . PMC 9210311. PMID 35668612 .
- ^ a b c Duman JG (2001). „Antifreeze and ice nucleator proteins in terrestrial arthropods“. Annual Review of Physiology . 63 : 327–57 . doi : 10.1146/annurev.physiol.63.1.327 . PMID 11181959 .
- ^ a b c d Crevel RW, Fedyk JK, Spurgeon MJ (Juli 2002). „Antifreeze-Proteine: Eigenschaften, Vorkommen und Exposition des Menschen“. Food and Chemical Toxicology . 40 (7): 899–903 . doi : 10.1016/S0278-6915(02)00042-X . PMID 12065210 .
- ^ a b c Chen L, DeVries AL, Cheng CH (April 1997). „Evolution des Antifreeze-Glykoprotein-Gens aus einem Trypsinogen-Gen in antarktischen Notothenioiden“ . Proceedings of the National Academy of Sciences of the United States of America . 94 (8): 3811–6 . Bibcode : 1997PNAS...94.3811C . doi : 10.1073 / pnas.94.8.3811 . PMC 20523. PMID 9108060 .
- ^ a b Duman JG, de Vries AL (1976). „Isolierung, Charakterisierung und physikalische Eigenschaften von Protein-Frostschutzmitteln aus der Winterflunder, Pseudopleuronectes americanus“. Comparative Biochemistry and Physiology. B, Comparative Biochemistry . 54 (3): 375–80 . doi : 10.1016/0305-0491(76)90260-1 . PMID 1277804 .
- ^ Scotter AJ, Marshall CB, Graham LA, Gilbert JA, Garnham CP, Davies PL (Oktober 2006). „Die Grundlage für die Hyperaktivität von Frostschutzproteinen“. Cryobiology . 53 (2): 229–39 . doi : 10.1016/j.cryobiol.2006.06.006 . PMID 16887111 .
- ^ Graham LA, Marshall CB, Lin FH, Campbell RL, Davies PL (Februar 2008). „Hyperaktives Frostschutzprotein aus Fisch enthält mehrere Eisbindungsstellen“. Biochemistry . 47 (7): 2051–63 . doi : 10.1021/bi7020316 . PMID 18225917 .
- ^ Ng NF, Hew CL (August 1992). „Struktur eines Frostschutzpolypeptids aus dem Seeraben. Disulfidbrücken und Ähnlichkeit zu Lektin-bindenden Proteinen“ . The Journal of Biological Chemistry . 267 (23): 16069–75 . doi : 10.1016/S0021-9258(18)41967-9 . PMID 1644794 .
- ^ Ewart KV, Rubinsky B, Fletcher GL (Mai 1992). „Strukturelle und funktionelle Ähnlichkeit zwischen Fisch-Frostschutzproteinen und calciumabhängigen Lektinen“. Biochemical and Biophysical Research Communications . 185 (1): 335–40 . Bibcode : 1992BBRC..185..335E . doi : 10.1016/s0006-291x(05)90005-3 . PMID 1599470 .
- ^ Graham LA, Lougheed SC, Ewart KV, Davies PL (Juli 2008). „Laterale Übertragung eines Lektin-ähnlichen Frostschutzprotein-Gens bei Fischen“ . PLOS ONE . 3 (7) e2616. Bibcode : 2008PLoSO...3.2616G . doi : 10.1371/journal.pone.0002616 . PMC 2440524. PMID 18612417 .

- ^ Kelley JL, Aagaard JE, MacCoss MJ, Swanson WJ (August 2010). „Funktionelle Diversifizierung und Evolution von Frostschutzproteinen im antarktischen Fisch Lycodichthys dearborni“. Journal of Molecular Evolution . 71 (2): 111–118 . Bibcode : 2010JMolE..71..111K . doi : 10.1007/s00239-010-9367-6 . PMID 20686757. S2CID 25737518 .
- ^ a b c Deng G, Andrews DW, Laursen RA (Januar 1997). „Aminosäuresequenz eines neuen Frostschutzproteins aus der Langhorn-Groppe Myoxocephalus octodecimspinosis“ . FEBS Letters . 402 (1): 17–20 . Bibcode : 1997FEBSL.402...17D . doi : 10.1016/S0014-5793(96)01466-4 . PMID 9013849 .
- ^ a b Griffith M, Ala P, Yang DS, Hon WC, Moffatt BA (Oktober 1992). „Endogen in Winterroggenblättern produziertes Frostschutzprotein“ . Plant Physiology . 100 (2): 593–6 . doi : 10.1104/pp.100.2.593 . PMC 1075599. PMID 16653033 .
- ^ a b c Griffith M, Yaish MW (August 2004). „Antifrostproteine in überwinternden Pflanzen: Eine Geschichte zweier Aktivitäten“. Trends in Plant Science . 9 (8): 399–405 . Bibcode : 2004TPS.....9..399G . doi : 10.1016/j.tplants.2004.06.007 . PMID 15358271 .
- ^ Liou YC, Tocilj A, Davies PL, Jia Z (Juli 2000). „Mimikry der Eisstruktur durch Oberflächenhydroxylgruppen und Wasser eines Beta-Helix-Antifrostproteins“. Nature . 406 ( 6793): 322–4 . Bibcode : 2000Natur.406..322L . doi : 10.1038/35018604 . PMID 10917536. S2CID 4385352 .
- ^ Hakim A, Nguyen JB, Basu K, Zhu DF, Thakral D, Davies PL, et al. (April 2013). „Kristallstruktur eines Insekten-Frostschutzproteins und ihre Bedeutung für die Eisbindung“ . The Journal of Biological Chemistry . 288 (17): 12295–304 . doi : 10.1074 / jbc.M113.450973 . PMC 3636913. PMID 23486477 .
- ^ Lin FH, Davies PL, Graham LA (Mai 2011). „Das Thr- und Ala-reiche hyperaktive Frostschutzprotein aus dem Spanner faltet sich zu einer flachen, seidenartigen β-Helix“. Biochemistry . 50 (21): 4467–78 . doi : 10.1021/bi2003108 . PMID 21486083 .
- Basu K, Wasserman SS, Jeronimo PS, Graham LA, Davies PL (April 2016). „Die intermediäre Aktivität des Frostschutzproteins der Zuckmücke beruht auf einer tyrosinreichen Eisbindungsstelle und einer atypischen Affinität zu Eisflächen . “ The FEBS Journal . 283 (8): 1504–15 . doi : 10.1111/febs.13687 . PMID 26896764. S2CID 37207016 .
- ^ a b Graham LA, Davies PL (Oktober 2005). „Glycinreiche Frostschutzproteine aus Schneeflöhen“. Science . 310 (5747): 461. doi : 10.1126 / science.1115145 . PMID 16239469. S2CID 30032276 . *Laienverständliche Zusammenfassung in: „Neues Frostschutzprotein in Flöhen entdeckt könnte längere Lagerung von Transplantationsorganen ermöglichen“ . ScienceDaily . 21. Oktober 2005.
- ^ Pentelute BL, Gates ZP, Tereshko V, Dashnau JL, Vanderkooi JM, Kossiakoff AA , Kent SB (Juli 2008). „Röntgenstruktur des Schneefloh-Antifrostproteins, bestimmt durch racemische Kristallisation synthetischer Protein-Enantiomere“ . Journal of the American Chemical Society . 130 (30): 9695–701 . Bibcode : 2008JAChS.130.9695P . doi : 10.1021 / ja8013538 . PMC 2719301. PMID 18598029 .
- ^ a b Walters KR, Serianni AS, Sformo T, Barnes BM, Duman JG (Dezember 2009). „Ein nicht-proteinartiges, thermische Hysterese erzeugendes Xylomannan-Frostschutzmittel im frosttoleranten Alaska-Käfer Upis ceramboides“ . Proceedings of the National Academy of Sciences of the United States of America . 106 ( 48): 20210–5 . Bibcode : 2009PNAS..10620210W . doi : 10.1073 / pnas.0909872106 . PMC 2787118. PMID 19934038. S2CID 25741145 .
- ^ a b c d Bayer-Giraldi M, Uhlig C, John U, Mock T, Valentin K (April 2010). „Antifreeze-Proteine in polaren Meereis-Diatomeen: Diversität und Genexpression in der Gattung Fragilariopsis“. Environmental Microbiology . 12 (4): 1041–52 . Bibcode : 2010EnvMi..12.1041B . doi : 10.1111/j.1462-2920.2009.02149.x . PMID 20105220 .
- Raymond JA, Fritsen C, Shen K (August 2007). „Ein eisbindendes Protein aus einem antarktischen Meereisbakterium“. FEMS Microbiology Ecology . 61 (2): 214–21 . Bibcode : 2007FEMME..61..214R . doi : 10.1111/j.1574-6941.2007.00345.x . PMID 17651136 .
- ^ Kiko R (April 2010). „Erwerb von Frostschutz bei einem Meereiskrebs durch horizontalen Gentransfer?“. Polar Biology . 33 (4): 543–556 . Bibcode : 2010PoBio..33..543K . doi : 10.1007/s00300-009-0732-0 . S2CID 20952951 .
- ^ Raymond JA, Christner BC, Schuster SC (September 2008). „Ein bakterielles Eisbindungsprotein aus dem Wostok-Eiskern“. Extremophiles . 12 ( 5): 713–717 . doi : 10.1007/s00792-008-0178-2 . PMID 18622572. S2CID 505953 .
- ^ Xiao N, Inaba S, Tojo M, Degawa Y, Fujiu S, Kudoh S, Hoshino T (22.12.2010). „Frostschutzaktivitäten verschiedener aus der Antarktis isolierter Pilze und Stramenopila“ . Nordamerikanische Pilze . 5 : 215–220 . doi : 10.2509/naf2010.005.00514 (inaktiv am 16. Juli 2025).
{{cite journal}}: CS1 Wartung: DOI inaktiv ab Juli 2025 ( Link ) - ^ Hoshino T, Kiriaki M, Ohgiya S, Fujiwara M, Kondo H, Nishimiya Y, Yumoto I, Tsuda S (Dezember 2003). „Antifreeze-Proteine aus Schneeschimmelpilzen“. Canadian Journal of Botany . 81 (12): 1175–81 . Bibcode : 2003CaJB...81.1175H . doi : 10.1139/b03-116 .
- ^ Raymond JA, Janech MG (April 2009). „Eisbindende Proteine aus Enoki- und Shiitake-Pilzen“. Cryobiology . 58 (2): 151–156 . doi : 10.1016/j.cryobiol.2008.11.009 . PMID 19121299 .
- ^ Hanada Y, Nishimiya Y, Miura A, Tsuda S, Kondo H (August 2014). „Hyperaktives Frostschutzprotein aus dem antarktischen Meereisbakterium Colwellia sp. besitzt eine zusammengesetzte Eisbindungsstelle ohne repetitive Sequenzen“ . The FEBS Journal . 281 (16): 3576–90 . doi : 10.1111/ febs.12878 . PMID 24938370. S2CID 8388070 .
- ^ Do H, Kim SJ, Kim HJ, Lee JH (April 2014). „Strukturbasierte Charakterisierung und Frostschutzeigenschaften eines hyperaktiven Eisbindungsproteins aus dem antarktischen Bakterium Flavobacterium frigoris PS1“. Acta Crystallographica. Section D, Biological Crystallography . 70 (Pt 4): 1061–73 . doi : 10.1107/S1399004714000996 . PMID 24699650 .
- ^ a b c Mangiagalli M, Bar-Dolev M, Tedesco P, Natalello A, Kaleda A, Brocca S, et al. (Januar 2017). „Kryo-schützende Wirkung eines eisbindenden Proteins aus antarktischen Bakterien“. Das FEBS Journal . 284 (1): 163–177 . doi : 10.1111/febs.13965 . HDL : 11581/397803 . PMID 27860412 . S2CID 43854468 .
- ^ Barker PF, Thomas E (Juni 2004). „Ursprung, Signatur und paläoklimatischer Einfluss des Antarktischen Zirkumpolarstroms“. Earth-Science Reviews . 66 (1): 143–162 . Bibcode : 2004ESRv...66..143B . doi : 10.1016/j.earscirev.2003.10.003 . ISSN 0012-8252 .
- ^ a b Eastman JT (Januar 2005). „Die Natur der Diversität antarktischer Fische“. Polar Biology . 28 (2): 93–107 . Bibcode : 2005PoBio..28...93E . doi : 10.1007/s00300-004-0667-4 . ISSN 1432-2056 . S2CID 1653548 .
- ^ a b Chen L, DeVries AL, Cheng CH (April 1997). „Konvergente Evolution von Frostschutzglykoproteinen bei antarktischen Notothenioiden und arktischem Kabeljau“ . Proceedings of the National Academy of Sciences of the United States of America . 94 (8): 3817–3822 . Bibcode : 1997PNAS...94.3817C . doi : 10.1073/pnas.94.8.3817 . PMC 20524. PMID 9108061 .
- ^ a b Wang, Sen; Amornwittawat, Natapol; Juwita, Vonny; Kao, Yu; Duman, John G.; Pascal, Tod A.; Goddard, William A.; Wen, Xin (13.10.2009). „Arginin, ein Schlüsselrest für die Steigerung der Wirksamkeit eines Frostschutzproteins des Käfers Dendroides canadensis“ . Biochemistry . 48 ( 40): 9696–9703 . doi : 10.1021/bi901283p . ISSN 0006-2960 . PMC 2760095. PMID 19746966 .
- ^ Wang, Lei; Duman, John G. (31.01.2006). „Ein Thaumatin-ähnliches Protein aus Larven des Käfers Dendroides canadensis erhöht die Aktivität von Frostschutzproteinen“. Biochemistry . 45 (4): 1278–1284 . doi : 10.1021/bi051680r . ISSN 0006-2960 . PMID 16430224 .
- Amornwittawat , Natapol; Wang, Sen; Duman, John G.; Wen, Xin (Dezember 2008). „ Polycarboxylate erhöhen die Aktivität des Frostschutzproteins von Käfern“ . Biochimica et Biophysica Acta (BBA) – Proteins and Proteomics . 1784 (12): 1942–1948 . doi : 10.1016 /j.bbapap.2008.06.003 . ISSN 0006-3002 . PMC 2632549. PMID 18620083 .
- Li , N.; Andorfer, C. A.; Duman, J. G. (August 1998). „Verbesserung der Aktivität von Insekten-Frostschutzproteinen durch niedermolekulare Substanzen“ . The Journal of Experimental Biology . 201 ( Teil 15 ): 2243–2251 . Bibcode : 1998JExpB.201.2243L . doi : 10.1242/jeb.201.15.2243 . ISSN 0022-0949 . PMID 9662495 .
- ^ a b Graham LA, Davies PL (Juni 2021). „Horizontaler Gentransfer bei Wirbeltieren: Eine merkwürdige Geschichte“ . Trends in Genetics . 37 (6): 501–503 . doi : 10.1016 / j.tig.2021.02.006 . ISSN 0168-9525 . PMID 33714557. S2CID 232232148 .
- ^ Chen L, DeVries AL, Cheng CH (April 1997). „Konvergente Evolution von Frostschutzglykoproteinen bei antarktischen Notothenioiden und arktischem Kabeljau“ . Proceedings of the National Academy of Sciences of the United States of America . 94 (8): 3817–22 . Bibcode : 1997PNAS...94.3817C . doi : 10.1073/pnas.94.8.3817 . PMC 20524. PMID 9108061 .
- Raymond JA, Lin Y, DeVries AL (Juli 1975). „Glykoprotein- und Protein-Frostschutzmittel in zwei alaskischen Fischen“. The Journal of Experimental Zoology . 193 (1): 125–130 . Bibcode : 1975JEZ...193..125R . doi : 10.1002/jez.1401930112 . PMID 1141843 .
- ^ Hargens AR (April 1972). „Gefrierresistenz bei Polarfischen“. Science . 176 (4031): 184–186 . Bibcode : 1972Sci...176..184H . doi : 10.1126/science.176.4031.184 . PMID 17843537. S2CID 45112534 .
- Feeney RE , Yeh Y (1978-01-01). Anfinsen CB, Edsall JT, Richards FM (Hrsg.). „Antifreeze proteins from fish bloods“. Advances in Protein Chemistry . 32. Academic Press: 191–282 . doi : 10.1016/s0065-3233(08 ) 60576-8 . ISBN 978-0-12-034232-7PMID 362870 .
- ^ Graether, Steffen P.; Sykes, Brian D. (14.07.2004). „Kälteüberleben bei frostempfindlichen Insekten: Struktur und Funktion von β-helikalen Frostschutzproteinen“ . European Journal of Biochemistry . 271 (16): 3285–3296 . doi : 10.1111/j.1432-1033.2004.04256.x . PMID 15291806 .
- ^ Xiao, Nan; Suzuki, Keita; Nishimiya, Yoshiyuki; Kondo, Hidemasa; Miura, Ai; Tsuda, Sakae; Hoshino, Tamotsu (Januar 2010). „Vergleich der funktionellen Eigenschaften zweier Pilz-Frostschutzproteine aus Antarctomyces psychrotrophicus und Typhula ishikariensis: Frostschutzprotein aus Schlauchpilzen“ . FEBS-Journal . 277 (2): 394–403 . doi : 10.1111/j.1742-4658.2009.07490.x . PMID 20030710 . S2CID 3529668 .
- Raymond JA, DeVries AL (Juni 1977). „Adsorptionshemmung als Mechanismus der Gefrierresistenz bei Polarfischen“ . Proceedings of the National Academy of Sciences of the United States of America . 74 (6): 2589–93 . Bibcode : 1977PNAS...74.2589R . doi : 10.1073 / pnas.74.6.2589 . PMC 432219. PMID 267952 .
- Raymond JA, Wilson P, DeVries AL (Februar 1989). „Hemmung des Wachstums nichtbasaler Ebenen in Eis durch Frostschutzmittel für Fische“ . Proceedings of the National Academy of Sciences of the United States of America . 86 (3): 881–5 . Bibcode : 1989PNAS...86..881R . doi : 10.1073/pnas.86.3.881 . PMC 286582. PMID 2915983 .
- ^ Yang DS, Hon WC, Bubanko S, Xue Y, Seetharaman J, Hew CL, Sicheri F (Mai 1998). „Identifizierung der Eisbindungsfläche eines Frostschutzproteins vom Typ III mit einem „Flachheitsfunktions“-Algorithmus“ . Biophysical Journal . 74 (5): 2142–51 . Bibcode : 1998BpJ....74.2142Y . doi : 10.1016/S0006-3495(98) 77923-8 . PMC 1299557. PMID 9591641 .
- Knight CA, Cheng CC, DeVries AL (Februar 1991). „Adsorption von alpha-helikalen Frostschutzpeptiden an spezifischen Eiskristalloberflächen“ . Biophysical Journal . 59 (2): 409–18 . Bibcode : 1991BpJ....59..409K . doi : 10.1016/ S0006-3495 (91)82234-2 . PMC 1281157. PMID 2009357 .
- ^ Haymet AD, Ward LG, Harding MM, Knight CA (Juli 1998). „Valin-substituiertes Winterflunder-‚Frostschutzmittel‘: Erhaltung der Eiswachstumshysterese“ . FEBS Letters . 430 (3): 301–6 . Bibcode : 1998FEBSL.430..301H . doi : 10.1016/ S0014-5793 (98)00652-8 . PMID 9688560. S2CID 42371841 .
- ^ a b c Chou KC (Januar 1992). „Energieoptimierte Struktur des Frostschutzproteins und sein Bindungsmechanismus“. Journal of Molecular Biology . 223 (2): 509–17 . doi : 10.1016/0022-2836(92)90666-8 . PMID 1738160 .
- ^ DeVries AL, Wohlschlag DE (März 1969). „Gefrierresistenz bei einigen antarktischen Fischen“. Science . 163 ( 3871): 1073–5 . Bibcode : 1969Sci...163.1073D . doi : 10.1126/science.163.3871.1073 . PMID 5764871. S2CID 42048517 .
- ^ DeVries AL, Komatsu SK, Feeney RE (Juni 1970). „Chemische und physikalische Eigenschaften von gefrierpunktsenkenden Glykoproteinen aus antarktischen Fischen“ . The Journal of Biological Chemistry . 245 (11): 2901–8 . doi : 10.1016/S0021-9258(18)63073-X . PMID 5488456 .
- ^ Urrutia ME, Duman JG, Knight CA (Mai 1992). „Pflanzenthermische Hystereseproteine“. Biochimica et Biophysica Acta (BBA) – Proteinstruktur und molekulare Enzymologie . 1121 ( 1– 2): 199– 206. doi : 10.1016/0167-4838(92)90355-h . PMID 1599942 .
- ^ Duman JG, Olsen TM (1993). „Thermische Hystereseproteinaktivität in Bakterien, Pilzen und phylogenetisch diversen Pflanzen“ . Cryobiology . 30 (3): 322–328 . doi : 10.1006/cryo.1993.1031 .
- ^ Clarke CJ, Buckley SL, Lindner N (2002). „Eisstrukturierende Proteine – eine neue Bezeichnung für Frostschutzproteine“. Cryo Letters . 23 (2): 89–92 . PMID 12050776 .
- ^ Bressanini D. "Gelato OGM. Ma quando mai! Anche il formaggio allora..." Scienza in cucina . L'Espresso . Abgerufen am 6. Juli 2022 .
- ^ Merrett N (31. Juli 2007). „Unilever-Protein erhält grünes Licht in Großbritannien“ . DairyReporter .
- ^ Thorington R (18. September 2014). „Kann Eiscreme lecker und gesund sein?“ . Impact Magazine . Universität Nottingham.
- ^ Dortch E (2006). „Fischige gentechnisch veränderte Hefe zur Herstellung von Eiscreme“ . Network of Concerned Farmers . Archiviert vom Original am 14. Juli 2011. Abgerufen am 9. Oktober 2006 .
- ^ Moskin J (26. Juli 2006). „Cremiges, gesünderes Eis? Wo ist der Haken?“ . The New York Times .
- ^ Regand A, Goff HD (Januar 2006). „Hemmung der Eisrekristallisation in Speiseeis durch Eisstrukturproteine aus Winterweizengras“ . Journal of Dairy Science . 89 (1): 49–57 . doi : 10.3168/jds.S0022-0302(06)72068-9 . PMID 16357267 .
- ^ Celik Y, Graham LA, Mok YF, Bar M, Davies PL, Braslavsky I (2010). „Überhitzung von Eis in Gegenwart von Eisbindungsproteinen“ . Biophysical Journal . 98 (3): 245a. Bibcode : 2010BpJ....98..245C . doi : 10.1016/j.bpj.2009.12.1331 .*Laienverständliche Zusammenfassung in: „Antifrostproteine können das Schmelzen von Eis stoppen, neue Studie findet“ . Physorg.com . 1. März 2010.
- ^ Marc C (24. Juni 2021). „Des virus pour imiter les protéines antigel/“ .
Weiterführende Literatur
- Haymet AD, Ward LG, Harding MM (1999). „Winterflunder-‚Antifrost‘-Proteine: Synthese und Hemmung des Eiswachstums durch Analoga, die die relative Bedeutung hydrophober und Wasserstoffbrückenbindungen untersuchen“. Journal of the American Chemical Society . 121 (5): 941–948 . doi : 10.1021/ja9801341 . ISSN 0002-7863 .
- Sicheri F, Yang DS (Juni 1995). „Eisbindungsstruktur und -mechanismus eines Frostschutzproteins aus der Winterflunder“. Nature . 375 (6530): 427–31 . Bibcode : 1995Natur.375..427S . doi : 10.1038 / 375427a0 . hdl : 11375/7005 . PMID 7760940. S2CID 758990 .
Externe Links
- Kalte, harte Tatsache: Fisch-Frostschutzmittel wird in der Bauchspeicheldrüse produziert
- Antifrostproteine: Molekül des Monats (Archiviert am 04.11.2015 in der Wayback Machine) , von David Goodsell, RCSB Protein Data Bank
- Übersicht aller in der PDB verfügbaren Strukturinformationen für UniProt : Q9GTP0 (Thermal hysteresis or Antifreeze protein) in der PDBe-KB .