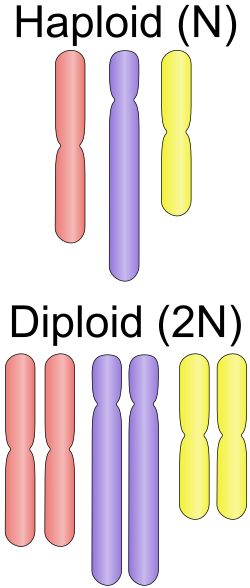
Ploidie ( / ˈ pl ɔɪ di / ) bezeichnet die Anzahl vollständiger Chromosomensätze in einer Zelle und somit die Anzahl möglicher Allele für autosomale und pseudoautosomale Gene . Hierbei bezieht sich „Chromosomensatz“ auf die Anzahl der mütterlichen bzw. väterlichen Chromosomenkopien in jedem homologen Chromosomenpaar – die natürliche Form der Chromosomen. Somatische Zellen , Gewebe und einzelne Organismen lassen sich anhand der Anzahl ihrer Chromosomensätze (des „Ploidiegrades“) beschreiben: monoploid (1 Satz), diploid (2 Sätze), triploid (3 Sätze), tetraploid (4 Sätze), pentaploid (5 Sätze) , hexaploid (6 Sätze), heptaploid [ 2 ] oder septaploid [ 3 ] (7 Sätze) usw. Der Oberbegriff polyploid wird häufig für Zellen mit drei oder mehr Chromosomensätzen verwendet. [ 4 ] [ 5 ]
Nahezu alle sich sexuell fortpflanzenden Organismen bestehen aus somatischen Zellen, die diploid oder höher sind. Der Ploidiegrad kann jedoch zwischen verschiedenen Organismen, zwischen verschiedenen Geweben innerhalb desselben Organismus und in verschiedenen Lebensstadien stark variieren. Die Hälfte aller bekannten Pflanzengattungen umfasst polyploide Arten, und etwa zwei Drittel aller Gräser sind polyploid. [ 6 ] Viele Tiere sind einheitlich diploid, obwohl Polyploidie bei Wirbellosen, Reptilien und Amphibien häufig vorkommt. Bei manchen Arten variiert der Ploidiegrad zwischen Individuen derselben Art (wie bei den sozialen Insekten ), und bei anderen können ganze Gewebe und Organsysteme polyploid sein, obwohl der Rest des Körpers diploid ist (wie in der Säugetierleber [ 7 ] ) . Für viele Organismen, insbesondere Pflanzen und Pilze, sind Veränderungen des Ploidiegrades zwischen den Generationen wichtige Triebkräfte der Artbildung . Bei Säugetieren und Vögeln sind Ploidiegradveränderungen in der Regel tödlich. [ 8 ] Es gibt jedoch Hinweise auf Polyploidie bei Organismen, die heute als diploid gelten, was darauf hindeutet, dass Polyploidie durch aufeinanderfolgende Polyploidisierungs- und Rediploidisierungsprozesse zur evolutionären Diversifizierung von Pflanzen und Tieren beigetragen hat. [ 9 ] [ 10 ]
Der Mensch ist ein diploider Organismus und trägt normalerweise zwei vollständige Chromosomensätze in seinen Körperzellen: je einen väterlichen und mütterlichen Chromosomensatz in jedem der 23 homologen Chromosomenpaare. Dies ergibt zwei homologe Chromosomen in jedem der 23 homologen Paare, was einen vollständigen Chromosomensatz von 46 Chromosomen ergibt. Diese Gesamtzahl der einzelnen Chromosomen (alle vollständigen Sätze eingeschlossen) wird als Chromosomenzahl oder Chromosomensatz bezeichnet . Die Anzahl der Chromosomen in einem vollständigen Chromosomensatz wird als monoploide Zahl ( x ) bezeichnet. Die haploide Zahl ( n ) bezeichnet die Gesamtzahl der Chromosomen in einer Gamete (einer durch Meiose zur Vorbereitung der sexuellen Fortpflanzung entstandenen Spermien- oder Eizelle ). Unter normalen Bedingungen entspricht die haploide Chromosomenzahl genau der Hälfte der Gesamtchromosomenzahl in den Körperzellen eines Organismus, wobei jedes Chromosomenpaar aus einem väterlichen und einem mütterlichen Chromosomensatz besteht. Bei diploiden Organismen sind die monoploide und die haploide Chromosomenzahl gleich; beim Menschen beträgt sie jeweils 23. Wenn eine menschliche Keimzelle die Meiose durchläuft, teilt sich der diploide Chromosomensatz von 46 Chromosomen in zwei Hälften, wodurch haploide Gameten entstehen. Nach der Verschmelzung eines männlichen und eines weiblichen Gameten (jeweils mit einem Satz von 23 Chromosomen) bei der Befruchtung besitzt die entstehende Zygote wieder den vollständigen Chromosomensatz von 46 Chromosomen: zwei Sätze mit je 23 Chromosomen. Ein Organismus, dessen Chromosomenzahl ein Vielfaches der Anzahl in einem typischen Gameten seiner Art ist, wird als euploid bezeichnet ; bei jeder anderen Chromosomenzahl spricht man von aneuploid . Bei einer Person mit Turner-Syndrom fehlt beispielsweise ein Geschlechtschromosom (X oder Y), was zu einem Karyotyp von (45,X) anstelle des üblichen (46,XX) oder (46,XY) führt. Dies ist eine Form der Aneuploidie, und die Zellen dieser Person gelten als aneuploid mit einem (diploiden) Chromosomensatz von 45.
Etymologie
Der Begriff Ploidie ist eine Rückbildung von Haploidie und Diploidie . „Ploid“ setzt sich aus den altgriechischen Wörtern -πλόος (-plóos, „-faltig“) und -ειδής ( -eidḗs ) zusammen, abgeleitet von εἶδος ( eîdos , „Form, Ähnlichkeit“). [ a ] Die Hauptbedeutung des griechischen Wortes ᾰ̔πλόος (haplóos) ist „einzeln“ [ 11 ] , abgeleitet von ἁ- (ha-, „eins, gleich“). [ 12 ] διπλόος ( diplóos ) bedeutet „doppelt“ oder „zweifach“. Diploid bedeutet daher „doppelt geformt“ (vergleiche „humanoid“, „menschenähnlich“).
Der polnisch-deutsche Botaniker Eduard Strasburger prägte 1905 die Begriffe haploid und diploid. [ b ] Einige Autoren vermuten, dass Strasburger die Begriffe auf August Weismanns Konzeption des „id“ (oder Keimplasmas ) stützte, [ 15 ] [ 16 ] [ 17 ] daher haploid und diploid . Die beiden Begriffe gelangten durch William Henry Langs Übersetzung eines 1906 erschienenen Lehrbuchs von Strasburger und Kollegen aus dem Deutschen ins Englische . [ 18 ]
Ploidietypen
Haploid und monoploid

Der Begriff haploid wird mit zwei unterschiedlichen, aber verwandten Bedeutungen verwendet. Im allgemeinsten Sinne bezeichnet haploid das Vorhandensein der Anzahl an Chromosomensätzen, die normalerweise in einer Gamete vorkommen . [ 19 ] Da sich bei der sexuellen Fortpflanzung zwei Gameten zu einer einzigen Zygote vereinen, aus der Körperzellen entstehen, besitzen gesunde Gameten stets genau die Hälfte der Chromosomensätze, die in den Körperzellen vorhanden sind. Daher bedeutet „haploid“ in diesem Sinne, dass ein Organismus genau die Hälfte der Chromosomensätze einer Körperzelle besitzt. Nach dieser Definition kann ein Organismus, dessen Gametenzellen jeweils nur eine Kopie jedes Chromosoms (einen Chromosomensatz) enthalten, als haploid gelten, während die Körperzellen, die jeweils zwei Kopien jedes Chromosoms (zwei Chromosomensätze) enthalten, diploid sind. Dieses Schema von diploiden Körperzellen und haploiden Gameten ist im Tierreich weit verbreitet und lässt sich in Diagrammen genetischer Konzepte am einfachsten veranschaulichen. Diese Definition erlaubt jedoch auch haploide Gameten mit mehr als einem Chromosomensatz. Wie bereits erwähnt, sind Gameten per Definition haploid, unabhängig von der tatsächlichen Anzahl der enthaltenen Chromosomensätze. Ein Organismus, dessen somatische Zellen beispielsweise tetraploid sind (vier Chromosomensätze), produziert durch Meiose Gameten mit zwei Chromosomensätzen. Diese Gameten können dennoch als haploid bezeichnet werden, obwohl sie numerisch diploid sind. [ 20 ]
Eine alternative Definition von „haploid“ lautet: ein Organismus besitzt nur eine Kopie jedes Chromosoms – also genau einen Chromosomensatz. [ 21 ] In diesem Fall ist der Zellkern einer eukaryotischen Zelle nur dann haploid, wenn er einen einzigen Chromosomensatz enthält , wobei jedes Chromosom nicht Teil eines Paares ist. Analog dazu kann eine Zelle als haploid bezeichnet werden, wenn ihr Zellkern einen Chromosomensatz besitzt, und ein Organismus kann als haploid bezeichnet werden, wenn seine Körperzellen (somatischen Zellen) jeweils einen Chromosomensatz aufweisen. Nach dieser Definition würde der Begriff „haploid“ daher nicht auf die Gameten des tetraploiden Organismus im obigen Beispiel angewendet, da diese Gameten diploid sind. Der Begriff „ monoploid“ wird oft als eindeutigere Bezeichnung für einen einzelnen Chromosomensatz verwendet; nach dieser zweiten Definition sind haploid und monoploid identisch und können synonym verwendet werden.
Gameten ( Spermien und Eizellen ) sind haploide Zellen. Die von den meisten Organismen produzierten haploiden Gameten verschmelzen zu einer Zygote mit n Chromosomenpaaren, also insgesamt 2 <sup>n </sup> Chromosomen. Die Chromosomen jedes Paares, von denen eines vom Spermium und eines von der Eizelle stammt, werden als homolog bezeichnet . Zellen und Organismen mit homologen Chromosomenpaaren werden als diploid bezeichnet. Beispielsweise sind die meisten Tiere diploid und produzieren haploide Gameten. Während der Meiose wird die Chromosomenzahl der Vorläuferzellen der Geschlechtszellen halbiert, indem zufällig je ein Chromosom jedes Paares ausgewählt wird. Dies führt zu haploiden Gameten. Da sich homologe Chromosomen in der Regel genetisch unterscheiden, unterscheiden sich auch Gameten in der Regel genetisch voneinander. [ 22 ]
Alle Pflanzen sowie viele Pilze und Algen wechseln zwischen einem haploiden und einem diploiden Zustand, wobei eines der beiden Stadien stärker ausgeprägt ist als das andere. Dies wird als Generationswechsel bezeichnet . Die meisten Pilze und Algen sind während des Hauptstadiums ihres Lebenszyklus haploid, ebenso wie einige primitive Pflanzen wie Moose . Jüngere Pflanzenarten wie Nacktsamer und Bedecktsamer verbringen den Großteil ihres Lebenszyklus im diploiden Stadium. Die meisten Tiere sind diploid, jedoch sind männliche Bienen , Wespen und Ameisen haploide Organismen, da sie sich aus unbefruchteten, haploiden Eiern entwickeln, während die Weibchen (Arbeiterinnen und Königinnen) diploid sind, wodurch ihr Organismus haplodiploid ist .
In einigen Fällen gibt es Hinweise darauf, dass die n Chromosomen eines haploiden Satzes durch Duplikationen eines ursprünglich kleineren Chromosomensatzes entstanden sind. Diese „Basiszahl“ – die Anzahl der scheinbar ursprünglich einzigartigen Chromosomen in einem haploiden Satz – wird als monoploide Zahl bezeichnet [ 23 ], auch als Basis- oder Kardinalzahl [ 24 ] oder Fundamentalzahl [ 25 ] [ 26 ] . Beispielsweise stammen die Chromosomen des Weizens vermutlich von drei verschiedenen Vorfahrenarten ab , von denen jede 7 Chromosomen in ihren haploiden Gameten besaß. Die monoploide Zahl beträgt somit 7 und die haploide Zahl 3 × 7 = 21. Im Allgemeinen ist n ein Vielfaches von x . Die somatischen Zellen einer Weizenpflanze besitzen sechs Sätze mit je sieben Chromosomen: drei Sätze aus der Eizelle und drei Sätze aus dem Spermium, die zur Pflanze verschmolzen sind, was insgesamt 42 Chromosomen ergibt. Die Formel für Weizen lautet 2<sup> n</sup> = 6 <sup>x</sup> = 42, sodass die haploide Chromosomenzahl n = 21 und die monoploide Chromosomenzahl x = 7 beträgt. Die Gameten des Weizens gelten als haploid, da sie die Hälfte der genetischen Information der somatischen Zellen enthalten, aber nicht als monoploid, da sie noch drei vollständige Chromosomensätze ( n = 3<sup> x</sup> ) besitzen. [ 27 ]
Im Falle von Weizen lässt sich der Ursprung seines haploiden Chromosomensatzes von 21 Chromosomen aus drei Sätzen von je 7 Chromosomen nachweisen. Bei vielen anderen Organismen ist der Ursprung des Chromosomensatzes zwar möglicherweise auf diese Weise entstanden, aber nicht mehr eindeutig geklärt, und der monoploide Chromosomensatz wird als identisch mit dem haploiden betrachtet. Beim Menschen gilt daher x = n = 23.
Diploid
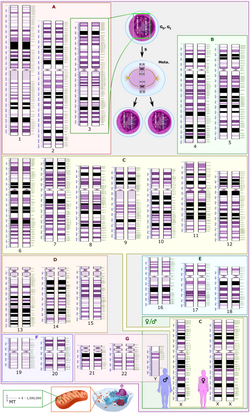
Diploid beschreibt eine Zelle oder einen Zellkern, der zwei Kopien des genetischen Materials bzw. einen vollständigen Chromosomensatz enthält, gepaart mit ihren homologen Chromosomen (Chromosomen, die die gleiche Information vom anderen Elternteil tragen). [ 28 ] Diploide Zellen besitzen zwei homologe Kopien jedes Chromosoms , üblicherweise eine von der Mutter und eine vom Vater . Alle oder nahezu alle Säugetiere sind diploide Organismen. Die vermuteten tetraploiden (mit vier Chromosomensätzen) Steppenviscacha-Ratte ( Tympanoctomys barrerae ) und Goldviscacha-Ratte ( Pipanacoctomys aureus ) [ 29 ] galten (Stand 2004) als die einzigen bekannten Ausnahmen. [ 30 ] Einige genetische Studien halten Polyploidismus bei Säugetieren jedoch für unwahrscheinlich und legen nahe, dass die Amplifikation und Dispersion repetitiver Sequenzen die große Genomgröße dieser beiden Nagetiere am besten erklärt. [ 31 ] Alle normalen diploiden Individuen weisen einen geringen Anteil polyploider Zellen auf . Menschliche diploide Zellen besitzen 46 Chromosomen (die somatische Chromosomenzahl 2n ), während menschliche haploide Gameten (Eizelle und Spermium) 23 Chromosomen ( n ) aufweisen. Auch Retroviren , die in jedem Viruspartikel zwei Kopien ihres RNA-Genoms enthalten, werden als diploid bezeichnet. Beispiele hierfür sind das humane Schaumvirus , das humane T-lymphotrope Virus und HIV . [ 32 ]
Polyploidie
Polyploidie ist der Zustand, in dem alle Zellen über mehrere Chromosomensätze zusätzlich zum Basissatz verfügen, in der Regel 3 oder mehr. Spezifische Bezeichnungen sind triploid (3 Chromosomensätze), tetraploid (4 Chromosomensätze), pentaploid (5 Chromosomensätze), hexaploid (6 Chromosomensätze), heptaploid [ 2 ] oder septaploid [ 3 ] (7 Chromosomensätze), oktoploid (8 Chromosomensätze), nonaploid (9 Chromosomensätze), dekaploid (10 Chromosomensätze), undekaploid (11 Chromosomensätze), dodekaploid (12 Chromosomensätze), tridekaploid (13 Chromosomensätze), tetradekaploid (14 Chromosomensätze) usw. [ 33 ] [ 34 ] [ 35 ] [ 36 ] Zu den höheren Ploidiegraden gehören hexadekaploid (16 Chromosomensätze), dotriacontaploid (32 Chromosomensätze) und tetrahexacontaploid (64 Chromosomensätze), [ 37 ] wobei die griechische Terminologie aus Gründen der Lesbarkeit bei höheren Ploidiegraden (z. B. „16-ploid“) möglicherweise nicht mehr verwendet wird. [ 35 ] Die Polytänchromosomen von Pflanzen und Fruchtfliegen können 1024-ploid sein. [ 38 ] [ 39 ] Die Ploidie von Systemen wie der Speicheldrüse , dem Elaiosom , dem Endosperm und dem Trophoblasten kann diesen Wert übersteigen und bis zu 1048576-ploid in den Seidendrüsen des kommerziellen Seidenspinners Bombyx mori erreichen . [ 40 ]
Die Chromosomensätze können von derselben Art oder von eng verwandten Arten stammen. Im letzteren Fall spricht man von Allopolyploiden (oder Amphidiploiden, die sich wie normale Diploide verhalten). Allopolyploide entstehen durch die Hybridisierung zweier verschiedener Arten. Bei Pflanzen geschieht dies wahrscheinlich am häufigsten durch die Paarung meiotisch unreduzierter Gameten und nicht durch diploide Hybridisierung mit anschließender Chromosomenverdopplung. [ 41 ] Das sogenannte Brassica- Dreieck ist ein Beispiel für Allopolyploidie, bei dem drei verschiedene Elternarten in allen möglichen Paarkombinationen hybridisiert sind und drei neue Arten hervorgebracht haben. [ 42 ]
Polyploidie tritt häufig bei Pflanzen, aber selten bei Tieren auf. Selbst bei diploiden Organismen sind viele Körperzellen polyploid. Dies ist auf einen Prozess namens Endoreduplikation zurückzuführen , bei dem eine Genomverdopplung ohne Mitose (Zellteilung) stattfindet . Den extremsten Fall von Polyploidie findet man bei den Schlangenfarnen ( Ophioglossum ), bei denen die Chromosomenzahl Hunderte oder, in mindestens einem Fall, sogar weit über Tausend beträgt.
Polyploide Organismen können durch Haploidisierung wieder zu einem niedrigeren Ploidiegrad zurückkehren .
Bei Bakterien und Archaeen
Polyploidie ist ein Merkmal des Bakteriums Deinococcus radiodurans [ 43 ] und des Archaebakteriums Halobacterium salinarum [ 44 ] . Diese beiden Arten sind hochresistent gegenüber ionisierender Strahlung und Austrocknung , Bedingungen, die DNA -Doppelstrangbrüche hervorrufen [ 45 ] [ 46 ] . Diese Resistenz scheint auf einer effizienten homologen Rekombinationsreparatur zu beruhen .
Variable oder unbestimmte Ploidie
Abhängig von den Wachstumsbedingungen kann die Chromosomenkopienzahl von Prokaryoten wie Bakterien zwischen 1 und 4 liegen, wobei diese Zahl üblicherweise nur einen Bruchteil angibt und die jeweils nur teilweise replizierten Chromosomenabschnitte mitzählt. Dies liegt daran, dass die Zellen unter exponentiellen Wachstumsbedingungen ihre DNA schneller replizieren können, als sie sich teilen.
Bei Ciliaten wird der Makronukleus als ampliploid bezeichnet , da nur ein Teil des Genoms amplifiziert ist. [ 47 ]
Mixoploidie
Mixoploidie bezeichnet das gleichzeitige Vorkommen zweier Zelllinien – einer diploiden und einer polyploiden – innerhalb desselben Organismus . Obwohl Polyploidie beim Menschen nicht lebensfähig ist, wurde Mixoploidie bei lebenden Erwachsenen und Kindern nachgewiesen. [ 48 ] Es gibt zwei Arten: diploid-triploide Mixoploidie, bei der einige Zellen 46 und andere 69 Chromosomen aufweisen, [ 49 ] und diploid-tetraploide Mixoploidie, bei der einige Zellen 46 und andere 92 Chromosomen besitzen. Sie ist ein wichtiges Thema der Zytologie.
Dihaploidie und Polyhaploidie
Dihaploide und polyhaploide Zellen entstehen durch Haploidisierung von Polyploiden, d. h. durch Halbierung des Chromosomensatzes. [ 50 ]
Dihaploide (die diploid sind) sind wichtig für die Selektionszüchtung tetraploider Nutzpflanzen (insbesondere Kartoffeln), da die Selektion bei Diploiden schneller vonstattengeht als bei Tetraploiden. [ 51 ] Tetraploide können aus Diploiden wiederhergestellt werden, beispielsweise durch somatische Fusion. [ 52 ]
Der Begriff „dihaploid“ wurde von Bender [ 53 ] geprägt, um die Anzahl der Genomkopien (diploid) und deren Ursprung (haploid) in einem Wort zu vereinen. In dieser ursprünglichen Bedeutung ist der Begriff etabliert [ 54 , 55 ] , wird aber auch für doppelt monoploide oder doppelt haploide Organismen verwendet , die homozygot sind und in der Genforschung eingesetzt werden [ 56 ] .
Euploidie und Aneuploidie
Euploidie ( griechisch eu , „wahr“ oder „gleichmäßig“) bezeichnet den Zustand einer Zelle oder eines Organismus mit einem oder mehreren identischen Chromosomensätzen, gegebenenfalls mit Ausnahme der geschlechtsbestimmenden Chromosomen . Beispielsweise besitzen die meisten menschlichen Zellen je zwei der 23 homologen monoploiden Chromosomen, insgesamt also 46 Chromosomen. Eine menschliche Zelle mit einem zusätzlichen Satz der 23 normalen Chromosomen (funktionell triploid) wäre euploid. Euploide Karyotypen wären folglich ein Vielfaches der haploiden Chromosomenzahl , die beim Menschen 23 beträgt. [ 57 ]
Aneuploidie bezeichnet den Zustand, bei dem ein oder mehrere Chromosomen eines normalen Chromosomensatzes fehlen oder in mehr als der üblichen Anzahl vorhanden sind (ausgenommen ist das Fehlen oder Vorhandensein vollständiger Chromosomensätze, was als Euploidie gilt). Im Gegensatz zur Euploidie ist der aneuploide Karyotyp kein Vielfaches des haploiden Chromosomensatzes. Beispiele für Aneuploidie beim Menschen sind ein zusätzliches Chromosom (wie beim Down-Syndrom , bei dem Betroffene drei Kopien des Chromosoms 21 besitzen) oder das Fehlen eines Chromosoms (wie beim Turner-Syndrom , bei dem Betroffene nur ein Geschlechtschromosom besitzen). Aneuploide Karyotypen werden mit dem Suffix -somie (anstatt -ploidie , das für euploide Karyotypen verwendet wird) bezeichnet, beispielsweise Trisomie und Monosomie .
Homoploid
Homoploid bedeutet „auf demselben Ploidiegrad“, d. h. mit der gleichen Anzahl homologer Chromosomen . Beispielsweise ist homoploide Hybridisierung eine Hybridisierung, bei der die Nachkommen denselben Ploidiegrad wie die beiden Elternarten aufweisen. Dies steht im Gegensatz zu der häufigen Situation bei Pflanzen, bei der die Chromosomenverdopplung die Hybridisierung begleitet oder kurz danach erfolgt. Ebenso steht die homoploide Artbildung im Gegensatz zur polyploiden Artbildung . [ 58 ]
Zygoidität und Azygoidität
Zygoidität ist der Zustand, in dem die Chromosomen gepaart sind und die Meiose durchlaufen können. Der zygoide Zustand einer Art kann diploid oder polyploid sein. [ 59 ] [ 60 ] Im azygoiden Zustand sind die Chromosomen ungepaart. Dies kann der natürliche Zustand einiger asexueller Arten sein oder nach der Meiose auftreten. Bei diploiden Organismen ist der azygoide Zustand monoploid. (Siehe unten für Dihaploidie.)
Sonderfälle
Mehr als ein Zellkern pro Zelle
Streng genommen bezeichnet Ploidie die Anzahl der Chromosomensätze in einem einzelnen Zellkern und nicht in der gesamten Zelle. Da in den meisten Fällen nur ein Zellkern pro Zelle vorhanden ist, spricht man üblicherweise von der Ploidie einer einzelnen Zelle. Bei Zellen mit mehreren Zellkernen sind jedoch präzisere Definitionen erforderlich. Autoren geben mitunter die Gesamtploidie aller Zellkerne innerhalb der Zellmembran eines Synzytiums an [ 40 ] , üblicherweise wird jedoch die Ploidie jedes einzelnen Zellkerns beschrieben. Beispielsweise unterscheidet man ein Pilz- Dikaryon mit zwei getrennten haploiden Zellkernen von einer diploiden Zelle, in der sich die Chromosomen einen Zellkern teilen und beliebig kombiniert werden können [ 61 ] .
Vorfahren-Ploidie-Stufen
In seltenen Fällen kann es in der Keimbahn zu einer Erhöhung des Ploidiegrades kommen , was zu polyploiden Nachkommen und letztendlich zu polyploiden Arten führen kann. Dies ist ein wichtiger evolutionärer Mechanismus bei Pflanzen und Tieren und gilt als Hauptantrieb der Artbildung . [ 9 ] Daher kann es sinnvoll sein, den Ploidiegrad einer Art oder Varietät in ihrer heutigen Fortpflanzungsphase von dem eines Vorfahren zu unterscheiden. Die Anzahl der Chromosomen im ursprünglichen (nicht-homologen) Chromosomensatz wird als monoploide Zahl ( x ) bezeichnet und unterscheidet sich von der haploiden Zahl ( n ) des Organismus in seiner heutigen Fortpflanzungsphase.
Der Gemeine Weizen ( Triticum aestivum ) ist ein Organismus, bei dem sich die Chromosomenzahlen x und n unterscheiden. Jede Pflanze besitzt insgesamt sechs Chromosomensätze (wobei wahrscheinlich zwei Sätze von jeweils einer der drei verschiedenen diploiden Arten stammen, die ihre entfernten Vorfahren sind). Die somatischen Zellen sind hexaploid, 2 <sup>n </sup> = 6x = 42 (wobei die monoploide Chromosomenzahl x = 7 und die haploide Chromosomenzahl n = 21 beträgt ). Die Gameten sind für ihre eigene Art haploid, aber triploid, mit drei Chromosomensätzen, verglichen mit einem wahrscheinlichen evolutionären Vorfahren, dem Einkornweizen .
Tetraploidie (vier Chromosomensätze, 2n = 4x ) ist bei vielen Pflanzenarten verbreitet und kommt auch bei Amphibien , Reptilien und Insekten vor . So bilden beispielsweise die Arten der Gattung Xenopus (Afrikanische Kröten) eine Ploidie-Reihe mit diploiden ( X. tropicalis , 2n=20), tetraploiden ( X. laevis , 4n=36), oktaploiden ( X. wittei , 8n=72) und dodekaploiden ( X. ruwenzoriensis , 12n=108) Arten. [ 62 ]
Über evolutionäre Zeiträume hinweg, in denen sich chromosomale Polymorphismen anhäufen, werden diese Veränderungen im Karyotyp weniger deutlich – zum Beispiel gelten Menschen im Allgemeinen als diploid, aber die 2R-Hypothese hat zwei Runden der vollständigen Genomverdopplung bei frühen Wirbeltiervorfahren bestätigt.
Haplodiploidie
Der Ploidiegrad kann auch zwischen Individuen derselben Art oder in verschiedenen Lebensstadien variieren . [ 63 ] [ 64 ] Bei manchen Insekten hängt er von der Kaste ab . Beim Menschen sind nur die Gameten haploid, aber bei vielen sozialen Insekten , darunter Ameisen , Bienen und Termiten , entwickeln sich die Männchen aus unbefruchteten Eiern, wodurch sie ihr ganzes Leben lang, auch als Erwachsene, haploid bleiben.
Bei der australischen Bulldoggenameise ( Myrmecia pilosula) , einer haplodiploiden Art, besitzen haploide Individuen ein einzelnes Chromosom, diploide Individuen hingegen zwei. [ 65 ] Bei Entamoeba variiert der Ploidiegrad innerhalb einer Population zwischen 4n und 40n. [ 66 ] Generationswechsel findet bei den meisten Pflanzen statt, wobei die Individuen ihren Ploidiegrad zwischen verschiedenen Stadien ihres sexuellen Lebenszyklus „wechseln“.
Gewebespezifische Polyploidie
Bei großen, vielzelligen Organismen sind Unterschiede im Ploidiegrad zwischen verschiedenen Geweben, Organen oder Zelllinien häufig. Da die Chromosomenzahl im Allgemeinen nur durch den spezialisierten Prozess der Meiose reduziert wird, erben und erhalten die Körperzellen die Chromosomenzahl der Zygote durch Mitose. In vielen Fällen verdoppeln Körperzellen jedoch ihre Chromosomenzahl durch Endoreduplikation als Teil der Zelldifferenzierung .
Herzpolyploidie
Beispielsweise enthalten die Herzen zweijähriger Kinder 85 % diploide und 15 % tetraploide Zellkerne, aber im Alter von 12 Jahren gleichen sich die Anteile annähernd an, und die untersuchten Erwachsenen enthielten 27 % diploide, 71 % tetraploide und 2 % oktaploide Zellkerne. [ 67 ]
Leberpolyploidie
Bei der Polyploidisierung von Hepatozyten erwerben Leberzellen ( Hepatozyten ) mehr als zwei vollständige Chromosomensätze – ein charakteristisches Merkmal von Säugetier-Hepatozyten. Bei der Geburt sind alle Hepatozyten diploid (2n), aber während der postnatalen Entwicklung – insbesondere um die Zeit des Absetzens bei Nagetieren und in der frühen Kindheit beim Menschen – durchlaufen sie eine Polyploidisierung, vorwiegend durch Zytokineseversagen . Dies führt zu zweikernigen tetraploiden (4n) oder einkernigen polyploiden Zellen. Dieser Prozess schreitet mit zunehmendem Alter fort und wird durch Insulin- / Akt-Signalisierung , Stoffwechselstörungen und zellulären Stress beeinflusst . [ 68 ]
Adaptive und ökologische Bedeutung der Variation in der Ploidie
Die Vor- und Nachteile unterschiedlicher Ploidiegrade für die Fitness werden weiterhin erforscht und diskutiert. Eine Studie, die die Karyotypen gefährdeter oder invasiver Pflanzen mit denen ihrer Verwandten verglich, ergab, dass Polyploidie im Vergleich zu Diploidie mit einem um 14 % geringeren Risiko der Gefährdung und einer um 20 % höheren Wahrscheinlichkeit der Invasion einhergeht. [ 69 ] Polyploidie kann mit erhöhter Vitalität und Anpassungsfähigkeit verbunden sein. [ 70 ] Einige Studien deuten darauf hin, dass die Selektion bei Wirtsarten eher Diploidie und bei Parasitenarten eher Haploidie begünstigt. [ 71 ] Polyploidisierung ist jedoch mit einem Anstieg des Gehalts an transponierbaren Elementen [ 72 ] [ 73 ] und einer abgeschwächten reinigenden Selektion rezessiver schädlicher Allele verbunden . [ 74 ] [ 75 ]
Wenn eine Keimzelle mit einer ungeraden Anzahl an Chromosomen die Meiose durchläuft, können die Chromosomen nicht gleichmäßig auf die Tochterzellen verteilt werden, was zu aneuploiden Gameten führt. Triploide Organismen sind beispielsweise in der Regel steril. Daher wird Triploidie häufig in der Landwirtschaft genutzt, um kernlose Früchte wie Bananen und Wassermelonen zu erzeugen. Führt die Befruchtung menschlicher Gameten zu drei Chromosomensätzen, spricht man vom Triploidie-Syndrom . [ 76 ]
Bei einzelligen Organismen besagt die Hypothese der Nährstofflimitierung durch Ploidie , dass Nährstoffmangel die Haploidie gegenüber höheren Ploidiegraden begünstigen sollte. Diese Hypothese beruht auf dem höheren Oberflächen-Volumen-Verhältnis von Haploiden, welches die Nährstoffaufnahme erleichtert und somit das interne Nährstoff-Bedarfs-Verhältnis erhöht. Mable (2001) fand jedoch für Saccharomyces cerevisiae einen Widerspruch zu dieser Hypothese, da haploide Organismen unter nährstoffreichen Bedingungen schneller wachsen als diploide. Die Hypothese der Nährstofflimitierung durch Ploidie wurde auch von Gerstein et al. (2017) an haploiden, diploiden und polyploiden Pilzen getestet. Das Ergebnis ist komplexer: Einerseits wird unter Phosphor- und anderen Nährstofflimitierungen erwartungsgemäß eine niedrigere Ploidiestufe selektiert. Andererseits wird unter normalen Nährstoffbedingungen oder bei alleiniger Stickstofflimitierung eine höhere Ploidiestufe selektiert. Somit wird die NLH – und ganz allgemein die Vorstellung, dass Haploidie durch härtere Bedingungen selektiert wird – durch diese Ergebnisse in Zweifel gezogen. [ 77 ]
Ältere Genomverdopplungen wurden ebenfalls untersucht. Erst 2015 wurde die uralte Genomverdopplung in Bäckerhefe als Allopolyploid nachgewiesen (Marcet-Houben und Gabaldón 2015). Es ist weiterhin ungeklärt, warum es nicht mehr Polyploidieereignisse bei Pilzen gibt und welche Rolle Neopolyploidie und Mesopolyploidie in der Pilzgeschichte spielen . [ 77 ]
Weniger effiziente natürliche Selektion in diploidem Gewebe im Vergleich zu haploidem Gewebe
Das Konzept, dass Gene eines Organismus, die ausschließlich im diploiden Stadium exprimiert werden, einer weniger effizienten natürlichen Selektion unterliegen als Gene, die im haploiden Stadium exprimiert werden, wird als „Maskierungstheorie“ bezeichnet. [ 78 ] Belege für diese Maskierungstheorie wurden in Studien an der einzelligen Hefe Saccharomyces cerevisiae gefunden . [ 79 ] Zur weiteren Unterstützung der Maskierungstheorie wurde für die Pflanze Waldkiefer (Pinus sylvestris) eine starke reinigende Selektion in haploiden gewebespezifischen Genen nachgewiesen . [ 78 ]
Glossar der Ploidiezahlen
| Begriff | Beschreibung |
|---|---|
| Ploidiezahl | Anzahl der Chromosomensätze |
| Monoploide Zahl ( x ) | Anzahl der Chromosomen in einem vollständigen Satz |
| Chromosomenzahl | Gesamtzahl der Chromosomen in allen Sätzen zusammen |
| Zygotische Zahl | Anzahl der Chromosomen in zygotischen Zellen |
| Haploide oder Gametenzahl ( n ) | Anzahl der in den Gameten gefundenen Chromosomen |
| Diploide Zahl | Chromosomenzahl eines diploiden Organismus |
| Tetraploide Anzahl | Chromosomenzahl eines tetraploiden Organismus |
Die Kartoffel ( Solanum tuberosum ) ist ein Beispiel für einen tetraploiden Organismus mit vier Chromosomensätzen. Bei der sexuellen Fortpflanzung erbt jede Kartoffelpflanze zwei Sätze mit je 12 Chromosomen vom Pollenspender und zwei Sätze mit je 12 Chromosomen vom Samenanlagenspender. Zusammen ergeben diese vier Sätze einen vollständigen Chromosomensatz von 48. Die haploide Chromosomenzahl (die Hälfte von 48) beträgt 24. Die monoploide Chromosomenzahl entspricht der Gesamtchromosomenzahl geteilt durch den Ploidiegrad der somatischen Zellen: 48 Chromosomen geteilt durch einen Ploidiegrad von 4 ergibt eine monoploide Chromosomenzahl von 12. Daher sind die monoploide Chromosomenzahl (12) und die haploide Chromosomenzahl (24) in diesem Beispiel unterschiedlich. [ 80 ]
Kommerzielle Kartoffelkulturen (wie auch viele andere Nutzpflanzen) werden üblicherweise vegetativ (durch ungeschlechtliche Vermehrung mittels Mitose) vermehrt [ 81 ]. Dabei entstehen neue Individuen aus einer einzigen Elternpflanze, ohne Beteiligung von Gameten und Befruchtung. Alle Nachkommen sind genetisch identisch, sowohl untereinander als auch mit der Elternpflanze, einschließlich der Chromosomenzahl. Die Eltern dieser vegetativen Klone können zwar haploide Gameten zur Vorbereitung auf die geschlechtliche Fortpflanzung produzieren, diese werden jedoch nicht zur Erzeugung der vegetativen Nachkommen auf diesem Weg verwendet.
Konkrete Beispiele
| Spezies | Ploidie | Anzahl der Chromosomen |
|---|---|---|
| Eucalyptus spp. | Diploid | 2 x = 22 |
| Banane ( Musa spp.) | Triploid | 3 x = 33 |
| Coffea arabica | Tetraploid | 4 x = 44 |
| Sequoia sempervirens | Hexaploid | 6 x = 66 |
| Opuntia ficus-indica | Oktoploid | 8 x = 88 |
| Spezies | Anzahl der Chromosomen | Ploidiezahl |
|---|---|---|
| Essig/Fruchtfliege | 8 | 2 |
| Weizen | 14, 28 oder 42 | 2, 4 oder 6 |
| Krokodil | 32, 34 oder 42 | 2 |
| Apfel | 34, 51 oder 68 | 2, 3 oder 4 |
| Menschlich | 46 | 2 |
| Pferd | 64, 65 oder 66 | 2 |
| Huhn | 78 | 2 |
| Goldfisch | 100 oder mehr | 2 oder polyploid |
Anmerkungen
- ^ Vergleiche die Etymologie von Tupel , vom lateinischen Wort für "-faltig".
- ^ Der Originaltext auf Deutsch lautet wie folgt: „Schließlich wäre es vielleicht erwünscht, wenn den Bezeichnungen Gametophyt und Sporophyt, die sich allein nur auf Pflanzen mit einfacher und mit doppelter Chromosomenzahl anwenden lassen, solche zur Seite gestellt würden, welche auch für das Tierreich passen. Ich erlaube mir zu diesem Zweck die Worte Haploid und Diploid, bezw. haploidische und diploidische Generation vorzuschlagen.“ [ 13 ] [ 14 ]
Referenzen
- ^ Daniel Hartl (2011). Grundlagen der Genetik: Eine genomische Perspektive . Jones & Bartlett Learning. S. 177. ISBN 978-0-7637-7364-9Die
- ^ a b U. R. Murty (1973). „Morphologie von Pachytänchromosomen und ihre Bedeutung für die Natur der Polyploidie in den zytologischen Rassen von Apluda mutica L.“ Genetica . 44 (2): 234–243 . doi : 10.1007/bf00119108 . S2CID 45850598 .
- ^ a b Tuguo Tateoka (Mai 1975). „Ein Beitrag zur Taxonomie des Agrostis mertensii - flaccida- Komplexes (Poaceae) in Japan“. Journal of Plant Research . 88 (2): 65–87 . Bibcode : 1975JPlR...88...65T . doi : 10.1007/bf02491243 . S2CID 38029072 .
- ^ Rieger, R.; Michaelis, A.; Green, MM (1976). Glossar der Genetik und Zytogenetik: Klassisch und Molekular (4. Aufl.). Berlin/Heidelberg: Springer-Verlag. S. 434. doi : 10.1007/978-3-642-96327-8 . ISBN 978-3-540-07668-1. S2CID 10163081 .
- ^ Darlington, CD (Cyril Dean) (1937). Neuere Fortschritte in der Zytologie . Philadelphia: P. Blakiston's son & co. S. 60.
- ^ D. Peter Snustad; Michael J. Simmons (2012). Grundlagen der Genetik, 6. Auflage . John Wiley & Sons. S. 115. ISBN 978-0-470-90359-9Die
- ^ R. Donne; M. Saroul-Aïnama; P. Cordier; S. Celton-Morizur; C. Desdouets (2020). „Polyploidie in der Leberentwicklung, Homöostase und Erkrankung“. Nature Reviews Gastroenterology & Hepatology . 17 : 391–405 . doi : 10.1038/s41575-020-0284-x .
- ^ Otto, Sarah P. (2007). „ Die evolutionären Folgen der Polyploidie“ . Cell . 131 (3): 452–462 . doi : 10.1016/j.cell.2007.10.022 . ISSN 0092-8674 . PMID 17981114. S2CID 10054182 .
- ^ a b Mable, BK (2004). "„Warum Polyploidie bei Tieren seltener ist als bei Pflanzen: Mythen und Mechanismen“ . Biological Journal of the Linnean Society . 82 (4): 453–466 . doi : 10.1111/j.1095-8312.2004.00332.x . ISSN 0024-4066 .
- ^ Madlung, A (2012). „ Polyploidie und ihre Auswirkungen auf den evolutionären Erfolg: Alte Fragen neu betrachtet mit neuen Werkzeugen“ . Heredity . 110 (2): 99–104 . doi : 10.1038/hdy.2012.79 . ISSN 0018-067X . PMC 3554449. PMID 23149459 .
- ^ „Griechisches Wortlernwerkzeug“ . www.perseus.tufts.edu .
- ^ „Griechisches Wortlernwerkzeug“ . www.perseus.tufts.edu .
- ^ Straßburger, Eduard; Allen, Charles E.; Miyake, Kilchi; Overten, James B. (1905). „Histologische Beiträge zur Vererbungsfrage“ . Jahrbücher für wissenschaftliche Botanik . 42 : 62 . Abgerufen am 11.03.2017 .
- ^ Töpfer, Georg (2011). Historisches Worterbuch der Biologie – Geschichte und Theorie der biologischen Grundbegriffe . Stuttgart: JB Metzler'sche Verlagsbuchhandlung und Carl Ernst Poeschel Verlag GmbH. P. 169. ISBN 978-3-476-02317-9Die
- ^ Battaglia E (2009). „Caryonem-Alternative zum Chromosom und eine neue karyologische Nomenklatur“ (PDF) . Caryologia . 62 (4): 48.
- ^ David Haig (2008). „Homologer versus antithetischer Generationswechsel und der Ursprung der Sporophyten“ (PDF) . The Botanical Review . 74 (3): 395–418 . Bibcode : 2008BotRv..74..395H . doi : 10.1007/s12229-008-9012-x . S2CID 207403936 .
- ^ Bennett, Michael D. (2004). „Biologische Relevanz der Polyploidie: Ökologie und Genomik“ . Biological Journal of the Linnean Society . 82 (4): 411–423 . doi : 10.1111/j.1095-8312.2004.00328.x .
- ^ Straßburger, E.; Noll, F.; Schenck, H.; Karsten, G. 1908. Ein Lehrbuch der Botanik , 3. englische Ausgabe. (1908) [1] , rev. mit der 8. deutschen Aufl. (1906) [2] , Übersetzung von WH Lang aus dem Lehrbuch der Botanik für Hochschulen . Macmillan, London.
- ^ „MGI-Glossar“ . Mouse Genome Informatics . Bar Harbor, Maine: The Jackson Laboratory . Abgerufen am 6. Juli 2019 .
- ^ „Khan Academy“ . www.khanacademy.org . Abgerufen am 23.12.2025 .
- ^ „Sprechendes Glossar genetischer Begriffe“ . Nationales Forschungsinstitut für das menschliche Genom . Abgerufen am 6. Juli 2019 .
- ^ „Homologe Chromosomen“ . Genomik-Bildungsprogramm . 23. September 2021. Abgerufen am 10. März 2023 .
- ^ Langlet, 1927.
- ^ Winge, 1917.
- ^ Manton, 1932.
- ^ Fabbri F (1963). „Primo Supplemento alle Tavole Cromosomiche delle Pteridophyta von Alberto Chiarugi“ . Karyologie . 16 : 237–335 .
- ^ „Vorlesung 10: Veränderungen der Chromosomenzahl“ (PDF) . Mcb.berkeley.edu . Abgerufen am 10.03.2022 .
- ^ „Diploide Definition“ . Biologie-Wörterbuch . 7. Januar 2018. Abgerufen am 28. Januar 2025 .
- ^ Gallardo MH, González CA, Cebrián I (2006). „Molekulare Zytogenetik und Allotetraploidie bei der roten Vizcacha-Ratte, Tympanoctomys barrerae (Rodentia, Octodontidae)]“ . Genomik . 88 (2): 214–221 . doi : 10.1016/j.ygeno.2006.02.010 . HDL : 10533/178085 . PMID 16580173 .
- ^ Gallardo MH; et al. (2004). „Genomverdopplungen bei südamerikanischen Wüstennagetieren (Octodontidae)“ . Biological Journal of the Linnean Society . 82 (4): 443–451 . doi : 10.1111/j.1095-8312.2004.00331.x . hdl : 11336/102012 .
- ^ Svartman, Marta; Stone, Gary; Stanyon, Roscoe (2005). „Molekulare Zytogenetik widerlegt Polyploidie bei Säugetieren“. Genomics . 85 (4): 425–430 . doi : 10.1016/j.ygeno.2004.12.004 . PMID 15780745 .
- ^ „Humane Retroviren“ . Abgerufen am 14.05.2008 .
{{cite web}}CS1-Wartung: Veralteter Archivierungsdienst ( Link ) - ^ Dierschke T, Mandáková T, Lysak MA, Mummenhoff K (September 2009). „Ein bikontinentaler Ursprung polyploider australischer/neuseeländischer Lepidium- Arten (Brassicaceae)? Nachweis durch genomische In-situ-Hybridisierung“ . Annals of Botany . 104 (4): 681–688 . doi : 10.1093/aob/ mcp161 . PMC 2729636. PMID 19589857 .
- ^ Simon Renny-Byfield et al. (2010). „Durchflusszytometrie und GISH zeigen Populationen mit gemischter Ploidie und Spartina-Nonaploide mit Genomen von S. alterniflora und S. maritima “ . Annals of Botany . 105 (4): 527–533 . doi : 10.1093 / aob/mcq008 . PMC 2850792. PMID 20150197 .
- ^ Kim E. Hummer ; et al. (März 2009). „Dekaploidie bei Fragaria iturupensis (Rosaceae)“ . Bin. J. Bot . 96 (3): 713–716 . Bibcode : 2009AmJB...96..713H . doi : 10.3732/ajb.0800285 . PMID 21628226 .
- ^ Talyshinskiĭ, GM (1990). „Untersuchung der fraktionellen Zusammensetzung der Proteine in der zusammengesetzten Frucht der polyploiden Maulbeere“ . Shelk (5): 8–10 .
- ^ Fujikawa-Yamamoto K (2001). „Temperaturabhängigkeit der Proliferation tetraploider Meth-A-Zellen im Vergleich zu den diploiden Elternzellen“ . Cell Structure and Function . 26 (5): 263–269 . doi : 10.1247/csf.26.263 . PMID 11831358 .
- ^ Kiichi Fukui; Shigeki Nakayama (1996). Pflanzenchromosomen: Labormethoden . CRC Press. ISBN 9780849389191Die
- ^ „Gene, die an der Gewebe- und Organentwicklung beteiligt sind: Polytänchromosomen, Endoreduplikation und Puffing“ . The Interactive Fly. Archiviert vom Original am 4. Mai 2005. Abgerufen am 16. Dezember 2012 .
- ^ a b Encyclopedia of the Life Sciences (2002) „Polyploidie“ Francesco D'Amato und Mauro Durante
- ^ Ramsey, Justin; Schemske, Douglas W. (November 2002). „Neopolyploidie bei Blütenpflanzen“. Annual Review of Ecology and Systematics . 33 (1): 589–639 . Bibcode : 2002AnRES..33..589R . doi : 10.1146/annurev.ecolsys.33.010802.150437 .
- ^ Lied, Xiaoming; Wei, Yanping; Xiao, Dong; Gong, Ke; Sonne, Pengchuan; Ren, Yiming; Yuan, Jiaqing; Wu, Tong; Yang, Qihang; Li, Xinyu; Nie, Fulei; Li, Nan; Feng, Shuyan; Pei, Qiaoying; Yu, Tong (04.02.2021). „Die Charakterisierung des Genoms von Brassica carinata verdeutlicht das U-Dreiecksmodell der Evolution und Polyploidie in Brassica“ . Pflanzenphysiologie . 186 (1): 388–406 . doi : 10.1093/plphys/kiab048 . ISSN 0032-0889 . PMC 8154070 . PMID 33599732 .
- ^ Hansen MT (1978). „ Multiplizität von Genomäquivalenten im strahlungsresistenten Bakterium Micrococcus radiodurans“ . J. Bacteriol . 134 (1): 71–75 . doi : 10.1128/JB.134.1.71-75.1978 . PMC 222219. PMID 649572 .
- ^ Soppa J (2011). „Ploidie und Genkonversion bei Archaeen“. Biochem. Soc. Trans . 39 (1 ) : 150–154 . doi : 10.1042/BST0390150 . PMID 21265763. S2CID 31385928 .
- ^ Zahradka K, Slade D, Bailone A, Sommer S, Averbeck D, Petranovic M, Lindner AB, Radman M (2006). „Reassembly of shattered chromosomes in Deinococcus radiodurans“. Nature . 443 ( 7111): 569–573 . Bibcode : 2006Natur.443..569Z . doi : 10.1038/nature05160 . PMID 17006450. S2CID 4412830 .
- ^ Kottemann M, Kish A, Iloanusi C, Bjork S, DiRuggiero J (2005). „Physiologische Reaktionen des halophilen Archaeons Halobacterium sp. Stamm NRC1 auf Austrocknung und Gammabestrahlung“ (PDF) . Extremophile . 9 (3): 219–227 . doi : 10.1007/s00792-005-0437-4 . PMID 15844015 . S2CID 8391234 .
- ^ Schaechter, M. Eukaryotische Mikroben . Amsterdam, Academic Press, 2012, S. 217.
- ^ Edwards MJ; et al. (1994). „Mixoploidie beim Menschen: Zwei überlebende Fälle von diploid-tetraploider Mixoploidie und Vergleich mit diploid-triploider Mixoploidie“. Am J Med Genet . 52 (3): 324–330 . doi : 10.1002/ajmg.1320520314 . PMID 7810564 .
- ^ Järvelä, IE; Salo, MK; Santavuori, P; Salonen, RK (1993). „46,XX/69,XXX diploid-triploid mixoploid with hypothyreoidism and precocious puberty“ . J Med Genet . 30 (11): 966–967 . doi : 10.1136/jmg.30.11.966 . PMC 1016611. PMID 8301657 .
- ^ Kasha, KJ; Maluszynski, M. (2003), „Produktion von Doppelhaploiden in Kulturpflanzen. Eine Einführung“ , in: Maluszynski, M.; Kasha, KJ; Forster, BP; Szarejko, I. (Hrsg.), Doppelhaploidproduktion in Kulturpflanzen: Ein Handbuch , Dordrecht: Springer Netherlands, S. 1–4 , doi : 10.1007/978-94-017-1293-4_1 , ISBN 978-94-017-1293-4abgerufen am 13.04.2026
- ^ Przetakiewicz, Jarosław; Nadolska-Orczyk, Anna; Kuć, Dominik; Orczyk, Wacław (01.04.2007). „Tetraploide somatische Hybriden der Kartoffel (Solanum tuberosum L.), gewonnen aus diploiden Zuchtlinien“ . Briefe zur Zell- und Molekularbiologie . 12 (2): 253–267 . doi : 10.2478/s11658-006-0068-5 . ISSN 1689-1392 . PMC 6275578 . PMID 17180309 .
- ^"Molecular analysis revealed autotetraploid, diploid and tetraploid cybrid plants regenerated from an interspecific somatic fusion in Citrus". Scientia Horticulturae. 108 (2): 162–166. doi:10.1016/j.scienta.2006.01.021.
- ^Bender K (1963). "Über die Erzeugung und Entstehung dihaploider Pflanzen bei Solanum tuberosum"". Zeitschrift für Pflanzenzüchtung. 50: 141–166.
- ^Nogler, G.A. 1984. Gametophytic apomixis. In Embryology of angiosperms. Edited by B.M. Johri. Springer, Berlin, Germany. pp. 475–518.
- ^* Pehu E (1996). "The current status of knowledge on the cellular biology of potato". Potato Research. 39 (3): 429–435. doi:10.1007/bf02357948. S2CID 32122774.
- ^* Sprague G.F.; Russell W.A.; Penny L.H. (1960). "Mutations affecting quantitative traits in the selfed progeny of double monoploid maize stocks". Genetics. 45 (7): 855–866. doi:10.1093/genetics/45.7.855. PMC 1210096. PMID 17247970.
- ^Orr, Bernardo; Godek, Kristina M.; Compton, Duane (2015-06-29). "Aneuploidy". Current Biology. 25 (13): R538–542. doi:10.1016/j.cub.2015.05.010. ISSN 1879-0445. PMC 4714037. PMID 26126276.
- ^Rieseberg, Loren H. (May 2006). "Hybrid Speciation in Wild Sunflowers". Annals of the Missouri Botanical Garden. 93 (1): 34–48. doi:10.3417/0026-6493(2006)93[34:hsiws]2.0.co;2. JSTOR 40035044.
- ^Books, Elsevier Science & Technology (1950). Advances in Genetics. Academic Press. ISBN 978-0-12-017603-8.
{{cite book}}:ISBN-/Datumsinkompatibilität ( Hilfe ) - ^ Cosín, Darío J. Díaz; Novo, Marta; Fernández, Rosa (2011). „Fortpflanzung von Regenwürmern: Sexuelle Selektion und Parthenogenese“. Biologie der Regenwürmer . Bodenbiologie. Band 24. S. 69–86 . doi : 10.1007/978-3-642-14636-7_5 . ISBN 978-3-642-14635-0Die
- ^ James B. Anderson; Linda M. Kohn. „Dikaryen, Diploide und Evolution“ (PDF) . Universität Toronto. Archiviert vom Original (PDF) am 27.05.2013 . Abgerufen am 16.12.2012 .
- ^ Schmid, M; Evans, BJ; Bogart, JP (2015). „Polyploidie bei Amphibien“ . Cytogenet. Genome Res . 145 ( 3–4 ): 315–330 . doi : 10.1159/000431388 . PMID 26112701 .
- ^ Parfrey LW, Lahr DJ, Katz LA (2008). „Die dynamische Natur eukaryotischer Genome“ . Mol Biol Evol . 25 (4): 787–794 . doi : 10.1093/molbev/ msn032 . PMC 2933061. PMID 18258610 .
- Qiu Y.-L., Taylor AB, McManus HA (2012). „Evolution des Lebenszyklus bei Landpflanzen“ (PDF) . Journal of Systematics and Evolution . 50 (3): 171–194 . Bibcode : 2012JSyEv..50..171Q . doi : 10.1111/j.1759-6831.2012.00188.x . hdl : 2027.42/92043 . S2CID 40564254 .
{{cite journal}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - ^ Crosland MW, Crozier RH (1986). „Myrmecia pilosula, eine Ameise mit nur einem Chromosomenpaar“. Science . 231 (4743): 1278. Bibcode : 1986Sci...231.1278C . doi : 10.1126/science.231.4743.1278 . PMID 17839565. S2CID 25465053 .
- ^ „Archivierte Kopie“ (PDF) . Archiviert vom Original (PDF) am 23.02.2014 . Abgerufen am 18.02.2014 .
{{cite web}}: CS1 Wartung: Archivierte Kopie als Titel ( Link ) - ^ John O. Oberpriller; A. Mauro (1991). Die Entwicklung und das Regenerationspotenzial des Herzmuskels . Taylor & Francis. ISBN 9783718605187Die
- ^ Wang, Min-Jun; Chen, Fei; Lau, Joseph TY; Hu, Yi-Ping (18.05.2017). „Hepatocyte polyploidization and its association with pathophysiologological processes“ . Cell Death & Disease . 8 (5): e2805– e2805. doi : 10.1038/cddis.2017.167 . ISSN 2041-4889 . PMC 5520697 .
- ^ Pandit, MK; Pocock, MJO; Kunin, WE (28.03.2011). „Ploidie beeinflusst Seltenheit und Invasivität bei Pflanzen“ . Journal of Ecology . 99 (5): 1108–1115 . Bibcode : 2011JEcol..99.1108P . doi : 10.1111/j.1365-2745.2011.01838.x . S2CID 38197332 .
- ^ Gilbert, Natasha (06.04.2011). „Ökologen finden genomische Hinweise auf invasive und gefährdete Pflanzen“ . Nature . doi : 10.1038/news.2011.213 . Abgerufen am 07.04.2011 .
- ^ Nuismer S.; Otto SP (2004). „Wirt-Parasit-Interaktionen und die Evolution der Ploidie“ . Proc. Natl. Acad. Sci. USA . 101 (30): 11036–11039 . Bibcode : 2004PNAS..10111036N . doi : 10.1073/ pnas.0403151101 . PMC 503737. PMID 15252199 .
- ^ McClintock, B. (1984-11-16). „Die Bedeutung der Reaktionen des Genoms auf Herausforderungen“. Science . 226 (4676): 792–801 . Bibcode : 1984Sci...226..792M . doi : 10.1126/science.15739260 . ISSN 0036-8075 . PMID 15739260 .
- ^ Matzke, MA; Matzke, AJM (Juni 1998). „Polyploidie und Transposons“ . Trends in Ecology & Evolution . 13 (6): 241. Bibcode : 1998TEcoE..13R.241M . doi : 10.1016/s0169-5347(98)01390-1 . ISSN 0169-5347 . PMID 21238281 .
- Ronfort , J. (August 1999). „Die Mutationslast bei tetrasomischer Vererbung und ihre Folgen für die Evolution der Selbstungsrate in autotetraploiden Arten“ . Genetics Research . 74 (1): 31–42 . doi : 10.1017/S0016672399003845 . ISSN 1469-5073 .
- ^ Baduel, Pierre; Quadrana, Leandro; Hunter, Ben; Bomblies, Kirsten; Colot, Vincent (2019-12-20). „Relaxed purifying selection in autopolyploids drives transposable element over-accumulation which provides variants for local adaptation“ . Nature Communications . 10 (1): 5818. Bibcode : 2019NatCo..10.5818B . doi : 10.1038/s41467-019-13730-0 . ISSN 2041-1723 . PMC 6925279. PMID 31862875. S2CID 209420359 .
- ^ „Triploidie – Symptome, Ursachen, Behandlung | NORD“ . Abgerufen am 1. Juni 2026 .
- ^ a b Blischak, Paul D.; Mabry, Makenzie E.; Conant, Gavin C.; Pires, J. Chris (2018-11-02). „Integration von Netzwerken, Phylogenomik und Populationsgenomik zur Untersuchung von Polyploidie“ . Annual Review of Ecology, Evolution, and Systematics . 49 (1). Annual Reviews : 253–278 . doi : 10.1146/annurev-ecolsys-121415-032302 . ISSN 1543-592X . S2CID 92205236 .
- ^ a b Cervantes S, Kesälahti R, Kumpula TA, Mattila TM, Helanterä H, Pyhäjärvi T (August 2023). „ Starke reinigende Selektion in haploiden gewebespezifischen Genen der Waldkiefer stützt die Maskierungstheorie“ . Mol Biol Evol . 40 (8) msad183. doi : 10.1093/molbev/msad183 . PMC 10457172. PMID 37565532 .
- ^ Gerstein AC, Cleathero LA, Mandegar MA, Otto SP (März 2011). „Haploide passen sich in verschiedenen Umgebungen schneller an als Diploide“. J Evol Biol . 24 (3): 531–40 . doi : 10.1111/j.1420-9101.2010.02188.x . PMID 21159002 .
- ^ Watanabe, Kazuo (2015). „Kartoffelgenetik, Genomik und Anwendungen“ . Breeding Science . 65 (1): 53–68 . doi : 10.1270/jsbbs.65.53 . PMC 4374564. PMID 25931980 .
- ^ „Die Biologie von Solanum tuberosum (L.) (Kartoffeln)“ . Kanadische Lebensmittelinspektionsbehörde. 05.03.2012.
Quellen
- Griffiths, AJ et al. 2000. Einführung in die genetische Analyse , 7. Aufl. WH Freeman, New York ISBN 0-7167-3520-2
Externe Links
Einige Datenbanken zur Genomgröße von Eukaryoten und andere Quellen, die die Ploidiegrade vieler Organismen auflisten:
- Datenbank zur Größe des Tiergenoms
- Protisten-Genom-weite Datenbank von Ensembl Genomes
- Nuismer S.; Otto SP (2004). „Wirt-Parasit-Interaktionen und die Evolution der Ploidie“ . Proc. Natl. Acad. Sci. USA . 101 (30): 11036–11039 . Bibcode : 2004PNAS..10111036N . doi : 10.1073 / pnas.0403151101 . PMC 503737. PMID 15252199 .( Zusätzlicher Datensatz mit Informationen zum Ploidiegrad und zur Chromosomenzahl verschiedener Protisten)
- YouTube-Tutorial-Video zu Chromosomenzahl und Ploidie-Mutationen