Bryozoen (auch bekannt als Polyzoa , Ectoprocta oder allgemein als Moostiere ) [ 3 ] sind ein Stamm einfacher, im Wasser lebender Wirbelloser , die fast alle in sessilen Kolonien vorkommen . Sie sind typischerweise etwa 0,5 Millimeter lang und besitzen eine spezielle Nahrungsaufnahmestruktur, den Lophophor , eine Art Tentakelkranz, der der Filterung von Nahrung dient . Die Bryozoen werden in marine Bryozoen ( Stenolaemata ), Süßwasser-Bryozoen (Phylactolaemata) und überwiegend marine Bryozoen (Gymnolaemata) unterteilt, von denen einige Brackwasser bevorzugen . Die meisten marinen Bryozoen leben in tropischen Gewässern, einige wenige kommen jedoch auch in Tiefseegräben und polaren Gewässern vor. 5.869 lebende Bryozoenarten sind bekannt. [ 4 ] Ursprünglich waren alle Bryozoen der Kronengruppe koloniebildend, doch als Anpassung an ein Leben im Mesopsammal (Zwischenräume im Meeressand) oder an Tiefseehabitate entwickelten sich sekundär solitär lebende Formen. Solitäre Arten wurden in vier Gattungen beschrieben : Aethozooides , Aethozoon , Franzenella und Monobryozoon , wobei letztere ein statocystenartiges Organ mit vermutlich exkretorischer Funktion besitzt. [ 5 ] [ 6 ]
Die Bezeichnungen Polyzoa und Bryozoa wurden 1830 bzw. 1831 eingeführt. [ 7 ] [ 8 ] Kurz nach ihrer Benennung wurde eine weitere Tiergruppe entdeckt, deren Filtermechanismus ähnlich aussah. Diese wurde daher bis 1869 zu den Bryozoa gezählt, bis man feststellte, dass sich die beiden Gruppen intern stark unterschieden. Die neue Gruppe erhielt den Namen „ Entoprocta “, während die ursprünglichen Bryozoa „Ectoprocta“ genannt wurden. Uneinigkeiten bezüglich der Terminologie hielten bis weit ins 20. Jahrhundert an, doch „Bryozoa“ ist heute die allgemein anerkannte Bezeichnung. [ 9 ] [ 10 ]
Kolonien können verschiedene Formen annehmen, darunter Fächer, Büsche und flächige Strukturen. Einzelne Tiere, sogenannte Zooide , leben in der gesamten Kolonie und sind nicht völlig unabhängig. Diese Individuen können einzigartige und vielfältige Funktionen erfüllen. Alle Kolonien besitzen Autozooide, die für die Nahrungsaufnahme, die Ausscheidung und die Nährstoffversorgung der Kolonie über verschiedene Kanäle verantwortlich sind. Einige Klassen verfügen über spezialisierte Zooide, wie beispielsweise Brutstätten für befruchtete Eier, Kolonieverteidigungsstrukturen und wurzelartige Haftstrukturen. Die Cheilostomata sind die artenreichste Ordnung der Bryozoen, möglicherweise weil ihre Vertreter die größte Vielfalt an spezialisierten Zooiden aufweisen. Sie besitzen mineralisierte Exoskelette und bilden einschichtige, krustenartige Strukturen, die Oberflächen bedecken. Einige Kolonien können sich mithilfe stacheliger Verteidigungszooide, die als Beine dienen, sehr langsam fortbewegen.
Jedes Zooid besteht aus einer Cystide, die die Körperwand bildet und das Exoskelett produziert , und einem Polypid , das die Organe enthält. Zooide besitzen keine speziellen Ausscheidungsorgane, und die Polypide der Autozooiden werden abgestoßen, sobald sie mit Abfallprodukten überladen sind; üblicherweise wächst dann ein neues Polypid aus der Körperwand nach. Ihr Darm ist U-förmig, mit der Mundöffnung innerhalb des Tentakelkranzes und dem After außerhalb. Die Zooide aller Süßwasserarten sind simultane Hermaphroditen . Obwohl die Zooide vieler Meeresarten zunächst als Männchen und dann als Weibchen fungieren, enthalten ihre Kolonien stets eine Kombination aus Zooiden im männlichen und weiblichen Stadium. Alle Arten geben Spermien ins Wasser ab. Einige setzen auch Eier ins Wasser frei, während andere Spermien mit ihren Tentakeln aufnehmen, um die Eier intern zu befruchten. Bei manchen Arten besitzen die Larven große Dotter , begeben sich auf Nahrungssuche und siedeln sich schnell auf einer Oberfläche an. Andere Arten produzieren Larven mit wenig Dotter, die einige Tage schwimmen und fressen, bevor sie sich niederlassen. Nach der Ansiedlung durchlaufen alle Larven eine radikale Metamorphose , bei der fast das gesamte innere Gewebe zerstört und neu aufgebaut wird. Süßwasserarten bilden außerdem Statoblasten , die so lange inaktiv bleiben, bis günstige Bedingungen herrschen. Dies ermöglicht das Überleben der Nachkommen einer Kolonie, selbst wenn die Mutterkolonie durch extreme Bedingungen abstirbt.
Zu den Fressfeinden mariner Moostierchen zählen Nacktschnecken , Fische, Seeigel , Stachelschweine , Krebstiere , Milben und Seesterne . Süßwasser-Moostierchen werden von Schnecken, Insekten und Fischen gejagt. In Thailand wurden viele Populationen einer Süßwasserart durch eine eingeschleppte Schneckenart ausgelöscht. [ 11 ] Membranipora membranacea , ein schnell wachsendes, invasives Moostierchen vor der Nordost- und Nordwestküste der USA, hat Kelpwälder so stark dezimiert, dass es die lokalen Fisch- und Wirbellosenpopulationen beeinträchtigt hat. [ 12 ] Moostierchen haben Krankheiten auf Fischfarmen und Fischer übertragen. Aus einer marinen Moostierchenart gewonnene Chemikalien wurden zur Behandlung von Krebs und Alzheimer untersucht , die Analysen verliefen jedoch nicht vielversprechend. [ 13 ]
Die frühesten mineralisierten Skelette von Bryozoen stammen aus dem frühen Kambrium . [ 14 ] Frühe Fossilien zeigen hauptsächlich aufrechte Formen, doch mit der Zeit wurden krustenförmige Formen dominant. Es ist unklar, ob der Stamm monophyletisch ist . Auch die evolutionären Beziehungen der Bryozoen zu anderen Stämmen sind unklar, was teilweise darauf zurückzuführen ist, dass die Sichtweise der Wissenschaftler auf den Stammbaum der Tiere maßgeblich von besser erforschten Stämmen beeinflusst wird. Sowohl morphologische als auch molekulare Phylogenieanalysen liefern unterschiedliche Ergebnisse hinsichtlich der Verwandtschaft der Bryozoen mit den Entoprocten, der Frage, ob Bryozoen mit Brachiopoden und Phoroniden in die Lophophorata eingeordnet werden sollten , und der Frage, ob Bryozoen als Protostomier oder Deuterostomier zu betrachten sind .
Beschreibung
Unterscheidungsmerkmale
Bryozoen, Phoroniden und Brachiopoden filtern ihre Nahrung mithilfe eines Lophophors , einer Art „Krone“ aus hohlen Tentakeln , aus dem Wasser . Bryozoen bilden Kolonien aus Klonen , sogenannten Zooiden, die typischerweise etwa 0,5 mm lang sind . [ 15 ] Phoroniden ähneln den Zooiden der Bryozoen, sind aber 2 bis 20 cm lang und bilden, obwohl sie oft in Gruppen wachsen, keine Kolonien aus Klonen. [ 16 ] Brachiopoden, die im Allgemeinen als eng mit Bryozoen und Phoroniden verwandt gelten, unterscheiden sich durch ihre Muschelschalen . [ 17 ] Alle drei Stämme besitzen ein Coelom , eine innere, mit Mesothel ausgekleidete Höhle . [ 15 ] [ 16 ] [ 17 ] Einige krustenbildende Bryozoenkolonien mit mineralisierten Exoskeletten ähneln kleinen Korallen. Bryozoenkolonien entstehen jedoch aus einer Ancestrula, die rund ist und nicht die Form eines normalen Zooids der jeweiligen Art aufweist. Im Gegensatz dazu ähnelt der Gründungspolyp einer Koralle der Form ihrer Tochterpolypen, und Korallenzooide besitzen weder Coelom noch Lophophor . [ 18 ]
Entoprocten , ein weiterer Stamm der Filtrierer, ähneln zwar den Bryozoen, aber ihre lophophorartige Fressstruktur besitzt massive Tentakel, ihr After liegt innerhalb statt außerhalb der Basis der „Krone“ und sie besitzen kein Coelom . [ 19 ]
| Bryozoa [ 15 ](Ectoprocta) | Andere Lophophorate [ 20 ] | Andere Lophotrochozoa | Ähnlich aussehende Stämme | |||
|---|---|---|---|---|---|---|
| Phoronida [ 16 ] | Brachiopoda [ 17 ] | Annelida , Mollusca | Entoprocta [ 19 ] | Korallen (Klasse im Stamm Cnidaria ) [ 18 ] | ||
| Coelom | Dreiteilig, wenn die Höhle des Epistoms mit einbezogen wird | Dreiteilig | In der Grundform eines pro Segment; in einigen Taxa zusammengeführt | keiner | ||
| Bildung des Coeloms | Unsicher, da die Metamorphose der Larven zu ausgewachsenen Tieren eine Rückverfolgung unmöglich macht. | Enterocoely | Schizocoely | nicht zutreffend | ||
| Lophophor | Mit hohlen Tentakeln | keiner | Ähnlich aussehende Fressstruktur, jedoch mit massiven Tentakeln | keiner | ||
| Speisestrom | Von den Spitzen bis zu den Ansätzen der Tentakel | nicht zutreffend | Von den Ansätzen bis zu den Spitzen der Tentakel | nicht zutreffend | ||
| Mehrzilienhaltige Zellen im Epithel | Ja [ 21 ] | nein [ 21 ] | Ja [ 21 ] | nicht zutreffend | ||
| Position des Anus | Äußere Basis des Lophophors | Variiert, bei manchen Arten nicht vorhanden. | Hinterteil, aber keines in der Familie Siboglinidae | Innere Basis des lophophorähnlichen Organs | keiner | |
| Kolonial | Kolonien von Klonen in den meisten; eine einzelne Gattung | Sessile Arten bilden oft Gruppen, jedoch ohne aktive Kooperation. | Kolonien von Klonen bei einigen Arten; einige solitär lebende Arten | Kolonien von Klonen | ||
| Form des Gründerzooids | Rund, im Gegensatz zu normalen Zooiden [ 18 ] | nicht zutreffend | Genauso wie andere Zooide | |||
| Mineralisierte Exoskelette | Einige Taxa | NEIN | Muschelartige Schalen | Einige sessile Ringelwürmer bauen mineralisierte Röhren; [ 22 ] die meisten Weichtiere besitzen Schalen, aber die meisten modernen Kopffüßer haben entweder innere Schalen oder gar keine. [ 23 ] | NEIN | Einige Taxa |
Arten von Zooiden
Alle Bryozoen sind koloniebildend , mit Ausnahme der Gattung Monobryozoon . [ 24 ] [ 25 ] Einzelne Mitglieder einer Bryozoenkolonie sind etwa 0,5 mm lang und werden als Zooide bezeichnet , [ 15 ] da sie keine vollständig unabhängigen Tiere sind. [ 26 ] Alle Kolonien enthalten nährende Zooide, sogenannte Autozooide. Einige Gruppen enthalten zusätzlich nicht-nährende Heterozooide, auch polymorphe Zooide genannt, die neben der Nahrungsaufnahme verschiedene andere Funktionen erfüllen. [ 25 ] Die Koloniemitglieder sind genetisch identisch und kooperieren, ähnlich wie die Organe größerer Tiere. [ 15 ] Welcher Zooidtyp wo in einer Kolonie wächst, wird durch chemische Signale der gesamten Kolonie oder manchmal als Reaktion auf den Geruch von Fressfeinden oder rivalisierenden Kolonien bestimmt. [ 25 ]
Die Körper aller Arten bestehen aus zwei Hauptteilen. Die Cystide setzt sich aus der Körperwand und dem von der Epidermis gebildeten Exoskelett zusammen . Dieses Exoskelett kann organisch ( Chitin , Polysaccharid oder Protein ) oder aus dem Mineral Calciumcarbonat bestehen . Letzteres fehlt bei Süßwasserarten stets. [ 27 ] Die Körperwand besteht aus der Epidermis, der Basallamina (einer Schicht aus zellfreiem Material), Bindegewebe , Muskeln und dem Mesothel , das die Leibeshöhle (Coelom ) auskleidet [ 15 ] – mit einer Ausnahme: Bei einer Klasse ist das Mesothel in zwei separate Schichten gespalten. Die innere Schicht bildet einen frei schwimmenden Membransack, der die Leibeshöhle enthält, während die äußere Schicht an der Körperwand befestigt ist und den Membransack in einem Pseudocoelom umschließt . [ 28 ] Der andere Hauptteil des Bryozoenkörpers, die sogenannte Polypide , die sich fast vollständig innerhalb der Cystide befindet, enthält das Nervensystem, das Verdauungssystem, einige spezialisierte Muskeln und den Fressapparat oder andere spezialisierte Organe, die die Funktion des Fressapparats übernehmen. [ 15 ]
Fütterung von Zooiden
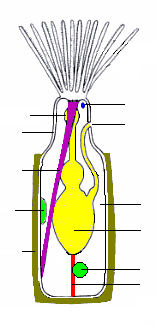
Der häufigste Zooidtyp ist das fressende Autozooid, bei dem der Polypid eine „Krone“ aus hohlen Tentakeln, den sogenannten Lophophor , trägt, der Nahrungspartikel aus dem Wasser auffängt. [ 25 ] In allen Kolonien ist ein großer Anteil der Zooide autozooid, und manche bestehen sogar ausschließlich aus Autozooiden, von denen einige auch an der Fortpflanzung beteiligt sind. [ 29 ]
Die Grundform der „Krone“ ist ein vollständiger Kreis. Bei Süßwasser-Bryozoen ( Phylactolaemata ) erscheint die Krone U-förmig; dieser Eindruck entsteht jedoch durch eine tiefe Einkerbung am Kronenrand, der keine Lücke im Tentakelsaum aufweist. [ 15 ] Die Seiten der Tentakel tragen feine Härchen, sogenannte Zilien , deren Schlagbewegung einen Wasserstrom von den Tentakelspitzen zu deren Basis erzeugt, wo er austritt. Nahrungspartikel, die mit den Tentakeln kollidieren, werden von Schleim eingefangen , und weitere Zilien auf den Innenseiten der Tentakel transportieren die Partikel zur Mundöffnung in der Mitte. [ 20 ] Die von Ectoprocten angewandte Methode wird als „Upstream-Collecting“ bezeichnet, da die Nahrungspartikel eingefangen werden, bevor sie das Zilienfeld passieren, das den Nahrungsstrom erzeugt. Diese Methode wird auch von Phoroniden , Brachiopoden und Pterobranchiern angewendet . [ 30 ]
Der Lophophor und die Mundöffnung sind auf einem flexiblen Schlauch, dem sogenannten „Invert“, montiert, der sich wie ein Finger eines Gummihandschuhs umstülpen und in den Polypen zurückziehen lässt [ 15 ] . In dieser Position liegt der Lophophor im Invert und ist wie die Speichen eines Regenschirms gefaltet. Das Zurückziehen des Inverts, manchmal innerhalb von 60 Millisekunden , erfolgt durch ein Paar Retraktormuskeln, die am hinteren Ende der Cystide verankert sind. Sensoren an den Tentakelspitzen prüfen möglicherweise auf Gefahrensignale, bevor Invert und Lophophor vollständig ausgestreckt sind. Die Ausstülpung wird durch einen Anstieg des inneren Flüssigkeitsdrucks bewirkt. Arten mit flexiblem Exoskelett erzeugen diesen Druck durch die Kontraktion von Ringmuskeln, die direkt innerhalb der Körperwand liegen [ 15 ] , während Arten mit einem Membransack Ringmuskeln verwenden, um diesen zusammenzupressen. [ 28 ] Einige Arten mit starrem Exoskelett besitzen eine flexible Membran, die einen Teil des Exoskeletts ersetzt. Querverlaufende Muskeln, die auf der dem Exoskelett abgewandten Seite verankert sind, erhöhen den Flüssigkeitsdruck, indem sie die Membran nach innen ziehen. [ 15 ] Bei anderen Arten weist das schützende Skelett keine Lücke auf. Die querverlaufenden Muskeln ziehen an einem flexiblen Sack, der über eine kleine Pore mit dem umgebenden Wasser verbunden ist. Die Ausdehnung des Sacks erhöht den Druck im Körperinneren und drückt die Wirbelsäule und den Lophophor nach außen. [ 15 ] Bei manchen Arten werden die zurückgezogene Wirbelsäule und der Lophophor durch ein Operculum („Deckel“) geschützt, das durch Muskeln geschlossen und durch Flüssigkeitsdruck geöffnet wird. Bei einer Klasse ragt ein hohler Lappen, das sogenannte Epistom, über die Mundöffnung. [ 15 ]
Der Darm ist U-förmig und verläuft vom Mund in der Mitte des Lophophors in das Innere des Tieres und zurück zum After , der sich auf der Rückseite, außerhalb und meist unterhalb des Lophophors, befindet. [ 15 ] Ein Netzwerk aus Mesothelsträngen, den sogenannten Funiculi („kleine Fäden“) [ 31 ], verbindet das den Darm bedeckende Mesothel mit dem die Körperwand auskleidenden. Die Wand jedes Strangs besteht aus Mesothel und umschließt einen mit Flüssigkeit gefüllten Raum, vermutlich Blut. [ 15 ] Die Zooiden einer Kolonie sind miteinander verbunden, sodass Autozooide Nahrung untereinander und mit nicht fressenden Heterozooiden teilen können. [ 15 ] Die Art der Verbindung variiert zwischen den verschiedenen Klassen der Bryozoen und reicht von recht großen Lücken in der Körperwand bis hin zu kleinen Poren, durch die Nährstoffe von den Funiculi transportiert werden. [ 15 ] [ 28 ]
Um den Pharynx (Rachen) verläuft ein Nervenring, seitlich davon befindet sich ein Ganglion , das als Gehirn dient. Nerven verlaufen vom Ring und Ganglion zu den Tentakeln und in den restlichen Körper. [ 15 ] Bryozoen besitzen keine spezialisierten Sinnesorgane, jedoch fungieren Zilien an den Tentakeln als Sensoren. Vertreter der Gattung Bugula wachsen zum Sonnenlicht hin und müssen daher Licht wahrnehmen können. [ 15 ] In Kolonien einiger Arten werden Signale zwischen den Zooiden über Nerven übertragen, die durch Poren in den Körperwänden verlaufen und Aktivitäten wie Nahrungsaufnahme und das Einziehen der Lophophoren koordinieren. [ 15 ]
Die einzeln lebenden Exemplare von Monobryozoon sind Autozooiden mit birnenförmigem Körper. An den breiteren Enden befinden sich bis zu 15 kurze, muskulöse Fortsätze, mit denen sich die Tiere im Sand oder Kies verankern [ 32 ] und sich durch das Sediment ziehen. [ 33 ]
Avicularia und Vibracula
Manche Wissenschaftler verwenden den Begriff Avicularia (Plural von Avicularium ) für alle Zooiden, bei denen der Lophophor durch einen Fortsatz mit Schutzfunktion ersetzt ist [ 29 ], während andere ihn auf solche beschränken, die die Kolonie verteidigen, indem sie nach Eindringlingen und kleinen Fressfeinden schnappen, einige töten und andere in die Gliedmaßen beißen [ 15 ] . Bei manchen Arten sitzen die Schnappzooide auf einem Stiel; ihr vogelähnliches Aussehen gab ihnen die Bezeichnung – Charles Darwin beschrieb sie als „den Kopf und Schnabel eines Geiers im Miniaturformat, auf einem Hals sitzend und beweglich“ [ 15 ] [ 29 ] . Gestielte Avicularien sitzen kopfüber auf ihren Stielen. [ 25 ] Die „Unterkiefer“ sind modifizierte Versionen der Opercula, die die zurückgezogenen Lophophoren in den Autozooiden einiger Arten schützen und durch ähnliche Muskeln „wie eine Mausefalle“ zuschnappen. [ 15 ] Der schnabelförmige Oberkiefer ist die umgestülpte Körperwand. [ 25 ] Bei anderen Arten sind die Avicularien stationäre, kastenförmige Zooide, die normal ausgerichtet sind, sodass das modifizierte Operculum gegen die Körperwand schnappt. [ 25 ] Bei beiden Typen wird das modifizierte Operculum durch andere daran ansetzende Muskeln [ 29 ] oder durch interne Muskeln geöffnet, die den Flüssigkeitsdruck durch Zug an einer flexiblen Membran erhöhen. [ 15 ] Die Aktionen dieser zuschnappenden Zooide werden durch kleine, stark modifizierte Polypiden gesteuert, die sich im Inneren des „Mundes“ befinden und Büschel kurzer Sinneszilien tragen . [ 15 ] [ 25 ] Diese Zooide treten an verschiedenen Positionen auf: Einige ersetzen Autozooide, andere passen in kleine Lücken zwischen Autozooiden, und kleine Avicularien können auf der Oberfläche anderer Zooide vorkommen. [ 29 ]
Bei Vibracula, die von einigen als eine Art Avicularia angesehen werden, ist der Operculum zu einer langen Borste mit großem Bewegungsradius umgewandelt. Sie dienen möglicherweise der Verteidigung gegen Fressfeinde und Eindringlinge oder der Reinigung. Bei einigen Arten, die mobile Kolonien bilden, werden die Vibracula an den Rändern als Beine zum Graben und Laufen verwendet. [ 15 ] [ 29 ]
Strukturpolymorphe
Kenozooide (vom griechischen kenós „leer“) [ 34 ] bestehen ausschließlich aus der Körperwand und den das Innere durchziehenden Funiculussträngen [ 15 ] und enthalten kein Polypid. [ 25 ] Zu den Funktionen dieser Zooide gehören die Bildung der Stängel verzweigter Strukturen, die Funktion als Abstandshalter, die ein schnelles Wachstum der Kolonien in neue Richtungen ermöglichen [ 25 ] [ 29 ] , die Stärkung der Koloniezweige und die leichte Anhebung der Kolonie über ihr Substrat, um Wettbewerbsvorteile gegenüber anderen Organismen zu erzielen. Es wird vermutet, dass einige Kenozooide Nährstoffe für die Kolonie speichern können. [ 35 ] Da die Funktion der Kenozooide im Allgemeinen struktureller Natur ist, werden sie als „strukturelle Polymorphe“ bezeichnet.
Einige Heterozooide, die in ausgestorbenen Trepostomen-Bryozoen vorkommen und Mesozooide genannt werden, dienten vermutlich dazu, die fressenden Autozooide in einem geeigneten Abstand zueinander zu positionieren. In Dünnschnitten von Trepostomen-Fossilien sind Mesozooide zwischen den Röhren zu erkennen, die die Autozooide enthielten; es handelt sich um kleinere Röhren, die längs durch Diaphragmen unterteilt sind und dadurch wie Reihen von kastenförmigen Kammern aussehen, die zwischen den Röhren der Autozooide eingebettet sind. [ 36 ]
Reproduktionspolymorphe
Gonozooide dienen als Brutkammern für befruchtete Eier. [ 25 ] Fast alle modernen Rundmäuler (Cyclostomata) besitzen sie, doch sind sie in einer Kolonie oft schwer zu finden, da sie nur in geringer Anzahl vorkommen. Die Öffnung der Gonozooide, der sogenannte Ooecioporus, dient den Larven als Austrittspunkt. Manche Gonozooide weisen sehr komplexe Formen auf, in denen autozooidale Röhren durch Kammern verlaufen. Alle aus einem Gonozooid schlüpfenden Larven sind Klone, die durch die Teilung eines einzigen Eis entstehen; dies wird als monozygote Polyembryonie bezeichnet und ist eine Fortpflanzungsstrategie, die auch bei Gürteltieren Anwendung findet . [ 37 ]
Cheilostomen-Bryozoen brüten ihre Embryonen ebenfalls aus; eine gängige Methode ist die Verwendung von Ovicellen, Kapseln, die an Autozooiden anhaften. Die Autozooiden, die Ovicellen besitzen, sind normalerweise noch in der Lage, sich zu ernähren, weshalb diese nicht als Heterozooiden gelten. [ 38 ]
Weibliche Polymorphe sind häufiger als männliche, aber es sind auch spezialisierte Zooide bekannt, die Spermien produzieren. Diese werden Androzooide genannt und kommen in Kolonien von Odontoporella bishopi vor , einer Art, die in Symbiose mit Einsiedlerkrebsen lebt und auf deren Gehäusen nistet. Diese Zooide sind kleiner als die anderen und besitzen vier kurze und vier lange Tentakel, im Gegensatz zu den Autozooiden mit 15–16 Tentakeln. Androzooide finden sich auch in Arten mit mobilen Kolonien, die sich fortbewegen können. Es ist möglich, dass Androzooide dem Spermienaustausch zwischen Kolonien dienen, wenn zwei mobile Kolonien oder mit Moostierchen bewachsene Einsiedlerkrebse aufeinandertreffen. [ 39 ]
Andere Polymorphe
Spinozooide sind hohle, bewegliche Stacheln, die wie sehr dünne, kleine Röhrchen auf der Oberfläche von Kolonien vorkommen und wahrscheinlich der Verteidigung dienen. [ 40 ] Einige Arten besitzen Miniatur-Nanozooide mit kleinen, einarmigen Polypen, die auf anderen Zooiden oder innerhalb der Körperwände degenerierter Autozooide wachsen können. [ 29 ]
Kolonieformen und Zusammensetzung
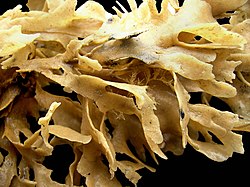

Obwohl die Zooide mikroskopisch klein sind, variiert die Größe der Kolonien von 1 cm bis über 1 m. [ 15 ] Die meisten Kolonien haben jedoch einen Durchmesser von unter 10 cm. [ 18 ] Die Form der Kolonien ist sehr unterschiedlich und hängt vom Knospungsmuster, der Vielfalt der vorhandenen Zooide sowie Art und Menge des abgesonderten Skelettmaterials ab . [ 15 ]
Einige marine Arten wachsen busch- oder fächerförmig und werden von „Stämmen“ und „Ästen“ aus Kenozooiden gestützt, aus denen nährende Autozooide wachsen. Kolonien dieser Art sind in der Regel nicht mineralisiert , können aber ein Exoskelett aus Chitin besitzen . [ 15 ] Andere ähneln kleinen Korallen und bilden schwere Kalkskelette. [ 41 ] Viele Arten bilden Kolonien aus Schichten von Autozooiden. Diese Schichten können Blätter, Büschel oder, bei der Gattung Thalamoporella , Strukturen bilden, die einem offenen Kopfsalat ähneln. [ 15 ]
Die häufigste marine Form ist jedoch die Krustenbildung, bei der sich eine einschichtige Zooidenschicht über eine harte Oberfläche oder über Algen ausbreitet. Manche Krustenkolonien können über 50 cm groß werden und etwa 2.000.000 Zooiden enthalten. [ 15 ] Diese Arten besitzen in der Regel ein mit Kalziumkarbonat verstärktes Exoskelett , und die Öffnungen, durch die die Lophophoren austreten, befinden sich an der Oberseite bzw. Außenseite. [ 15 ] Das moosartige Aussehen der Krustenkolonien ist namensgebend für den Stamm ( von den altgriechischen Wörtern βρύον brúon für „Moos“ und ζῷον zôion für „Tier“). [ 42 ] Große Kolonien von Krustenbildnern weisen häufig „ Kamine “ auf, Lücken im Lophophoren-Dach, durch die sie gefiltertes Wasser schnell ausstoßen und so die erneute Filterung bereits verbrauchten Wassers vermeiden. [ 43 ] Sie werden von Ansammlungen nicht-fressender Heterozooiden gebildet. [ 44 ] Neue Kamine entstehen in der Nähe der Ränder expandierender Kolonien, an Stellen mit bereits hoher Ausflussgeschwindigkeit, und verändern ihre Position nicht bei Änderungen der Wasserströmung. [ 45 ]
Einige Süßwasserarten scheiden eine bis zu 1 m große Masse aus gallertartigem Material aus, an der die Zooiden haften bleiben. Andere Süßwasserarten weisen pflanzenähnliche Formen mit „Stämmen“ und „Ästen“ auf, die aufrecht stehen oder sich über die Wasseroberfläche ausbreiten können. Einige wenige Arten können sich mit einer Geschwindigkeit von etwa 2 cm pro Tag fortbewegen. [ 15 ]
Jede Kolonie wächst durch ungeschlechtliche Knospung aus einem einzelnen Zooid, der sogenannten Ancestrula [ 15 ] , die rund und nicht wie ein normales Zooid geformt ist. [ 18 ] Dies geschieht an den Spitzen von „Stämmen“ oder „Ästen“ bei Arten mit dieser Struktur. Krustenbildende Kolonien wachsen an deren Rändern. Bei Arten mit kalkhaltigem Exoskelett mineralisieren diese erst, wenn die Zooide vollständig ausgewachsen sind. Die Lebensdauer der Kolonien reicht von einem bis zu etwa zwölf Jahren, und die kurzlebigen Arten durchlaufen mehrere Generationen in einer Saison. [ 15 ]
Arten, die defensive Zooide produzieren, tun dies erst, wenn bereits eine Bedrohung besteht, und zwar innerhalb von 48 Stunden. [ 25 ] Die Theorie der „induzierten Verteidigung“ besagt, dass die Produktion von Abwehrmechanismen aufwändig ist und dass Kolonien, die sich zu früh oder zu stark verteidigen, ein reduziertes Wachstum und eine kürzere Lebensdauer aufweisen. Dieser „Last-Minute“-Ansatz der Verteidigung ist plausibel, da der Verlust von Zooiden durch einen einzelnen Angriff wahrscheinlich nicht signifikant ist. [ 25 ] Kolonien einiger krustenbildender Arten produzieren zudem spezielle Heterozooide, um die Ausbreitung anderer krustenbildender Organismen, insbesondere anderer Bryozoen, einzuschränken. In manchen Fällen fällt diese Reaktion aggressiver aus, wenn der Gegner kleiner ist, was darauf hindeutet, dass Zooiden am Rand einer Kolonie die Größe des Gegners gewissermaßen erfassen können. Einige Arten setzen sich beständig gegen bestimmte andere durch, doch die meisten Revierkämpfe enden unentschieden, und die Kontrahenten weichen bald auf unbestrittene Gebiete aus. [ 25 ] Bryozoen, die um Territorien konkurrieren, nutzen nicht die ausgefeilten Techniken von Schwämmen oder Korallen , möglicherweise weil die kurze Lebensdauer der Bryozoen hohe Investitionen in Revierkämpfe unrentabel macht. [ 25 ]
Bryozoen haben seit dem Ordovizium zur Karbonatsedimentation im marinen Lebensraum beigetragen. Sie sind für viele Kolonieformen verantwortlich, die sich in verschiedenen taxonomischen Gruppen entwickelt haben und sich in ihrer Fähigkeit zur Sedimentproduktion unterscheiden. Zu den neun grundlegenden Bryozoen-Kolonieformen gehören: krustenbildende, kuppelförmige, handförmige, blattförmige, fenestrierte, robust verzweigte, zart verzweigte, gegliederte und freilebende. Der Großteil dieser Sedimente stammt von zwei unterschiedlichen Koloniegruppen: kuppelförmigen, zart verzweigten, robust verzweigten und handförmigen sowie fenestrierten Kolonien. Fenestrierte Kolonien erzeugen sowohl als Sediment als auch als Bestandteile von Stromatoporen-Korallenriffen grobe Partikel. Die zarten Kolonien hingegen bilden sowohl grobes Sediment als auch die Kerne von Tiefsee- und subphotischen biogenen Hügeln. Nahezu alle postbryozoischen Sedimente bestehen aus Wuchsformen, ergänzt durch freilebende Kolonien, die eine beträchtliche Anzahl verschiedener Kolonietypen umfassen. „Im Gegensatz zum Paläozoikum erzeugten die Bryozoen nach dem Paläozoikum Sedimente, deren Korngröße in größerem Maße variierte; sie wuchsen, während sie sich von Schlamm über Sand zu Kies bewegten.“ [ 46 ]
Taxonomie


Der Stamm wurde ursprünglich „Polyzoa“ genannt, dieser Name wurde jedoch später durch Ehrenbergs Begriff „Bryozoa“ ersetzt. [ 10 ] [ 47 ] [ 48 ] Der Name „Bryozoa“ wurde ursprünglich nur für die Tiere verwendet, die auch als Ectoprocta ( wörtlich „ außerhalb des Afters “ ) bekannt waren, [ 49 ] bei denen der After außerhalb der Tentakelkrone liegt. Nach der Entdeckung der Entoprocta ( wörtlich „ innerhalb des Afters “ ), [ 50 ] bei denen der After innerhalb einer Tentakelkrone liegt, wurde der Name „Bryozoa“ auf die Ebene des Stammes erhoben , um die beiden Klassen Ectoprocta und Entoprocta zu umfassen. [ 51 ] 1869 betrachtete Hinrich Nitsche die beiden Gruppen jedoch aus verschiedenen Gründen als deutlich verschieden und prägte den Namen „Ectoprocta“ für Ehrenbergs „Bryozoa“. [ 2 ] [ 52 ] Trotz ihrer scheinbar ähnlichen Ernährungsmethoden unterschieden sie sich anatomisch deutlich. Neben der unterschiedlichen Lage des Afters besitzen Ectoprocta hohle Tentakel und ein Coelom , während Entoprocta massive Tentakel und kein Coelom aufweisen. Daher werden die beiden Gruppen heute weithin als separate Stämme betrachtet, und der Name „Bryozoa“ ist synonym mit „Ectoprocta“. [ 51 ] Dies ist seither die vorherrschende Ansicht, obwohl die meisten Publikationen den Namen „Bryozoa“ gegenüber „Ectoprocta“ bevorzugen. [ 48 ] Dennoch betrachten einige namhafte Wissenschaftler die „Ectoprocta“ und Entoprocta weiterhin als eng verwandt und fassen sie unter „Bryozoa“ zusammen. [ 52 ]
Die Unklarheit bezüglich des Geltungsbereichs des Namens „Bryozoa“ führte in den 1960er und 1970er Jahren zu Vorschlägen, diesen zu vermeiden und stattdessen den eindeutigen Begriff „Ectoprocta“ zu verwenden. [ 53 ] Diese Änderung hätte es jedoch erschwert, ältere Werke zu finden, in denen der Stamm noch als „Bryozoa“ bezeichnet wurde. Der Wunsch, Mehrdeutigkeiten zu vermeiden, hätte, konsequent auf alle Klassifikationen angewendet, die Umbenennung mehrerer anderer Stämme und vieler untergeordneter Gruppen erforderlich gemacht. [ 47 ] In der Praxis ist die zoologische Benennung von aufgespaltenen oder zusammengelegten Tiergruppen komplex und nicht völlig einheitlich. [ 54 ] Seit dem Jahr 2000 wurden in verschiedenen Arbeiten unterschiedliche Bezeichnungen verwendet, um die Mehrdeutigkeit aufzulösen, darunter: „Bryozoa“, [ 15 ] [ 18 ] „Ectoprocta“, [ 21 ] [ 25 ] „Bryozoa (Ectoprocta)“, [ 28 ] und „Ectoprocta (Bryozoa)“. [ 55 ] In einigen Arbeiten wurden mehrere Ansätze verwendet. [ 56 ]
Die gebräuchliche Bezeichnung „Moostiere“ ist die wörtliche Bedeutung von „Bryozoa“, abgeleitet von den griechischen Wörtern βρυόν („Moos“) und ζῷα („Tiere“), und basiert auf dem moosartigen Aussehen der krustenbildenden Arten. [ 57 ]
Bis 2008 gab es „unzureichend bekannte und missverstandene Typusarten der Cyclostomata-Bryozoenfamilie Oncousoeciidae“ [ 58 ] . Moderne Forschungen und Experimente mit Niedervakuum-Rasterelektronenmikroskopie an unbeschichtetem Typusmaterial haben die Taxonomie dreier Gattungen dieser Familie – Oncousoecia , Microeciella und Eurystrotos – kritisch untersucht und möglicherweise revidiert . Diese Methode ermöglicht die Gewinnung von Daten, die mit einem Lichtmikroskop schwer zu erfassen wären. Die gültige Typusart von Oncousoecia wurde als Oncousoecia lobulata identifiziert . Diese Interpretation stabilisiert Oncousoecia , indem sie eine Typusart festlegt, die der allgemeinen Verwendung der Gattung entspricht. Die ebenfalls zu den Oncousoeciiden gehörende Gattung Eurystrotos gilt nun nicht mehr als artgleich mit O. lobulata , wie zuvor angenommen, weist aber genügend Ähnlichkeiten auf, um als jüngeres Synonym von Oncousoecia betrachtet zu werden . Microeciella suborbicularus wurde kürzlich mithilfe der modernen Niedervakuum-Scanmethode von O. lobulata und O. dilatans unterschieden, mit denen sie in der Vergangenheit fälschlicherweise synonymisiert worden war. Außerdem wurde vor Kurzem eine neue Gattung namens Junerossia in der Familie Stomachetosellidae entdeckt, zusammen mit zehn relativ neuen Bryozoenarten wie Alderina flaventa , Corbulella extenuata , Puellina septemcryptica , Junerossia copiosa , Calyptotheca kapaaensis , Bryopesanser serratus , Cribellopora souleorum , Metacleidochasma verrucosa , Disporella compta und Favosipora adunca . [ 59 ]
Klassifizierung und Diversität
Die Anzahl der formal beschriebenen Arten schwankt zwischen 4.000 und 4.500. [ 60 ] Die Gymnolaemata und insbesondere die Cheilostomata weisen die größte Artenvielfalt auf, möglicherweise aufgrund ihrer großen Bandbreite an spezialisierten Zooiden. [ 25 ] Nach dem Linnéschen Klassifikationssystem , das noch immer als praktische Methode zur Benennung von Organismengruppen verwendet wird, [ 61 ] werden die lebenden Vertreter des Stammes Bryozoa wie folgt unterteilt: [ 15 ] [ 25 ]
| Klasse | Phylactolaemata | Stenolaemata | Gymnolaemata | |
|---|---|---|---|---|
| Befehl | Plumatellida [ 62 ] | Cyclostomatida | Ctenostomatida | Cheilostomata |
| Umgebungen | Süßwasser | Marine | Überwiegend maritim | |
| Lippenartige Epistom über dem Mund | Ja | keiner | ||
| Kolonieformen | Gallertartige Massen oder röhrenförmige Verzweigungsstrukturen [ 63 ] | Aufrecht oder inkrustierend [ 64 ] | Aufrecht, krustenbildend oder freilebend | |
| Exoskelettmaterial | Gelatinös oder membranös; unmineralisiert | Mineralisiert | Chitin , gallertartig oder membranartig; unmineralisiert | Mineralisiert |
| Operculum ("Deckel") | keiner | keine [ 64 ] (außer in der Familie Eleidae ) [ 65 ] | Bei den meisten Arten gibt es keine. | Ja (außer in der Gattung Bugula ). |
| Form des Lophophors | U-förmiges Aussehen(außer in der Gattung Fredericella , deren Lophophor kreisförmig ist) | Kreisförmig | ||
| Wie sich Lophophore verlängerte | Kompression der gesamten Körperwand | Kompression des membranösen Sacks(separate innere Epithelschicht , die die Leibeshöhle auskleidet) | Kompression der gesamten Körperwand | Einziehen eines flexiblen Abschnitts der Körperwand oder Ausdehnen eines inneren Sacks. |
| Arten von Zooiden | Nur Autozooiden | Begrenzte Heterozooide, hauptsächlich Gonozooide [ 66 ] | Stolonen und Stacheln sowie Autozooide [ 66 ] | Vollständiges Sortiment an Typen |
Fossilienbestand

| Stereobild | |||
|---|---|---|---|
| |||
| |||
| |||
| |||
| Fossilisiertes Skelett des Bryozoen Archimedes | |||


Fossilien von etwa 15.000 Bryozoenarten wurden gefunden. Bryozoen gehören zu den drei dominanten Gruppen paläozoischer Fossilien. [ 67 ] Bryozoen mit kalzitischen Skeletten waren eine wichtige Quelle der Karbonatminerale, aus denen Kalksteine bestehen, und ihre Fossilien sind ab dem Ordovizium weltweit in marinen Sedimenten äußerst häufig. Im Gegensatz zu Korallen und anderen im Fossilienbestand gefundenen Kolonietieren erreichten Bryozoenkolonien jedoch keine große Größe. [ 68 ] Fossile Bryozoenkolonien werden typischerweise stark fragmentiert und verstreut gefunden; die Erhaltung vollständiger Zoarien ist im Fossilienbestand selten, und die Rekonstruktion fragmentierter Zoarien wurde bisher relativ wenig erforscht. [ 69 ] Die größten bekannten fossilen Kolonien sind verzweigte Trepostomata-Bryozoen aus ordovizischen Gesteinen in den Vereinigten Staaten, die eine Höhe von 66 Zentimetern erreichen. [ 68 ]
Die ältesten bekannten Bryozoen mit mineralisiertem Skelett sind Protomelission und Dayingomelission . Ihre phosphatisierten Weichteile in modularen Skeletten wurden in der Xiannüdong-Formation ( Kambrium Stufe 3 ) im südlichen Shaanxi, China, gefunden. [ 14 ] Im Arenigium des frühen Ordoviziums [ 18 ] [ 70 ] , vor etwa 480 Millionen Jahren , waren alle modernen Ordnungen der Stenolaemata vorhanden [ 71 ] , und die Ordnung der Gymnolaemata , die Ctenostomata, trat im mittleren Ordovizium vor etwa 465 Millionen Jahren auf . Die Fossilien des frühen Ordoviziums könnten auch Formen repräsentieren, die sich bereits deutlich von den ursprünglichen Vertretern des Stammes unterschieden. [ 71 ] Ctenostomata mit phosphatisiertem Weichgewebe sind aus dem Devon bekannt. [ 72 ] Etwa zur gleichen Zeit traten andere Arten von Filtrierern auf, was darauf hindeutet, dass eine Veränderung die Umweltbedingungen für diese Lebensweise günstiger machte. [ 18 ] Fossilien von Cheilostomaten , einer Ordnung der Gymnolaematen mit mineralisierten Skeletten, tauchen erstmals im mittleren Jura vor etwa 172 Millionen Jahren auf. Sie waren von der Kreidezeit bis heute die häufigsten und vielfältigsten Bryozoen . [ 18 ] Funde aus den letzten 100 Millionen Jahren zeigen, dass Cheilostomatiden in Revierkämpfen stets die Oberhand über Cyclostomatiden gewannen. Dies könnte erklären, wie Cheilostomatiden Cyclostomatiden als dominante marine Bryozoen ablösten. [ 73 ] Marine Fossilien aus dem Paläozoikum , das vor 251 Millionen Jahren endete , sind hauptsächlich aufrecht wachsend. Die Fossilien aus dem Mesozoikum verteilen sich etwa gleichmäßig auf aufrechte und krustenbildende Formen, während jüngere Fossilien überwiegend krustenbildend sind. [ 74 ] Fossilien der weichen Süßwasser- Phylactolaemata sind sehr selten [ 18 ] und treten im und nach dem späten Perm auf (das vor etwa 260 Millionen Jahren begann).) und bestehen vollständig aus ihren beständigen Statoblasten. [ 63 ] Von Süßwasservertretern anderer Klassen sind keine Fossilien bekannt. [ 63 ]
Evolutionärer Stammbaum

Die Wissenschaftler sind sich uneins darüber, ob die Bryozoa (Ectoprocta) eine monophyletische Gruppe bilden (ob sie nur eine einzige Stammart und alle ihre Nachkommen umfassen), wer die nächsten Verwandten des Stammes im Stammbaum der Tiere sind und sogar darüber, ob sie als Mitglieder der Protostomier oder Deuterostomier betrachtet werden sollten , den beiden Hauptgruppen, die alle mäßig komplexen Tiere ausmachen.
Die molekulare Phylogenie, die versucht, den evolutionären Stammbaum von Organismen durch den Vergleich ihrer Biochemie und insbesondere ihrer Gene zu rekonstruieren , hat wesentlich zur Klärung der Verwandtschaftsverhältnisse zwischen den besser erforschten Stämmen der Wirbellosen beigetragen . [ 51 ] Der Mangel an genetischen Daten über „kleinere Stämme“ wie Bryozoen und Entoprocten hat jedoch deren Verwandtschaftsverhältnisse zu anderen Gruppen unklar gelassen. [ 52 ]
Traditionelle Sichtweise
Die traditionelle Ansicht besagt, dass die Bryozoa eine monophyletische Gruppe bilden, in der die Klasse Phylactolaemata am engsten mit den Stenolaemata und Ctenostomatida verwandt ist – den Klassen , die am frühesten im Fossilienbestand auftreten. [ 75 ] Eine molekularphylogenetische Studie aus dem Jahr 2005, die sich auf Phylactolaemata konzentrierte, kam jedoch zu dem Schluss, dass diese enger mit dem Stamm der Phoronida und insbesondere mit der einzigen koloniebildenden Phoronidenart verwandt sind als mit den anderen Klassen der Ectoprocten. Dies impliziert, dass die Entoprocta nicht monophyletisch sind, da die Phoronida zwar eine Untergruppe der Ectoprocten darstellen, die Standarddefinition der Entoprocta die Phoronida aber ausschließt. [ 75 ]

Eine weitere molekularphylogenetische Studie aus dem Jahr 2009 , die Gene aus Mitochondrien und Zellkern kombinierte , kam zu dem Schluss, dass die Bryozoa ein monophyletischer Stamm sind, also alle Nachkommen eines gemeinsamen Vorfahren umfassen, der selbst ein Bryozoe ist. Die Analyse ergab außerdem, dass die Klassen Phylactolaemata, Stenolaemata und Gymnolaemata ebenfalls monophyletisch sind, konnte aber nicht feststellen, ob die Stenolaemata enger mit den Phylactolaemata oder den Gymnolaemata verwandt sind . Die Gymnolaemata werden traditionell in die weichkörperigen Ctenostomatida und die mineralisierten Cheilostomata unterteilt, doch die Analyse von 2009 hielt es für wahrscheinlicher, dass keine dieser Ordnungen monophyletisch ist und dass sich mineralisierte Skelette wahrscheinlich mehrfach innerhalb der frühen Gymnolaemata entwickelten. [ 2 ]
Die Verwandtschaftsverhältnisse der Bryozoen zu anderen Stämmen sind unklar und umstritten. Die traditionelle Phylogenie, die auf Anatomie und der Entwicklung der adulten Formen aus Embryonen basiert , hat keinen dauerhaften Konsens über die Stellung der Ectoprocten hervorgebracht. [ 21 ] Versuche zur Rekonstruktion des Stammbaums der Tiere haben Ectoprocten und andere „kleine Stämme“ weitgehend ignoriert, da diese aufgrund ihrer geringen Größe, ihres relativ einfachen Körperbaus und ihrer geringen Bedeutung für die menschliche Wirtschaft wenig wissenschaftlich untersucht wurden – obwohl die „kleinen Stämme“ den größten Teil der Vielfalt in der Evolutionsgeschichte der Tiere umfassen. [ 77 ]
Nach Ansicht von Ruth Dewel, Judith Winston und Frank McKinney ist „unsere Standardinterpretation der Morphologie und Embryologie der Bryozoen ein Konstrukt, das aus über 100 Jahren Versuchen resultiert, einen einheitlichen Rahmen für alle Wirbellosen zu schaffen“, und berücksichtigt einige Besonderheiten der Ectoprocten nur unzureichend. [ 71 ]


In ectoprocts, all of the larva's internal organs are destroyed during the metamorphosis to the adult form and the adult's organs are built from the larva's epidermis and mesoderm, while in other bilaterians some organs including the gut are built from endoderm. In most bilaterian embryos the blastopore, a dent in the outer wall, deepens to become the larva's gut, but in ectoprocts the blastopore disappears and a new dent becomes the point from which the gut grows. The ectoproct coelom is formed by neither of the processes used by other bilaterians, enterocoely, in which pouches that form on the wall of the gut become separate cavities, nor schizocoely, in which the tissue between the gut and the body wall splits, forming paired cavities.[71]
Entoprocts
When entoprocts were discovered in the 19th century, they and bryozoans (ectoprocts) were regarded as classes within the phylum Bryozoa, because both groups were sessile animals that filter-fed by means of a crown of tentacles that bore cilia.
From 1869 onwards increasing awareness of differences, including the position of the entoproct anus inside the feeding structure and the difference in the early pattern of division of cells in their embryos, caused scientists to regard the two groups as separate phyla,[52] and "Bryozoa" became just an alternative name for ectoprocts, in which the anus is outside the feeding organ.[51] A series of molecular phylogeny studies from 1996 to 2006 have also concluded that bryozoans (ectoprocts) and entoprocts are not sister groups.[52]
However, two well-known zoologists, Claus Nielsen and Thomas Cavalier-Smith, maintain on anatomical and developmental grounds that bryozoans and entoprocts are member of the same phylum, Bryozoa. A molecular phylogeny study in 2007 also supported this old idea, while its conclusions about other phyla agreed with those of several other analyses.[52]
Grouping into the Lophophorata
1891 wurden Bryozoen (Ectoprocten) zusammen mit Phoroniden in einem Überstamm namens „Tentaculata“ zusammengefasst. In den 1970er Jahren legten Vergleiche zwischen Phoronidenlarven und den Cyphonautes -Larven einiger Gymnolaetes-Bryozoen die Vermutung nahe, dass die Bryozoen, von denen die meisten Kolonien bilden, sich aus einer halbkolonialen Phoronidenart entwickelt haben. [ 78 ] Auch Brachiopoden wurden den „Tentaculata“ zugeordnet und später in Lophophorata umbenannt, da sie alle einen Lophophor zur Filtrierung ihrer Nahrung nutzen. [ 51 ]
Die Mehrheit der Wissenschaftler akzeptiert dies [ 51 ] , Claus Nielsen hält diese Ähnlichkeiten jedoch für oberflächlich [ 21 ] . Die Lophophorata werden üblicherweise als Tiere mit einem Lophophor, einem dreiteiligen Coelom und einem U-förmigen Darm definiert [ 78 ] . Nielsens Ansicht nach ähneln die Lophophoren der Phoroniden und Brachiopoden eher denen der Pterobranchier [ 21 ] , die zum Stamm der Hemichordata gehören [ 79 ] . Die Tentakel der Bryozoen tragen Zellen mit mehreren Zilien , während die entsprechenden Zellen der Lophophoren von Phoroniden, Brachiopoden und Pterobranchiern jeweils nur eine Zilie besitzen; zudem fehlt den Bryozoen-Tentakeln der Hämalkanal („Blutgefäß“), den die Tentakel der anderen drei Stämme aufweisen [ 21 ] .
Wenn die Gruppierung der Bryozoen zusammen mit Phoroniden und Brachiopoden in Lophophorata korrekt ist, stellt sich die nächste Frage: Sind die Lophophorata Protostomier , zusammen mit den meisten Stämmen der Wirbellosen, oder Deuterostomier , zusammen mit Chordaten , Hemichordaten und Echinodermen ?
Die traditionelle Ansicht war, dass Lophophoraten Merkmale von Protostomiern und Deuterostomiern vereinten. Forschungen ab den 1970er Jahren legten nahe, dass sie Deuterostomier seien, da einige Merkmale als charakteristisch für Deuterostomier galten: ein dreiteiliges Coelom, eine radiale statt spiralige Furchung in der Embryonalentwicklung [ 51 ] und die Bildung des Coeloms durch Enterocoelie [ 21 ] . Allerdings zeigt das Coelom von Ectoprocten-Larven keine Anzeichen einer Dreiteilung [ 78 ] , und das Coelom adulter Ectoprocten unterscheidet sich von dem anderer Coelomaten- Stämme, da es nach der Metamorphose, die das larvale Coelom zerstört hat, neu aus Epidermis und Mesoderm gebildet wird [ 71 ] .
Molekulare Phylogenetik der Lophophora
Molekularphylogenetische Analysen ab 1995, die verschiedene biochemische Nachweise und Analysemethoden nutzten, ordneten die Lophophoraten den Protostomiern zu und ordneten sie eng den Anneliden und Mollusken innerhalb eines Überstammes namens Lophotrochozoa zu . [ 51 ] [ 80 ] Analysen, die sowohl morphologische Merkmale als auch eine relativ kleine Anzahl von Genen berücksichtigten, kamen zu unterschiedlichen Schlussfolgerungen, die jedoch meist eine enge Verwandtschaft zwischen Lophophoraten und Lophotrochozoa nahelegten. [ 80 ] Eine Studie aus dem Jahr 2008, die einen größeren Gensatz untersuchte, kam zu dem Schluss, dass die Lophophoraten näher mit den Lophotrochozoa als mit den Deuterostomiern verwandt sind, aber auch, dass die Lophophoraten keine monophyletische Gruppe bilden. Stattdessen kam man zu dem Schluss, dass Brachiopoden und Phoroniden eine monophyletische Gruppe bilden, die Bryozoen (Ectoprocten) jedoch am nächsten mit den Entoprocten verwandt sind, was die ursprüngliche Definition von „Bryozoa“ stützt. [ 80 ]
Sie sind der einzige größere Stamm ausschließlich klonaler Tiere, die aus modularen Einheiten, den sogenannten Zooiden, bestehen. Da sie in Kolonien leben, ermöglicht ihnen das koloniale Wachstum uneingeschränkte Formvariationen. Trotzdem wurden bisher nur wenige grundlegende Wuchsformen gefunden, die im Laufe der Geschichte der Bryozoen immer wieder auftraten. [ 67 ]




Ectoproct-Molekularphylogenetik
Die phylogenetische Stellung der Ectoprocten-Bryozoen ist weiterhin unklar, doch ihre Zugehörigkeit zu den Protostomia und insbesondere zu den Lophotrochozoa ist gesichert. Dies impliziert, dass die Ectoprocten-Larve ein Trochophora ist, dessen Corona ein Homolog des Prototrochs darstellt. Diese Annahme wird durch die Ähnlichkeit zwischen den Coronaten-Larven und den Pericalymma-Larven vom Typ 1 einiger Mollusken und Sipuncula gestützt, bei denen die Prototrochzone die Hyposphäre bedeckt. [ 81 ]
Eine Untersuchung der mitochondrialen DNA-Sequenz legt nahe, dass die Bryozoa mit den Chaetognatha verwandt sein könnten . [ 82 ]
Physiologie
Nahrungsaufnahme und Ausscheidung
Die meisten Arten sind Filtrierer , die kleine Partikel, hauptsächlich Phytoplankton (mikroskopisch kleine, im Wasser schwebende Pflanzen), aus dem Wasser filtern. [ 15 ] Die Süßwasserart Plumatella emarginata ernährt sich von Kieselalgen , Grünalgen , Cyanobakterien , nicht- photosynthetischen Bakterien, Dinoflagellaten , Rädertierchen , Protozoen , kleinen Nematoden und mikroskopischen Krebstieren . [ 83 ] Während die Strömungen, die Bryozoen erzeugen, um Nahrung zum Mund zu befördern, gut erforscht sind, wird die genaue Fangmethode noch diskutiert. Alle Arten schleudern zudem größere Partikel mit einem Tentakel zum Mund, und einige fangen Zooplankton (planktonische Tiere), indem sie ihre Tentakel wie Käfige benutzen. Darüber hinaus absorbieren die Tentakel, deren Oberfläche durch Mikrovilli (kleine Härchen und Falten) vergrößert ist, im Wasser gelöste organische Verbindungen . [ 15 ] Unerwünschte Partikel können mit den Tentakeln weggeschleudert oder durch Schließen des Mundes ausgeschlossen werden. [ 15 ] Eine Studie aus dem Jahr 2008 zeigte, dass sowohl krustenbildende als auch aufrechte Kolonien in schwacher Strömung schneller fraßen und schneller wuchsen als in starker Strömung. [ 84 ]
Bei einigen Arten bildet der erste Teil des Magens einen muskulösen Muskelmagen, der mit chitinösen Zähnen ausgekleidet ist, welche gepanzerte Beutetiere wie Kieselalgen zerkleinern . Wellenartige peristaltische Kontraktionen transportieren die Nahrung zur Verdauung durch den Magen. Der letzte Abschnitt des Magens ist mit Zilien (winzigen Härchen) ausgekleidet, die unverdaute Feststoffe zusammenpressen, welche dann durch den Darm und über den Anus ausgeschieden werden . [ 15 ]
Bei Bryozoen fehlen Nephridien („Nieren“) oder andere Ausscheidungsorgane [ 25 ]. Man geht davon aus, dass Ammoniak durch die Körperwand und den Lophophor diffundiert [ 15 ] . Komplexere Abfallprodukte werden nicht ausgeschieden, sondern sammeln sich im Polypid an , das nach einigen Wochen degeneriert. Ein Teil des alten Polypids wird recycelt, ein Großteil bleibt jedoch als große Masse absterbender Zellen mit angesammelten Abfallstoffen zurück und wird zu einem „braunen Körper“ komprimiert. Nach Abschluss der Degeneration bildet die Cystide (äußerer Teil des Tieres) ein neues Polypid, und der braune Körper verbleibt im Coelom oder im Magen des neuen Polypids und wird beim nächsten Kotabsatz ausgeschieden [ 15 ] .
Atmung und Kreislauf
Es gibt keine Atmungsorgane, kein Herz und keine Blutgefäße . Stattdessen nehmen die Zooide Sauerstoff auf und geben Kohlendioxid durch Diffusion ab. Bryozoen erreichen die Diffusion entweder durch eine dünne Membran (bei Anasca und einigen Polyzoa) oder durch Pseudoporen in der äußeren Dermis des Zooids. [ 85 ] Die verschiedenen Bryozoen-Gruppen nutzen unterschiedliche Methoden, um Nährstoffe und Sauerstoff zwischen den Zooiden auszutauschen: Einige weisen relativ große Lücken in den Körperwänden auf, die eine freie Zirkulation der Coelomflüssigkeit ermöglichen ; bei anderen sind die Funiculi (innere „kleine Fäden“) [ 31 ] benachbarter Zooide über kleine Poren in der Körperwand verbunden. [ 15 ] [ 28 ]
Fortpflanzung und Lebenszyklen

Alle Arten der Phylactolaemata sind simultane Hermaphroditen . Obwohl die Zooiden vieler mariner Arten protandrisch sind, also erst als Männchen und dann als Weibchen fungieren, enthalten ihre Kolonien eine Kombination aus Zooiden im männlichen und weiblichen Stadium. Bei allen Arten entwickeln sich die Ovarien an der Innenseite der Körperwand und die Hoden am Funiculus, der den Magen mit der Körperwand verbindet. [ 25 ] Eier und Spermien werden in die Leibeshöhle abgegeben. Die Spermien gelangen durch Poren an den Spitzen einiger Tentakel ins Wasser und werden dann von den Nahrungsströmen der eierproduzierenden Zooiden eingefangen. [ 15 ] Bei manchen Arten werden die Eier extern befruchtet, nachdem sie durch eine Pore zwischen zwei Tentakeln abgegeben wurden. Diese Pore befindet sich in einigen Fällen an der Spitze eines kleinen Fortsatzes, dem sogenannten Intertentakularorgan, an der Basis eines Tentakelpaares. Bei anderen Arten erfolgt die Befruchtung intern, entweder im Intertentakularorgan oder in der Leibeshöhle. [ 15 ]
Alle Phylactolaemata und Stenolaemata sowie die meisten Gymnolaemata besitzen Plazentation und haben daher lecithotrophe (nicht fressende) Larven. Mit Ausnahme der Cyclostomata und der kleinen Gymnolaemata-Familie Epistomiidae, die lebendgebärend sind, brüten alle ihre Embryonen selbst aus. Phylactolaemata brüten ihre Embryonen in einem inneren Brutsack, während bei Gymnolaemata sowohl äußere Membransäcke als auch Skelettkammern (Ovicellen) und innere Brutsäcke vorkommen. [ 86 ] [ 87 ] Der sich entwickelnde Embryo ernährt sich vom Dotter, von extraembryonaler Nahrung (Matrotrophie) oder von beidem. [ 88 ]
Bei Rippenwürmern stellt das Muttertier eine Brutkammer für die befruchteten Eier bereit, wobei sich ihr Polypid auflöst und den Embryo ernährt . Stenolaemata produzieren spezialisierte Zooide, die als Brutkammern dienen, und ihre Eier teilen sich darin, um bis zu 100 identische Embryonen hervorzubringen. [ 25 ]
Planktotrophe (fressende) Larven kommen ausschließlich in der Klasse Gymnolaemata vor: In der Unterordnung Malacostegina der Cheilostomata finden sie sich in den beiden Familien Membraniporidae und Electridae sowie in den drei Ctenostomata-Familien Alcyonidiidae, Farrellidae und Hislopiidae. Darüber hinaus existieren einige unbestätigte Funde, wie beispielsweise die solitär vorkommende Form Aethozoid, bei der Larven zwar nie beobachtet wurden, man aber von planktotrophen Larven ausgeht. [ 89 ] [ 90 ] [ 91 ]
Die Furchung von Bryozoeneiern verläuft biradial, das heißt, die frühen Stadien sind bilateral symmetrisch. Wie sich die Leibeshöhle bildet, ist unbekannt, da die Metamorphose von der Larve zum Adulttier sämtliche inneren Gewebe der Larve zerstört. Bei vielen Tieren tunnelt sich der Blastoporus , eine Öffnung in der Oberfläche des frühen Embryos, zum Darm durch. Bei Bryozoen hingegen schließt sich der Blastoporus, und eine neue Öffnung bildet den Mund. [ 15 ]
Bryozoenlarven variieren in ihrer Form, besitzen aber alle ein Wimpernband um den Körper, das ihnen das Schwimmen ermöglicht, einen Wimpernbüschel am Kopf und einen Haftsack, der sich ausstülpt und sie beim Ansiedeln auf einer Oberfläche verankert. [ 15 ] Einige Gymnolaemata-Arten produzieren Cyphonautenlarven, die wenig Dotter, aber einen gut entwickelten Mund und Darm besitzen und eine beträchtliche Zeit als Plankton leben , bevor sie sich ansiedeln. Diese Larven haben dreieckige Chitinschalen , die an einer Ecke oben und an der Basis offen sind und so eine Art Haube um den nach unten gerichteten Mund bilden. [ 25 ] Im Jahr 2006 wurde berichtet, dass die Wimpern der Cyphonautenlarven dieselben Techniken zur Nahrungsaufnahme nutzen wie die der adulten Tiere. [ 92 ] Arten, die ihre Embryonen ausbrüten, bilden Larven, die von einem großen Dotter ernährt werden , keinen Darm besitzen und keine Nahrung aufnehmen. Diese Larven siedeln sich schnell auf einer Oberfläche an. [ 15 ] Bei allen marinen Arten bilden die Larven Kokons, in denen sie sich nach der Ansiedlung vollständig metamorphosieren : Die Epidermis der Larve wird zur Auskleidung des Coeloms , und das innere Gewebe wird in einen Nahrungsvorrat umgewandelt, der das sich entwickelnde Zooid ernährt, bis es zur Nahrungsaufnahme bereit ist. [ 15 ] Die Larven der Phyllactolaematen produzieren mehrere Polypiden, sodass jede neue Kolonie mit mehreren Zooiden beginnt. [ 15 ] Bei allen Arten lassen die Gründerzooide die neuen Kolonien dann durch Knospung von Klonen wachsen. Bei Phyllactolaematen sterben die Zooiden nach der Produktion mehrerer Klone ab , sodass lebende Zooiden nur noch am Rand einer Kolonie zu finden sind. [ 15 ]
Phylactolaematen können sich auch ungeschlechtlich fortpflanzen. Diese Methode ermöglicht es der Kolonie, in den wechselhaften und unsicheren Bedingungen von Süßwasserhabitaten zu überleben. [ 25 ] Im Sommer und Herbst bilden sie scheibenförmige Statoblasten, Zellansammlungen, die als „Überlebenskapseln“ ähnlich den Gemmulae von Schwämmen fungieren . [ 15 ] Die Statoblasten bilden sich am Funiculus, der mit dem Darm des Muttertiers verbunden ist und sie ernährt. [ 25 ] Während ihres Wachstums entwickeln die Statoblasten schützende , muschelartige Schalen aus Chitin . Nach der Reifung haften einige Statoblasten an der Mutterkolonie, andere sinken zu Boden („Sessoblasten“), wieder andere enthalten Lufträume, die ihnen das Schweben ermöglichen („Floatoblasten“), [ 15 ] und einige verbleiben in der Zyste des Muttertiers, um die Kolonie im Falle ihres Absterbens wieder aufzubauen. [ 25 ] Statoblasten können über längere Zeiträume inaktiv bleiben und in diesem Zustand widrige Bedingungen wie Frost und Austrocknung überstehen . Sie können durch Tiere, Schwimmpflanzen, Strömungen [ 15 ] und Winde [ 25 ] sowie sogar im Darm größerer Tiere über weite Strecken transportiert werden. [ 93 ] Verbessern sich die Bedingungen, trennen sich die Schalenklappen, und die Zellen im Inneren entwickeln sich zu einem Zooid, das versucht, eine neue Kolonie zu gründen. Plumatella emarginata produziert sowohl „Sessoblasten“, die es der Linie ermöglichen, ein gutes Territorium zu kontrollieren, selbst wenn die Mutterkolonien durch Not dezimiert werden, als auch „Floatoblasten“, die sich an neue Standorte ausbreiten. Neue Kolonien von Plumatella repens produzieren hauptsächlich „Sessoblasten“, während ausgewachsene Kolonien auf „Floatoblasten“ umstellen. [ 83 ] Eine Studie schätzte, dass eine Koloniegruppe auf einer Fläche von einem Quadratmeter 800.000 Statoblasten produzierte. [ 15 ]
Cupuladriiden-Bryozoen können sich sowohl sexuell als auch asexuell fortpflanzen. Die sich sexuell fortpflanzenden Kolonien (aklonal) entstehen, wenn eine Cupuladriidenlarve zum adulten Stadium heranwächst, während die asexuellen Kolonien (klonal) durch die Entwicklung eines Fragments einer Cupuladriidenkolonie zu einer eigenen Kolonie entstehen. Die verschiedenen Fortpflanzungsformen der Cupuladriiden werden durch eine Vielzahl von Mechanismen erreicht, die von der Morphologie und Klassifizierung des Zooids abhängen. [ 94 ]
Ökologie
Lebensräume und Verbreitung
Die meisten Meeresarten leben in tropischen Gewässern in Tiefen von weniger als 100 Metern. Einige wenige wurden jedoch in Tiefseegräben gefunden , [ 95 ] insbesondere in der Nähe von Kaltwasseraustritten , und andere in der Nähe der Pole . [ 96 ] [ 97 ]
Die große Mehrheit der Bryozoen ist sessil . Typischerweise leben sessile Bryozoen auf harten Substraten wie Gestein, Sand oder Muschelschalen. [ 98 ] Bohrende Bryozoen hinterlassen nach dem Auflösen von Kalziumkarbonatsubstraten charakteristische Bohrspuren . [ 99 ] Krustenbildende Formen sind in flachen Meeren weitaus häufiger, während aufrechte Formen mit zunehmender Tiefe häufiger werden. [ 96 ] Ein Beispiel für die Krustenbildung auf Kieselsteinen und Geröllen findet sich bei den vielfältigen pleistozänen Bryozoen in Nordjapan, wo Fossilien einzelner Steine entdeckt wurden, die mit mehr als 20 Bryozoenarten bedeckt waren. [ 100 ] Sedimente mit kleineren Partikeln, wie Sand oder Schluff, sind normalerweise ungeeigneter Lebensraum für Bryozoen, jedoch wurden winzige Kolonien gefunden, die grobe Sandkörner überkrusteten. [ 101 ] Einige Bryozoenarten haben sich auf die Besiedlung von Meeresalgen, Seegraswiesen und sogar Mangrovenwurzeln spezialisiert; die Gattung Amphibiobeania lebt auf den Blättern von Mangrovenbäumen und wird als „amphibisch“ bezeichnet, da sie bei Ebbe regelmäßigen Luftkontakt überleben kann. [ 102 ]
Es gibt eine Vielzahl freilebender Bryozoen, die ohne Substratbindung leben. Einige Arten wie Cristatella können sich fortbewegen. Lunulitiforme Cheilostomata bilden eine Gruppe freilebender Bryozoen mit mobilen Kolonien. Sie bilden kleine, runde Kolonien ohne Substratbindung; Kolonien der Gattung Selenaria wurden dabei beobachtet, wie sie sich mithilfe von Borsten fortbewegen. [ 103 ] Eine weitere Cheilostomata-Familie, die Cupuladriidae, entwickelte konvergent ähnlich geformte, bewegliche Kolonien. Beobachtungen in einem Aquarium zeigten, dass Selenaria maculata-Kolonien mit einer Geschwindigkeit von einem Meter pro Stunde krochen, übereinander kletterten, sich dem Licht zuwandten und sich selbst wieder aufrichteten, wenn sie umgedreht wurden. [ 104 ] Spätere Untersuchungen dieser Gattung ergaben, dass die neuroelektrische Aktivität in den Kolonien mit der Bewegung hin zu Lichtquellen zunahm. Es wird angenommen, dass die Fähigkeit zur Fortbewegung als Nebeneffekt entstand, als Kolonien längere Borsten entwickelten, um sich aus dem Sediment zu befreien. [ 104 ]

Andere freilebende Moostierchen werden durch Wellen, Strömungen oder andere Phänomene verdriftet. Eine antarktische Art, Alcyonidium pelagosphaera , besteht aus treibenden Kolonien. Die pelagische Art hat einen Durchmesser von 5,0 bis 23,0 mm, ist hohlkugelförmig und besteht aus einer einzigen Schicht von Autozooiden. Es ist noch nicht bekannt, ob diese Kolonien ihr gesamtes Leben pelagisch verbringen oder nur ein vorübergehendes und bisher unbeschriebenes Jugendstadium darstellen. [ 96 ] [ 105 ] Kolonien der scheibenförmigen und ebenfalls freilebenden Art Alcyonidium disciforme bewohnen schlammige Meeresböden in der Arktis und können aufgenommene Sandkörner einlagern. Möglicherweise nutzen sie den Sand als Ballast, um sich nach dem Umkippen wieder aufzurichten. Einige Bryozoenarten können Bryolithe bilden, kugelförmige, freilebende Kolonien, die sich beim Umherrollen auf dem Meeresboden in alle Richtungen ausdehnen. [ 106 ]
Im Jahr 2014 wurde berichtet, dass die Moostierchenart Fenestrulina rugula in Teilen der Antarktis zu einer dominanten Art geworden ist. Die globale Erwärmung hat die Erosionsrate durch Eisberge erhöht , und diese Art ist besonders geschickt darin, erodierte Gebiete wiederzubesiedeln. [ 107 ]
Die Phylactolaemata leben in allen Arten von Süßwasserhabitaten – Seen und Teichen, Flüssen und Bächen sowie Ästuaren [ 63 ] – und gehören zu den häufigsten sessilen Süßwassertieren. [ 75 ] Einige Ctenostomen sind ausschließlich im Süßwasser anzutreffen, während andere Brackwasser bevorzugen, aber auch im Süßwasser überleben können. [ 63 ] Das Wissen der Wissenschaftler über Süßwasser-Bryozoenpopulationen ist in vielen Teilen der Welt, selbst in einigen Teilen Europas, unvollständig. Lange Zeit ging man davon aus, dass einige Süßwasserarten weltweit vorkommen, doch seit 2002 wurden diese in lokalisiertere Arten unterteilt. [ 63 ]
Bryozoen wachsen in Klonkolonien . Eine Bryozoenlarve siedelt auf einem festen Untergrund und bildet durch Knospung ungeschlechtlich eine neue Kolonie. Diese Kolonien können Tausende einzelner Zooiden hervorbringen. Obwohl die Zooidenkolonien ungeschlechtlich wachsen, sind Bryozoen Zwitter, und neue Kolonien können durch geschlechtliche Fortpflanzung und die Entstehung freischwimmender Larven entstehen. Werden die Kolonien jedoch zu groß, können sie sich teilen. Dies ist der einzige Fall, in dem ungeschlechtliche Fortpflanzung zu einer neuen, von der Vorgängerkolonie getrennten Kolonie führt. Die meisten Kolonien sind ortsfest. Sie siedeln sich bevorzugt auf unbeweglichen Untergründen wie Sedimenten und groben Substanzen an. Einige Süßwasserarten, wie beispielsweise Cristatella mucedo, können sich jedoch langsam mit einem kriechenden Fuß fortbewegen. [ 108 ]
Wechselwirkungen mit nicht-menschlichen Organismen

Marine Arten sind auf Korallenriffen häufig , machen aber selten einen signifikanten Anteil der Gesamtbiomasse aus. In gemäßigten Gewässern bilden die Skelette abgestorbener Kolonien einen bedeutenden Bestandteil des Muschelkieses, während lebende Kolonien in diesen Gebieten zahlreich vorkommen. [ 109 ] Die marine, netzartige Moostierchenart Membranipora membranacea bildet Stacheln als Reaktion auf die Prädation durch verschiedene Nacktschneckenarten . [ 110 ] Zu den weiteren Fressfeinden mariner Moostierchen zählen Fische, Seeigel , Pycnogoniden , Krebstiere , Milben [ 111 ] und Seesterne . [ 112 ] Im Allgemeinen fressen marine Stachelhäuter und Weichtiere ganze Zooidenmassen, indem sie Teile der Kolonien herausbrechen und so deren mineralisierte „Häuser“ zerstören, während die meisten Arthropoden, die Moostierchen fressen, einzelne Zooiden vertilgen. [ 113 ]
Im Süßwasser zählen Moostierchen neben Schwämmen und Muscheln zu den wichtigsten Filtrierern . [ 114 ] Süßwasser-Moostierchen werden von vielen Fressfeinden, darunter Schnecken, Insekten und Fischen, angegriffen. [ 83 ]
In Thailand hat die eingeschleppte Art Pomacea canaliculata (Goldapfelschnecke), die im Allgemeinen ein schädlicher Pflanzenfresser ist , die Populationen der Phylactolaematen überall dort, wo sie auftauchte, ausgelöscht. P. canaliculata ernährt sich auch von einer häufigen Süßwasser-Gymnolaematenart, jedoch mit weniger verheerenden Auswirkungen. Einheimische Schnecken ernähren sich nicht von Moostierchen. [ 11 ]
Mehrere Arten der Hydroidenfamilie Zancleidae leben in Symbiose mit Moostierchen (Bryozoen). Einige dieser Symbiosen sind für die Hydroiden vorteilhaft, andere parasitär . Bei manchen Hydroiden zeigen sich Formveränderungen, beispielsweise kleinere Tentakel oder eine Krustenbildung der Wurzeln durch Moostierchen. [ 115 ] Das Moostierchen Alcyonidium nodosum schützt die Wellhornschnecke Burnupena papyracea vor dem Fressfeind Jasus lalandii, einem kräftigen und gefräßigen Langustenfisch . Obwohl von Moostierchen überkrustete Wellhornschneckengehäuse widerstandsfähiger sind als solche ohne diese Verstärkung, stellen die von den Moostierchen produzierten chemischen Abwehrstoffe wahrscheinlich den bedeutendsten Schutzmechanismus dar. [ 116 ]

Im Banc d'Arguin vor der Küste Mauretaniens hat die Art Acanthodesia commensale , die üblicherweise auf Kies und Hartsubstraten wächst, eine fakultative Symbiose mit Einsiedlerkrebsen der Art Pseudopagurus cf. granulimanus gebildet . Dabei entstehen eiergroße Strukturen, sogenannte Bryolithe. [ 117 ] Die Bryozoenkolonien siedeln sich auf leeren Schneckenhäusern an und bilden mehrschichtige Skelettkrusten, die kugelförmige Krusten bilden und durch spiralförmiges, röhrenförmiges Wachstum die Wohnkammer des Einsiedlerkrebses erweitern.
Einige Phyllactolaematen-Arten sind Zwischenwirte für eine Gruppe von Myxozoen , die auch als Erreger einer proliferativen Nierenerkrankung gelten , welche bei Salmoniden oft tödlich verläuft [ 118 ] und die Wildfischbestände in Europa und Nordamerika stark dezimiert hat. [ 63 ]
Membranipora membranacea , deren Kolonien sich in einem breiten Spektrum von Strömungsgeschwindigkeiten außergewöhnlich schnell vermehren und ernähren, wurde1987 erstmals im Golf von Maine beobachtet und entwickelte sich rasch zum häufigsten Organismus auf Kelpwäldern . [ 84 ] Diese Invasion reduzierte die Kelppopulation durch das Abbrechen der Kelpblätter, [ 15 ] sodass ihr Platz als dominante „Vegetation“ in einigen Gebieten von einem anderen Eindringling, der großen Alge Codium fragile tomentosoides , eingenommen wurde . [ 84 ] Diese Veränderungen verringerten den Lebensraum für einheimische Fische und Wirbellose. M. membranacea hat auch die Nordwestküste der USA besiedelt. [ 15 ] Einige Süßwasserarten wurden zudem Tausende von Kilometern von ihren natürlichen Verbreitungsgebieten entfernt gefunden. Einige könnten auf natürlichem Wege als Statoblasten eingeschleppt worden sein. Andere wurden höchstwahrscheinlich vom Menschen verbreitet, beispielsweise durch importierte Wasserpflanzen oder als blinde Passagiere auf Schiffen. [ 93 ]
Interaktion mit Menschen
Fischzuchtbetriebe und Fischbrütereien haben aufgrund der proliferativen Nierenerkrankung , die durch eine oder mehrere Myxozoen verursacht wird , die Bryozoen als alternative Wirte nutzen, Bestandsverluste erlitten . [ 118 ]
Einige Fischer in der Nordsee mussten sich aufgrund einer Form von Ekzem (einer Hautkrankheit), bekannt als „ Doggerbank-Juckreiz “, [ 96 ], die durch den Kontakt mit Moostierchen verursacht wird, die an Netzen und Hummerfallen haften, andere Arbeit suchen. [ 119 ]
Marine Moostierchen sind häufig für den Bewuchs an Schiffsrümpfen, Docks und Marinas sowie an Offshore-Anlagen verantwortlich. Sie gehören zu den ersten Besiedlern neuer oder kürzlich gereinigter Strukturen. [ 109 ] Süßwasserarten treten gelegentlich als Plage in Wasserleitungen, Trinkwasseraufbereitungsanlagen, Kläranlagen und Kühlleitungen von Kraftwerken auf. [ 63 ] [ 120 ]
Eine Gruppe von chemischen Verbindungen, die Bryostatine genannt werden, kann aus dem marinen Moostierchen Bugula neritina gewonnen werden . Im Jahr 2001 lizenzierte das Pharmaunternehmen GPC Biotech Bryostatin 1 von der Arizona State University zur kommerziellen Entwicklung als Krebsbehandlung. GPC Biotech stellte die Entwicklung 2003 ein, da Bryostatin 1 nur geringe Wirksamkeit und einige toxische Nebenwirkungen aufwies. [ 121 ] Im Januar 2008 wurde den National Institutes of Health (NIH) der USA eine klinische Studie zur Untersuchung der Sicherheit und Wirksamkeit von Bryostatin 1 bei der Behandlung der Alzheimer-Krankheit vorgelegt. Bis zum geplanten Studienende Ende Dezember 2008 konnten jedoch keine Studienteilnehmer rekrutiert werden. [ 122 ] Neuere Studien zeigen positive Auswirkungen auf die Kognition bei Alzheimer-Patienten bei wenigen Nebenwirkungen. [ 123 ] Zur Gewinnung von 1 Gramm Bryostatin müssen etwa 1.000 Kilogramm ( 2.200 Pfund ) Bryozoen verarbeitet werden . Daher wurden synthetische Äquivalente entwickelt, die einfacher herzustellen und offenbar mindestens genauso wirksam sind . [ 124 ]
Siehe auch
Referenzen
- ^ Ernst, A. (2007). „Eine zystoporische Bryozoenart aus dem Zechstein (Oberperm)“. Paläontologische Zeitschrift . 81 (2): 113– 117. Bibcode : 2007PalZ...81..113E . doi : 10.1007/BF02988385 . S2CID 129637643 .
- Fuchs , J .; Obst, M.; Sundberg, P. (Juli 2009). „Die erste umfassende molekulare Phylogenie der Bryozoa (Ectoprocta) basierend auf kombinierten Analysen von Kern- und Mitochondriengenen“. Molecular Phylogenetics and Evolution . 52 (1): 225–233 . Bibcode : 2009MolPE..52..225F . doi : 10.1016/j.ympev.2009.01.021 . PMID 19475710 .
- Brusca , Richard C. (1980) [1973]. „21: Die Lophophorata-Stämme“ . Häufige Wirbellose der Gezeitenzone im Golf von Kalifornien (überarbeitete und erweiterte 2. Auflage). Tucson, AZ: University of Arizona Press. ISBN 9780816506828OCLC 1029265317 .
- ^ Bock, P.; Gordon, DP (August 2013). "Phylum Bryozoa Ehrenberg, 1831 " . Zootaxa . 3703 (1): 67– 74. doi : 10.11646/zootaxa.3703.1.14 .
- Schwaha , Thomas F.; Ostrovsky, Andrew N.; Wanninger, Andreas (Juni 2020). „Wichtige Neuerungen in der Evolution des aquatischen Kolonie-Phylums Bryozoa: Evidenz aus der Weichkörpermorphologie“ . Biological Reviews of the Cambridge Philosophical Society . 95 (3): 696–729 . Bibcode : 2020BioRv..95..696S . doi : 10.1111/brv.12583 . PMC 7317743. PMID 32032476 .
- Schwaha , Thomas; Bernhard, Joan M.; Edgcomb, Virginia P.; Todaro, M. Antonio (1. August 2019). „Aethosooides uraniae, eine neue Tiefseegattung und -art solitärer Bryozoen aus dem Mittelmeer, mit einer Revision der Aethosoidae“ . Marine Biodiversity . 49 (4): 1843–1856 . Bibcode : 2019MarBd..49.1843S . doi : 10.1007/s12526-019-00948-w . hdl : 11380/1174838 .
- ^ Thompson, John V. (1830). „Abhandlung V: Über Polyzoa, ein neues Tier, das als Bewohner einiger Zoophiten entdeckt wurde“ . Zoologische Forschungen und Illustrationen; oder Naturgeschichte unbeschreiblicher oder unvollkommen bekannter Tiere . Cork, Irland: King and Ridings. S. 89–102 .
- ^ Ehrenberg, Christian G. (1831). „Pars zoologica. Animalia evertebrata exclusis Insectis [Invertebrata außer Insecta]“ . Symbolae physicae, seu lcones et descriptiones corporum naturalium novorum aut minus cognitorum (in Latein). Berolini Ex officina Academica. S. 1–126 .
- ^ Stebbing, TRR (1911). „Die Begriffe Polyzoa und Bryozoa“ . Proceedings of the Linnean Society of London . Session 123 (Symposium): 61–72 .
- ^ a b Muir-Wood, HM (1955). Eine Geschichte der Klassifizierung des Stammes Brachiopoda . London: British Museum (Natural History). S. 13.
- ^ a b Wood, TS (Mai 2006). „Starker Prädationsdruck auf Süßwasser-Bryozoen durch die Goldene Apfelschnecke, Pomacea canaliculata “ (PDF) . Natural History Journal of Chulalongkorn University . 6 (1): 31–36 . Archiviert vom Original (PDF) am 6. Oktober 2011. Abgerufen am 18. August 2009 .
- Lauer , Antje (2016). „Watersipora subtorquata und die mögliche Rolle ihrer assoziierten Mikroben: Ein Erklärungsversuch für den außergewöhnlichen Invasionserfolg dieser marinen Bryozoenart“. Die mechanistischen Vorteile mikrobieller Symbionten . Fortschritte in der Umweltmikrobiologie. Band 2. Cham: Springer International Publishing. S. 239–268 . doi : 10.1007/978-3-319-28068-4_9 . ISBN 978-3-319-28066-0Gelegentlich können die Auswirkungen eines wirbellosen Eindringlings erheblich sein ;
dies wurde für Membranipora membranacea dokumentiert, eine schnell wachsende invasive Moostierchenart, die die Kelpwälder vor der Nordost- und Nordwestküste der USA so stark reduziert hat, dass sie die lokalen Fisch- und Wirbellosenpopulationen beeinträchtigt hat.
- ^ „Einführung in die Bryozoen“ . Berkeley, CA: Museum für Paläontologie der Universität von Kalifornien. Archiviert vom Original am 8. Dezember 2019. Abgerufen am 8. Dezember 2019 .
- Song , B .; Zhang, Z.; Strotz, LC; Topper, TP; Ernst, A.; Ma, J.; Zhang, Z.; Luo, M.; Holmer, LE; Liang, Y.; Hu, Y.; Zhang, C.; Chen, Y.; Brock, GA (2026). „ Hochpräzise modulare Skelette bestätigen einen kambrischen Ursprung der Bryozoa“ . Nature : 1–6 . doi : 10.1038/s41586-026-10590-9 .
- ^ a b c d e f g h i j k l m n o p q r s t u v w x y z aa ab ac ad ae ag ah ai aj ak al am an ao ap aq ar as at au av aw ax ay az ba bb bc bd be bf bg bh Ruppert , EE; Fox, RS & Barnes, RD (2004). „Lophoporata“ . Zoologie der Wirbellosen (7. Aufl.). Brooks / Cole. S. 829–845 . ISBN 978-0-03-025982-1Die
- ^ a b c Ruppert, EE; Fox, RS & Barnes, RD (2004). „Lophoporata“ . Invertebrate Zoology (7. Aufl.). Brooks/Cole. S. 817–821 . ISBN 978-0-03-025982-1Die
- ^ a b c Ruppert, EE; Fox, RS & Barnes, RD (2004). „Lophoporata“ . Invertebrate Zoology (7. Aufl.). Brooks/Cole. S. 821–829 . ISBN 978-0-03-025982-1Die
- ^ a b c d e f g h i j Rich, TH; Fenton, MA; Fenton, CL (1997). "„Moostiere“ oder Bryozoen . Das Fossilienbuch . Dover Publications. S. 142–152 . ISBN 978-0-486-29371-4Abgerufen am 7. August 2009 .
- ^ a b Ruppert, EE; Fox, RS & Barnes, RD (2004). „Kamptozoa and Cycliophora“ . Invertebrate Zoology (7. Aufl.). Brooks/Cole. S. 808–812 . ISBN 978-0-03-025982-1Die
- ^ a b Ruppert, EE; Fox , RS & Barnes, RD (2004). „Lophoporata“ . Invertebrate Zoology (7. Aufl.). Brooks/Cole. S. 817. ISBN 978-0-03-025982-1Die
- ^ a b c d e f g h i Nielsen, C. (Juli 2002). „Die phylogenetische Stellung von Entoprocta, Ectoprocta, Phoronida und Brachiopoda“ . Integrative and Comparative Biology . 42 (3): 685–691 . doi : 10.1093/icb/42.3.685 . PMID 21708765 .
- ^ Ruppert, EE; Fox, RS & Barnes, RD (2004). „Annelida“ . Invertebrate Zoology (7. Aufl.). Brooks/Cole. S. 414–420 . ISBN 978-0-03-025982-1Die
- ^ Ruppert, EE; Fox, RS & Barnes, RD (2004). Invertebrate Zoology (7. Aufl.). Brooks/Cole. S. 284–291 . ISBN 978-0-03-025982-1Die
- ^ Giere, O. (2009). „Tentaculata“ . Meiobenthologie (2. Aufl.). Springer Verlag. P. 227. ISBN 978-3-540-68657-6Archiviert vom Original am 8. März 2023. Abgerufen am 7. Juli 2009 .
- ^ a b c d e f g h i j k l m n o p q r s t u v w x y z Doherty , PJ (2001). „Die Lophophoraten“. In: Anderson, DT (Hrsg.). Wirbellosenzoologie (2. Aufl.). Oxford University Press. S. 363–373 . ISBN 978-0-19-551368-4Die
- ^ Little, W.; Fowler, H. W.; Coulson, J. & Onions, C. T. (1964). „Zooid“. Shorter Oxford English Dictionary . Oxford University Press. ISBN 978-0-19-860613-0Die
{{cite book}}:ISBN-/Datumsinkompatibilität ( Hilfe ) - ^ „Bryozoen und paläoökologische Interpretation“ (PDF) .
- ^ a b c d e Nielsen, C. (2001). „Bryozoa (Ectoprocta: 'Moos'-Tiere)“. Encyclopedia of Life Sciences . John Wiley & Sons, Ltd. doi : 10.1038/npg.els.0001613 . ISBN 978-0470016176Die
- ^ a b c d e f g h McKinney, FK; Jackson, JBC (1991). „Bryozoen als modulare Maschinen“ . Bryozoen-Evolution . University of Chicago Press. S. 1–13 . ISBN 978-0-226-56047-2Archiviert vom Original am 8. März 2023. Abgerufen am 29. Juli 2009 .
- ^ Riisgård, HU; Nielsen, C; Larsen, PS (2000). „Downstream collecting in ciliary suspension feeders: the catch-up principle“ (PDF) . Marine Ecology Progress Series . 207 : 33–51 . Bibcode : 2000MEPS..207...33R . doi : 10.3354/meps207033 . Archiviert (PDF) vom Original am 9. Oktober 2022. Abgerufen am 12. September 2009 .
- ^ a b "funiculus" . Random House Dictionary . Random House. Archiviert vom Original am 13. Mai 2010. Abgerufen am 2. August 2009 .
- ^ Hayward, PJ (1985). „Systematischer Teil“ . Ctenostome Bryozoen . Synopsen der britischen Fauna. Linnean Society of London. S. 106–107 . ISBN 978-90-04-07583-2Archiviert vom Original am 8. März 2023. Abgerufen am 2. August 2009 .
- ^ Giere, O. (2009). „Tentaculata“ . Meiobenthologie (2. Aufl.). Springer-Verlag. P. 227. ISBN 978-3-540-68657-6Archiviert vom Original am 8. März 2023. Abgerufen am 2. August 2009 .
- ^ Liddell, H. G.; Scott, R. (1940). „kenos“ . Ein griechisch-englisches Lexikon . Clarendon Press. ISBN 978-0-19-864226-8Archiviert vom Original am 8. März 2023. Abgerufen am 1. August 2009 .
{{cite book}}:ISBN-/Datumsinkompatibilität ( Hilfe ) - ^ Taylor 2020 , S. 72–73.
- ^ Taylor 2020 , S. 74.
- ^ Taylor 2020 , S. 59.
- ^ Taylor 2020 , S. 60.
- ^ Taylor 2020 , S. 65.
- ^ Taylor 2020 , S. 75.
- Branch, ML; Griffiths, CI; Beckley, LE ( 2007). „Bryozoa: Moose oder Spitzentiere“ . Zwei Ozeane – Ein Führer zur Meeresfauna des südlichen Afrikas . Struik. S. 104–110 . ISBN 978-1-77007-633-4Abgerufen am 2. August 2009 .
- ^ Little, W.; Fowler, H. W.; Coulson, J. & Onions, C. T. (1959). „Bryozoa“. Shorter Oxford English Dictionary . Oxford University Press. ISBN 978-0-19-860613-0Die
{{cite book}}:ISBN-/Datumsinkompatibilität ( Hilfe ) - ^ Eckman, JE; Okamura, B (Dezember 1998). „Ein Modell des Partikelfangs durch Bryozoen in turbulenter Strömung: Bedeutung der Kolonieform“. The American Naturalist . 152 (6): 861–880 . Bibcode : 1998ANat..152..861E . doi : 10.1086/286214 . PMID 18811433. S2CID 5535013 .
- ^ Vogel, S. (1996). „Leben in Geschwindigkeitsgradienten“ . Leben in bewegten Flüssigkeiten (2. Aufl.). Princeton University Press. S. 191. ISBN 978-0-691-02616-9Archiviert vom Original am 8. März 2023. Abgerufen am 5. August 2009 .
- ^ von Dassow, M. (1. August 2006). „Funktionsabhängige Entwicklung bei einem Kolonietier“ . Biological Bulletin . 211 (1): 76–82 . doi : 10.2307/4134580 . ISSN 0006-3185 . JSTOR 4134580. PMID 16946244. Archiviert vom Original am 6. Juli 2009. Abgerufen am 5. August 2009 .
- ^ Taylor, Paul D.; James, Noel P. (August 2013). „Säkulare Veränderungen in Kolonieformen und Bryozoen-Karbonatsedimenten im Laufe der geologischen Geschichte“ . Sedimentology . 60 (5): 1184–1212 . Bibcode : 2013Sedim..60.1184T . doi : 10.1111/sed.12032 . S2CID 128939236 .
- ^ a b Beatty, JA; Blackwelder (1974). „Namen der Stämme der Wirbellosen“. Systematic Zoology . 23 (4): 545–547 . doi : 10.2307/2412472 . JSTOR 2412472 .
- ^ a b Mayr, E. (Juni 1968). „Bryozoa versus Ectoprocta“. Systematic Zoology . 17 (2): 213–216 . doi : 10.2307/2412368 . JSTOR 2412368 .
- ^ Little, W.; Fowler, H. W.; Coulson, J. & Onions, C. T. (1964). „Ecto-“. Shorter Oxford English Dictionary . Oxford University Press. ISBN 978-0-19-860613-0Die
{{cite book}}:ISBN-/Datumsinkompatibilität ( Hilfe ) - ^ Little, W.; Fowler, H. W.; Coulson, J. & Onions, C. T. (1964). „Ento-“. Shorter Oxford English Dictionary . Oxford University Press. ISBN 978-0-19-860613-0Die
{{cite book}}:ISBN-/Datumsinkompatibilität ( Hilfe ) - Halanych, KM (2004). „ The new view of animal phylogeny“ (PDF) . Annual Review of Ecology, Evolution, and Systematics . 35 : 229–256 . doi : 10.1146 /annurev.ecolsys.35.112202.130124 . Archiviert (PDF) vom Original am 9. Oktober 2022. Abgerufen am 26. August 2016 .
- Hausdorf , B.; Helmkampf , M.; Meyer, A.; Witek, A.; Herlyn, H.; Bruchhaus, I.; Hankeln, T.; Struck, T. H.; Lieb, B. (2007). „ Spiralian Phylogenomics Supports the Resurrection of Bryozoa Comprising Ectoprocta and Entoprocta“ . Molecular Biology and Evolution . 24 (12): 2723–2729 . doi : 10.1093/molbev/msm214 . PMID 17921486 .
- ^ Cuffey, RJ (1969). „Bryozoa versus Ectoprocta – The Necessity for Precision“. Systematic Zoology . 18 (2): 250–251 . doi : 10.2307/2412617 . JSTOR 2412617 .
- ^ Ghiselin, MT (1977). „Über die Namensänderung höherer Taxa“. Systematic Zoology . 26 (3): 346–349 . doi : 10.2307/2412681 . JSTOR 2412681 .
- ^ Yokobori, S.; Iseto, T.; Asakawa, S.; Sasaki, T.; Shimizu, N.; Yamagishi, A.; Oshima, T.; Hirose, E. (Mai 2008). „Vollständige Nukleotidsequenzen der mitochondrialen Genome zweier solitärer Entoprocten, Loxocorone allax und Loxosomella aloxiata : Implikationen für die Phylogenie der Lophotrochozoa“. Molecular Phylogenetics and Evolution . 47 (2): 612–628 . Bibcode : 2008MolPE..47..612Y . doi : 10.1016/j.ympev.2008.02.013 . PMID 18374604 .
- ^ Reynolds, KT (2000). „Taxonomisch wichtige Merkmale auf der Oberfläche von Floatoblasten in Plumatella (Bryozoa)“. Microscopy and Microanalysis . 6 (3): 202–210 . Bibcode : 2000MiMic...6..202R . doi : 10.1017/S1431927600000349 . PMID 10790488 . Der Text beginnt mit „Phylum Ectoprocta (Bryozoa) ...“
- ^ Trumble, W.; Brown, L. (2002). „Bryozoa“ . Shorter Oxford English Dictionary . Oxford University Press. ISBN 978-0-19-860457-0Die
- ^ Taylor, Zaton 2008
- ^ Taylor, Paul D. (Oktober 2008). „Taxonomie der Bryozoengattungen Oncousoecia, Microeciella und Eurystrotos“. Journal of Natural History . 42 ( 39–40 ): 2557–2574 . doi : 10.1080/00222930802277640 . S2CID 84315311 .
- ^ Chapman, AD (2006). Anzahl der lebenden Arten in Australien und der Welt (PDF) . Ministerium für Umwelt und Kulturerbe, Australische Regierung. S. 34. ISBN 978-0-642-56849-6Archiviert ( PDF) vom Original am 9. Oktober 2022. Abgerufen am 7. August 2009 .
- ^ Ruppert, EE; Fox, RS & Barnes, RD (2004). „Einführung in die Wirbellosen“ . Wirbellosenzoologie (7. Aufl.). Brooks/Cole. S. 2–9 . ISBN 978-0-03-025982-1Die
- ^ „ITIS Standard Report Page: Phylactolaemata“ . Integriertes Taxonomisches Informationssystem. Archiviert vom Original am 18. Januar 2018. Abgerufen am 12. August 2009 .
- ^ a b c d e f g h Massard, JA; Geimer, Gaby (2008). „Globale Vielfalt von Bryozoen (Bryozoa oder Ectoprocta) im Süßwasser“. Hydrobiologie . 595 (1): 93– 99. Bibcode : 2008HyBio.595...93M . doi : 10.1007/s10750-007-9007-3 . S2CID 13057599 .
- ^ a b Fish, JD; Fish, S. (1996). „Bryozoa“ . Ein Leitfaden für Studierende zur Küste (2. Aufl.). Cambridge: Cambridge University Press. S. 418–419 . ISBN 978-0-521-46819-0Die
- ^ Jablonski, D.; Lidgard, S.; Taylor, P. D. (1997). „Vergleichende Ökologie der Radiationen der Bryozoen: Ursprung von Neuheiten bei Cyclostomata und Cheilostomata“. PALAIOS . 12 (6): 505–523 . Bibcode : 1997Palai..12..505J . doi : 10.2307/3515408 . JSTOR 3515408 .
- ^ a b Hayward, PJ; Ryland, JS (1985). „Schlüssel zu den höheren Taxa der marinen Bryozoen“ . Cyclostome Bryozoen . Linnean Society of London. S. 7. ISBN 978-90-04-07697-6Archiviert vom Original am 8. März 2023. Abgerufen am 9. August 2009 .
- ^ a b McKinney; Frank K; Jeremy. "Bryozoan Evolution". Boston: Unwin & Hyman, 1989.
- ^ ein b Ernst, Andrej (2020). „2- Fossilienbestand und Entwicklung von Bryozoen“. Stamm Bryozoen . S. 11–56 .
- ^ Jackson, Patrick N. Wyse; Key, Marcus M. Key Jr. (2019). „Verteilung von Epizoen und Endoskeletozoen in rekonstruierten ramosen stenolaematen Bryozoen-Zoaria aus dem Oberordovizium (Katium) der Cincinnati Arch Region, USA“. Australasian Palaeontological Memoirs . 52 : 169–178 .
- ^ Torsvik, TH; Ryan, Paul D.; Trench, Allan; Harper, David AT (Januar 1991). „Kambrisch-Ordovizische Paläogeographie von Baltica“. Geology . 19 (1): 7–10 . Bibcode : 1991Geo....19....7T . doi : 10.1130/0091-7613(1991)019<0007:COPOB>2.3.CO;2 .
- ^ a b c d e Dewel, RA; Winston, JE; McKinney, FJ (2002). „Deconstructing byozoans: origin and consequences of a unique body plan“ . In: Wyse Jacksdon, PE; Buttler, CE; Spencer Jones, ME (Hrsg.). Bryozoan studies 2001: proceedings of the Twelfth International Bryozoology Conference . ME Lisse: Swets and Zeitlinger. S. 93–96 . ISBN 978-90-5809-388-2Archiviert vom Original am 8. März 2023. Abgerufen am 13. August 2009 .
- ^ Olempska, E. (2012). „Außergewöhnliche Weichteilerhaltung in bohrenden Ctenostomen-Bryozoen und zugehörigen „Pilz“-Bohrungen aus dem Unterdevon von Podolien, Ukraine“ . Acta Palaeontologica Polonica . 57 (4): 925–940 . Bibcode : 2012AcPaP..57..925O . doi : 10.4202/app.2011.0200 .
- ^ McKinney, FK (1994). „Einhundert Millionen Jahre Konkurrenz zwischen Bryozoen-Klades: asymmetrisch, aber nicht eskalierend“. Biological Journal of the Linnean Society . 56 (3): 465–481 . doi : 10.1111/j.1095-8312.1995.tb01105.x .
- ^ Wood, R. (1999). Riffentwicklung . Oxford University Press. S. 235–237 . ISBN 978-0-19-857784-3Archiviert vom Original am 8. März 2023. Abgerufen am 11. August 2009 .
- ^ a b c Wood, TS; Lore M. (2005). „Die höhere Phylogenie der Phylactolaemata-Bryozoen, abgeleitet aus 18S-rDNA-Sequenzen“ (PDF) . In: Moyano, HI; Cancino, JM; Wyse-Jackson, PN (Hrsg.). Bryozoan Studies 2004: Proceedings of the 13th International Bryozoology Association . London: Taylor & Francis Group. S. 361–367 . Archiviert (PDF) vom Original am 9. Oktober 2022. Abgerufen am 24. August 2009 .
- ^ Pohowsky, RA (1978). „Die bohrenden Ctenostomata-Bryozoen: Taxonomie und Paläobiologie basierend auf Hohlräumen in kalkhaltigen Substraten“. Bulletins of American Paleontology . 73 : 192 S.
- ^ Garey, JR; Schmidt-Rhaesa, Andreas (1998). „Die essentielle Rolle der „kleineren“ Stämme in molekularen Studien zur Tier-Evolution“ . American Zoologist . 38 (6): 907–917 . doi : 10.1093/icb/38.6.907 .
- ^ a b c Nielsen, C. (2001). „Phylum Ectoprocta“ . Tierische Evolution: Verwandtschaftsbeziehungen der lebenden Stämme (2. Aufl.). Oxford University Press. S. 244–264 . ISBN 978-0-19-850681-2Archiviert vom Original am 8. März 2023. Abgerufen am 14. August 2009 .
- ^ „Einführung in die Hemichordata“ . Museum für Paläontologie der Universität von Kalifornien. Archiviert vom Original am 1. Februar 2019. Abgerufen am 22. September 2008 .
- Helmkampf , M.; Bruchhaus, Iris; Hausdorf, Bernhard (2008). „ Phylogenomische Analysen von Lophophoraten (Brachiopoden, Phoroniden und Bryozoen) bestätigen das Konzept der Lophotrochozoa“ . Proceedings of the Royal Society B: Biological Sciences . 275 ( 1645 ): 1927–1933 . Bibcode : 2008PBioS.275.1927H . doi : 10.1098 / rspb.2008.0372 . PMC 2593926. PMID 18495619 .
- ^ Nielsen , C.; Worsaae, K. (September 2010). „Struktur und Vorkommen von Cyphonautes-Larven (Bryozoa, Ectoprocta)“. Journal of Morphology . 271 (9): 1094–1109 . Bibcode : 2010JMorp.271.1094N . doi : 10.1002 / jmor.10856 . PMID 20730922. S2CID 11453241 .
- ^ Shen, X.; Tian, M.; Meng, X.; Liu, H.; Cheng, H.; Zhu, C.; Zhao, F. (September 2012). „Vollständiges mitochondriales Genom von Membranipora grandicella (Bryozoa: Cheilostomatida) mittels Next-Generation-Sequenzierung bestimmt: Der erste Vertreter der Unterordnung Malacostegina“. Comparative Biochemistry and Physiology Part D: Genomics and Proteomics . 7 (3): 248–253 . doi : 10.1016/j.cbd.2012.03.003 . PMID 22503287 .
- ^ a b c Callaghan, TP; R., Karlson (Juni 2002). „Sommerruhe als Schutz vor Mortalität bei der Süßwasser-Bryozoe Plumatella emarginata “ . Oecologia . 132 (1): 51–59 . Bibcode : 2002Oecol.132...51C . doi : 10.1007/s00442-002-0946-0 . PMID 28547286. S2CID 19925846 .
- ^ a b c Pratt, MC (2008). „Leben dort, wo die Strömung stimmt: Wie die Strömung die Nahrungsaufnahme bei Bryozoen beeinflusst“ (PDF) . Integrative and Comparative Biology . 48 (6): 808–822 . doi : 10.1093/icb/icn052 . PMID 21669834 .
- ^ Ryland, J. S. (1967). „Respiration in polyzoa (ectoprocta)“. Nature . 216 (5119): 1040–1041 . Bibcode : 1967Natur.216.1040R . doi : 10.1038/2161040b0 . S2CID 4207120 .
- ^ Nekliudova, UA; Schwaha, TF; Kotenko, ON; Gruber, D.; Cyran, N.; Ostrovsky, AN (2021). „Drei in einem: Evolution von Viviparie, coenocytischer Plazenta und Polyembryonie bei Cyclostomata - Bryozoen“ . BMC Ecology and Evolution . 21 (1): 54. doi : 10.1186/s12862-021-01775-z . PMC 8042935. PMID 33845757 .
- Moosbrugger , M.; Schwaha, T.; Walzl, MG; Obst, M.; Ostrovsky, AN (2012). „Das Plazentanalogon und das Muster der sexuellen Fortpflanzung beim Cheilostomen-Bryozoon Bicellariella ciliata (Gymnolaemata)“ . Frontiers in Zoology . 9 (1): 29. Bibcode : 2012FrZoo...9...29M . doi : 10.1186/1742-9994-9-29 . PMC 3489856. PMID 23098166 .
- ^ Kotenko, ON; Ostrovsky, AN (2024). „Die Entschlüsselung der Evolution der Bryozoenlarven“ . Paleontological Journal . 57 (11): 1306. Bibcode : 2024PalJ...57.1306K . doi : 10.1134/S0031030123110072 .
- ^ Decker, Sebastian; Wanninger, Andreas; Schwaha, Thomas (2020). „Morphologie und Lebenszyklus eines epiphytischen Pheruselliden-Ctenostomen-Bryozoons aus dem Mittelmeer“ . Organisms Diversity & Evolution . 20 (3): 417–437 . Bibcode : 2020ODivE..20..417D . doi : 10.1007/s13127-020-00443-2 .
- ^ Schwaha, Thomas (23. November 2020). Stamm Bryozoen . Walter de Gruyter GmbH & Co KG. ISBN 978-3-11-058631-2Die
- ^ Schwaha, Thomas; Zeppilli, Daniela; González-Casarrubios, Alberto; Cepeda, Diego (2024). „Das erste Tiefsee-Ctenostom-Bryozoon aus dem Indischen Ozean: Aethozoon flavum sp. nov“ . Marine Biodiversität . 54 (2): 19. Bibcode : 2024MarBd..54...19S . doi : 10.1007/s12526-024-01409-9 . HDL : 10486/716766 .
- ^ Strathmann, RR (März 2006). „Vielseitiges Zilienverhalten beim Partikelfang durch die Bryozoenlarve Cyphonautes“. Acta Zoologica . 87 (1): 83–89 . doi : 10.1111/j.1463-6395.2006.00224.x .
- ^ Wood , TS ; Okamura, Beth (Dezember 1998). „ Asajirella gelatinosa in Panama: eine Erweiterung des Bryozoen-Verbreitungsgebiets in der westlichen Hemisphäre“. Hydrobiologie . 390 ( 1– 3): 19– 23. doi : 10.1023/A:1003502814572 . S2CID 1525771 .
- ^ O'Dea, Aaron; Jackson, Jeremy BC; Taylor, Paul D.; Rodríguez, Felix (2008). „Fortpflanzungsmechanismen rezenter und fossiler Cupuladriiden-Bryozoen“ . Palaeontology . 51 (4): 847–864 . Bibcode : 2008Palgy..51..847O . doi : 10.1111/j.1475-4983.2008.00790.x . S2CID 41016220 .
- Emiliani , C. (1992). „Das Paläozoikum“ . Planet Erde: Kosmologie, Geologie und die Evolution des Lebens und der Umwelt . Cambridge University Press. S. 488–490 . ISBN 978-0-19-503652-7Abgerufen am 11. August 2009 .
- ^ a b c d Jones, RW (2006). „Principal fossil groups“ . Applied palaeontology . Cambridge University Press. S. 116. ISBN 978-0-521-84199-3Archiviert vom Original am 8. März 2023. Abgerufen am 11. August 2009 .
- ^ Kuklinski, P.; Bader, Beate (2007). „Vergleich von Bryozoen-Gemeinschaften aus zwei kontrastierenden arktischen Schelfregionen“. Estuarine, Coastal and Shelf Science . 73 ( 3–4 ): 835–843 . Bibcode : 2007ECSS...73..835K . doi : 10.1016/j.ecss.2007.03.024 .
- ^ Brusca, R; Brusca, G. „Wirbellose (2. Auflage)“. Sunderland, MA: Sinauer Associates.
- Johnson , Mildred J.; Lemer, Sarah; Hirose, Masato; Decker, Sebastian H.; Schwaha, Thomas (31. Dezember 2024). „Ökologie endolithischer Bryozoen: Kolonieentwicklung, Wachstumsraten und Interaktionen von Arten der Gattung Immergentia“ . Zoological Letters . 10 (1): 23. doi : 10.1186/s40851-024-00246-9 . ISSN 2056-306X . PMC 11686985. PMID 39736804 .
- ^ Taylor 2020 , S. 159.
- ^ Taylor 2020 , S. 164.
- ^ Taylor 2020 , S. 162–163.
- ^ Taylor 2020 , S. 112–113.
- ^ a b Taylor 2020 , S. 79.
- ^ Peck, LS; Hayward , PJ; Spencer-Jones, ME (Oktober 1995). „Ein pelagisches Bryozoon aus der Antarktis“ . Marine Biology . 123 (4): 757–762 . Bibcode : 1995MarBi.123..757P . doi : 10.1007/BF00349118 . S2CID 83529565. Archiviert vom Original am 3. August 2017. Abgerufen am 28. August 2017 .
- ^ Taylor 2020 , S. 114.
- ^ Matt McGrath (16. Juni 2014). "„Unkraut gedeiht dank wärmerer antarktischer Küsten“ . BBC News . Archiviert vom Original am 17. Juni 2014. Abgerufen am 16. Juni 2014 .
- ^ Ramel, Gordon (5. März 2020). „Bryozoen: Die faszinierenden Kolonien des Stammes Ectoprocta“ . Earthlife . Archiviert vom Original am 27. März 2022. Abgerufen am 19. Mai 2022 .
- ^ a b Margulis, L. ; Schwartz KV (1998). „Bryozoa“ . Fünf Reiche: Ein illustrierter Leitfaden zu den Stämmen des Lebens auf der Erde . Elsevier. S. 335. ISBN 978-0-7167-3027-9Abgerufen am 20. August 2009 .
- ^ Iyengar, EV; Harvell, CD (2002). „Spezifität der Reize, die die Ausbildung von Abwehrstacheln beim Bryozoen Membranipora membranacea auslösen“ . Marine Ecology Progress Series . 225 : 205–218 . Bibcode : 2002MEPS..225..205I . doi : 10.3354/meps225205 . Archiviert vom Original am 26. Januar 2012. Abgerufen am 18. August 2009 .
- ^ Hayward, PJ; Ryland, JS (1985). „Prädatoren“ . Cyclostomen-Bryozoen: Bestimmungsschlüssel und Hinweise zur Identifizierung der Arten . Brill Archive. S. 27. ISBN 978-90-04-07697-6Archiviert vom Original am 8. März 2023. Abgerufen am 18. August 2009 .
- ^ Day, RW; Osman, RW (Januar 1981). „Prädation von Bryozoen durch Patiria miniata (Asteroidea)“. Oecologia . 51 ( 3): 300–309 . Bibcode : 1981Oecol..51..300D . doi : 10.1007/BF00540898 . PMID 28310012. S2CID 19976956 .
- ^ McKinney, FK; Taylor, PD; Lidgard, S. (2003). „Prädation an Bryozoen und ihre Widerspiegelung im Fossilienbestand“ . In: Kelley, PH; Kowalewski, M.; Hansen, TA (Hrsg.). Räuber-Beute-Interaktionen im Fossilienbestand . Springer. S. 239–246 . ISBN 978-0-306-47489-7Archiviert vom Original am 8. März 2023. Abgerufen am 18. August 2009 .
- ^ Wood, TS (Oktober 2006). „Süßwasser-Bryozoen Thailands (Ectoprocta und Entoprocta)“ (PDF) . The Natural History Journal of Chulalongkorn University . 6 (2): 83–119 . Archiviert (PDF) vom Original am 9. Oktober 2022. Abgerufen am 24. August 2009 .
- ^ Puce, S. (2007). „Symbiotische Beziehungen zwischen Hydroiden und Bryozoen“ . International Symbiosis Society Congress Nr. 5. 44 ( 1–3 ) : 137–143 . Archiviert vom Original am 26. Januar 2012. Abgerufen am 18. August 2009 .
- ^ Gray, CA; McQuaid, CD; Davies-Coleman, MT (Dezember 2005). „Ein symbiotisches , schalenbewachsendes Bryozoon bietet sublittoralen Wellhornschnecken chemische Verteidigung gegen Langusten“. African Journal of Marine Science . 27 (3): 549–556 . Bibcode : 2005AfJMS..27..549G . doi : 10.2989/18142320509504115 . S2CID 84531235 .
- ^ Klicpera, André; Taylor, Paul D.; Westphal, Hildegard (30. Juli 2013). „Bryolithe, die von Bryozoen in symbiotischer Verbindung mit Einsiedlerkrebsen in einem tropischen heterozoischen Karbonatsystem im Golf von Arguin, Mauretanien, gebildet werden“ . Marine Biodiversity . 43 (4): 429–444 . Bibcode : 2013MarBd..43..429K . doi : 10.1007/s12526-013-0173-4 . S2CID 15841444. Archiviert vom Original am 11. Januar 2020. Abgerufen am 19. August 2019 .
- Anderson , C.; Canning, E. U.; Okamura, B. (1999). „ Molekulare Daten deuten darauf hin , dass Bryozoen Wirte für PKX (Stamm Myxozoa) sind und identifizieren eine Klade von Bryozoenparasiten innerhalb der Myxozoa . “ Parasitology . 119 (6): 555–561 . Bibcode : 1999Paras.119..555A . doi : 10.1017/S003118209900520X . PMID 10633916. S2CID 2851575. Archiviert vom Original am 26. Januar 2012. Abgerufen am 18. August 2009 .
- ^ Clin, B. (2008). „Berufsbedingtes photosensitives Ekzem bei Fischern durch Kontakt mit Bryozoen: eine behindernde berufsbedingte Dermatose“ ( PDF) . International Maritime Health . 59 ( 1–4 ): 1–4 . PMID 19227737. Archiviert (PDF) vom Original am 9. Oktober 2022. Abgerufen am 18. August 2009 .
- ^ Wood, TS; Marsh, Terrence G (Februar 1999). „Biofouling von Kläranlagen durch die Süßwasser-Bryozoe Plumatella vaihiriae “. Water Research . 33 (3): 609–614 . doi : 10.1016/S0043-1354(98)00274-7 .
- ^ „Bryostatin 1“ . 19. Juni 2006. Archiviert vom Original am 9. Mai 2007. Abgerufen am 20. August 2009 .
- ^ Cochran, Mark A. (19. August 2009). „Studie zu Sicherheit, Wirksamkeit, Pharmakokinetik und Pharmakodynamik von Bryostatin 1 bei Patienten mit Alzheimer-Krankheit“ . National Institutes of Health. Archiviert vom Original am 13. Juni 2011. Abgerufen am 20. August 2009 .
- Nelson , TJ; Sun, MK; Lim, C; Sen, A; Khan, T; Chirila, FV; Alkon, DL (2017). „Bryostatin Effects on Cognitive Function and PKCɛ in Alzheimer's Disease Phase IIA and Expanded Access Trials“ . Journal of Alzheimer's Disease . 58 (2): 521–535 . doi : 10.3233/JAD-170161 . PMC 5438479. PMID 28482641 .
- ^ Wender, PA; Baryza, JL; Bennett, CE; Bi, FC; Brenner, SE; Clarke, MO; Horan, JC; Kan, C; et al. (20. November 2002). „Die praktische Synthese eines neuen und hochwirksamen Bryostatin-Analogons“. Journal of the American Chemical Society . 124 (46): 13648–13649 . Bibcode : 2002JAChS.12413648W . doi : 10.1021/ja027509+ . PMID 12431074 .
Bibliographie
- Taylor, Paul D. (2020). Bryozoen-Paläobiologie . London: Natural History Museum. ISBN 9781118455005Die
Weiterführende Literatur
- Hall, S. R.; Taylor, P. D.; Davis, S. A.; Mann, S. (2002). „Elektronenbeugungsuntersuchungen der Kalkskelette von Bryozoen“. Journal of Inorganic Biochemistry . 88 ( 3–4 ): 410–419 . Bibcode : 2002JIBio..88..410H . doi : 10.1016/S0162-0134(01)00359-2 . PMID: 11897358 .
- Hayward, PG, JS Ryland und PD Taylor (Hrsg.), 1992. Biologie und Paläobiologie der Bryozoen , Olsen und Olsen, Fredensborg, Dänemark.
- Winston, JE (2010). „Leben in den Kolonien: Die fremden Verhaltensweisen kolonialer Organismen kennenlernen“ . Integrative and Comparative Biology . 50 (6): 919–933 . doi : 10.1093/icb/icq146 . PMID 21714171 .
- Robison, RA (Hrsg.), 1983. Treatise on Invertebrate Paleontology , Teil G, Bryozoa (überarbeitet). Geological Society of America und University of Kansas Press.
- Sharp, JH; Winson, MK; Porter, JS (2007). „Bryozoenmetaboliten: Eine ökologische Perspektive“ (PDF) . Natural Product Reports . 24 (4): 659–673 . doi : 10.1039/b617546e . hdl : 2160/3792 . PMID 17653353. Archiviert (PDF) vom Original am 9. Oktober 2022.
- Taylor, P.; Wilson, M.A. (2003). „Paläoökologie und Evolution mariner Hartsubstratgemeinschaften“ (PDF) . Earth-Science Reviews . 62 (1): 1–103 . Bibcode : 2003ESRv...62....1T . doi : 10.1016/S0012-8252(02)00131-9 . Archiviert vom Original (PDF) am 25. März 2009.
- Vinn, Olev; Wilson, Mark A.; Mõtus, Mari-Ann; Toom, Ursula (2014). „Der früheste Bryozoenparasit: Mittleres Ordovizium (Darriwilium) der Insel Osmussaar, Estland“ . Palaeogeography, Palaeoclimatology, Palaeoecology . 414 : 129–132 . Bibcode : 2014PPP...414..129V . doi : 10.1016/j.palaeo.2014.08.021 .
- Woollacott, RM und RL Zimmer (Hrsg.), 1977. Die Biologie der Bryozoen , Academic Press, New York.
Externe Links
- Index zu Bryozoa Bryozoa Homepage, ehemals RMIT; jetzt bryozoa.net
- Weitere WWW-Ressourcen zu Bryozoen
- offizielle Website der Internationalen Bryozoologischen Vereinigung
- Neogene Bryozoen Großbritanniens
- Einführung zu den Bryozoen ( Archiviert am 23. September 2006 im Internet Archive) .
- Der Stamm Ectoprocta (Bryozoa)
- Stamm Bryozoa bei Wikispecies
- Bryozoen im Connecticut River
- Bryozoen-Datenblatt