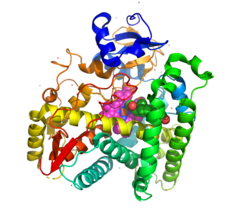
Das Proto-Onkogen Tyrosin-Protein-Kinase Fyn (p59-FYN, Slk, Syn, MGC45350, Gen-ID 2534) [ 5 ] ist ein Enzym , das beim Menschen durch das FYN -Gen kodiert wird . [ 6 ]
Fyn ist ein 59 kDa großes Mitglied der Src-Kinasefamilie und typischerweise an der T-Zell- und neuronalen Signalübertragung während der Entwicklung und der normalen Zellphysiologie beteiligt. Störungen dieser Signalwege haben häufig Auswirkungen auf die Entstehung verschiedener Krebsarten. Per Definition kodiert Fyn als Proto-Onkogen für Proteine, die das Zellwachstum regulieren. Veränderungen in seiner DNA-Sequenz wandeln es in ein Onkogen um, was zur Bildung eines anderen Proteins führt, das Auswirkungen auf die normale Zellregulation hat. [ 5 ] [ 7 ]
Fyn gehört zur Familie der Protein-Tyrosin-Kinase -Onkogene . Es kodiert für eine membrangebundene Tyrosin-Kinase, die an der Regulation des Zellwachstums beteiligt ist. Das Protein assoziiert mit der p85-Untereinheit der Phosphatidylinositol-3-Kinase und interagiert mit dem Fyn-Bindungsprotein . Es existieren alternativ gespleißte Transkriptvarianten, die für unterschiedliche Isoformen kodieren. [ 8 ]
Geschichte
Fyn gehört zur Src-Familie der Kinasen (SFK) und ist das erste identifizierte Proto-Onkogen. Die Entdeckung der Src-Familie im Jahr 1976 führte 1989 zur Verleihung des Nobelpreises für Medizin an J. M. Bishop und E. M. Varmus. Fyn wurde 1986 erstmals als Syn oder Slk mithilfe von Sonden identifiziert, die von v-yes und v-fgr abgeleitet waren. SFKs sind typischerweise in Tumoren überexprimiert. Fyn unterscheidet sich funktionell von seinen Familienmitgliedern dadurch, dass es bei der Regulation von Zellmorphologie und -motilität mit FAK und Paxillin (PXN) interagiert. [ 9 ]
Funktion
Fyn ist ein Protein, das im Signalweg der Integrine vorkommt und Ras aktiviert . Fyn ist eine Tyrosin-spezifische Phosphotransferase und gehört zur Src-Familie der nicht-rezeptorischen Tyrosin-Proteinkinasen . [ 10 ] (Zu dieser Familie gehören auch Abl, Src, die fokale Adhäsionskinase und die Januskinase.) Fyn befindet sich stromabwärts von mehreren Zelloberflächenrezeptoren, die häufig mit der neuronalen Entwicklung und der T-Zell-Signalübertragung assoziiert sind. Bei Aktivierung von Fyn kommt es zur Aktivierung nachgeschalteter molekularer Signale, die Prozesse steuern, die für Wachstum und Motilität von Zellen entscheidend sind. [ 9 ] Fyn ist primär auf der zytoplasmatischen Seite der Plasmamembran lokalisiert, wo es Tyrosinreste an wichtigen Zielproteinen phosphoryliert, die an verschiedenen Signalwegen beteiligt sind. Die Tyrosinphosphorylierung von Zielproteinen durch Fyn dient entweder der Regulation der Zielproteinaktivität und/oder der Generierung einer Bindungsstelle auf dem Zielprotein, die andere Signalmoleküle rekrutiert. Fyn wirkt zudem als Tumorsuppressor. Wenn diese normale Biologie beeinträchtigt ist, beteiligt sich das veränderte Fyn an der neoplastischen Transformation normaler Zellen in Krebszellen, indem es dem Pfad von der präinvasiven über die invasive bis hin zur Metastasierung folgt. [ 7 ]
Fyn scheint auch bei der Befruchtung eine wichtige Rolle zu spielen, unter anderem bei der schnellen , Inositoltrisphosphat- vermittelten Kalziumsignalübertragung, die bei der Interaktion von Eizelle und Spermium stattfindet. Die Fyn-Expression ist in Eizellen deutlich höher als selbst in Neuronen und T-Zellen, und es wurde vermutet, dass es sich um eine „eizellenspezifische Kinase“ handelt. [ 11 ] Mehrere Studien deuten darauf hin, dass Fyn für dramatische biochemische Veränderungen im Eizellkortex während der Eizellreifung verantwortlich ist. [ 12 ] Fyn spielt möglicherweise auch eine wichtige Rolle bei der korrekten Formgebung des Spermienkopfes und des Akrosoms im Hoden und hat möglicherweise eine zusätzliche Funktion bei der Akrosomreaktion der Spermien . [ 13 ]
Rolle in Signalwegen
Das Verständnis der Rolle von Fyn in normalen biologischen Prozessen ist entscheidend für das Verständnis seiner Rolle bei Krebs, da Krebs auf der Fehlregulation dieser normalen Signalwege beruht. Die Kenntnis der an Fyn beteiligten Signalwege liefert wichtige Erkenntnisse für die Entwicklung potenzieller pharmakologischer Wirkstoffe zur Abschwächung dieser unkontrollierten Signalübertragung.
Mindestens drei Werkzeuge haben sich als nützlich erwiesen, um die Notwendigkeit der Fyn-Funktion in einem bestimmten Signalsystem zu ermitteln:
- Zellen, die von Fyn-/- Mäusen stammen (sowie Zellen, die von Fyn, Src , Yes , Fyn Triple-Knockout-Mäusen (SYF) stammen);
- eine Kinase-inaktive, dominant-negative Mutante von Fyn (K299M);
- Pharmakologische Inhibitoren von Src-Familienkinasen, wie zum Beispiel PP2 ; zu beachten ist, dass PP2 auch andere Tyrosin-Proteinkinasen wie Abl , PDGFR und c-Kit hemmt .
Mithilfe dieser Methoden konnte gezeigt werden, dass Fyn für die folgenden Signalwege erforderlich ist: Signalübertragung von T- und B-Zell-Rezeptoren [14, 15 ] , Integrin - vermittelte Signalübertragung , Signalübertragung von Wachstumsfaktor- und Zytokinrezeptoren, Thrombozytenaktivierung , Ionenkanalfunktion , Zelladhäsion , Axonführung , Befruchtung , Eintritt in die Mitose sowie Differenzierung von natürlichen Killerzellen, Oligodendrozyten und Keratinozyten . Fyn spielt außerdem eine wichtige Rolle bei TLR-vermittelten Immunantworten von T-Zellen [ 16 ] .
Wechselwirkungen
Es wurde gezeigt, dass FYN mit folgenden Stoffen interagiert :
- ADD2 , [ 17 ]
- BCAR1 , [ 18 ] [ 19 ]
- C-Raf , [ 20 ]
- CBLC , [ 21 ]
- CD36 , [ 22 ] [ 23 ]
- CD44 , [ 24 ]
- CDH1 , [ 25 ]
- CHRNA7 , [ 26 ]
- CTNND1 , [ 25 ] [ 27 ]
- CBL , [ 28 ] [ 29 ]
- CSF1R , [ 30 ]
- DLG4 , [ 31 ] [ 32 ]
- Dystroglykan , [ 33 ]
- EPHA8 , [ 34 ]
- FYB , [ 35 ] [ 36 ]
- FASLG , [ 37 ] [ 38 ]
- GNB2L1 , [ 39 ] [ 40 ]
- GRIN2A , [ 31 ] [ 32 ] [ 41 ] [ 42 ]
- ITK , [ 43 ] [ 44 ]
- Januskinase 2 , [ 45 ]
- KHDRBS1 , [ 46 ] [ 47 ]
- Lck , [ 48 ]
- LKB1 , [ 49 ]
- Nephrin , [ 50 ] [ 51 ]
- PAG1 , [ 52 ]
- PIK3R2 , [ 53 ]
- PRKCQ , [ 54 ]
- PTK2B , [ 55 ] [ 56 ] [ 57 ]
- PTK2 , [ 58 ] [ 59 ]
- PTPRT [ 60 ]
- UNC119 , [ 61 ]
- RICS , [ 62 ]
- SH2D1A , [ 63 ] [ 64 ]
- SKAP1 , [ 36 ] [ 65 ] [ 66 ]
- Syk , [ 29 ]
- TNK2 , [ 67 ]
- TRPC6 , [ 68 ]
- Tau-Protein , [ 69 ]
- TrkB , [ 70 ]
- TYK2 , [ 71 ]
- TUBA3C , [ 69 ]
- WAS , [ 72 ] [ 73 ] [ 74 ] und
- ZAP-70 , [ 75 ]
Rolle in der Krebsbiologie
Die Src-Familie der Kinasen wird häufig mit ihrer Rolle bei „Invasion und Tumorprogression, epithelial-mesenchymaler Transition, Angiogenese und Metastasierung“ in Verbindung gebracht – allesamt Kennzeichen der Krebsentwicklung. [ 9 ] Die normale Funktion von Fyn im Zellwachstum und der Zellproliferation birgt das Potenzial, für die Progression und Metastasierung von Krebszellen ausgenutzt zu werden. Es wurde festgestellt, dass eine Überexpression von Fyn die morphologische Transformation normaler Zellen antreibt und „verankerungsunabhängiges Wachstum sowie ausgeprägte morphologische Veränderungen“ verstärkt. [ 5 ]
Die Überexpression von Fyn wurde im Zusammenhang mit folgenden Krebsarten untersucht: Prostatakrebs, Glioblastom, Plattenepithelkarzinom des Kopf-Hals-Bereichs, Pankreaskrebs, chronische medulläre Leukämie und Melanom. [ 5 ] [ 76 ] Diese Überexpression führt bei Prostatakrebs zu einer verstärkten antiapoptotischen Aktivität von Akt, wodurch diese Zellen die Fähigkeit erlangen, den normalen Zelltod zu umgehen (ein häufiges Kennzeichen von Krebs). [ 7 ] Darüber hinaus wurden Src und Fyn bei Glioblastom als Effektoren der onkogenen EGFR-Signalübertragung identifiziert, was zu Tumorinvasion und dem Überleben von Krebszellen führt. [ 5 ]
Die normale Funktion von Fyn bei der Zellmigration und -adhäsion ermöglicht es ihm, die normale Zellbiologie von Integrin und FAK für das Krebswachstum zu nutzen. Normales Integrin ist ein Zelloberflächenrezeptor, der mit der extrazellulären Matrix interagiert und Signale sendet, die Zellform und -motilität beeinflussen. Normales FAK ist eine Tyrosinkinase, die an fokale Adhäsionsstellen rekrutiert wird und eine Schlüsselrolle bei der gerichteten Zellbewegung spielt. Diese normalen Signalwege spielen eine Schlüsselrolle bei der Vermittlung von Fyn-vermittelten zellulären Ereignissen, die Form und Motilität beeinflussen. Eine beeinträchtigte Version dieses Signalwegs würde es Krebszellen ermöglichen, Form und Motilität zu verändern, wodurch die Wahrscheinlichkeit für fortgeschrittene Invasion und Metastasierung steigt. Weitere Signalwege, die im Zusammenhang mit der Rolle von Fyn bei der Krebsentwicklung untersucht werden, umfassen die Rac- und Rho-Familie der GTPasen, Ras, Erk und MAPK. [ 5 ] [ 7 ]
Aus diesem Grund ist Fyn ein häufiges Zielmolekül in der Krebsforschung. Die Hemmung von Fyn (wie auch anderer SFKs) führt zu verringertem Zellwachstum. Darüber hinaus konnte gezeigt werden, dass die Expression von Kinase-inaktivem Fyn (KD-Fyn), einem spezifischen Konkurrenten des endogenen Fyn, die Größe von Primärtumoren in Mäusen reduziert. Die gezielte Nutzung der einzigartigen charakteristischen Eigenschaften von Fyn sowie die Hemmung von FAK und PXN bergen das Potenzial, eine hochwirksame, molekular gezielte Kombinationstherapie gegen Krebs zu entwickeln. [ 7 ] [ 9 ] Fyn-Inhibitoren werden auch als potenzielle Therapien für die Alzheimer-Krankheit erforscht. [ 77 ]
Referenzen
- ^ a b c GRCh38: Ensembl Release 89: ENSG00000010810 – Ensembl , Mai 2017
- ^ a b c GRCm38: Ensembl Release 89: ENSMUSG00000019843 – Ensembl , Mai 2017
- ^ „Human PubMed Reference:“ . National Center for Biotechnology Information, US National Library of Medicine .
- ^ „Maus PubMed-Referenz:“ . National Center for Biotechnology Information, US National Library of Medicine .
- ^ a b c d e f Saito YD, Jensen AR, Salgia R, Posadas EM (01.04.2010). „Fünen“ . Krebs . 116 (7): 1629–1637 . doi : 10.1002/cncr.24879 . ISSN 1097-0142 . PMC 2847065 . PMID 20151426 .
- ^ Semba K, Nishizawa M, Miyajima N, Yoshida MC, Sukegawa J, Yamanashi Y, et al. (August 1986). „Das Yes-verwandte Protoonkogen Syn gehört zur Familie der Proteintyrosinkinasen“ . Proceedings of the National Academy of Sciences of the United States of America . 83 (15): 5459–5463 . Bibcode : 1986PNAS...83.5459S . doi : 10.1073 / pnas.83.15.5459 . PMC 386306. PMID 3526330 .
- Posadas EM, Al - Ahmadie H, Robinson VL, Jagadeeswaran R, Otto K , Kasza KE et al. (2009-01-01). „FYN ist in menschlichem Prostatakrebs überexprimiert“ . BJU International . 103 ( 2): 171–177 . doi : 10.1111 / j.1464-410X.2008.08009.x . ISSN 1464-410X . PMC 2741693. PMID 18990162 .
- ^ "Entrez Gene: FYN FYN-Onkogen verwandt mit SRC, FGR, YES" .
- ^ a b c d Sen B, Johnson FM (2011-04-04). „ Regulation von Src-Familienkinasen in menschlichen Krebsarten“ . Journal of Signal Transduction . 2011 865819. doi : 10.1155/2011/865819 . ISSN 2090-1739 . PMC 3135246. PMID 21776389 .
- ^ Resh MD (November 1998). „Fyn, eine Tyrosinkinase der Src-Familie“. The International Journal of Biochemistry & Cell Biology . 30 (11): 1159–1162 . doi : 10.1016/S1357-2725(98)00089-2 . PMID 9839441 .
- ^ Kinsey WH (24. Mai 2014). „SRC-Familien-Tyrosinkinasen in der Oogenese, Oozytenreifung und Befruchtung: Eine evolutionäre Perspektive“. In: Sutovsky P (Hrsg.). Posttranslationale Proteinmodifikationen im Reproduktionssystem. Fortschritte in der experimentellen Medizin und Biologie . Band 759. Springer. S. 33–56 . doi : 10.1007/978-1-4939-0817-2_3 . ISBN 978-1-4939-0816-5PMC 4324500 . PMID 25030759 .
- ^ McGinnis LK, Limback SD, Albertini DF (Januar 2013). „Kapitel 8 – Signalwege während der Oogenese bei Säugetieren“. In: Wassarman PM (Hrsg.). Aktuelle Themen der Entwicklungsbiologie . Band 102. Academic Press. S. 227–242 . doi : 10.1016/B978-0-12-416024-8.00008-8 . ISBN 978-0-12-416024-8PMID 23287035 .
- ^ Luo J, Gupta V, Kern B, Tash JS, Sanchez G, Blanco G, et al. (Januar 2012). „Rolle der FYN-Kinase in der Spermatogenese: Charakteristische Defekte von Fyn-Null-Spermien bei Mäusen“ . Biology of Reproduction . 86 (1): 1–8 . doi : 10.1095 / biolreprod.111.093864 . PMC 3313667. PMID 21918125 .
- Zamoyska R, Basson A, Filby A, Legname G, Lovatt M, Seddon B (Februar 2003). „Der Einfluss der Src-Familienkinasen Lck und Fyn auf die Differenzierung, das Überleben und die Aktivierung von T-Zellen“. Immunological Reviews . 191 ( 1): 107–118 . doi : 10.1034/j.1600-065X.2003.00015.x . PMID 12614355. S2CID 10156186 .
- ^ Palacios EH, Weiss A (Oktober 2004). „Funktion der Src-Familienkinasen Lck und Fyn in der T-Zell-Entwicklung und -Aktivierung“ . Oncogene . 23 (48): 7990–8000 . doi : 10.1038/sj.onc.1208074 . PMID 15489916 .
- ^ Sharma N, Akhade AS, Qadri A (April 2016). „Src-Kinasen, die für die T-Zell-Rezeptor-Signalübertragung zentral sind, regulieren TLR-aktivierte angeborene Immunantworten von menschlichen T-Zellen“ . Innate Immunity . 22 (3): 238–244 . doi : 10.1177/1753425916632305 . PMID 26888964 .
- ^ Shima T, Okumura N, Takao T, Satomi Y, Yagi T, Okada M, et al. (November 2001). „Wechselwirkung der SH2-Domäne von Fyn mit einem Zytoskelettprotein, Beta-Adducin“ . Zeitschrift für biologische Chemie . 276 (45): 42233– 42240. doi : 10.1074/jbc.M102699200 . PMID 11526103 .
- ^ Donaldson JC, Dempsey PJ, Reddy S, Bouton AH, Coffey RJ, Hanks SK (April 2000). „Das Crk-assoziierte Substrat p130(Cas) interagiert mit Nephrocystin, und beide Proteine lokalisieren sich an Zell-Zell-Kontakten polarisierter Epithelzellen“. Experimental Cell Research . 256 (1): 168–178 . doi : 10.1006/excr.2000.4822 . PMID 10739664 .
- ^ Manié SN, Astier A, Haghayeghi N, Canty T, Druker BJ, Hirai H, et al. (Juni 1997). „Regulation der Integrin-vermittelten Tyrosinphosphorylierung von p130(Cas) in humanen B-Zellen. Eine Rolle für p59(Fyn) und SHP2“ . Journal of Biological Chemistry . 272 (25): 15636–15641 . doi : 10.1074/jbc.272.25.15636 . PMID 9188452 .
- ^ Cleghon V, Morrison DK (Juli 1994). „Raf-1 interagiert mit Fyn und Src auf nicht-phosphotyrosinabhängige Weise“ . Journal of Biological Chemistry . 269 (26): 17749–17755 . doi : 10.1016/S0021-9258(17)32504-8 . PMID 7517401 .
- ^ Kim M, Tezuka T, Suziki Y, Sugano S, Hirai M, Yamamoto T (Oktober 1999). „Molekulares Klonieren und Charakterisieren eines neuen cbl-Familiengens, cbl-c“. Gene . 239 (1): 145–154 . doi : 10.1016/s0378-1119(99)00356-x . PMID 10571044 .
- ^ Huang MM, Bolen JB, Barnwell JW, Shattil SJ, Brugge JS (September 1991). „Membran-Glykoprotein IV (CD36) ist in menschlichen Blutplättchen physikalisch mit den Protein-Tyrosinkinasen Fyn, Lyn und Yes assoziiert“ . Proceedings of the National Academy of Sciences of the United States of America . 88 (17): 7844–7848 . Bibcode : 1991PNAS...88.7844H . doi : 10.1073 / pnas.88.17.7844 . PMC 52400. PMID 1715582 .
- Bull HA, Brickell PM, Dowd PM (August 1994). „Src-verwandte Proteintyrosinkinasen sind in humanen dermalen mikrovaskulären Endothelzellen physikalisch mit dem Oberflächenantigen CD36 assoziiert“ . FEBS Letters . 351 (1): 41–44 . Bibcode : 1994FEBSL.351...41B . doi : 10.1016/0014-5793(94)00814-0 . PMID 7521304. S2CID 45071719 .
- ^ Ilangumaran S, Briol A, Hoessli DC (Mai 1998). „CD44 assoziiert selektiv mit aktiven Src-Familien-Proteintyrosinkinasen Lck und Fyn in glykosphingolipidreichen Plasmamembrandomänen humaner peripherer Blutlymphozyten“ . Blood . 91 (10): 3901–3908 . doi : 10.1182/blood.V91.10.3901 . PMID 9573028 .
- Piedra J, Miravet S, Castaño J, Pálmer HG, Heisterkamp N, García de Herreros A, et al. (April 2003). „ p120 Catenin-assoziierte Fer- und Fyn - Tyrosinkinasen regulieren die Phosphorylierung von β-Catenin an Tyr-142 und die Interaktion zwischen β-Catenin und α-Catenin“ . Molecular and Cellular Biology . 23 (7): 2287–2297 . doi : 10.1128/mcb.23.7.2287-2297.2003 . PMC 150740. PMID 12640114 .
- ^ Kihara T, Shimohama S, Sawada H, Honda K, Nakamizo T, Shibasaki H, et al. (April 2001). „Der α7-Nikotinrezeptor überträgt Signale an die Phosphatidylinositol-3-Kinase, um die durch β-Amyloid induzierte Neurotoxizität zu blockieren“ . Journal of Biological Chemistry . 276 (17): 13541–13546 . doi : 10.1074/jbc.M008035200 . PMID 11278378 .
- ^ Martinez MC, Ochiishi T, Majewski M, Kosik KS (Juli 2003). „Doppelte Regulation der neuronalen Morphogenese durch einen Delta-Catenin-Cortactin-Komplex und Rho“ . The Journal of Cell Biology . 162 (1): 99–111 . doi : 10.1083/jcb.200211025 . PMC 2172717. PMID 12835311 .
- ^ Taher TE, Tjin EP, Beuling EA, Borst J, Spaargaren M, Pals ST (Oktober 2002). „c-Cbl ist an der Met-Signalübertragung in B-Zellen beteiligt und vermittelt die durch den Hepatozytenwachstumsfaktor induzierte Rezeptor-Ubiquitinierung“ . Journal of Immunology . 169 (7). Baltimore, Md.: 3793–3800 . doi : 10.4049/jimmunol.169.7.3793 . PMID 12244174 .
- ^ a b Deckert M, Elly C, Altman A, Liu YC (April 1998). „Koordinierte Regulation der Tyrosinphosphorylierung von Cbl durch die Tyrosinkinasen Fyn und Syk“ . Journal of Biological Chemistry . 273 (15): 8867–8874 . doi : 10.1074/jbc.273.15.8867 . PMID 9535867 .
- ^ Courtneidge SA, Dhand R, Pilat D, Twamley GM, Waterfield MD, Roussel MF (März 1993). „Aktivierung von Src-Familienkinasen durch Kolonie-stimulierenden Faktor-1 und deren Assoziation mit seinem Rezeptor“ . The EMBO Journal . 12 (3): 943–950 . doi : 10.1002/j.1460-2075.1993.tb05735.x . PMC 413295. PMID 7681396 .
- ^ a b Tezuka T, Umemori H, Akiyama T, Nakanishi S, Yamamoto T (Januar 1999). „PSD-95 fördert die Fyn-vermittelte Tyrosinphosphorylierung der N-Methyl-D-Aspartat-Rezeptor-Untereinheit NR2A“ . Proceedings of the National Academy of Sciences of the United States of America . 96 (2): 435–440 . Bibcode : 1999PNAS...96..435T . doi : 10.1073 / pnas.96.2.435 . PMC 15154. PMID 9892651 .
- ^ a b Hou XY, Zhang GY, Yan JZ, Chen M, Liu Y (November 2002). „Aktivierung von NMDA-Rezeptoren und spannungsgesteuerten L-Typ-Calciumkanälen vermittelt die verstärkte Bildung des Fyn-PSD95-NR2A-Komplexes nach transienter Hirnischämie“. Brain Research . 955 ( 1–2 ): 123–132 . doi : 10.1016/s0006-8993(02) 03376-0 . PMID 12419528. S2CID 85751 .
- ^ Sotgia F, Lee H, Bedford MT, Petrucci T, Sudol M, Lisanti MP (Dezember 2001). „Tyrosinphosphorylierung von β-Dystroglykan an seinem WW-Domänen-Bindungsmotiv PPxY rekrutiert SH2-Domänen-haltige Proteine“. Biochemistry . 40 (48): 14585–14592 . doi : 10.1021/bi011247r . PMID 11724572 .
- ^ Choi S, Park S (September 1999). „Phosphorylierung an Tyr-838 in der Kinasedomäne von EphA8 moduliert die Fyn-Bindung an die Tyr-615-Stelle durch Steigerung der Tyrosinkinaseaktivität“ . Oncogene . 18 (39): 5413–5422 . doi : 10.1038/sj.onc.1202917 . PMID 10498895 .
- ^ da Silva AJ, Janssen O, Rudd CE (Dezember 1993). „T-Zell-Rezeptor zeta/CD3-p59fyn(T)-assoziiertes p120/130 bindet an die SH2-Domäne von p59fyn(T)“ . The Journal of Experimental Medicine . 178 (6): 2107–2113 . doi : 10.1084 / jem.178.6.2107 . PMC 2191307. PMID 7504057 .
- ^ a b Marie-Cardine A, Hendricks-Taylor LR, Boerth NJ, Zhao H, Schraven B, Koretzky GA (Oktober 1998). „Molekulare Interaktion zwischen dem Fyn-assoziierten Protein SKAP55 und dem SLP-76-assoziierten Phosphoprotein SLAP-130“ . Journal of Biological Chemistry . 273 (40): 25789–25795 . doi : 10.1074/jbc.273.40.25789 . PMID 9748251 .
- ^ Wenzel J, Sanzenbacher R, Ghadimi M, Lewitzky M, Zhou Q, Kaplan DR, et al. (Dezember 2001). „Multiple Interaktionen der cytosolischen Polyprolinregion des CD95-Liganden: Hinweise auf die Fähigkeit eines Todesfaktors zur reversen Signaltransduktion“ . FEBS Letters . 509 (2): 255–262 . doi : 10.1016/s0014-5793(01)03174- x . PMID 11741599. S2CID 33084576 .
- ^ Hane M, Lowin B, Peitsch M, Becker K, Tschopp J (Oktober 1995). „Interaktion von Peptiden, die vom Fas-Liganden abgeleitet sind, mit der Fyn-SH3-Domäne“ . FEBS Letters . 373 (3): 265–268 . Bibcode : 1995FEBSL.373..265H . doi : 10.1016/0014-5793(95)01051-f . PMID 7589480. S2CID 24130275 .
- ^ Yaka R, He DY, Phamluong K, Ron D (März 2003). „Pituitary adenylate cyclase-activating polypeptide (PACAP(1-38)) enhances N-methyl-D-aspartate receptor function and brain-derived neurotrophic factor expression via RACK1“ . Journal of Biological Chemistry . 278 (11): 9630–9638 . doi : 10.1074/jbc.M209141200 . PMID 12524444 .
- ^ Yaka R, Thornton C, Vagts AJ, Phamluong K, Bonci A, Ron D (April 2002). „Die Funktion des NMDA-Rezeptors wird durch das inhibitorische Gerüstprotein RACK1 reguliert“ . Proceedings of the National Academy of Sciences of the United States of America . 99 (8): 5710–5715 . Bibcode : 2002PNAS...99.5710Y . doi : 10.1073 / pnas.062046299 . PMC 122836. PMID 11943848 .
- ^ Ma J, Zhang GY (September 2003). „Lithium reduziert die Tyrosinphosphorylierung der N-Methyl-D-Aspartat-Rezeptor-Untereinheit 2A und ihre Interaktionen mit Src und Fyn, vermittelt durch PSD-95, im Hippocampus der Ratte nach zerebraler Ischämie“. Neuroscience Letters . 348 (3): 185–189 . doi : 10.1016/s0304-3940(03)00784-5 . PMID 12932824. S2CID 40684016 .
- ^ Takagi N, Cheung HH, Bissoon N, Teves L, Wallace MC, Gurd JW (August 1999). „Der Einfluss transienter globaler Ischämie auf die Interaktion von Src und Fyn mit dem N-Methyl-D-Aspartat-Rezeptor und postsynaptischen Dichten: mögliche Beteiligung von Src-Homologie-2-Domänen“ . Journal of Cerebral Blood Flow and Metabolism . 19 (8): 880–888 . doi : 10.1097/00004647-199908000-00007 . PMID 10458595 .
- ^ Bunnell SC, Diehn M, Yaffe MB, Findell PR, Cantley LC, Berg LJ (Januar 2000). „Biochemische Interaktionen, die Itk in die T-Zell-Rezeptor-initiierte Signalkaskade integrieren“ . Journal of Biological Chemistry . 275 (3): 2219–2230 . doi : 10.1074/jbc.275.3.2219 . PMID 10636929 .
- ^ Bunnell SC, Henry PA, Kolluri R, Kirchhausen T, Rickles RJ, Berg LJ (Oktober 1996). „Identifizierung von Itk/Tsk-Src-Homologie-3-Domänenliganden“ . Journal of Biological Chemistry . 271 (41): 25646–25656 . doi : 10.1074/jbc.271.41.25646 . PMID 8810341 .
- Sayeski PP, Ali MS, Safavi A, Lyles M, Kim SO, Frank SJ et al. (November 1999). „Ein katalytisch aktives Jak2 ist für die Angiotensin-II-abhängige Aktivierung von Fyn erforderlich“ . Journal of Biological Chemistry . 274 (46): 33131–33142 . doi : 10.1074/jbc.274.46.33131 . PMID 10551884 .
- ^ Oneyama C, Nakano H, Sharma SV (März 2002). „UCS15A, ein neuartiges niedermolekulares Medikament zur Blockierung von SH3-Domänen-vermittelten Protein-Protein-Interaktionen“ . Oncogene . 21 (13): 2037–2050 . doi : 10.1038/sj.onc.1205271 . PMID 11960376 .
- ^ Fusaki N, Iwamatsu A, Iwashima M, Fujisawa Ji (März 1997). „Interaktion zwischen Sam68 und den Src-Familien-Tyrosinkinasen Fyn und Lck bei der T-Zell-Rezeptor-Signalübertragung“ . Journal of Biological Chemistry . 272 (10): 6214–6219 . doi : 10.1074/jbc.272.10.6214 . PMID 9045636 .
- ^ Filipp D, Moemeni B, Ferzoco A, Kathirkamathamby K, Zhang J, Ballek O, et al. (Sep 2008). „Lck-abhängige Fyn-Aktivierung erfordert C-Terminus-abhängiges Targeting von Kinase- aktivem Lck zu Lipid Rafts“ . The Journal of Biological Chemistry . 283 (39): 26409–26422 . doi : 10.1074/jbc.M710372200 . PMC 3258908. PMID 18660530 .
- ^ Yamada E, Bastie CC (2014). „Die Unterbrechung der Interaktion der Fyn-SH3-Domäne mit einem prolinreichen Motiv in der Leberkinase B1 führt zur Aktivierung der AMP-aktivierten Proteinkinase“ . PLOS ONE . 9 (2) e89604. Bibcode : 2014PLoSO...989604Y . doi : 10.1371/ journal.pone.0089604 . PMC 3934923. PMID 24586906 .
- ^ Lahdenperä J, Kilpeläinen P, Liu XL, Pikkarainen T, Reponen P, Ruotsalainen V, et al. (August 2003). „Clustering-induzierte Tyrosinphosphorylierung von Nephrin durch Kinasen der Src-Familie“ . Kidney International . 64 (2): 404–413 . doi : 10.1046/j.1523-1755.2003.00097.x . PMID 12846735 .
- ^ Verma R, Wharram B, Kovari I, Kunkel R, Nihalani D, Wary KK, et al. (Juni 2003). „Fyn bindet an und phosphoryliert die Nierenschlitzmembrankomponente Nephrin“ . Journal of Biological Chemistry . 278 (23): 20716–20723 . doi : 10.1074/jbc.M301689200 . PMID 12668668 .
- Brdicka T, Pavlistová D, Leo A, Bruyns E, Korínek V, Angelisová P et al. (Mai 2000). „Phosphoprotein associated with glycosphingolipid-enriched microdomains (PAG), a novel ubiquitously expressed transmembrane adapter protein, binds the protein tyrosine kinase csk and is involved in regulation of T cell activation“ . The Journal of Experimental Medicine . 191 (9): 1591–1604 . doi : 10.1084 / jem.191.9.1591 . PMC 2213442. PMID 10790433 .
- ^ Gout I, Dhand R, Panayotou G, Fry MJ, Hiles I, Otsu M, et al. (Dezember 1992). „Expression and characterization of the p85 subunit of the phosphatidylinositol 3-kinase complex and a related p85 beta protein by using the baculovirus expression system“ . The Biochemical Journal . 288. 288 (Pt 2): 395–405 . doi : 10.1042/ bj2880395 . PMC 1132024. PMID 1334406 .
- Ron D, Napolitano EW, Voronova A, Vasquez NJ, Roberts DN, Calio BL, et al. (Juli 1999). „Direkte Interaktion zwischen Theta-PKC und der Tyrosinkinase p59fyn in T-Zellen“ . Journal of Biological Chemistry . 274 (27): 19003–19010 . doi : 10.1074/jbc.274.27.19003 . PMID 10383400 .
- ^ Ganju RK, Hatch WC, Avraham H, Ona MA, Druker B, Avraham S, et al. (März 1997). „RAFTK, ein neues Mitglied der Fokaladhäsionskinase-Familie, wird nach Aktivierung reifer T-Lymphozyten phosphoryliert und assoziiert mit Signalmolekülen“ . The Journal of Experimental Medicine . 185 (6): 1055–1063 . doi : 10.1084 / jem.185.6.1055 . PMC 2196239. PMID 9091579 .
- ^ Katagiri T, Takahashi T, Sasaki T, Nakamura S, Hattori S (Juni 2000). „Die Protein-Tyrosin-Kinase Pyk2 ist über ihr Tyrosin 402 an der Interleukin-2-Produktion durch Jurkat-T-Zellen beteiligt“ . Journal of Biological Chemistry . 275 (26): 19645–19652 . doi : 10.1074/jbc.M909828199 . PMID 10867021 .
- ^ Qian D, Lev S, van Oers NS, Dikic I, Schlessinger J, Weiss A (April 1997). „Die Tyrosinphosphorylierung von Pyk2 wird während der TCR-Signalübertragung selektiv durch Fyn reguliert“ . The Journal of Experimental Medicine . 185 (7): 1253–1259 . doi : 10.1084 / jem.185.7.1253 . PMC 2196260. PMID 9104812 .
- ^ Messina S, Onofri F, Bongiorno-Borbone L, Giovedì S, Valtorta F, Girault JA, et al. (Januar 2003). „Spezifische Interaktionen neuronaler fokaler Adhäsionskinase-Isoformen mit Src-Kinasen und Amphiphysin“ . Journal of Neurochemistry . 84 (2): 253–265 . doi : 10.1046/j.1471-4159.2003.01519.x . PMID 12558988 .
- ^ Arold ST, Ulmer TS, Mulhern TD, Werner JM, Ladbury JE, Campbell ID, et al. (Mai 2001). „Die Rolle der Src-Homologie-3-Src-Homologie-2-Schnittstelle bei der Regulation von Src-Kinasen“ . Journal of Biological Chemistry . 276 (20): 17199–17205 . doi : 10.1074/jbc.M011185200 . PMID 11278857 .
- ^ Lim SH, Kwon SK, Lee MK, Moon J, Jeong DG, Park E, et al. (Nov. 2009). „Synapsenbildung reguliert durch den Protein-Tyrosin-Phosphatase-Rezeptor T über die Interaktion mit Zelladhäsionsmolekülen und Fyn“ . The EMBO Journal . 28 (22): 3564–3578 . doi : 10.1038/emboj.2009.289 . PMC 2782100. PMID 19816407 .
- ^ Gorska MM, Stafford SJ, Cen O, Sur S, Alam R (Februar 2004). „Unc119, ein neuartiger Aktivator von Lck/Fyn, ist essenziell für die T-Zell-Aktivierung“ . The Journal of Experimental Medicine . 199 (3): 369–379 . doi : 10.1084/jem.20030589 . PMC 2211793. PMID 14757743 .
- ^ Taniguchi S, Liu H, Nakazawa T, Yokoyama K, Tezuka T, Yamamoto T (Juni 2003). „p250GAP, ein neuronales RhoGAP-Protein, ist mit Fyn assoziiert und wird von diesem phosphoryliert“. Biochemical and Biophysical Research Communications . 306 (1): 151–155 . Bibcode : 2003BBRC..306..151T . doi : 10.1016/s0006-291x(03)00923-9 . PMID 12788081 .
- ^ Li C, Iosef C, Jia CY, Han VK, Li SS (Februar 2003). „Doppelte funktionelle Rolle des Genprodukts SAP/SH2D1A des X-chromosomalen lymphoproliferativen Syndroms bei der Signalübertragung über die SLAM-Familie (Signaling Lymphocyte Activation Molecule) von Immunrezeptoren“ . Journal of Biological Chemistry . 278 (6): 3852–3859 . doi : 10.1074/jbc.M206649200 . PMID 12458214 .
- ^ Chan B, Lanyi A, Song HK, Griesbach J, Simarro-Grande M, Poy F, et al. (Februar 2003). „SAP koppelt Fyn an SLAM-Immunrezeptoren“. Nature Cell Biology . 5 (2): 155–160 . doi : 10.1038 / ncb920 . PMID 12545174. S2CID 9840321 .
- Marie -Cardine A, Bruyns E, Eckerskorn C, Kirchgessner H, Meuer SC, Schraven B (Juni 1997). „Molekulares Klonieren von SKAP55, einem neuartigen Protein, das mit der Proteintyrosinkinase p59fyn in humanen T-Lymphozyten assoziiert“ . Journal of Biological Chemistry . 272 (26): 16077–16080 . doi : 10.1074/jbc.272.26.16077 . PMID 9195899 .
- ^ Wu L, Yu Z, Shen SH (Oktober 2002). „SKAP55 rekrutiert zu Lipid Rafts und vermittelt positiv den MAPK-Signalweg nach Aktivierung des T-Zell-Rezeptors“ . Journal of Biological Chemistry . 277 (43): 40420–40427 . doi : 10.1074/jbc.M206023200 . PMID 12171928 .
- Linseman DA, Heidenreich KA, Fisher SK (Februar 2001). „Stimulation von M3-Muskarinrezeptoren induziert die Phosphorylierung des Cdc42-Effektors aktiviert die Cdc42Hs-assoziierte Kinase-1 über einen Fyn-Tyrosinkinase-Signalweg“ . Journal of Biological Chemistry . 276 (8): 5622–5628 . doi : 10.1074/jbc.M006812200 . PMID 11087735 .
- ^ Hisatsune C, Kuroda Y, Nakamura K, Inoue T, Nakamura T, Michikawa T, et al. (April 2004). „Regulation der TRPC6-Kanalaktivität durch Tyrosinphosphorylierung“ . Journal of Biological Chemistry . 279 (18): 18887–18894 . doi : 10.1074/jbc.M311274200 . PMID 14761972 .
- Klein C, Kramer EM, Cardine AM, Schraven B, Brandt R, Trotter J (Februar 2002). „ Das Auswachsen von Oligodendrozytenfortsätzen wird durch die Interaktion der Fyn - Kinase mit dem Zytoskelettprotein Tau gefördert“ . The Journal of Neuroscience . 22 (3): 698–707 . doi : 10.1523/JNEUROSCI.22-03-00698.2002 . PMC 6758498. PMID 11826099 .
- ^ Iwasaki Y, Gay B, Wada K, Koizumi S (Juli 1998). „Assoziation der Src-Familien-Tyrosinkinase Fyn mit TrkB“. Journal of Neurochemistry . 71 (1): 106–111 . doi : 10.1046/j.1471-4159.1998.71010106.x . PMID 9648856. S2CID 9012343 .
- ^ Uddin S, Sher DA, Alsayed Y, Pons S, Colamonici OR, Fish EN, et al. (Juni 1997). „Interaktion von p59fyn mit Interferon-aktivierten JAK-Kinasen“. Biochemical and Biophysical Research Communications . 235 (1): 83–88 . doi : 10.1006/bbrc.1997.6741 . PMID 9196040 .
- ^ Banin S, Truong O, Katz DR, Waterfield MD, Brickell PM, Gout I (August 1996). „Das Wiskott-Aldrich-Syndrom-Protein (WASp) ist ein Bindungspartner für Proteintyrosinkinasen der c-Src-Familie“ . Current Biology . 6 (8): 981–988 . Bibcode : 1996CBio....6..981B . doi : 10.1016/s0960-9822(02) 00642-5 . PMID 8805332. S2CID 162267 .
- ^ Banin S, Gout I, Brickell P (August 1999). „Interaktion zwischen dem Wiskott-Aldrich-Syndrom-Protein (WASP) und der Fyn - Protein-Tyrosinkinase“. Molecular Biology Reports . 26 (3): 173–177 . doi : 10.1023/A:1006954206151 . PMID 10532312. S2CID 36018089 .
- ^ Rivero-Lezcano OM, Marcilla A, Sameshima JH, Robbins KC (Oktober 1995). „Das Wiskott-Aldrich-Syndrom-Protein interagiert physikalisch mit Nck über Src-Homologie-3-Domänen“ . Molecular and Cellular Biology . 15 (10): 5725–5731 . doi : 10.1128/MCB.15.10.5725 . PMC 230823. PMID 7565724 .
- ^ Neumeister EN, Zhu Y, Richard S, Terhorst C, Chan AC, Shaw AS (Juni 1995). „Die Bindung von ZAP-70 an phosphorylierte T-Zell-Rezeptor-ζ- und -η-Proteine verstärkt deren Autophosphorylierung und erzeugt spezifische Bindungsstellen für SH2-Domänen-haltige Proteine“ . Molecular and Cellular Biology . 15 (6): 3171–3178 . doi : 10.1128/mcb.15.6.3171 . PMC 230549. PMID 7760813 .
- ^ Yadav V, Denning MF (2011-05-01). „Fyn wird durch Ras/PI3K/Akt-Signalisierung induziert und ist für verstärkte Invasion/Migration erforderlich“ . Molecular Carcinogenesis . 50 (5): 346–352 . doi : 10.1002/mc.20716 . ISSN 1098-2744 . PMC 3080437. PMID 21480388 .
- ^ Nygaard HB, Wagner AF, Bowen GS, Good SP, MacAvoy MG, Strittmatter KA, et al. (2015). „Eine Phase-Ib-Studie mit mehrfacher aufsteigender Dosierung zur Sicherheit, Verträglichkeit und Verfügbarkeit im zentralen Nervensystem von AZD0530 (Saracatinib) bei Alzheimer-Krankheit“ . Alzheimer's Research & Therapy . 7 (1) 35. doi : 10.1186 / s13195-015-0119-0 . PMC 4396171. PMID 25874001 .
Weiterführende Literatur
- O'Sullivan E, Kinnon C, Brickell P (1999). „Wiskott-Aldrich-Syndrom-Protein, WASP“. The International Journal of Biochemistry & Cell Biology . 31 ( 3–4 ): 383–387 . doi : 10.1016/S1357-2725(98)00118-6 . PMID 10224664 .
- Sasaoka T, Kobayashi M (August 2000). „Die funktionelle Bedeutung von Shc bei der Insulinsignalisierung als Substrat des Insulinrezeptors“ . Endokrine Zeitschrift . 47 (4): 373–381 . doi : 10.1507/endocrj.47.373 . PMID 11075717 .
- Leavitt SA, SchOn A, Klein JC, Manjappara U, Chaiken IM, Freire E (Februar 2004). „Interaktionen der HIV-1-Proteine gp120 und Nef mit zellulären Partnern definieren ein neues allosterisches Paradigma“. Current Protein & Peptide Science . 5 (1): 1–8 . doi : 10.2174/1389203043486955 . PMID 14965316 .
- Tolstrup M, Ostergaard L, Laursen AL, Pedersen SF, Duch M (April 2004). „HIV/SIV-Flucht vor der Immunüberwachung: Fokus auf Nef“ . Aktuelle HIV-Forschung . 2 (2): 141– 151. doi : 10.2174/1570162043484924 . PMID 15078178 .
- Joseph AM, Kumar M, Mitra D (Jan 2005). „Nef: „notwendiger und verstärkender Faktor“ bei der HIV-Infektion“. Current HIV Research . 3 (1): 87–94 . doi : 10.2174/1570162052773013 . PMID 15638726 .
- Stove V, Verhasselt B (Jan 2006). „Modellierung der thymischen HIV-1-Nef-Effekte“. Current HIV Research . 4 (1): 57–64 . doi : 10.2174/157016206775197583 . PMID 16454711 .
Externe Links
- Übersicht aller in der PDB verfügbaren Strukturinformationen für UniProt : P06241 (Human Tyrosin-Protein-Kinase Fyn) in der PDBe-KB .
- Übersicht aller in der PDB verfügbaren Strukturinformationen für UniProt : P39688 (Maus-Tyrosin-Protein-Kinase Fyn) in der PDBe-KB .