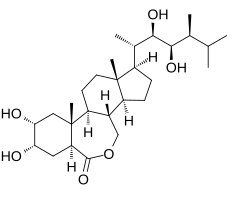
Florigene (oder Blütenhormone ) sind Proteine, die bei Angiospermen die Blüte auslösen können . [ 1 ] Das prototypische Florigen wird durch das FT- Gen und seine Orthologe in Arabidopsis und anderen Pflanzen kodiert. [ 2 ] Florigene werden in den Blättern produziert und wirken im Sprossapikalmeristem von Knospen und Wachstumsspitzen. [ 3 ] [ 4 ]
Mechanismus
Damit eine Pflanze zu blühen beginnt, muss sie Veränderungen in ihrem Sprossapikalmeristem (SAM) durchlaufen. [ 5 ] Allerdings beeinflussen zahlreiche Umweltfaktoren die Pflanze bereits vor Beginn dieses Prozesses – insbesondere das Licht. Die Entwicklung interner und externer Kontrollsysteme ermöglicht es Pflanzen, die Blüte präzise zu regulieren, sodass sie zum optimalen Zeitpunkt für den Fortpflanzungserfolg erfolgt . [ 5 ] Die Pflanze bestimmt diesen optimalen Zeitpunkt anhand von Tag-Nacht-Zyklen mithilfe des Photoperiodismus . Obwohl man ursprünglich annahm, dass die Ansammlung von Photosyntheseprodukten die Blüte von Pflanzen steuert, bewiesen Wightman Garner und Henry Allard das Gegenteil. [ 5 ] Sie fanden stattdessen heraus, dass die Tageslänge und nicht die Ansammlung der Produkte in den Pflanzen deren Blühfähigkeit beeinflusst.
Blütenpflanzen lassen sich in zwei Hauptkategorien photoperiodischer Reaktionen einteilen:
- „Kurztagpflanzen (SDPs) blühen nur an kurzen Tagen ( qualitative SDPs ) oder ihre Blüte wird durch kurze Tage beschleunigt ( quantitative SDPs )“ [ 5 ] : 478
- „Langtagpflanzen (LDPs) blühen nur an langen Tagen ( qualitative LDPs ) oder ihre Blüte wird durch lange Tage beschleunigt ( quantitative LDPs )“ [ 5 ].
Diese Arten von Blütenpflanzen unterscheiden sich dadurch, ob der Tag eine bestimmte Dauer – üblicherweise berechnet in 24-Stunden-Zyklen – überschritten hat, die als kritische Tageslänge bezeichnet wird. [ 5 ] Es ist wichtig zu beachten, dass es keinen absoluten Wert für die minimale Tageslänge gibt, da diese zwischen den Arten stark variiert. Solange die korrekte Tageslänge nicht erreicht ist, verhindern die Pflanzen die Blüte. Dies erreichen sie durch Anpassungen, beispielsweise indem sie verhindern, dass junge Pflanzen auf unzureichende Tageslängen reagieren. [ 5 ] Pflanzen können außerdem die Reaktion auf den photoperiodischen Reiz bis zum Erreichen einer bestimmten Temperatur unterdrücken. [ 5 ] Arten wie Winterweizen sind genau darauf angewiesen. [ 5 ] Der Weizen benötigt eine Kälteperiode, bevor er auf die Photoperiode reagieren kann. [ 5 ] Dies wird als Vernalisation oder Überwinterung bezeichnet. [ 5 ]
Das Auf und Ab der Blüte bei Pflanzen wird im Wesentlichen durch eine innere Uhr, den sogenannten endogenen Oszillator, gesteuert . [ 5 ] : 479 Man geht davon aus, dass diese internen Schrittmacher „durch das Zusammenspiel von vier Gensätzen reguliert werden, die in der Dämmerung, am Morgen, am Nachmittag und am Abend exprimiert werden, und dass Licht die Amplitude der Oszillationen verstärken kann, indem es die Morgen- und Abendgene aktiviert.“ [ 5 ] : 479 Die Rhythmen zwischen diesen verschiedenen Genen entstehen intern in der Pflanze, beginnend mit den Blättern, benötigen aber einen Umweltreiz wie Licht. Das Licht stimuliert im Wesentlichen die Übertragung eines Blütenstimulus (Florigen) zum Sprossapex , sobald die richtige Tageslänge erreicht ist. [ 5 ] : 482 Dieser Prozess wird als photoperiodische Induktion bezeichnet und ist ein photoperiodisch regulierter Prozess, der ebenfalls vom endogenen Oszillator abhängt. [ 5 ] : 482
Das aktuelle Modell geht von der Beteiligung mehrerer verschiedener Faktoren aus. Die Florigenforschung konzentriert sich vorwiegend auf den Modellorganismus und die Langtagpflanze Arabidopsis thaliana . Obwohl viele der Florigen-Signalwege in anderen untersuchten Arten gut konserviert zu sein scheinen, existieren dennoch Variationen. [ 6 ] Der Mechanismus lässt sich in drei Phasen unterteilen: photoperiodisch regulierte Initiierung , Signaltranslokation über das Phloem und Induktion der Blütenbildung im Sprossapikalmeristem.
Einleitung
In Arabidopsis thaliana wird das Signal durch die Produktion von Boten-RNA (mRNA) initiiert, die für einen Transkriptionsfaktor namens CONSTANS (CO) kodiert. Die CO-mRNA wird etwa 12 Stunden nach Sonnenaufgang produziert – ein Zyklus, der durch den circadianen Rhythmus der Pflanze reguliert wird – und anschließend in das CO-Protein translatiert . [ 7 ] [ 8 ] Da das CO-Protein jedoch nur im Licht stabil ist, bleibt sein Spiegel während kurzer Tage niedrig und erreicht seinen Höhepunkt erst in der Abenddämmerung langer Tage, wenn noch etwas Licht vorhanden ist. [ 8 ] [ 9 ] Das CO-Protein fördert die Transkription eines weiteren Gens namensFlowering Locus T (FT). [ 10 ] Durch diesen Mechanismus erreicht das CO-Protein möglicherweise nur dann Konzentrationen, die die FT-Transkription fördern können, wenn es langen Tagen ausgesetzt ist. Daher beruht die Weitergabe des Florigens – und somit die Induktion der Blüte – auf einem Vergleich zwischen der Tag/Nacht-Wahrnehmung der Pflanze und ihrer eigenen inneren biologischen Uhr. [ 6 ]
Translokation
Das aus der kurzzeitigen Aktivität des CO-Transkriptionsfaktors resultierende FT-Protein wird anschließend über das Phloem zum Sprossapikalmeristem transportiert. [ 3 ] [ 11 ] [ 4 ]
Blüte
Florigen ist ein systemisch mobiles Signalmolekül, das in Blättern synthetisiert und über das Phloem zum Sprossapikalmeristem (SAM) transportiert wird, wo es die Blütenbildung einleitet. [ 1 ] [ 5 ] : 488 In Arabidopsis codieren die FLOWERING LOCUS T ( FT )-Gene für das Blütenhormon, während es in Reis von Hd3a -Genen codiert wird, wodurch diese Gene Orthologe darstellen . [ 1 ] Mithilfe transgener Pflanzen konnte gezeigt werden, dass sich der Hd3a- Promotor in Reis zusammen mit der Hd3a- mRNA im Phloem des Blattes befindet . Das Hd3a-Protein hingegen findet sich weder dort noch dort, sondern reichert sich im SAM an. Dies zeigt, dass das Hd3a-Protein zunächst in den Blättern translatiert und dann über das Phloem zum SAM transportiert wird, wo der Übergang zur Blüte eingeleitet wird. Dieselben Ergebnisse wurden auch in Arabidopsis beobachtet . [ 1 ] Aus diesen Ergebnissen lässt sich schließen, dass FT/Hd3a das Florigensignal ist, das den Übergang zur Blüte bei Pflanzen auslöst.
Aufgrund dieser Erkenntnis wurde es wichtig, den Prozess zu verstehen, durch den das FT-Protein den Übergang zur Blüte auslöst, sobald es das Sprossapikalmeristem (SAM) erreicht. Erste Hinweise lieferten Modelle aus Arabidopsis , die nahelegten, dass ein bZIP-Domänen -haltiger Transkriptionsfaktor, FD, mit FT interagiert und einen Transkriptionskomplex bildet, der Blütengene aktiviert. [ 1 ] Studien an Reis zeigten eine Interaktion zwischen Hd3a und OsFD1, Homologen von FT bzw. FD, die durch das 14-3-3-Protein GF14c vermittelt wird. [ 1 ] [ 12 ] Das 14-3-3-Protein fungiert als intrazellulärer Florigenrezeptor, der direkt mit Hd3a und OsFD1 interagiert und einen Triproteinkomplex bildet, den sogenannten Florigen-Aktivierungskomplex (FAC), da dieser für die Florigenfunktion essenziell ist. [ 1 ] Der FAC aktiviert Gene, die für die Einleitung der Blüte am SAM benötigt werden. Zu den Blütenbildungsgenen in Arabidopsis gehören AP1, SOC1 und mehrere SPL-Gene, die von einer microRNA reguliert werden ; in Reis ist das Blütenbildungsgen OsMADS15 (ein Homolog von AP1 ). [ 12 ] [ 13 ] [ 14 ]
Antiflorigen
Die Florigenproduktion wird durch ein Antiflorigen reguliert. [ 15 ] Antiflorigene sind Hormone, die von denselben Genen wie Florigen kodiert werden und dessen Funktion entgegenwirken. [ 15 ] Das Antiflorigen in Arabidopsis ist TERMINAL FLOWER1 ( TFL1 ) [ 6 ] und in Tomate ist es SELF PRUNING ( SP ). [ 16 ]
Forschungsgeschichte
Florigen wurde erstmals vom sowjetisch-armenischen Pflanzenphysiologen Michail Chailakhyan beschrieben , der 1937 nachwies, dass die Blüteninduktion durch Pfropfung von einer induzierten Pflanze auf eine nicht induzierte Pflanze übertragen werden kann. [ 17 ] Anton Lang zeigte, dass sich verschiedene Langtagpflanzen und zweijährige Pflanzen durch Behandlung mit Gibberellin zur Blüte bringen lassen , selbst wenn sie unter einer nicht blüteninduzierenden (oder gar nicht induzierenden) Photoperiode kultiviert werden. Dies führte zu der Annahme, dass Florigen aus zwei Klassen von Blütenhormonen besteht: Gibberellinen und Anthesinen. [ 18 ] Später wurde postuliert, dass Langtagpflanzen während nicht induzierender Photoperioden Anthesin, aber kein Gibberellin produzieren, während Kurztagpflanzen Gibberellin, aber kein Anthesin produzieren. [ 17 ] Allerdings wurde bei diesen Ergebnissen nicht berücksichtigt, dass Kurztagpflanzen, die unter nicht-induktiven Bedingungen wachsen (und somit Gibberellin produzieren), keine Blüte bei veredelten Langtagpflanzen auslösen, die sich ebenfalls unter nicht-induktiven Bedingungen befinden (und somit Anthesin produzieren).
Aufgrund der Schwierigkeiten bei der Isolierung von Florigen und der damit verbundenen widersprüchlichen Ergebnisse wurde vermutet, dass Florigen nicht als eigenständige Substanz existiert, sondern seine Wirkung auf einem bestimmten Verhältnis anderer Hormone beruht. [ 19 ] [ 20 ] Neuere Erkenntnisse deuten jedoch darauf hin, dass Florigen existiert und in den Blättern der Pflanze produziert oder zumindest aktiviert wird. Dieses Signal wird dann über das Phloem zur Wachstumsspitze im Sprossapikalmeristem transportiert , wo es die Blütenbildung auslöst. In Arabidopsis thaliana identifizierten einige Forscher dieses Signal als mRNA, die vom Gen FLOWERING LOCUS T ( FT ) kodiert wird, andere als das daraus resultierende FT- Protein. [ 21 ] Der erste Bericht, der FT-mRNA als Signaltransduktor beschreibt, der vom Blatt zur Sprossspitze transportiert wird , erschien in der Zeitschrift Science. Im Jahr 2007 gelang einer anderen Forschergruppe jedoch ein Durchbruch: Sie kamen zu dem Schluss, dass nicht die mRNA, sondern das FT-Protein von den Blättern in die Sprosse transportiert wird und möglicherweise als „Florigen“ wirkt. [ 22 ] Der ursprüngliche Artikel [ 23 ] , in dem FT-mRNA als Blühstimulus beschrieben wurde, wurde von den Autoren selbst zurückgezogen. [ 22 ]
Auslöser der Gentranskription
Drei Gene sind am uhrgesteuerten Blühprozess beteiligt: GIGANTEA (GI), CONSTANS (CO) und FLOWERING LOCUS T (FT). Die konstante Überexpression von GI unter dem Cauliflower Mosaic Virus 35S-Promotor führt bei Kurztagbedingungen zu früher Blüte, sodass eine erhöhte GI-mRNA-Expression die Blüte induziert. GI erhöht zudem die Expression von FT- und CO-mRNA, und FT- und CO-Mutanten blühen später als die GI-Mutante. Mit anderen Worten: Funktionelle FT- und CO-Gene sind für die Blüte bei Kurztagbedingungen erforderlich. Darüber hinaus akkumulieren diese Blühgene während der Lichtphase und nehmen während der Dunkelphase ab, was mittels grünem fluoreszierendem Protein gemessen werden kann . Ihre Expression oszilliert somit im Verlauf des 24-Stunden-Hell-Dunkel-Zyklus. Zusammenfassend lässt sich sagen, dass die Akkumulation von GI-mRNA allein oder von GI-, FT- und CO-mRNA die Blüte in Arabidopsis thaliana fördert und dass diese Gene in der zeitlichen Reihenfolge GI-CO-FT exprimiert werden. [ 7 ]
Ein Aktionspotential löst bei Tieren einen Calciumeinstrom in Neuronen und bei Pflanzen in Wurzelspitzenzellen aus . Die intrazellulären Calciumsignale sind für die Regulation zahlreicher biologischer Funktionen in Organismen verantwortlich. Beispielsweise steuert die Bindung von Ca²⁺ an Calmodulin , ein Calcium - bindendes Protein in Tieren und Pflanzen, die Gentranskription. [ 24 ]
Blühmechanismus
Auf Grundlage der oben genannten Informationen wird ein biologischer Mechanismus vorgeschlagen. Licht ist das Blühsignal von Arabidopsis thaliana . Es aktiviert Photorezeptoren [ 7 ] und löst Signalkaskaden in den Pflanzenzellen der apikalen oder lateralen Meristeme aus. Das Aktionspotenzial breitet sich über das Phloem zur Wurzel aus, wodurch sich entlang des Sprosses weitere spannungsgesteuerte Calciumkanäle öffnen. Dies führt zu einem Einstrom von Calciumionen in die Pflanze. Diese Ionen binden an Calmodulin, und das Ca²⁺ / CaM-Signalsystem induziert [ 24 ] die Expression von GI-mRNA bzw. FT- und CO-mRNA. Die Akkumulation von GI-mRNA bzw. GI-CO-FT-mRNA im Laufe des Tages führt zur Blüte der Pflanze. [ 7 ]
Referenzen
- ^ a b c d e f g Tsuji H (September 2017). „ Molekulare Funktion von Florigen“ . Breeding Science . 67 (4): 327–332 . doi : 10.1270/jsbbs.17026 . PMC 5654465. PMID 29085241 .
- ^ Takeshima R, Nan H, Harigai K, Dong L, Zhu J, Lu S, et al. (August 2019). „Funktionelle Divergenz zwischen den FLOWERING LOCUS T-Orthologen FT2a und FT5a der Sojabohne im postblühenden Stängelwachstum“ . Journal of Experimental Botany . 70 (15): 3941–3953 . doi : 10.1093/jxb/erz199 . PMC 6685666. PMID 31035293 .
- Corbesier L, Vincent C, Jang S, Fornara F, Fan Q, Searle I, et al. (Mai 2007). „ FT -Proteinbewegung trägt zur Fernsignalübertragung bei der Blüteninduktion von Arabidopsis bei“ . Science . 316 ( 5827): 1030–1033 . Bibcode : 2007Sci...316.1030C . doi : 10.1126/science.1141752 . hdl : 11858/00-001M-0000-0012-3874-C . PMID 17446353 .
- ^ a b Jaeger KE, Wigge PA (Juni 2007). „FT-Protein fungiert als Langstreckensignal in Arabidopsis“ . Current Biology . 17 (12): 1050–1054 . Bibcode : 2007CBio...17.1050J . doi : 10.1016/j.cub.2007.05.008 . PMID 17540569 .
- ^ a b c d e f g h i j k l m n o p Taiz L, Zeiger E, Møller IM, Murphy AS (2018). „17: Blüte und Fruchtentwicklung“. Grundlagen der Pflanzenphysiologie . New York, NY: Oxford University Press. ISBN 978-1-60535-790-4OCLC 1035316853 .
- Turck F, Fornara F, Coupland G ( 2008). „Regulation und Identität von Florigen: FLOWERING LOCUS T rückt in den Mittelpunkt“. Annual Review of Plant Biology . 59 : 573–594 . doi : 10.1146/annurev.arplant.59.032607.092755 . hdl : 11858/00-001M - 0000-0012-374F-8 . PMID 18444908. S2CID 39798675 .
- Mizoguchi T, Wright L, Fujiwara S, Cremer F, Lee K, Onouchi H, et al. (August 2005). „ Unterschiedliche Rollen von GIGANTEA bei der Förderung der Blüte und der Regulierung circadianer Rhythmen in Arabidopsis“ . The Plant Cell . 17 (8): 2255–2270 . Bibcode : 2005PlanC..17.2255M . doi : 10.1105/tpc.105.033464 . PMC 1182487. PMID 16006578 .
- ^ a b Yanovsky MJ, Kay SA (September 2002). „Molekulare Grundlagen der saisonalen Zeitmessung in Arabidopsis“. Nature . 419 (6904): 308–312 . Bibcode : 2002Natur.419..308Y . doi : 10.1038/nature00996 . PMID 12239570. S2CID 4407399 .
- Valverde F, Mouradov A, Soppe W, Ravenscroft D, Samach A, Coupland G (Februar 2004). „Photorezeptorregulation des CONSTANS-Proteins bei photoperiodischer Blüte“. Science . 303 (5660): 1003–1006 . Bibcode : 2004Sci...303.1003V . doi : 10.1126/science.1091761 . hdl : 11858 / 00-001M-0000-0012-3C25-D . PMID 14963328. S2CID 6622199 .
- ^ An H, Roussot C, Suárez-López P, Corbesier L, Vincent C, Piñeiro M, et al. (August 2004). „CONSTANS wirkt im Phloem, um ein systemisches Signal zu regulieren, das die photoperiodische Blüte von Arabidopsis induziert“ . Development . 131 (15): 3615–3626 . doi : 10.1242/dev.01231 . PMID 15229176 .
- ^ Mathieu J, Warthmann N, Küttner F, Schmid M (Juni 2007). „Export des FT-Proteins aus Phloem-Begleitzellen ist ausreichend für die Blüteninduktion in Arabidopsis“ . Current Biology . 17 (12): 1055–1060 . Bibcode : 2007CBio...17.1055M . doi : 10.1016/j.cub.2007.05.009 . PMID 17540570 .
- ^ a b Nakamura Y, Andrés F, Kanehara K, Liu YC, Dörmann P, Coupland G (April 2014). „Arabidopsis Florigen FT bindet an tageszeitlich oszillierende Phospholipide, die die Blüte beschleunigen“ . Nature Communications . 5 (1): 3553. Bibcode : 2014NatCo...5.3553N . doi : 10.1038/ncomms4553 . PMC 3988816. PMID 24698997 .
- ^ Taoka K, Ohki I, Tsuji H, Furuita K, Hayashi K, Yanase T, et al. (Juli 2011). „14-3-3-Proteine fungieren als intrazelluläre Rezeptoren für das Reis-Florigen Hd3a“. Nature . 476 (7360): 332–335 . Bibcode : 2011Natur.476..332T . doi : 10.1038 / nature10272 . PMID 21804566. S2CID 4401138 .
- ^ Wang JW, Czech B, Weigel D (August 2009). „miR156-regulierte SPL-Transkriptionsfaktoren definieren einen endogenen Blütenbildungsweg in Arabidopsis thaliana“ . Cell . 138 (4): 738–749 . doi : 10.1016/j.cell.2009.06.014 . PMID 19703399 .
- ^ a b Eshed Y, Lippman ZB (November 2019). „Revolutionen in der Landwirtschaft weisen den Weg für die gezielte Züchtung alter und neuer Nutzpflanzen“ . Science . 366 (6466) eaax0025. doi : 10.1126/science.aax0025 . PMID 31488704 .
- ^ Pnueli L, Carmel-Goren L, Hareven D, Gutfinger T, Alvarez J, Ganal M, et al. (Juni 1998). „Das SELF-PRUNING-Gen der Tomate reguliert den Übergang von vegetativen zu reproduktiven sympodialen Meristemen und ist das Ortholog von CEN und TFL1“. Development . 125 (11): 1979–1989 . doi : 10.1242/dev.125.11.1979 . PMID 9570763 .
- ^ a b Chaïlakhyan MK (1985). „Hormonelle Regulation der reproduktiven Entwicklung höherer Pflanzen“. Biologia Plantarium . 27 ( 4–5 ): 292–302 . doi : 10.1007/BF02879865 .
- ^ Chaïlakhyan MK (1975). „Substanzen der Pflanzenblüte“. Biologia Plantarium . 17 : 1–11 . doi : 10.1007/BF02921064 . S2CID 11676305 .
- ^ Zeevaart JA (1976). „Physiologie der Blütenbildung“. Annual Review of Plant Physiology and Plant Molecular Biology . 27 : 321–348 . doi : 10.1146/annurev.pp.27.060176.001541 .
- ^ Bernier G, Havelange A, Houssa C, Petitjean A, Lejeune P (Oktober 1993). „Physiologische Signale, die die Blüte auslösen“ . The Plant Cell . 5 (10): 1147–1155 . doi : 10.1105/tpc.5.10.1147 . PMC 160348. PMID 12271018 .
- ^ Notaguchi M, Abe M, Kimura T, Daimon Y, Kobayashi T, Yamaguchi A, et al. (November 2008). „Fernwirkung des Arabidopsis FLOWERING LOCUS T-Proteins zur Förderung der Blütenbildung durch Pfropfung“ . Plant & Cell Physiology . 49 (11): 1645–1658 . doi : 10.1093/pcp/pcn154 . PMID 18849573 .
- ^ a b Böhlenius H, Eriksson S, Parcy F, Nilsson O (April 2007). "Retraction" . Science . 316 (5823): 367. doi : 10.1126/science.316.5823.367b . PMID 17446370 .
- ^ Huang T, Böhlenius H, Eriksson S, Parcy F, Nilsson O (September 2005). „Die mRNA des Arabidopsis-Gens FT wandert vom Blatt zum Sprossapex und induziert die Blüte“ . Science . 309 (5741): 1694–1696 . Bibcode : 2005Sci...309.1694H . doi : 10.1126 / science.1117768 . PMID 16099949. S2CID 9262331 . (Zurückgezogen, siehe doi : 10.1126/science.316.5823.367b , PMID 17446370 )
- ^ a b Gagliano M, Renton M, Depczynski M, Mancuso S (Mai 2014). „Erfahrung lehrt Pflanzen, in Umgebungen, in denen es darauf ankommt, schneller zu lernen und langsamer zu vergessen“. Oecologia . 175 ( 1): 63–72 . Bibcode : 2014Oecol.175...63G . doi : 10.1007/s00442-013-2873-7 . PMID 24390479. S2CID 5038227 .
Weiterführende Literatur
- Zeevaart JA (August 2006). „Florigen erreicht nach 70 Jahren sein Erwachsenenalter“ . The Plant Cell . 18 (8): 1783–1789 . Bibcode : 2006PlanC..18.1783Z . doi : 10.1105/tpc.106.043513 . PMC 1533981. PMID 16905662 .
- Zeevaart JA (September 2007). „FT-Protein, nicht mRNA, ist das phloemmobile Signal für die Blütenbildung“ . Plant Physiology Online . Archiviert vom Original am 28.12.2008 . Abgerufen am 2.4.2009 .
- „Durchbruch des Jahres: Die Zweitplatzierten“ . Science . 310 (5756): 1880–1885 . Dezember 2005. doi : 10.1126/science.310.5756.1880a . PMID 16373539 .