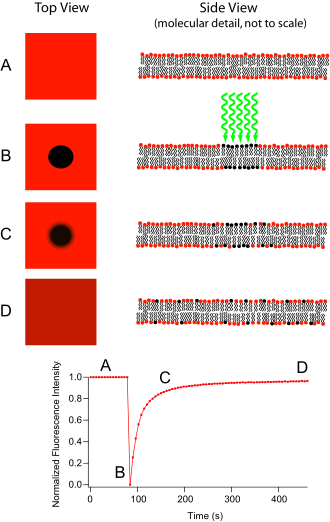
Die Fluoreszenz-Recovery nach Photobleichung (FRAP) ist eine Methode zur Bestimmung der Diffusionskinetik durch Gewebe oder Zellen. Sie ermöglicht die Quantifizierung der zweidimensionalen lateralen Diffusion eines molekular dünnen Films mit fluoreszenzmarkierten Sonden oder die Untersuchung einzelner Zellen. Diese Technik ist sehr nützlich für biologische Studien zur Zellmembrandiffusion und Proteinbindung. Darüber hinaus erlaubt die Oberflächenabscheidung einer fluoreszierenden Phospholipid- Doppelschicht (oder -Monoschicht) die Charakterisierung hydrophiler (oder hydrophober ) Oberflächen hinsichtlich ihrer Oberflächenstruktur und freien Energie.
Ähnliche, wenn auch weniger bekannte, Techniken wurden entwickelt, um die dreidimensionale Diffusion und Bindung von Molekülen innerhalb der Zelle zu untersuchen; sie werden ebenfalls als FRAP bezeichnet.
Versuchsaufbau
Die grundlegende Apparatur besteht aus einem optischen Mikroskop , einer Lichtquelle und einer Fluoreszenzsonde . Die Fluoreszenz ist abhängig von der Absorption einer bestimmten Wellenlänge oder Farbe, was die Lampenauswahl einschränkt. Üblicherweise wird eine Quecksilber- oder Xenonlampe mit breitem Spektrum in Kombination mit einem Farbfilter verwendet. Das Verfahren beginnt mit der Aufnahme eines Hintergrundbildes der Probe vor der Photobleichung. Anschließend wird die Lichtquelle auf einen kleinen Bereich des sichtbaren Gewebes fokussiert, entweder durch Wechsel zu einem Mikroskopobjektiv mit höherer Vergrößerung oder durch Laserlicht der entsprechenden Wellenlänge. Die Fluorophore in diesem Bereich werden hochintensivem Licht ausgesetzt, wodurch ihre Fluoreszenzlebensdauer schnell abläuft (begrenzt auf etwa 10⁵ Photonen vor der Extinktion). Das Mikroskopbild zeigt nun ein gleichmäßig fluoreszierendes Feld mit einem deutlich sichtbaren dunklen Fleck. Durch die Brownsche Molekularbewegung diffundieren die noch fluoreszierenden Sonden in der gesamten Probe und ersetzen die nicht fluoreszierenden Sonden im gebleichten Bereich. Diese Diffusion verläuft geordnet und lässt sich analytisch mithilfe der Diffusionsgleichung bestimmen . Unter der Annahme eines Gaußschen Profils für den Bleichstrahl lässt sich die Diffusionskonstante D einfach wie folgt berechnen:

wobei w der Radius des Strahls und t<sub> D</sub> die charakteristische Diffusionszeit ist. [ 1 ] [ 2 ]
Anwendungen
Unterstützte Lipiddoppelschichten
Ursprünglich diente die FRAP-Technik der Charakterisierung der Mobilität einzelner Lipidmoleküle in einer Zellmembran. [ 1 ] Obwohl sie sich in dieser Hinsicht als sehr nützlich erwiesen hat, konzentriert sich die aktuelle Forschung verstärkt auf die Untersuchung künstlicher Lipidmembranen. Diese biomimetischen Strukturen, die auf hydrophilen oder hydrophoben Substraten basieren (zur Herstellung von Lipiddoppelschichten bzw. -monoschichten) und Membranproteine enthalten , sind potenziell als analytische Werkzeuge zur Identifizierung unbekannter Substanzen, zum Verständnis zellulärer Signaltransduktion und zur Bestimmung von Ligandenbindungsstellen geeignet .
Proteinbindung
Diese Technik wird häufig in Verbindung mit grün fluoreszierenden Protein (GFP) -Fusionsproteinen eingesetzt , bei denen das zu untersuchende Protein mit GFP fusioniert wird. Bei Anregung durch Licht einer spezifischen Wellenlänge fluoresziert das Protein. [ 3 ] Wird das zu untersuchende Protein zusammen mit GFP produziert, kann die Fluoreszenz verfolgt werden. Durch Photodestruktion des GFP und anschließende Beobachtung der Repopulation im gebleichten Bereich lassen sich Informationen über Proteininteraktionspartner, die Kontinuität von Organellen und den Proteintransport gewinnen. [ 4 ]
Wenn die Fluoreszenz nach einiger Zeit nicht mehr den Ausgangswert erreicht, ist ein Teil der Fluoreszenz auf einen immobilen Anteil zurückzuführen (der nicht durch Diffusion aufgefüllt werden kann). Binden die fluoreszierenden Proteine an statische Zellrezeptoren, wird die Erholungsrate analog dazu um einen Faktor verlangsamt, der mit den Assoziations- und Dissoziationskoeffizienten der Bindung zusammenhängt. Diese Beobachtung wurde kürzlich zur Untersuchung der Proteinbindung genutzt. [ 3 ] [ 5 ] [ 6 ] Ist das GFP-markierte Protein konstitutiv in einen größeren Komplex eingebaut, wird die Dynamik der Fluoreszenzerholung analog durch die Diffusion des größeren Komplexes charakterisiert. [ 7 ]
Anwendungen außerhalb der Membran
FRAP kann auch zur Untersuchung von Proteinen außerhalb der Membran eingesetzt werden. Nachdem das Protein von Interesse, in der Regel durch Expression als GFP-Fusionsprotein, fluoreszierend gemacht wurde, wird ein Konfokalmikroskop verwendet, um eine Region des Zytoplasmas [ 3 ] , der mitotischen Spindel , des Zellkerns oder einer anderen Zellstruktur [ 8 , 9 ] photochemisch zu bleichen und zu beobachten. Die mittlere Fluoreszenz in dieser Region kann dann über die Zeit seit dem Photobleichen aufgetragen werden. Die resultierende Kurve liefert kinetische Koeffizienten, beispielsweise für die Bindungsreaktionen des Proteins und/oder seinen Diffusionskoeffizienten im untersuchten Medium [ 10 ] . Häufig werden nur Diffusion und Bindungs-/Lösungsprozesse betrachtet. Prinzipiell können sich Proteine jedoch auch durch Strömung bewegen, d. h. gerichtete Bewegungen ausführen. Dies wurde bereits früh von Axelrod et al. erkannt. [ 1 ] Dies könnte auf den Fluss des Zytoplasmas oder des Nukleoplasmas oder auf den Transport entlang von Filamenten in der Zelle, wie z. B. Mikrotubuli, durch molekulare Motoren zurückzuführen sein .
Die Analyse ist am einfachsten, wenn die Fluoreszenzwiederherstellung entweder durch die Diffusionsrate in den gebleichten Bereich oder durch die Geschwindigkeit, mit der sich gebleichte Proteine von ihren Bindungsstellen innerhalb des gebleichten Bereichs lösen und durch fluoreszierendes Protein ersetzt werden, begrenzt ist. Betrachten wir diese beiden Grenzwerte am Beispiel des Bleichens eines GFP-Fusionsproteins in einer lebenden Zelle.
diffusionslimitierte Fluoreszenzwiederherstellung
Bei einem kreisförmigen Bleichfleck mit Radius und diffusionsdominierter Erholung wird die Fluoreszenz durch eine von Soumpasis [ 11 ] abgeleitete Gleichung beschrieben (die modifizierte Bessel-Funktionen und beinhaltet ).


mit der charakteristischen Diffusionszeit, wobei die Zeit ist. ist die normalisierte Fluoreszenz (strebt gegen 1, wenn gegen unendlich strebt). Die Diffusionszeit für einen gebleichten Fleck mit Radius ist , wobei D der Diffusionskoeffizient ist.


Beachten Sie, dass dies für eine sofortige Bleichung mit einem Stufenfunktionsprofil gilt , d. h. der Anteil des Proteins, der zum Zeitpunkt t sofort gebleicht ist, beträgt , wobei der Abstand vom Zentrum des gebleichten Bereichs ist . Es wird außerdem angenommen, dass die Erholung durch Diffusion in zwei Dimensionen modelliert werden kann, die sowohl gleichmäßig als auch isotrop ist. Mit anderen Worten, dass die Diffusion in einem homogenen Medium stattfindet, sodass die effektive Diffusionskonstante D überall gleich ist, und dass die Diffusion isotrop ist, d. h. mit der gleichen Geschwindigkeit entlang aller Achsen in der Ebene erfolgt.


In der Praxis trifft in einer Zelle keine dieser Annahmen uneingeschränkt zu.
- Die Bleichung erfolgt nicht sofort. Insbesondere wenn eine starke Bleichung eines großen Bereichs erforderlich ist, kann die Bleichung einen erheblichen Teil der Diffusionszeit in Anspruch nehmen . Ein signifikanter Anteil des gebleichten Proteins diffundiert dann während der Bleichung aus dem gebleichten Bereich heraus. Wird dies nicht berücksichtigt , führt dies zu einem signifikanten Fehler in D. [ 12 ] [ 13 ] [ 14 ]
- Das Bleichprofil ist keine radiale Stufenfunktion. Wenn der gebleichte Bereich effektiv einem einzelnen Pixel entspricht, ist die Bleichung in Abhängigkeit von der Position typischerweise beugungsbegrenzt und wird durch die Optik des verwendeten konfokalen Laserscanning-Mikroskops bestimmt . Es handelt sich dabei nicht um eine radiale Stufenfunktion, sondern sie variiert auch entlang der Achse senkrecht zur Ebene.
- Zellen sind natürlich dreidimensional, nicht zweidimensional, ebenso wie das gebleichte Volumen. Die Vernachlässigung der Diffusion aus der Ebene (wir nehmen an, es handele sich um die xy- Ebene) ist nur dann eine sinnvolle Näherung, wenn die Fluoreszenz hauptsächlich durch Diffusion in dieser Ebene wiederhergestellt wird. Dies trifft beispielsweise zu, wenn ein zylindrisches Volumen gebleicht wird, dessen Achse entlang der z- Achse verläuft und das sich über die gesamte Höhe der Zelle erstreckt. Dann trägt die Diffusion entlang der z- Achse nicht zur Fluoreszenzwiederherstellung bei, da das gesamte Protein gleichmäßig entlang der z- Achse gebleicht wird. Daher ist ihre Vernachlässigung, wie in der Gleichung von Soumpasis, unproblematisch. Trägt die Diffusion entlang der z- Achse jedoch zur Fluoreszenzwiederherstellung bei, muss sie berücksichtigt werden.
- Es gibt keinen Grund anzunehmen, dass das Zytoplasma oder das Nukleoplasma der Zelle räumlich völlig einheitlich oder isotrop ist.
Die Soumpasis-Gleichung ist daher lediglich eine nützliche Näherung, die verwendet werden kann, wenn die oben genannten Annahmen die tatsächliche Situation gut beschreiben und die Fluoreszenzerholung tatsächlich durch die Diffusionszeit begrenzt ist . Es ist zu beachten, dass eine gute Anpassung der Soumpasis-Gleichung an die Daten nicht zwangsläufig bedeutet, dass die Annahmen zutreffen und die Diffusion die Erholung dominiert.
Reaktionslimitierte Rückgewinnung
Die Gleichung, die die Fluoreszenz als Funktion der Zeit beschreibt, ist in einem anderen Grenzfall besonders einfach. Wenn eine große Anzahl von Proteinen an Stellen in einem kleinen Volumen bindet, sodass das Fluoreszenzsignal dort vom Signal der gebundenen Proteine dominiert wird, und wenn diese Bindung in einem einzigen Zustand mit einer Dissoziationsrate k<sub> off</sub> erfolgt , dann ist die Fluoreszenz als Funktion der Zeit gegeben durch [ 15 ].

Es ist zu beachten, dass die Erholung nur von der Geschwindigkeitskonstante für die Dissoziation, k<sub> off</sub> , abhängt. Sie hängt nicht von der Geschwindigkeitskonstante für die Bindung ab. Allerdings beruht sie auf einer Reihe von Annahmen [ 15 ].
- Die Assoziationsrate muss ausreichend groß sein, damit die lokale Konzentration des gebundenen Proteins die lokale Konzentration des freien Proteins deutlich übersteigt und wir somit den Beitrag des freien Proteins zu f vernachlässigen können.
- Es handelt sich um eine einfache bimolekulare Reaktion, bei der das Protein an lokalisierte Stellen bindet, die sich während der Erholung nicht wesentlich bewegen.
- Der Austausch verläuft deutlich langsamer als die Diffusion (oder der jeweilige Transportmechanismus, der für die Mobilität verantwortlich ist), da sich die diffundierende Fraktion erst dann rasch erholt und als Quelle für fluoreszierendes Protein dient, das das gebundene, gebleichte Protein bindet und ersetzt und so die Fluoreszenz erhöht. Mit r als Radius des gebleichten Bereichs bedeutet dies, dass die Gleichung nur gültig ist, wenn die Bindungslebensdauer …

Sind all diese Annahmen erfüllt, liefert die Anpassung einer Exponentialfunktion an die Erholungskurve die Dissoziationskonstante k <sub> off</sub> . Allerdings können auch andere Dynamiken zu Erholungskurven führen, die Exponentialfunktionen ähneln. Daher impliziert die Anpassung einer Exponentialfunktion nicht zwangsläufig, dass die Erholung von einer einfachen bimolekularen Reaktion dominiert wird. Ein Unterscheidungsmerkmal zwischen einer durch Dissoziation bestimmten und einer durch Diffusion begrenzten Erholung ist die Beobachtung, dass die Erholungsrate bei dissoziationsbegrenzter Erholung unabhängig von der Größe des gebleichten Bereichs r ist , während sie bei diffusionsbegrenzter Erholung proportional zu r² skaliert . Werden also ein kleiner und ein großer Bereich gebleicht, so sind die Erholungsraten bei dissoziationsbegrenzter Erholung für beide Größen gleich, während sie bei diffusionsbegrenzter Erholung für den größeren gebleichten Bereich deutlich langsamer verläuft.

Diffusion und Reaktion
Im Allgemeinen wird die Wiederherstellung der Fluoreszenz weder durch einfache isotrope Diffusion noch durch eine einzige einfache Dissoziationsrate dominiert. Diffusion und Bindung spielen gleichermaßen eine Rolle, wobei die Diffusionskonstante räumlich nicht einheitlich sein kann und mehrere Arten von Bindungsstellen existieren können, die ebenfalls räumlich ungleichmäßig verteilt sein können. Auch Strömungsprozesse können von Bedeutung sein. Dieses komplexere Verhalten erfordert ein Modell mit mehreren Parametern zur Beschreibung der Daten; Modelle mit nur einer einzigen Diffusionskonstante D oder einer einzigen Dissoziationskonstante k <sub> off</sub> sind unzureichend.
Es gibt Modelle, die sowohl Diffusion als auch Reaktion berücksichtigen. [ 2 ] Leider liefert eine einzelne FRAP-Kurve möglicherweise nicht genügend Informationen, um (möglicherweise verrauschte) experimentelle Daten zuverlässig und eindeutig anzupassen. Sadegh Zadeh et al. [ 16 ] haben gezeigt, dass FRAP-Kurven durch verschiedene Wertepaare der Diffusionskonstante und der Assoziationskonstante angepasst werden können, oder anders ausgedrückt, dass die Anpassungen an die FRAP-Kurve nicht eindeutig sind. Dies gilt für Anpassungen mit drei Parametern (Assoziationskonstante, Dissoziationskonstante und Diffusionskonstante). Nicht eindeutige Anpassungen sind im Allgemeinen nicht brauchbar.
Bei Modellen mit einer Vielzahl von Parametern reicht ein einzelnes FRAP-Experiment möglicherweise nicht aus, um alle Modellparameter zu bestimmen. In diesem Fall sind weitere Daten erforderlich, z. B. durch Bleichen von Bereichen unterschiedlicher Größe [ 14 ] , die unabhängige Bestimmung einiger Modellparameter usw.
Siehe auch
Referenzen
- Axelrod , D.; Koppel, D.; Schlessinger, J.; Elson, E.; Webb, W. (1976). „ Mobilitätsmessung durch Analyse der Erholungskinetik der Fluoreszenz-Photobleichung“ . Biophysical Journal . 16 ( 9): 1055–69 . Bibcode : 1976BpJ....16.1055A . doi : 10.1016 / S0006-3495 (76)85755-4 . PMC 1334945. PMID 786399 .
- ^ a b Sprague, Brian L.; Pego, Robert L.; Stavreva, Diana A.; McNally, James G. (2004). „Analyse von Bindungsreaktionen mittels Fluoreszenz-Recovery nach Photobleichung“ . Biophysical Journal . 86 (6): 3473–95 . Bibcode : 2004BpJ....86.3473S . doi : 10.1529 / biophysj.103.026765 . PMC 1304253. PMID 15189848 .
- ^ a b c Kou Qin; Chunmin Dong; Guangyu Wu; Nevin A Lambert (August 2011). „Präassemblierung von Gq-gekoppelten Rezeptoren und Gq-Heterotrimeren im inaktiven Zustand“ . Nature Chemical Biology . 7 (11): 740–747 . doi : 10.1038/nchembio.642 . PMC 3177959. PMID 21873996 .
- ^ Day, CA; Kraft, LJ; Kang, M; Kenworthy, AK (2012). „Analyse der Protein- und Lipiddynamik mittels konfokaler Fluoreszenz-Recovery nach Photobleichung (FRAP)“ . Current Protocols in Cytometry . Kapitel 2: 2–19 . doi : 10.1002/0471142956.cy0219s62 . PMC 3538152. PMID 23042527 .
- ^ Mazza, D.; Mueller, F.; Stasevich, T. J.; McNally, J. G. (2013). „Konvergenz von Chromatinbindungsschätzungen in lebenden Zellen“. Nat Methods . 10 (8): 691–692 . doi : 10.1038/nmeth.2573 . PMID 23900248. S2CID 27896929 .
- ^ Kou Qin; Pooja R. Sethi; Nevin A. Lambert (August 2008). „Häufigkeit und Stabilität von Komplexen mit inaktiven G-Protein-gekoppelten Rezeptoren und G-Proteinen“ . The FASEB Journal . 22 (8): 2920–2927 . doi : 10.1096/fj.08-105775 . PMC 2493464. PMID 18434433 .
- ^ Kraft, LJ; Kenworthy, AK (2012). „Bildgebung der Proteinkomplexbildung im Autophagie-Signalweg: Analyse der Interaktion von LC3 und Atg4B(C74A) in lebenden Zellen mittels Förster-Resonanzenergietransfer und Fluoreszenz-Recovery nach Photobleichung“ . J Biomed Opt . 17 (1): 011008–011008–13. Bibcode : 2012JBO....17a1008K . doi : 10.1117 /1.JBO.17.1.011008 . PMC 3380812. PMID 22352642 .
- ^ Tripathi, K.; Parnaik, V. K. (2008). „Differential dynamics of splicing factor SC35 during the cell cycle“. Journal of Biosciences . 33 (3): 345–54 . doi : 10.1007/s12038-008-0054-3 . PMID 19005234. S2CID 6332495 .
- ^ Govindaraj, K.; Hendriks, J.; Lidke, D. S.; Karperien, M.; Post, J. N. (Januar 2019). „Changes in Fluorescence Recovery After Photobleaching (FRAP) as an indicator of SOX9 transcription factor activity“ . Biochimica et Biophysica Acta (BBA) - Gene Regulatory Mechanisms . 1862 (1): 107–117 . doi : 10.1016/j.bbagrm.2018.11.001 . PMID 30465885 .
- ^ Houtsmuller, AB (2005). „Fluoreszenzwiederherstellung nach Photobleichung: Anwendung auf Kernproteine“. Advances in Biochemical Engineering/Biotechnology . 95 : 177–199 . doi : 10.1007/b102214 . ISBN 978-3-540-23698-6PMID 16080269 .
- ^ Soumpasis, D (1983). „Theoretische Analyse von Fluoreszenz-Photobleichungs-Erholungsexperimenten“ . Biophysical Journal . 41 (1): 95–97 . Bibcode : 1983BpJ....41...95S . doi : 10.1016/ S0006-3495 (83)84410-5 . PMC 1329018. PMID 6824758 .
- Yang , J.; Köhler, K.; Davis, DM; Burroughs, NJ (2009). „Eine verbesserte Streifen-FRAP-Methode zur Schätzung von Diffusionskoeffizienten: Korrektur des Photobleichungsgrades“. Journal of Microscopy . 238 (3): 240–53 . doi : 10.1111/j.1365-2818.2009.03347.x . PMID 20579262. S2CID 21797777 .
- Castle , Brian T.; Howard, Stephen A.; Odde, David J. (2011). „Bewertung der Transportmechanismen, die dem Bicoid-Morphogen-Gradienten zugrunde liegen“ . Cellular and Molecular Bioengineering . 4 (1): 116–121 . doi : 10.1007/s12195-010-0157-4 . PMC 3164504. PMID 21892361 .
- ^ a b González-Pérez, Vinicio; Schmierer, Bernhard; Hill, Caroline S.; Sear, Richard P. (2011). „Untersuchung der intranukleären Diffusionsdynamik von Smad2 durch mathematische Modellierung von FRAP-Experimenten“. Integrative Biology . 3 (3): 197–207 . doi : 10.1039/c0ib00098a . PMID 21240396 .
- ^ a b Bulinski, JC; Odde, DJ; Howell, BJ; Salmon, TD; Waterman-Storer, CM (2001). „Schnelle Dynamik der Mikrotubuli-Bindung von Ensconsin in vivo“ . Journal of Cell Science . 114 (Pt 21): 3885–97 . doi : 10.1242/jcs.114.21.3885 . PMID 11719555 .
- ^ Sadegh Zadeh, Kouroush; Montas, Hubert J; Shirmohammadi, Adel (2006). „Identifizierung von Parametern des Massentransports und der Bindungsrate von Biomolekülen in lebenden Zellen mittels inverser Modellierung“ . Theoretical Biology and Medical Modelling . 3 36. doi : 10.1186/1742-4682-3-36 . PMC 1635038. PMID 17034642 .


