
Sequenzhomologie ist die biologische Homologie zwischen DNA- , RNA- oder Proteinsequenzen , definiert durch gemeinsame Abstammung in der Evolutionsgeschichte des Lebens . Zwei DNA-Abschnitte können aufgrund von drei Phänomenen eine gemeinsame Abstammung aufweisen: entweder durch eine Artbildung ( Orthologe ), eine Duplikation ( Paraloge ) oder einen horizontalen (oder lateralen) Gentransfer ( Xenologe ). [ 1 ]
Homologie zwischen DNA, RNA oder Proteinen wird typischerweise aus der Ähnlichkeit ihrer Nukleotid- oder Aminosäuresequenz abgeleitet . Eine signifikante Ähnlichkeit ist ein starkes Indiz dafür, dass zwei Sequenzen durch evolutionäre Veränderungen von einer gemeinsamen Vorläufersequenz abstammen. Alignments mehrerer Sequenzen dienen dazu, die homologen Bereiche jeder Sequenz zu identifizieren.
Identität, Ähnlichkeit und Erhaltung
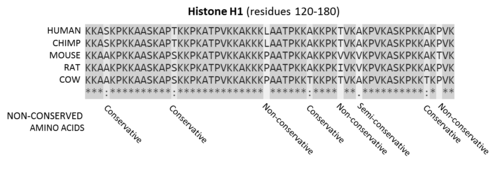
Der Begriff „prozentuelle Homologie“ wird oft synonym mit „Sequenzähnlichkeit“ verwendet, d. h. mit dem Prozentsatz identischer Aminosäuren ( prozentuelle Identität ) oder dem Prozentsatz konservierter Aminosäuren mit ähnlichen physikochemischen Eigenschaften ( prozentuelle Ähnlichkeit ). Beispielsweise wird die Homologie zwischen Leucin und Isoleucin üblicherweise als „Quantifizierung der Homologie“ verwendet. Gemäß der oben genannten Definition von Homologie ist diese Terminologie jedoch unzutreffend, da Sequenzähnlichkeit die Beobachtung, Homologie hingegen die Schlussfolgerung ist. [ 3 ] Sequenzen sind entweder homolog oder nicht. [ 3 ] Daraus folgt, dass der Begriff „prozentuelle Homologie“ irreführend ist. [ 4 ]
Wie bei morphologischen und anatomischen Strukturen kann Sequenzähnlichkeit durch konvergente Evolution entstehen oder, wie bei kürzeren Sequenzen, zufällig auftreten, was bedeutet, dass sie nicht homolog sind. Homologe Sequenzabschnitte werden auch als konserviert bezeichnet . Dies ist nicht zu verwechseln mit der Konservierung von Aminosäuresequenzen , bei der die Aminosäure an einer bestimmten Position durch eine andere mit funktionell äquivalenten physikochemischen Eigenschaften ersetzt wurde.
Partielle Homologie kann auftreten, wenn ein Abschnitt der verglichenen Sequenzen einen gemeinsamen Ursprung hat, der Rest jedoch nicht. Eine solche partielle Homologie kann durch eine Genfusion entstehen .
Über die Sequenzähnlichkeit hinaus
Proteine sind dafür bekannt, ihre Tertiärstruktur stärker zu konservieren als ihre Aminosäuresequenzen. Zwei entfernt verwandte Proteine können nur minimale oder gar keine Sequenzähnlichkeit aufweisen, aber dennoch hochgradig ähnliche Faltungen besitzen, die mittels Strukturvergleich verglichen werden können . Solche Proteine wurden früher ausschließlich durch experimentelle Strukturbestimmungsmethoden entdeckt. Moderne Methoden zur Proteinstrukturvorhersage wie AlphaFold2 ermöglichen die Identifizierung möglicher Homologe ohne Laborarbeit . [ 5 ]
Es ist außerdem bekannt, dass RNA ihre Tertiärstruktur stärker konserviert als ihre Primärstruktur. Die Vorhersage der RNA-Sekundärstruktur erwies sich beim Vergleich zwischen Mensch und Maus als hilfreich. [ 6 ]
Orthologie

Homologe Sequenzen sind ortholog, wenn sie mutmaßlich von derselben Vorfahrensequenz abstammen, die durch ein Speziationsereignis getrennt wurde : Wenn sich eine Art in zwei separate Arten aufspaltet, gelten die Kopien eines einzelnen Gens in den beiden resultierenden Arten als ortholog. Orthologe oder orthologe Gene sind Gene in verschiedenen Arten, die durch vertikale Abstammung von einem einzigen Gen des letzten gemeinsamen Vorfahren entstanden sind . Der Begriff „Ortholog“ wurde 1970 von dem Molekularevolutionisten Walter Fitch geprägt . [ 7 ]
Das pflanzliche Flu-Regulationsprotein kommt beispielsweise sowohl in Arabidopsis (einer vielzelligen höheren Pflanze) als auch in Chlamydomonas (einer einzelligen Grünalge) vor. Die Chlamydomonas- Variante ist komplexer: Sie durchquert die Membran zweimal statt nur einmal, enthält zusätzliche Domänen und unterliegt alternativem Spleißen . Sie kann jedoch das wesentlich einfachere Arabidopsis- Protein vollständig ersetzen , wenn sie mittels Gentechnik vom Algen- ins Pflanzengenom übertragen wird . Signifikante Sequenzähnlichkeit und gemeinsame funktionelle Domänen deuten darauf hin, dass es sich bei diesen beiden Genen um orthologe Gene handelt [ 8 ] , die von einem gemeinsamen Vorfahren geerbt wurden .
Orthologie ist streng über die Abstammung definiert. Da die genaue Abstammung von Genen in verschiedenen Organismen aufgrund von Genduplikationen und Genomumlagerungen schwer zu bestimmen ist, liefert die phylogenetische Analyse der Genlinie den stärksten Beweis für die Orthologie zweier ähnlicher Gene. Orthologe Gene haben oft, aber nicht immer, dieselbe Funktion. [ 9 ]
Orthologe Sequenzen liefern wertvolle Informationen für die taxonomische Klassifizierung und phylogenetische Untersuchungen von Organismen. Das Muster der genetischen Divergenz ermöglicht es, die Verwandtschaft von Organismen zu bestimmen. Zwei eng verwandte Organismen weisen wahrscheinlich sehr ähnliche DNA-Sequenzen zwischen ihren beiden Orthologen auf. Umgekehrt zeigt ein evolutionär weiter entfernter Organismus wahrscheinlich eine größere Divergenz in den Sequenzen der untersuchten Orthologe.
Datenbanken orthologer Gene und Werkzeuge zur De-novo-Orthologie-Inferenz
Aufgrund ihrer enormen Bedeutung für Biologie und Bioinformatik wurden orthologe Gene in mehreren spezialisierten Datenbanken organisiert , die Werkzeuge zur Identifizierung und Analyse orthologer Gensequenzen bereitstellen. Diese Ressourcen verwenden Ansätze, die sich im Allgemeinen in heuristische Analysen aller paarweisen Sequenzvergleiche und phylogenetische Methoden unterteilen lassen. Sequenzvergleichsmethoden wurden erstmals 1997 in der COGs-Datenbank eingeführt [ 10 ]. Diese Methoden wurden in zwölf verschiedenen Datenbanken erweitert und automatisiert, wobei AYbRAH (Analyzing Yeasts by Reconstructing Ancestry of Homologs) [ 11 ] die fortschrittlichste ist . Auch die folgenden Datenbanken sind aktuell verfügbar. Einige Werkzeuge sagen Orthologe de novo aus den eingegebenen Proteinsequenzen voraus, stellen aber möglicherweise keine Datenbank bereit. Zu diesen Werkzeugen gehören SonicParanoid und OrthoFinder.
- eggNOG [ 12 ] [ 13 ]
- GreenPhylDB [ 14 ] [ 15 ] für Pflanzen
- InParanoid [ 16 ] [ 17 ] konzentriert sich auf paarweise Orthologenbeziehungen
- OHNOLOGS [ 18 ] [ 19 ] ist ein Archiv der Gene, die bei Genomverdopplungen in den Wirbeltiergenomen einschließlich des menschlichen und des Mausgenoms erhalten geblieben sind.
- OMA [ 20 ]
- OrthoDB [ 21 ] erkennt an, dass das Orthologiekonzept relativ zu verschiedenen Speziationspunkten ist, indem es eine Hierarchie von Orthologen entlang des Artenbaums bereitstellt.
- OrthoInspector ( archiviert am 27.01.2020 in der Wayback Machine [ 22 ]) ist eine Datenbank mit orthologen Genen für 4753 Organismen aus allen drei Domänen des Lebens.
- OrthologID [ 23 ] [ 24 ]
- OrthoMaM [ 25 ] [ 26 ] [ 27 ] für Säugetiere
- OrthoMCL [ 28 ] [ 29 ]
- Zusammenfassung [ 30 ]
- SonicParanoid [ 31 ] [ 32 ] ist eine graphenbasierte Methode, die maschinelles Lernen nutzt, um die Ausführungszeiten zu verkürzen und Orthologe auf Domänenebene abzuleiten.
Baumbasierte phylogenetische Ansätze zielen darauf ab, Artbildung von Genduplikationsereignissen zu unterscheiden, indem sie Genbäume mit Artenbäumen vergleichen, wie es in Datenbanken und Softwaretools wie den folgenden implementiert ist:
- LOFT [ 33 ]
- TreeFam [ 34 ] [ 35 ]
- OrthoFinder [ 36 ]
Eine dritte Kategorie von Hybridansätzen verwendet sowohl heuristische als auch phylogenetische Methoden, um Cluster zu erstellen und Bäume zu bestimmen, zum Beispiel:
Paralogie
Paraloge Gene sind Gene, die durch Duplikationsereignisse im letzten gemeinsamen Vorfahren (LCA) der verglichenen Arten miteinander verwandt sind. Sie entstehen durch die Mutation duplizierter Gene während getrennter Artbildungsereignisse. Wenn Nachkommen des LCA mutierte Homologe der ursprünglich duplizierten Gene aufweisen, gelten diese Gene als paralog. [ 1 ]
Beispielsweise kann im letzten gemeinsamen Vorfahren (LCA) ein Gen (Gen A) dupliziert werden, wodurch ein separates, ähnliches Gen (Gen B) entsteht. Diese beiden Gene werden dann an nachfolgende Generationen weitergegeben. Im Zuge der Artbildung begünstigt eine bestimmte Umwelt eine Mutation in Gen A (Gen A1), wodurch eine neue Art mit den Genen A1 und B entsteht. In einem weiteren Artbildungsereignis begünstigt eine andere Umwelt eine Mutation in Gen B (Gen B1), wodurch eine neue Art mit den Genen A und B1 entsteht. Die Gene A1 und B1 der Nachkommen sind paralog zueinander, da sie Homologe sind und durch eine Duplikation im letzten gemeinsamen Vorfahren beider Arten miteinander verwandt sind. [ 1 ]
Weitere Klassifizierungen von Paralogen umfassen Alloparaloge (Out-Paraloge) und Symparaloge (In-Paraloge). Alloparaloge sind Paraloge, die durch Genduplikationen entstanden sind, die dem jeweiligen Artbildungsereignis vorausgingen. Anders ausgedrückt: Alloparaloge sind Paraloge, die durch Duplikationsereignisse im letzten gemeinsamen Vorfahren (LCA) der verglichenen Organismen entstanden sind. Das obige Beispiel ist ein Beispiel für Alloparalogie. Symparaloge sind Paraloge, die durch Genduplikation paraloger Gene in nachfolgenden Artbildungsereignissen entstanden sind. Wenn der Nachkomme mit den Genen A1 und B im obigen Beispiel ein weiteres Artbildungsereignis durchlaufen hätte, bei dem Gen A1 dupliziert wurde, hätte die neue Art die Gene B, A1a und A1b. In diesem Beispiel sind die Gene A1a und A1b Symparaloge. [ 1 ]

Paraloge Gene können die Struktur ganzer Genome prägen und somit die Genom-Evolution weitgehend erklären. Beispiele hierfür sind die Homeobox- Gene ( Hox- Gene) bei Tieren. Diese Gene erfuhren nicht nur Genduplikationen innerhalb von Chromosomen , sondern auch Duplikationen des gesamten Genoms . Infolgedessen sind Hox-Gene bei den meisten Wirbeltieren über mehrere Chromosomen verteilt, wobei die HoxA-D-Cluster am besten untersucht sind. [ 41 ]
Ein weiteres Beispiel sind die Globingene , die Myoglobin und Hämoglobin kodieren und als evolutionär alte Paraloge gelten. Auch die vier bekannten Hämoglobinklassen ( Hämoglobin A , Hämoglobin A2 , Hämoglobin B und Hämoglobin F ) sind zueinander paralog. Obwohl alle diese Proteine die gleiche grundlegende Funktion des Sauerstofftransports erfüllen, haben sie sich in ihrer Funktion bereits leicht auseinanderentwickelt: Fötales Hämoglobin (Hämoglobin F) besitzt eine höhere Sauerstoffaffinität als adultes Hämoglobin. Die Funktion ist jedoch nicht immer erhalten. So hat sich beispielsweise das menschliche Angiogenin von der Ribonuklease abgespalten , und obwohl die beiden Paraloge in ihrer Tertiärstruktur ähnlich bleiben, unterscheiden sich ihre Funktionen innerhalb der Zelle inzwischen deutlich.
Es wird häufig behauptet, dass Orthologe funktionell ähnlicher seien als Paraloge mit vergleichbarer Divergenz, doch mehrere Arbeiten haben diese Annahme in Frage gestellt. [ 42 ] [ 43 ] [ 44 ]
In einer gemeinsamen Studie zeigten Anton Yuryev und seine Koautoren, dass genomweite Protein-Protein-Interaktionsnetzwerke eine signifikant höhere Frequenz an selbstinteragierenden Proteinen ( Homodimeren ) und Interaktionen zwischen paralogen Proteinen aufweisen, als zufällig zu erwarten wäre. Diese Ergebnisse legen nahe, dass duplizierte Gene und ihre Proteinprodukte nicht zufällig innerhalb von Interaktionsnetzwerken verteilt sind, sondern vielmehr strukturelle und funktionelle Beziehungen beibehalten, die durch die Evolutionsgeschichte geprägt wurden. [ 4 ]
Verordnung
Paraloge werden oft unterschiedlich reguliert, z. B. durch unterschiedliche gewebespezifische Expressionsmuster (siehe Hox-Gene). Sie können aber auch auf Proteinebene unterschiedlich reguliert werden. So kodiert Bacillus subtilis zwei Paraloge der Glutamatdehydrogenase : GudB wird konstitutiv transkribiert, während RocG streng reguliert ist. In ihrem aktiven, oligomeren Zustand weisen beide Enzyme ähnliche enzymatische Raten auf. Der Austausch von Enzymen und Promotoren führt jedoch zu erheblichen Fitnessverlusten, was auf eine Koevolution von Promotor und Enzym hindeutet. Die Charakterisierung der Proteine zeigt, dass die enzymatische Aktivität von GudB im Vergleich zu RocG stark von Glutamat und pH-Wert abhängt. [ 45 ]
Paraloge Chromosomenregionen
Manchmal weisen große Chromosomenabschnitte ähnliche Geninhalte wie andere Chromosomenabschnitte innerhalb desselben Genoms auf. [ 46 ] Sie sind im menschlichen Genom gut charakterisiert und wurden dort als Beleg für die 2R-Hypothese herangezogen . Gruppen von duplizierten, triplizierten und quadruplizierten Genen, deren verwandte Gene auf verschiedenen Chromosomen liegen, werden als Überreste von Genom- oder Chromosomenduplikationen interpretiert. Eine Gruppe solcher paralogischer Regionen wird als Paralogon bezeichnet . [ 47 ] Gut untersuchte Paralogieregionen umfassen Bereiche der menschlichen Chromosomen 2, 7, 12 und 17 mit Hox- Genclustern, Kollagen- , Keratin- und anderen duplizierten Genen, [ 48 ] Bereiche der menschlichen Chromosomen 4, 5, 8 und 10 mit Neuropeptidrezeptorgenen , NK-Klasse -Homeobox-Genen und vielen weiteren Genfamilien , [ 49 ] [ 50 ] [ 51 ] sowie Teile der menschlichen Chromosomen 13, 4, 5 und X mit den ParaHox- Genen und ihren Nachbargenen. [ 52 ] Der Haupthistokompatibilitätskomplex (MHC) auf dem menschlichen Chromosom 6 weist Paralogieregionen auf den Chromosomen 1, 9 und 19 auf. [ 53 ] Ein Großteil des menschlichen Genoms scheint Paralogieregionen zugeordnet werden zu können. [ 54 ]
Ohnologie


Ohnologe Gene sind paraloge Gene , die durch Genomverdopplung entstanden sind . Der Name wurde von Ken Wolfe zu Ehren von Susumu Ohno eingeführt. [ 55 ] Ohnologe Gene sind für die Evolutionsanalyse nützlich, da sich alle Ohnologe eines Genoms über denselben Zeitraum (seit ihrem gemeinsamen Ursprung in der Genomverdopplung) differenziert haben. Es ist außerdem bekannt, dass Ohnologe Gene häufiger mit Krebs, dominanten genetischen Erkrankungen und pathogenen Kopienzahlvariationen assoziiert sind. [ 56 ] [ 57 ] [ 58 ] [ 59 ] [ 60 ]
Xenologie
Homologe, die durch horizontalen Gentransfer zwischen zwei Organismen entstehen, werden als Xenologe bezeichnet. Xenologe können unterschiedliche Funktionen haben, wenn die neue Umgebung für das horizontal übertragene Gen stark abweicht. Im Allgemeinen weisen Xenologe jedoch in beiden Organismen typischerweise ähnliche Funktionen auf. Der Begriff wurde von Walter Fitch geprägt. [ 7 ]
Homöologie
Homöologe Chromosomen oder Chromosomenabschnitte sind solche, die nach interspezifischer Hybridisierung und Allopolyploidisierung zu einem Hybridgenom zusammengeführt werden und deren Verwandtschaftsverhältnis in einer Vorfahrenart vollständig homolog war. [ 61 ] Bei Allopolyploiden paaren sich die homologen Chromosomen innerhalb jedes elterlichen Subgenoms während der Meiose korrekt , was zu disomischer Vererbung führt. Bei manchen Allopolyploiden können die homöologen Chromosomen der elterlichen Genome jedoch einander nahezu so ähnlich sein wie die homologen Chromosomen. Dies führt zu tetrasomischer Vererbung (Paarung von vier Chromosomen während der Meiose), intergenomischer Rekombination und reduzierter Fruchtbarkeit.
Gametologie
Gametologie bezeichnet die Beziehung zwischen homologen Genen auf nicht rekombinierenden, gegensätzlichen Geschlechtschromosomen . Der Begriff wurde 2000 von García-Moreno und Mindell geprägt. [ 62 ] Gametologe entstehen durch die Entstehung der genetischen Geschlechtsbestimmung und durch Rekombinationsbarrieren zwischen Geschlechtschromosomen. Beispiele für Gametologe sind CHDW und CHDZ bei Vögeln. [ 62 ]
Siehe auch
- Tiefe Homologie
- EggNOG (Datenbank)
- Neofunktionalisierung
- OrthoDB
- Orthologe Matrix (OMA)
- PhEVER
- Proteinfamilie
- Protein-Superfamilie
- Baumfamilie
- Syntelog
Referenzen
- ^ a b c d Koonin EV (2005). „Orthologe, Paraloge und evolutionäre Genomik“ . Annual Review of Genetics . 39 : 309–338 . doi : 10.1146/annurev.genet.39.073003.114725 . PMID 16285863 .
- ^ „Clustal FAQ #Symbole“ . Clustal . Abgerufen am 8. Dezember 2014 .
- ^ a b Reeck GR, de Haën C, Teller DC, Doolittle RF, Fitch WM, Dickerson RE, et al. (August 1987). "„ Homologie“ in Proteinen und Nukleinsäuren: Ein terminologisches Durcheinander und ein Ausweg daraus. Cell . 50 (5): 667. doi : 10.1016/0092-8674(87)90322-9 . PMID 3621342. S2CID 42949514 .
- ^ a b Holman C (Januar 2004). „Protein Similarity Score: A Simplified Version of the Blast Score as a Superior Alternative to Percent Identity for Claiming Genuses of Related Protein Sequences“ . Santa Clara High Technology Law Journal . 21 (1): 55. ISSN 0882-3383 .
- ^ Zhang, S.; Zhang, T.; Fu, Y. (1. Dezember 2023). „Proteomweite Strukturanalyse quantifiziert die strukturelle Konservierung zwischen entfernt verwandten Arten“ . Genome Research . 33 (11): 1975–1993 . doi : 10.1101/gr.277771.123 . PMC 10760455. PMID 37993136 .
- ^ Torarinsson E, Sawera M, Havgaard JH, Fredholm M, Gorodkin J (2006). „Tausende korrespondierender menschlicher und muriner Genomregionen, die in der Primärsequenz nicht ausgerichtet werden können, enthalten eine gemeinsame RNA-Struktur“ . Genome Res . 16 (7): 885–9 . doi : 10.1101/gr.5226606 . PMC 1484455. PMID 16751343 .
- ^ a b Fitch WM (Juni 1970). „Unterscheidung homologer und analoger Proteine“. Systematic Zoology . 19 (2): 99–113 . doi : 10.2307/2412448 . JSTOR 2412448. PMID 5449325. Wenn die Homologie auf einer Genduplikation beruht, sodass beide Kopien im Laufe der Evolution eines Organismus parallel vererbt wurden (z. B. Hämoglobin a und b ) ,
sollten die Gene als paralog (para = parallel) bezeichnet werden. Wenn die Homologie hingegen auf einer Artbildung beruht, sodass die Geschichte des Gens die Geschichte der Art widerspiegelt (z. B. Hämoglobin a bei Mensch und Maus), sollten die Gene als ortholog (ortho = exakt) bezeichnet werden.
- ^ Falciatore A, Merendino L, Barneche F, Ceol M, Meskauskiene R, Apel K, Rochaix JD (Januar 2005). „ Die FLP-Proteine fungieren als Regulatoren der Chlorophyllsynthese in Reaktion auf Licht- und Plastidensignale in Chlamydomonas“ . Genes & Development . 19 (1): 176–87 . doi : 10.1101/gad.321305 . PMC 540235. PMID 15630026 .
- Fang G, Bhardwaj N, Robilotto R, Gerstein MB (März 2010). „Einführung in die Genorthologie und funktionelle Analyse“ . PLOS Computational Biology . 6 (3) e1000703. Bibcode : 2010PLSCB...6E0703F . doi : 10.1371/journal.pcbi.1000703 . PMC 2845645. PMID 20361041 .
- ^ COGs: Clusters of Orthologous Groups of proteins Tatusov RL, Koonin EV, Lipman DJ (Oktober 1997). "A genomic perspective on protein families" . Science . 278 (5338): 631–7 . Bibcode : 1997Sci...278..631T . doi : 10.1126/science.278.5338.631 . PMID 9381173 .
- ^ Correia K, Yu SM, Mahadevan R (Januar 2019). „AYbRAH: eine kuratierte Orthologendatenbank für Hefen und Pilze, die 600 Millionen Jahre Evolution umfasst“ . Database . 2019. doi : 10.1093 / database/baz022 . PMC 6425859. PMID 30893420 .
- ^ eggNOG: Evolutionäre Genealogie von Genen: Nicht-überwachte orthologe Gruppen. Muller J, Szklarczyk D, Julien P, Letunic I, Roth A, Kuhn M, et al. (Januar 2010). „eggNOG v2.0: Erweiterung der evolutionären Genealogie von Genen um verbesserte nicht-überwachte orthologe Gruppen, Arten und funktionelle Annotationen“ . Nucleic Acids Research . 38 (Datenbankausgabe): D190-5. doi : 10.1093/nar/gkp951 . PMC 2808932. PMID 19900971 .
- ^ Powell S, Forslund K, Szklarczyk D, Trachana K, Roth A, Huerta-Cepas J, et al. (Januar 2014). „eggNOG v4.0: Nested Orthology Inference across 3686 organisms“ . Nucleic Acids Research . 42 (Datenbankausgabe): D231–9. doi : 10.1093 / nar/gkt1253 . PMC 3964997. PMID 24297252 .
- ^ GreenPhylDB Conte MG, Gaillard S, Lanau N, Rouard M, Périn C (Januar 2008). „GreenPhylDB: eine Datenbank für die vergleichende Genomik von Pflanzen“ . Nucleic Acids Research . 36 (Datenbankausgabe): D991-8. doi : 10.1093/nar/gkm934 . PMC 2238940. PMID 17986457 .
- ^ Rouard M, Guignon V, Aluome C, Laporte MA, Droc G, Walde C, et al. (Januar 2011). „GreenPhylDB v2.0: vergleichende und funktionelle Genomik in Pflanzen“ . Nucleic Acids Research . 39 (Datenbankausgabe): D1095-102. doi : 10.1093 / nar/gkq811 . PMC 3013755. PMID 20864446 .
- ^ InParanoid: Eukaryotische Orthologengruppen (Archiviert am 03.05.2021 in der Wayback Machine) Ostlund G, Schmitt T, Forslund K, Köstler T, Messina DN, Roopra S, et al. (Januar 2010). „InParanoid 7: Neue Algorithmen und Werkzeuge für die Analyse eukaryotischer Orthologie“ . Nucleic Acids Research . 38 (Datenbankausgabe): D196–203. doi : 10.1093/nar/gkp931 . PMC 2808972. PMID 19892828 .
- ^ Sonnhammer EL, Östlund G (Januar 2015). „In Paranoid 8: Orthologieanalyse zwischen 273 Proteomen, hauptsächlich eukaryotischen“ . Nucleic Acids Research . 43 (Datenbankausgabe): D234–9. doi : 10.1093/nar/ gku1203 . PMC 4383983. PMID 25429972 .
- ^ Singh PP, Arora J, Isambert H (Juli 2015). „Identifizierung von Ohnolog-Genen, die durch Genomverdopplung bei frühen Wirbeltieren entstanden sind, basierend auf dem Vergleich der Syntenie in mehreren Genomen“ . PLOS Computational Biology . 11 (7) e1004394. Bibcode : 2015PLSCB..11E4394S . doi : 10.1371/journal.pcbi.1004394 . PMC 4504502. PMID 26181593 .
- ^ "Wirbeltier-Ohnologs" . ohnologs.curie.fr . Abgerufen am 12.10.2018 .
- ^ Altenhoff AM, Glover NM, Train CM, Kaleb K, Warwick Vesztrocy A, Dylus D, et al. (Januar 2018). „Die OMA-Orthologiedatenbank im Jahr 2018: Abruf evolutionärer Beziehungen zwischen allen Domänen des Lebens durch erweiterte Web- und Programmschnittstellen“ . Nucleic Acids Research . 46 (D1): D477– D485 . doi : 10.1093/nar/gkx1019 . PMC 5753216. PMID 29106550 .
- ^ Zdobnov EM, Tegenfeldt F, Kuznetsov D, Waterhouse RM, Simão FA, Ioannidis P, et al. (Januar 2017). „OrthoDB v9.1: Katalogisierung evolutionärer und funktioneller Annotationen für Orthologe von Tieren, Pilzen, Pflanzen, Archaeen, Bakterien und Viren“ . Nucleic Acids Research . 45 (D1): D744– D749 . doi : 10.1093/nar/gkw1119 . PMC 5210582. PMID 27899580 .
- ^ Nevers Y, Kress A, Defosset A, Ripp R, Linard B, Thompson JD, et al. (Januar 2019). „OrthoInspector 3.0: offenes Portal für vergleichende Genomik“ . Nucleic Acids Research . 47 (D1): D411– D418 . doi : 10.1093/nar/gky1068 . PMC 6323921. PMID 30380106 .
- ^ OrthologID ( Archiviert am 24.02.2014 in der Wayback Machine) Chiu JC, Lee EK, Egan MG, Sarkar IN, Coruzzi GM, DeSalle R (März 2006). „OrthologID: Automatisierung der genomweiten Orthologidentifizierung im Rahmen eines Parsimonie-Ansatzes“ . Bioinformatics . 22 (6): 699–707 . doi : 10.1093/bioinformatics/btk040 . PMID 16410324 .
- ^ Egan M, Lee EK, Chiu JC, Coruzzi G, Desalle R (2009). „Genorthologie-Bewertung mit OrthologID“. In: Posada D (Hrsg.). Bioinformatik für die DNA-Sequenzanalyse . Methoden der Molekularbiologie. Band 537. Humana Press. S. 23–38 . doi : 10.1007/978-1-59745-251-9_2 . ISBN 978-1-59745-251-9PMID 19378138 .
- ^ OrthoMaM Ranwez V, Delsuc F, Ranwez S, Belkhir K, Tilak MK, Douzery EJ (November 2007). „OrthoMaM: eine Datenbank orthologer genomischer Marker für die Phylogenetik plazentaler Säugetiere“ . BMC Evolutionary Biology . 7 (1): 241. Bibcode : 2007BMCEE...7..241R . doi : 10.1186 / 1471-2148-7-241 . PMC 2249597. PMID 18053139 .
- ^ Douzery EJ, Scornavacca C, Romiguier J, Belkhir K, Galtier N, Delsuc F, Ranwez V (Juli 2014). „OrthoMaM v8: eine Datenbank orthologer Exons und kodierender Sequenzen für die vergleichende Genomik bei Säugetieren“ . Molecular Biology and Evolution . 31 (7): 1923–8 . doi : 10.1093/molbev/msu132 . PMID 24723423 .
- ^ Scornavacca C, Belkhir K, Lopez J, Dernat R, Delsuc F, Douzery EJ, Ranwez V (April 2019). „OrthoMaM v10: Skalierung von Alignments orthologer kodierender Sequenzen und Exons mit mehr als hundert Säugetiergenomen“ . Molecular Biology and Evolution . 36 (4): 861–862 . doi : 10.1093/molbev/msz015 . PMC 6445298. PMID 30698751 .
- ^ OrthoMCL: Identifizierung von Orthologengruppen für eukaryotische Genome. Chen F, Mackey AJ, Stoeckert CJ, Roos DS (Januar 2006). „OrthoMCL-DB: Abfrage einer umfassenden, artenübergreifenden Sammlung von Orthologengruppen“ . Nucleic Acids Research . 34 (Datenbankausgabe): D363–8. doi : 10.1093/nar/gkj123 . PMC 1347485. PMID 16381887 .
- Fischer S, Brunk BP, Chen F, Gao X, Harb OS, Iodice JB et al. (September 2011). „Using OrthoMCL to assign proteins to OrthoMCL-DB groups or to cluster proteomes into new ortholog groups“ . Current Protocols in Bioinformatics . Kapitel 6 (1): Einheit 6.12.1–19. doi : 10.1002/0471250953.bi0612s35 . ISBN 978-0-471-25095-1PMC 3196566 . PMID 21901743 .
- ^ Roundup ( Archiviert am 29.04.2014 in der Wayback Machine) Deluca TF, Wu IH, Pu J, Monaghan T, Peshkin L, Singh S, Wall DP (August 2006). „Roundup: ein Multi-Genom-Repository von Orthologen und evolutionären Distanzen“ . Bioinformatics . 22 (16): 2044–6 . doi : 10.1093/bioinformatics/btl286 . PMID 16777906 .
- ^ Cosentino, Salvatore; Iwasaki, Wataru (1. Januar 2019). „SonicParanoid: schnelle, genaue und einfache Orthologie-Inferenz“ . Bioinformatics . 35 (1): 149–151 . doi : 10.1093/bioinformatics/ bty631 . PMC 6298048. PMID 30032301 .
- ^ Cosentino, Salvatore; Sriswasdi, Sira; Iwasaki, Wataru (25. Juli 2024). „SonicParanoid2: Schnelle, genaue und umfassende Orthologie-Inferenz mit maschinellem Lernen und Sprachmodellen“ . Genome Biology . 25 (1): 195. doi : 10.1186/s13059-024-03298-4 . PMC 11270883. PMID 39054525 .
- ^ TreeFam: Datenbank für Baumfamilien. van der Heijden RT, Snel B, van Noort V, Huynen MA (März 2007). „ Orthologievorhersage mit skalierbarer Auflösung durch phylogenetische Baumanalyse“ . BMC Bioinformatics . 8 : 83. doi : 10.1186/1471-2105-8-83 . PMC 1838432. PMID 17346331 .
- ^ TreeFam: Datenbank für Baumfamilien. Ruan J, Li H, Chen Z, Coghlan A, Coin LJ, Guo Y, et al. (Januar 2008). „TreeFam: Aktualisierung 2008“ . Nucleic Acids Research . 36 (Datenbankausgabe): D735–40. doi : 10.1093 / nar/gkm1005 . PMC 2238856. PMID 18056084 .
- ^ Schreiber F, Patricio M, Muffato M, Pignatelli M, Bateman A (Januar 2014). „TreeFam v9: eine neue Website, mehr Arten und Orthologie-on-the-fly“ . Nucleic Acids Research . 42 (Datenbankausgabe): D922-5. doi : 10.1093/nar/ gkt1055 . PMC 3965059. PMID 24194607 .
- ^ OrthoFinder: Orthologe aus Genbäumen. Emms DM, Kelly S (November 2019). „OrthoFinder: Phylogenetische Orthologie-Inferenz für die vergleichende Genomik“ . Genome Biology . 20 (1): 238. doi : 10.1186/s13059-019-1832-y . PMC 6857279. PMID 31727128 .
- ^ Vilella AJ, Severin J, Ureta-Vidal A, Heng L, Durbin R, Birney E (Februar 2009). „ EnsemblCompara GeneTrees: Vollständige, duplikationsbewusste phylogenetische Bäume bei Wirbeltieren“ . Genome Research . 19 (2): 327–335 . doi : 10.1101/gr.073585.107 . PMC 2652215. PMID 19029536 .
- ^ Thanki AS, Soranzo N, Haerty W, Davey RP (März 2018). „GeneSeqToFamily: ein Galaxy-Workflow zur Identifizierung von Genfamilien basierend auf der Ensembl Compara GeneTrees-Pipeline“ . GigaScience . 7 (3): 1–10 . doi : 10.1093/gigascience/giy005 . PMC 5863215. PMID 29425291 .
- ^ Sayers EW, Barrett T, Benson DA, Bolton E, Bryant SH, Canese K, et al. (Januar 2011). „ Datenbankressourcen des National Center for Biotechnology Information“ . Nucleic Acids Research . 39 (Datenbankausgabe): D38–51. doi : 10.1093/nar/gkq1172 . PMC 3013733. PMID 21097890 .
- ^ Fulton DL, Li YY, Laird MR, Horsman BG, Roche FM, Brinkman FS (Mai 2006). „Verbesserung der Spezifität der Hochdurchsatz-Orthologvorhersage“ . BMC Bioinformatics . 7 : 270. doi : 10.1186/1471-2105-7-270 . PMC 1524997. PMID 16729895 .
- ^ a b Zakany J, Duboule D (August 2007). „Die Rolle der Hox-Gene während der Gliedmaßenentwicklung bei Wirbeltieren“ . Current Opinion in Genetics & Development . 17 (4): 359–66 . doi : 10.1016/j.gde.2007.05.011 . PMID 17644373 .
- Studer RA, Robinson-Rechavi M (Mai 2009). „Wie sicher können wir sein, dass Orthologe ähnlich, Paraloge aber unterschiedlich sind?“ Trends in Genetics . 25 (5): 210–216 . doi : 10.1016/j.tig.2009.03.004 . PMID 19368988 .
- ^ Nehrt NL, Clark WT, Radivojac P, Hahn MW (Juni 2011). „Testing the ortholog conjecture with comparative functional genomic data from mammals“ . PLOS Computational Biology . 7 (6) e1002073. Bibcode : 2011PLSCB...7E2073N . doi : 10.1371/ journal.pcbi.1002073 . PMC 3111532. PMID 21695233 .
- ^ Eisen J (20. September 2011). "Gastbeitrag und Einladung zur Diskussion von Matthew Hahn über das Ortholog Conjecture Paper" .
- ^ Noda-Garcia L, Romero ML, Longo LM, Kolodkin-Gal I, Tawfik DS (Juli 2017). „Glutamatdehydrogenasen von Bacilli divergierten durch Koevolution von Transkription und Enzymregulation“ . EMBO Reports . 18 (7): 1139–1149 . doi : 10.15252/embr.201743990 . PMC 5494520. PMID 28468957 .
- ^ Lundin LG (April 1993). „Die Evolution des Wirbeltiergenoms, wie sie sich in paralogen Chromosomenregionen beim Menschen und der Hausmaus widerspiegelt“. Genomics . 16 (1): 1–19 . doi : 10.1006/geno.1993.1133 . PMID 8486346 .
- ^ Coulier F, Popovici C, Villet R, Birnbaum D (Dezember 2000). „MetaHox-Gencluster“. The Journal of Experimental Zoology . 288 (4): 345–51 . Bibcode : 2000JEZ...288..345C . doi : 10.1002/1097-010X(20001215)288:4<345::AID-JEZ7>3.0.CO;2-Y . PMID 11144283 .
- ^ Ruddle FH, Bentley KL, Murtha MT, Risch N (1994). „Genverlust und -gewinn in der Evolution der Wirbeltiere“. Development . 1994 : 155–61 . doi : 10.1242/dev.1994.Supplement.155 . PMID 7579516 .
- ^ Pébusque MJ, Coulier F, Birnbaum D, Pontarotti P (September 1998). „Großflächige Genomduplikationen in der Antike: Phylogenetische und Kopplungsanalysen beleuchten die Genom-Evolution der Chordatiere“ . Molecular Biology and Evolution . 15 (9): 1145–59 . doi : 10.1093/oxfordjournals.molbev.a026022 . PMID 9729879 .
- ^ Larsson TA, Olsson F, Sundstrom G, Lundin LG, Brenner S, Venkatesh B, Larhammar D (Juni 2008). „ Frühe Chromosomenduplikationen bei Wirbeltieren und die Evolution der Neuropeptid-Y-Rezeptor-Genregionen“ . BMC Evolutionary Biology . 8 (1): 184. Bibcode : 2008BMCEE...8..184L . doi : 10.1186/1471-2148-8-184 . PMC 2453138. PMID 18578868 .
- ^ Pollard SL, Holland PW (September 2000). „Evidence for 14 homeobox gene clusters in human genome ancestry“ . Current Biology . 10 (17): 1059–62 . Bibcode : 2000CBio...10.1059P . doi : 10.1016/ S0960-9822 (00)00676-X . PMID 10996074. S2CID 32135432 .
- ^ Mulley JF, Chiu CH, Holland PW (Juli 2006). „Aufspaltung eines Homeobox-Clusters nach Genomduplikation bei Teleostiern“ . Proceedings of the National Academy of Sciences of the United States of America . 103 (27): 10369–10372 . Bibcode : 2006PNAS..10310369M . doi : 10.1073 / pnas.0600341103 . PMC 1502464. PMID 16801555 .
- ^ Flajnik MF, Kasahara M (September 2001). „Vergleichende Genomik des MHC: Einblicke in die Evolution des adaptiven Immunsystems“ . Immunity . 15 (3): 351–62 . doi : 10.1016/S1074-7613(01)00198-4 . PMID 11567626 .
- ^ McLysaght A, Hokamp K, Wolfe KH (Juni 2002). „Umfangreiche Genomduplikation während der frühen Chordatenevolution“. Nature Genetics . 31 (2): 200–4 . doi : 10.1038/ng884 . PMID 12032567. S2CID 8263376 .
- ^ Wolfe K (Mai 2000). „Robustheit – sie ist nicht da , wo man sie vermutet“. Nature Genetics . 25 (1): 3–4 . doi : 10.1038/75560 . PMID 10802639. S2CID 85257685 .
- ^ Singh PP, Affeldt S, Cascone I, Selimoglu R, Camonis J, Isambert H (November 2012). „Zur Erweiterung „gefährlicher“ Genrepertoires durch Genomverdopplungen bei frühen Wirbeltieren“ . Cell Reports . 2 (5): 1387–98 . doi : 10.1016/j.celrep.2012.09.034 . PMID 23168259 .
- ^ Malaguti G, Singh PP, Isambert H (Mai 2014). „Zur Retention von Genduplikaten, die zu dominanten schädlichen Mutationen neigen“ . Theoretical Population Biology . 93 : 38–51 . Bibcode : 2014TPBio..93...38M . doi : 10.1016/j.tpb.2014.01.004 . PMID 24530892 .
- ^ Singh PP, Affeldt S, Malaguti G, Isambert H (Juli 2014). „Human dominant disease genes are enriched in paralogs originating from whole genome duplication“ . PLOS Computational Biology . 10 (7) e1003754. Bibcode : 2014PLSCB..10E3754S . doi : 10.1371/journal.pcbi.1003754 . PMC 4117431. PMID 25080083 .
- ^ McLysaght A, Makino T, Grayton HM, Tropeano M, Mitchell KJ, Vassos E, Collier DA (Januar 2014). „Ohnologe sind in pathogenen Kopienzahlmutationen überrepräsentiert“ . Proceedings of the National Academy of Sciences of the United States of America . 111 (1): 361–6 . Bibcode : 2014PNAS..111..361M . doi : 10.1073 / pnas.1309324111 . PMC 3890797. PMID 24368850 .
- ^ Makino T, McLysaght A (Mai 2010). „Ohnologe im menschlichen Genom sind dosisbalanciert und häufig mit Krankheiten assoziiert“ . Proceedings of the National Academy of Sciences of the United States of America . 107 (20): 9270–4 . Bibcode : 2010PNAS..107.9270M . doi : 10.1073 / pnas.0914697107 . PMC 2889102. PMID 20439718 .
- ^ Glover NM, Redestig H, Dessimoz C (Juli 2016). „Homöologe: Was sind sie und wie leiten wir sie ab?“ Trends in Plant Science . 21 (7). Cell Press : 609–621 . Bibcode : 2016TPS....21..609G . doi : 10.1016/j.tplants.2016.02.005 . PMC 4920642. PMID 27021699 .
- ^ a b García-Moreno J, Mindell DP (Dezember 2000). „Verankerung einer Phylogenie mit homologen Genen auf gegenüberliegenden Geschlechtschromosomen (Gametologen): eine Fallstudie anhand von aviären CHD“ . Molecular Biology and Evolution . 17 (12): 1826–32 . doi : 10.1093/oxfordjournals.molbev.a026283 . PMID 11110898 .