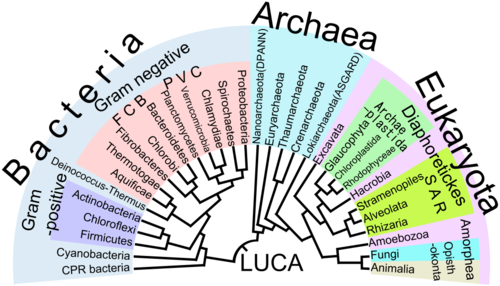
Der letzte gemeinsame Vorfahre aller Lebewesen ( LUCA ) ist die hypothetische letzte gemeinsame Vorfahrenpopulation, von der alle nachfolgenden Lebensformen im Rahmen des Drei-Domänen-Systems der Bakterien , Archaeen und Eukaryoten abstammen . Die meisten Studien legen nahe, dass der LUCA vor etwa 3,5 Milliarden Jahren existierte, möglicherweise sogar schon vor 4,3 Milliarden Jahren oder früher. Die Natur dieses Zeitpunkts oder Stadiums der Divergenz ist weiterhin Gegenstand der Forschung.
Alle früheren Lebensformen vor dieser Aufspaltung und alle heute existierenden Organismen haben vermutlich einen gemeinsamen Vorfahren . Ein formaler statistischer Test stützt diese Theorie eines universellen gemeinsamen Vorfahren (UCA) gegenüber konkurrierenden Hypothesen mit mehreren gemeinsamen Vorfahren. Der erste universelle gemeinsame Vorfahre (FUCA) ist ein hypothetischer nicht-zellulärer Vorfahre von LUCA und anderen, heute ausgestorbenen Schwesterlinien.
Ob die Entstehung von Viren vor oder nach dem letzten gemeinsamen Vorfahren aller Menschen (LUCA) stattfand – sowie die Vielfalt der heute existierenden Viren und ihrer Wirte – bleibt Gegenstand von Untersuchungen.
Da keine Fossilien von LUCA gefunden wurden, könnte es vor den frühesten bekannten Lebensformen existiert haben . Die detaillierte biochemische Ähnlichkeit aller heutigen Lebensformen macht seine Existenz jedoch unter Biochemikern allgemein anerkannt. Seine Eigenschaften lassen sich aus gemeinsamen Merkmalen moderner Genome ableiten . Diese Gene beschreiben eine komplexe Lebensform mit einer Lipiddoppelschicht und vielen gemeinsam angepassten Merkmalen, darunter der genetische Code und Ribosomen für Transkriptions- und Translationsmechanismen , die die Information von der DNA über die mRNA in Proteine umwandeln .
Historischer Hintergrund

Ein phylogenetischer Baum veranschaulicht unmittelbar die Idee der Evolution durch Abstammung von einem einzigen Vorfahren . [ 1 ] Ein früher Stammbaum des Lebens wurde 1809 von Jean-Baptiste Lamarck in seiner „Philosophie zoologique“ skizziert. [ 2 ] [ 3 ] Charles Darwin formulierte die Theorie der universellen gemeinsamen Abstammung durch einen evolutionären Prozess bekanntermaßen in seinem Buch „ Über die Entstehung der Arten“ von 1859: „Daher schließe ich aus der Analogie, dass wahrscheinlich alle organischen Wesen, die jemals auf dieser Erde gelebt haben, von einer einzigen Urform abstammen, in die das Leben zuerst eingehaucht wurde.“ [ 4 ] Der letzte Satz des Buches beginnt mit einer Wiederholung der Hypothese:
In dieser Sichtweise des Lebens, dessen vielfältige Kräfte ursprünglich einigen wenigen Formen oder einer einzigen eingehaucht wurden, liegt eine gewisse Erhabenheit ... [ 4 ].
In einem weiteren Brief an Hooker aus dem Jahr 1871 spekulierte Darwin über den natürlichen Ursprung des Lebens selbst und schrieb, dass das Leben in einem „warmen kleinen Teich, in dem allerlei Ammoniak und Phosphorsalze, Licht, Wärme, Elektrizität usw. vorhanden waren“, seinen Anfang genommen haben könnte – ein früher Ausdruck der Abiogenese. [ 5 ]
Der Begriff „letzter gemeinsamer Vorfahre aller Lebewesen“ oder „LUCA“ wurde erstmals in den 1990er Jahren für einen solchen Urorganismus verwendet. [ 6 ] [ 7 ] [ 8 ]
Ableitung der Merkmale von LUCA
Biochemische Mechanismen
Obwohl die Anatomie von LUCA nicht mit Sicherheit rekonstruiert werden kann, lassen sich seine biochemischen Mechanismen anhand von Eigenschaften, die er mit heute lebenden Organismen teilt, sowie genetischer Analysen ableiten und detailliert beschreiben. [ 9 ]
LUCA besaß mit Sicherheit Gene und einen genetischen Code . [ 10 ] Sein genetisches Material war höchstwahrscheinlich DNA , [ 9 ] sodass es nach der RNA-Welt existierte . [ a ] [ 13 ] Die DNA wurde durch ein Enzym , die DNA-Polymerase , doppelsträngig gehalten , welches die Struktur und Richtung der DNA erkennt. [ 14 ] Die Integrität der DNA wurde durch eine Gruppe von Reparaturenzymen, darunter die DNA-Topoisomerase, aufrechterhalten . [ 15 ] Wenn der genetische Code auf doppelsträngiger DNA basierte , wurde er durch Kopieren der Information in einzelsträngige RNA exprimiert. Die RNA wurde durch eine DNA-abhängige RNA-Polymerase unter Verwendung von Nukleotiden, die denen der DNA ähnelten, hergestellt. [ 9 ] Es besaß mehrere DNA-bindende Proteine , wie zum Beispiel Histon -Faltproteine. [ 16 ] Der genetische Code wurde in Proteine exprimiert . Diese wurden aus 20 freien Aminosäuren durch Translation einer Messenger-RNA über einen Mechanismus von Ribosomen , Transfer-RNAs und einer Gruppe verwandter Proteine zusammengesetzt. [ 9 ]
Obwohl LUCA wahrscheinlich nicht zur sexuellen Fortpflanzung fähig war , waren Genfunktionen vorhanden, die den DNA-Transfer zwischen Individuen der Population förderten, um die genetische Rekombination zu ermöglichen . Homologe Genprodukte, die die genetische Rekombination fördern, kommen in Bakterien, Archaeen und Eukaryoten vor, wie beispielsweise das RecA- Protein in Bakterien, das RadA-Protein in Archaeen und die Proteine Rad51 und Dmc1 in Eukaryoten. [ 17 ]
Die Funktionalität von LUCA und Hinweise auf die frühe Evolution membranabhängiger biologischer Systeme legen nahe, dass LUCA eine Zelle mit Membranen war. [ 18 ] Sie enthielt ein wasserbasiertes Zytoplasma , das von einer Lipiddoppelschichtmembran umschlossen war ; sie vermehrte sich durch Zellteilung. [ 9 ] Mithilfe spezifischer Ionentransporter (oder Ionenpumpen) neigte sie dazu, Natrium auszuschließen und Kalium anzureichern. Die Zelle vermehrte sich durch Duplikation ihres gesamten Inhalts , gefolgt von Zellteilung . Sie nutzte Chemiosmose zur Energiegewinnung. Außerdem reduzierte sie CO₂ und oxidierte H₂ ( Methanogenese oder Acetogenese ) über Acetylthioester . [ 19 ] [ 20 ]
Durch phylogenetische Klammerung , also die Analyse seiner Nachkommengruppen, scheint LUCA ein kleiner, einzelliger Organismus gewesen zu sein. Wahrscheinlich besaß er einen ringförmigen DNA -Strang , der frei in der Zelle lag. Morphologisch wäre er in einer gemischten Population kleiner, heutiger Bakterien vermutlich nicht aufgefallen. Carl Woese , der Begründer des Drei-Domänen-Systems , erklärte, dass LUCA in seinem genetischen Apparat „einfacher und rudimentärer als die einzelnen Vorfahren, aus denen die drei Domänen (und ihre Nachkommen) hervorgingen“, gewesen sei. [ 21 ]
Because bacteria and archaea differ in their structure of phospholipids and cell wall, ion pumping, most proteins involved in DNA replication, and glycolysis, it is inferred that LUCA had a permeable membrane without an ion pump. The emergence of Na+/H+antiporters likely led to the later evolution of impermeable membranes in eukaryotes, archaea, and bacteria. This would accord with LUCA's having made use of the natural geochemical proton gradient in its environment across a leaky membrane to provide it with energy. Cell walls, too, would have evolved later.[22] Although LUCA likely had DNA, it is unknown if it could replicate DNA: as Weiss et al. write, it "might just have been a chemically stable repository for RNA-based replication".[10] It is likely that LUCA's permeable membrane was composed of archaeal lipids (isoprenoids) and bacterial lipids (fatty acids). Isoprenoids would have helped to stabilize LUCA's membrane in the surrounding extreme habitat.[23]
LUCA's genome was likely similar in size to that of modern prokaryotes, encoding around 2,600 proteins, based on statistical inference using the probabilistic gene- and species-tree reconciliation algorithm ALE.[24] It may have been an acetogen, respiring anaerobically, and may have had an early CAS-based anti-viral immune system. The inferred metabolic features are consistent with the early Earth hydrothermal systems with high concentrations of CO2 and H2.[25]
An anaerobic thermophile


Eine Alternative zur Suche nach „universellen“ Merkmalen ist die Genomanalyse zur Identifizierung phylogenetisch alter Gene. Dies liefert ein Bild eines letzten gemeinsamen Vorfahren (LUCA), der in einer geochemisch unwirtlichen Umgebung leben konnte und modernen Prokaryoten ähnelt. Die Analyse biochemischer Stoffwechselwege impliziert die gleichen chemischen Prozesse wie die phylogenetische Analyse. [ 10 ]

Im Jahr 2016 analysierten Madeline C. Weiss und ihre Kollegen genetisch 6,1 Millionen proteinkodierende Gene und 286.514 Proteincluster aus sequenzierten prokaryotischen Genomen verschiedener phylogenetischer Bäume und identifizierten 355 Proteincluster, die wahrscheinlich für den letzten gemeinsamen Vorfahren (LUCA) charakteristisch waren. Die Ergebnisse ihrer Analyse sind hochspezifisch, werden aber kontrovers diskutiert. Sie beschreiben LUCA als „ anaerob , CO₂ - fixierend, H₂ - abhängig mit einem Wood-Ljungdahl-Weg (dem reduktiven Acetyl-Coenzym-A- Weg), N₂ - fixierend und thermophil . Die Biochemie von LUCA war reich an FeS-Clustern und radikalischen Reaktionsmechanismen.“ [ 26 ] Die Cofaktoren deuten auf eine Abhängigkeit von Übergangsmetallen , Flavinen , S-Adenosylmethionin , Coenzym A , Ferredoxin , Molybdopterin , Corrinen und Selen hin . Sein genetischer Code erforderte Nukleosidmodifikationen und S-Adenosylmethionin-abhängige Methylierungen . [ 26 ] Sie zeigen, dass Methanogene und Clostridien in den 355 untersuchten Proteinlinien basal, nahe der Wurzel des phylogenetischen Baums , waren und dass der LUCA daher möglicherweise in einer anaeroben hydrothermalen Umgebung in einem geochemisch aktiven Milieu lebte, das reich an H₂ , CO₂ und Eisen war und in dem Meerwasser mit heißem Magma unter dem Meeresboden interagierte . [ 26 ] Es wird angenommen, dass der LUCA aus H₂ und CO₂ über den umgekehrten unvollständigen Krebszyklus wuchs . [ 27 ] Weitere in LUCA abgeleitete Stoffwechselwege sind der Pentosephosphatweg , die Glykolyse und die Gluconeogenese . [ 28 ]

Weiss und Kollegen schreiben: „Experimente zeigen, dass Formiat , Methanol , Acetylgruppen und sogar Pyruvat spontan aus CO₂, gediegenen Metallen und Wasser entstehen – Substanzen , die im Acetyl-CoA-Stoffwechselweg [Chemikalien der anaeroben Atmung] gebildet werden. “ Diese Kombination findet sich in hydrothermalen Quellen. [ 10 ]
Ein Experiment zeigt, dass Zn²⁺ , Cr³⁺ und Fe unter sauren Bedingungen 6 der 11 Reaktionen eines alten anabolen Stoffwechselwegs, des sogenannten umgekehrten Krebszyklus, fördern können , was darauf hindeutet, dass LUCA entweder hydrothermale Quellen oder saure, metallreiche hydrothermale Felder bewohnt haben könnte. [ 29 ]
Unterrepräsentierte Proteinfamilien
Einige andere Forscher haben die Schlussfolgerungen von Weiss et al. aus dem Jahr 2016 infrage gestellt. Sarah Berkemer und Shawn McGlynn argumentieren, dass Weiss et al. die Proteinfamilien unzureichend untersucht hätten, sodass die phylogenetischen Bäume unvollständig seien und die Evolution der Proteine nicht korrekt beschrieben. Der Versuch, die Umwelt des letzten gemeinsamen Vorfahren (LUCA) anhand einer nahezu universellen Genverteilung zu erklären (wie bei Weiss et al. 2016), birgt zwei Risiken. Zum einen besteht die Gefahr, Konvergenz oder horizontalen Gentransfer fälschlicherweise der vertikalen Abstammung zuzuschreiben; zum anderen besteht die Gefahr, potenzielle LUCA-Genfamilien fälschlicherweise horizontalen Gentransferereignissen zuzuordnen. Eine phylogenomische und geochemische Analyse einer Gruppe von Proteinen, die wahrscheinlich auf den LUCA zurückgehen, zeigt, dass dieser K⁺-abhängige GTPasen besaß und die Ionenkonzentration seiner intrazellulären Flüssigkeit anscheinend ein hohes K⁺ / Na⁺ - Verhältnis aufwies .+ 4, Fe 2+ , CO 2+ , Ni 2+ , Mg 2+ , Mn 2+ , Zn 2+ , Pyrophosphat und PO3− 4Dies würde auf einen Lebensraum in Form einer terrestrischen heißen Quelle hindeuten . Möglicherweise besaß es einen Phosphat-basierten Stoffwechsel. Darüber hinaus standen diese Proteine in keinem Zusammenhang mit Autotrophie (der Fähigkeit eines Organismus, seine eigene organische Substanz herzustellen ), was darauf schließen lässt, dass der LUCA einen heterotrophen Lebensstil pflegte (organische Substanz konsumierte) und sein Wachstum von der durch die physikalische Umwelt produzierten organischen Substanz abhing. [ 30 ]
Das Vorhandensein der energieregulierenden Enzyme CODH / Acetyl-Coenzym-A- Synthase in LUCA könnte sowohl mit einem autotrophen als auch mit einem mixotrophen oder heterotrophen Lebensstil vereinbar sein . [ 31 ] Weiss et al. entgegneten 2018, dass kein Enzym einen trophischen Lebensstil definiert und dass Heterotrophe sich aus Autotrophen entwickelt haben. [ 10 ]
Eine Studie aus dem Jahr 2024 schätzte anhand früher Proteindomänensequenzen direkt die Reihenfolge, in der Aminosäuren in den genetischen Code eingefügt wurden. Insgesamt wurden 969 Proteindomänen als im frühen gemeinsamen Vorfahren aller Vorfahren (LUCA) vorhanden klassifiziert, darunter 101 Domänensequenzen, die auf noch ältere prä-LUCA-Gemeinschaften zurückgehen. 88 % der als LUCA oder prä-LUCA annotierten Proteindomänen wurden bestätigt, indem sie mit Proteinen assoziiert wurden, die mit über 50%iger Wahrscheinlichkeit im LUCA vorhanden waren. [ 25 ] Die Studie ergab, dass metallbindende und schwefelhaltige Aminosäuren früh im genetischen Code vorkamen. Sie legt nahe, dass Schwefelstoffwechsel und metallkatalysierte Reaktionen wichtige Elemente des Lebens zum Zeitpunkt des LUCA waren. [ 32 ]
Möglicherweise ein Mesophiler
Mehrere Indizien deuten darauf hin, dass LUCA nicht thermophil war. Der Anteil an G + C -Nukleotidpaaren (im Vergleich zu A + T- Paaren) kann das thermische Optimum eines Organismus anzeigen, da G+C-Nukleotide aufgrund einer zusätzlichen Wasserstoffbrücke thermisch stabiler sind . Daher kommen sie in der rRNA von Thermophilen häufiger vor; dies ist jedoch in der rekonstruierten rRNA von LUCA nicht zu beobachten . [ 33 ] [ 34 ] [ 35 ]
Die Identifizierung thermophiler Gene im LUCA wurde infrage gestellt [ 36 ] , da es sich stattdessen um Gene handeln könnte, die sich später in Archaeen oder Bakterien entwickelten und dann, wie in Woeses Hypothese von 1998 [ 37 ] beschrieben, durch horizontalen Gentransfer zwischen diesen Organismengruppen migrierten. Beispielsweise wurde die thermophilenspezifische Topoisomerase, die Reverse Gyrase , zunächst dem LUCA zugeschrieben [ 26 ], bevor eine umfassende phylogenetische Studie einen jüngeren Ursprung dieses Enzyms und einen darauf folgenden umfangreichen horizontalen Gentransfer aufdeckte [ 38 ] . Der LUCA könnte ein Mesophiler gewesen sein, der CO₂ fixierte , auf H₂ angewiesen war und in der Nähe hydrothermaler Quellen lebte [ 39 ] .
Weitere Hinweise darauf, dass LUCA mesophil war , liefert die Aminosäurezusammensetzung seiner Proteine. Die Häufigkeit der Aminosäuren I , V , Y , W , R , E und L (bezeichnet als IVYWREL) in den Proteinen eines Organismus korreliert mit seiner optimalen Wachstumstemperatur. [ 40 ] Phylogenetische Analysen deuten darauf hin, dass der IVYWREL-Gehalt der LUCA-Proteine auf eine ideale Temperatur unter 50 °C schließen lässt. [ 35 ]
Hinweise darauf, dass Bakterien und Archaeen unabhängig voneinander Phasen erhöhter und anschließend verringerter Thermotoleranz durchliefen, deuten auf einen dramatischen Klimawandel nach dem LUCA hin, der beide Populationen betraf und die scheinbare genetische Verbreitung thermotoleranter Merkmale erklären würde. [ 41 ]
Alter
Studien aus den Jahren 2000 bis 2018 deuten auf ein zunehmend hohes Alter des letzten gemeinsamen Vorfahren (LUCA) hin. Im Jahr 2000 reichten Schätzungen des Alters des LUCA von 3,8 bis 3,5 Milliarden Jahren ( Bya ) im Paläoarchaikum [ 42 ] , einige hundert Millionen Jahre nach den frühesten fossilen Lebensnachweisen , deren Alter zwischen 4,28 und 3,48 Milliarden Jahren liegt [ 43 ] [ 44 ] [ 45 ] [ 46 ] [ 47 ]. Dies datiert den Ursprung der ersten Lebensformen kurz nach dem späten schweren Bombardement, das die Erdoberfläche wiederholt sterilisiert haben soll. Eine Studie von Holly Betts und Kollegen aus dem Jahr 2018 wandte ein molekulares Uhrmodell auf das Genom und die Fossilienfunde an (102 Arten, 29 gemeinsame proteinkodierende Gene, hauptsächlich ribosomale Gene) und kam zu dem Schluss, dass der letzte gemeinsame Vorfahre (LUCA) vor dem späten schweren Bombardement lebte (wodurch der LUCA über 3,9 Milliarden Jahre alt wäre). [ 48 ] Eine Studie aus dem Jahr 2022 legte ein Alter von etwa 4,2–3,6 Milliarden Jahren für den LUCA nahe. [ 49 ] Eine Studie aus dem Jahr 2024 deutete darauf hin, dass der LUCA vor etwa 4,2 Milliarden Jahren lebte (mit einem Konfidenzintervall von 4,33–4,09 Milliarden Jahren). [ 25 ] Diese Datierung impliziert, dass die Zeitspanne zwischen dem Ursprung des Lebens und dem LUCA nur etwa 100–200 Millionen Jahre beträgt, da die ersten bewohnbaren Umgebungen wahrscheinlich vor etwa 4,3 oder 4,4 Milliarden Jahren entstanden. [ 50 ]
Wurzel des Lebensbaums

1990 wurde ein neuartiges Konzept des Lebensbaums vorgestellt, das die lebende Welt in drei Stämme unterteilt: die Domänen Bakterien , Archaeen und Eukaryoten . [ 21 ] [ 52 ] [ 53 ] [ 54 ] Es ist der erste Baum, der ausschließlich auf molekularer Phylogenetik basiert und die Evolution von Mikroorganismen miteinbezieht. Er wurde als „universeller phylogenetischer Baum in verwurzelter Form“ bezeichnet. [ 21 ] Dieser Baum und seine Verwurzelung wurden Gegenstand von Debatten. [ 52 ] [ b ]
Inzwischen wurden zahlreiche Modifikationen dieses Stammbaums vorgeschlagen , vor allem hinsichtlich der Rolle und Bedeutung des horizontalen Gentransfers für seine Wurzelbildung und frühe Verzweigung. [ 56 ] [ 51 ] Da Vererbung sowohl vertikal als auch horizontal erfolgt, könnte der Stammbaum des Lebens in seiner Frühphase eher netzartig und später, mit zunehmender Dreistämmigkeit, baumartiger gewesen sein. [ 51 ] Vermutlich hat der horizontale Gentransfer mit zunehmender Zellstabilität abgenommen. [ 57 ]
Eine modifizierte Version des Stammbaums, basierend auf mehreren molekularen Studien, verortet ihre Wurzel zwischen der monophyletischen Domäne der Bakterien und einem aus Archaeen und Eukaryoten gebildeten Taxon . [ 56 ] Eine kleine Minderheit der Studien platziert die Wurzel innerhalb der Domäne der Bakterien, im Stamm der Bacillota , [ 58 ] oder gibt an, dass der Stamm der Chloroflexota (früher Chloroflexi) basal zu einem Taxon mit Archaeen, Eukaryoten und den übrigen Bakterien ist (wie von Thomas Cavalier-Smith vorgeschlagen ). [ 59 ] Metagenomische Analysen bestätigen ein Zwei-Domänen-System mit den Domänen Archaeen und Bakterien; in dieser Sichtweise des Stammbaums des Lebens stammen Eukaryoten von Archaeen ab. [ 60 ] [ 61 ] [ 62 ] Mit dem späteren Genpool der Nachkommen des letzten gemeinsamen Vorfahren aller Vorfahren (LUCA), der ein gemeinsames Gerüst der AT/GC-Regel und die Standardsequenz von zwanzig Aminosäuren aufweist, wäre horizontaler Gentransfer möglich und möglicherweise weit verbreitet gewesen. [ 63 ]
Die Natur des letzten gemeinsamen Vorfahren (LUCA) ist weiterhin umstritten. 1994 schlug Otto Kandler , basierend auf dem Urstoffwechsel (wie von Wächtershäuser diskutiert ), eine sukzessive Aufspaltung der drei Domänen des Lebens [ 21 ] aus einer multiphänotypischen Population von Präzellen vor , die durch allmähliche evolutionäre Verbesserungen ( Zellularisierung ) erreicht wurde. [ 64 ] [ 65 ] [ 66 ] Die phänotypisch diversen Präzellen dieser Population waren metabolisierende, selbstreproduzierende Einheiten, die einen häufigen Austausch genetischer Information aufwiesen. In diesem Szenario gab es also keine „erste Zelle“. Dies könnte die Einheit und gleichzeitig die Aufteilung in drei Linien (die drei Domänen) des Lebens erklären. Kandlers Präzellentheorie wird von Wächtershäuser unterstützt. [ 67 ] [ 68 ] 1998 schlug Carl Woese , basierend auf dem RNA-Welt-Konzept, vor, dass kein einzelner Organismus als letzter gemeinsamer Vorfahre (LUCA) gelten könne und dass das genetische Erbe aller modernen Organismen auf horizontalen Gentransfer innerhalb einer alten Organismengemeinschaft zurückzuführen sei. [ 37 ] Andere Autoren stimmen darin überein, dass es zum Zeitpunkt des LUCA ein „komplexes kollektives Genom“ [ 69 ] gab und dass horizontaler Gentransfer für die Evolution späterer Gruppen von Bedeutung war. [ 69 ] Nicolas Glansdorff erklärt, dass der LUCA „Teil einer metabolisch und morphologisch heterogenen Gemeinschaft war, in der das genetische Material ständig neu kombiniert wurde“ und „solange diese Vielfalt an genetischem Material anhielt, eine evolutionäre Einheit blieb, wenn auch lose definiert und ständig veränderlich.“ [ 70 ]
Die Theorie eines gemeinsamen Ursprungs allen Lebens ist weithin anerkannt. Im Jahr 2010 veröffentlichte D. L. Theobald , basierend auf der „umfangreichen Menge an molekularen Sequenzen, die mittlerweile aus allen Domänen des Lebens verfügbar sind“ [ 71 ] , einen formalen Test für die universelle gemeinsame Abstammung (UCA). Dieser Test befasst sich mit der gemeinsamen Abstammung aller heute lebenden Landorganismen, die jeweils genealogisch von einer einzigen Art aus der fernen Vergangenheit abstammen. Theobalds formaler Test sprach sich für die Existenz eines gemeinsamen Ursprungs gegenüber einer Vielzahl alternativer Hypothesen aus, darunter auch horizontaler Gentransfer. Grundlegende biochemische Prinzipien legen nahe, dass alle Organismen einen gemeinsamen Ursprung haben. [ 72 ]
Ein vorgeschlagener nicht-zellulärer Vorfahre von LUCA ist der erste universelle gemeinsame Vorfahre (FUCA). [ 73 ] [ 74 ] FUCA wäre demnach der Vorfahre aller modernen Zellen sowie alter, heute ausgestorbener Zelllinien, die nicht von LUCA abstammen. Es wird angenommen, dass FUCA neben LUCA weitere Nachkommen hatte, von denen keiner moderne Nachkommen besitzt. Einige Gene dieser alten, heute ausgestorbenen Zelllinien sollen horizontal in das Genom früher Nachkommen von LUCA übertragen worden sein. [ 63 ]
LUCA und Viren
Der Ursprung von Viren ist weiterhin umstritten. [ 54 ] [ 75 ] Da Viren für ihre Vermehrung Wirtszellen benötigen, ist es wahrscheinlich, dass sie erst nach der Entstehung der Zellen entstanden sind . Viren könnten sogar mehrere Ursprünge haben , und verschiedene Virustypen könnten sich im Laufe der Lebensgeschichte unabhängig voneinander entwickelt haben. Es existieren verschiedene Hypothesen zum Ursprung von Viren, beispielsweise ein früher Ursprung aus der RNA-Welt oder ein späterer Ursprung aus selbstsüchtiger DNA . [ 54 ]
Aufgrund der aktuellen Verbreitung von Viren in Bakterien und Archaeen wird vermutet, dass der letzte gemeinsame Vorfahre (LUCA) von mehreren Viren befallen war, die Vorfahren der Viren waren, die heute diese beiden Domänen als Wirte haben. [ 76 ] Darüber hinaus scheint der LUCA eine umfassende Virusentwicklung vorausgegangen zu sein, da die Jelly-Roll-Struktur der Kapsidproteine bei RNA- und DNA-Viren in allen drei Domänen des Lebens vorkommt. [ 77 ] [ 78 ] Die Viren des LUCA waren wahrscheinlich hauptsächlich doppelsträngige DNA-Viren der Gruppen Duplodnaviria und Varidnaviria . Zwei weitere Gruppen einzelsträngiger DNA-Viren , Efunaviria und Volvereviria , infizierten vermutlich den letzten gemeinsamen Vorfahren der Bakterien. [ c ] Der letzte gemeinsame Vorfahre der Archaeen war wahrscheinlich Wirt von spindelförmigen Viren. All diese Viren könnten den LUCA befallen haben; in diesem Fall wären sie vermutlich in der jeweiligen Wirtsdomäne, in der sie nicht mehr existieren, ausgestorben. Im Gegensatz dazu scheinen RNA-Viren keine bedeutenden Parasiten des LUCA gewesen zu sein, obwohl man intuitiv annehmen könnte, dass Viren ihren Ursprung in einer RNA-Welt haben und direkt von RNA-Viren abstammen. Stattdessen waren RNA-Viren zur Zeit des LUCA wahrscheinlich bereits von DNA-Viren verdrängt worden. [ 76 ]
LUCA könnte der Vorfahre einiger Viren gewesen sein, wobei einer seiner Nachkommen der archaische Virocell-Vorfahre, der Vorfahre großer bis mittelgroßer DNA-Viren , war . [ 79 ] Das Verteilungsmuster von DNA-Viren im Stammbaum des Lebens stützt ebenfalls die Hypothese, dass DNA-Viren von dem RNA-basierten LUCA abstammen. [ 80 ] Viren könnten sich ebenso gut vor LUCA, aber nach dem ersten gemeinsamen Vorfahren aller Lebewesen (FUCA) entwickelt haben , gemäß der Reduktionshypothese, wonach Riesenviren aus Urzellen entstanden, die parasitär wurden . [ 63 ]
Siehe auch
- Zellularisierung – Wissenschaftliche Theorien über den Ursprung und die Entstehung von Zellen
- Chemoton – Abstraktes Modell für die Grundeinheit des Lebens
- Darwinsche Schwelle – Zeitraum während der Evolution der ersten Zellen
- Letzter gemeinsamer Vorfahre aller Eukaryoten – Prozess der Entstehung der ersten eukaryotischen Zelle
- Präzelluläres Leben – Hypothetisches Leben vor der vollständigen Zelle
- Proto-Metabolismus – Chemische Reaktionen, die in den modernen Stoffwechsel übergehen
- Zeitleiste der Evolutionsgeschichte des Lebens
- Urmetazoen – Hypothetischer letzter gemeinsamer Vorfahre aller Tiere
Anmerkungen
- Andere Studien legen nahe, dass LUCA vollständig durch RNA definiert worden sein könnte [ 11 ] ,aus einem RNA-DNA-Hybridgenom bestand oder einen retrovirusähnlichen genetischen Zyklus besaß, wobei DNA als stabiles genetisches Reservoir diente. [ 12 ]
- Eine Debatte befasste sich mit einer früheren kladistischen Hypothese: Dem Baum könne nicht auf die übliche algorithmische Weise eine Wurzel zugeordnet werden, da dies eine Außengruppe als Referenz erfordern würde . Im Falle des universellen Baums existiere jedoch keine Außengruppe. Die kladistische Methode wurde beispielsweise verwendet, um die Purpurbakterien zu verwurzeln. Die Festlegung einer Wurzel für den universellen Baum des Lebens, die Verzweigungsreihenfolge der primären Urreiche, sei jedoch eine ganz andere Angelegenheit. [ 55 ]
- ^ Efunaviria wird in der zitierten Quelle als Tubulavirales und Volvereviria als Microviridae bezeichnet .
Referenzen
- ^ Gregory, T. Ryan (2008). „Evolutionäre Stammbäume verstehen“ . Evolution: Education and Outreach . 1 (2): 121–137 . doi : 10.1007/s12052-008-0035-x . S2CID 15488906 .
- ^ Lamarck, Jean Baptiste Pierre Antoine de Monet de (1994) [1809]. Philosophie zoologique (PDF) . Paris. P. 737.
{{cite book}}CS1 Wartung: Standort des fehlenden Herausgebers ( Link ) - ^ Noble, Denis (1. Juli 2020). „Editorial: Charles Darwin, Jean-Baptiste Lamarck und Argumente des 21. Jahrhunderts zu den Grundlagen der Biologie“ . Progress in Biophysics and Molecular Biology . 153 : 1–4 . doi : 10.1016/j.pbiomolbio.2020.02.005 . PMID 32092299. S2CID 211475380. Archiviert vom Original am 1. März 2022. Abgerufen am 23. Dezember 2022 .
- ^ a b Darwin, Charles (1859). Die Entstehung der Arten durch natürliche Zuchtwahl . John Murray . S. 484, 490. Archiviert vom Original am 8. Oktober 2022. Abgerufen am 8. Oktober 2022 .
- ^ „Brief 7471 – Darwin, CR an JD Hooker, 1. Februar 1871“ . Das Darwin-Korrespondenzprojekt . Universität Cambridge . Abgerufen am 6. November 2025 .
- ^ Wikham, Gene Stephen (März 1995). Die molekularphylogenetische Analyse natürlich vorkommender hyperthermophiler mikrobieller Gemeinschaften (Dissertation). Indiana University . S. 4.ProQuest 304192982
- ^ Forterre, Patrick (1997). „Archaea: What can we learn from their sequences?“. Current Opinion in Genetics & Development . 7 (6): 764–770 . doi : 10.1016/s0959-437x(97)80038-x . PMID 9468785 .
- ^ Koonin, Eugene V .; Galperin, Michael Y. (2003). Sequenz – Evolution – Funktion: Computergestützte Ansätze in der vergleichenden Genomik . Boston, Massachusetts: Kluwer. S. 252. ISBN 978-1-4757-3783-7OCLC 55642057 .
- ^ a b c d e Wächtershäuser, Günter (1998). „Towards a Reconstruction of Ancestral Genomes by Gene Cluster Alignment“. Systematic and Applied Microbiology . 21 (4): 473–474 , IN1, 475–477 . Bibcode : 1998SyApM..21N1475W . doi : 10.1016/S0723-2020(98)80058-1 .
- Weiss , Madeline C.; Preiner, Martina; Xavier, Joana C.; Zimorski, Verena; Martin, William F. (16. August 2018). „ Der letzte gemeinsame Vorfahre der frühen Erdchemie und des Beginns der Genetik“ . PLOS Genetics . 14 ( 8) e1007518. doi : 10.1371/ journal.pgen.1007518 . PMC 6095482. PMID 30114187. S2CID 52019935 .
- ^ Marshall, Michael. „Das Leben begann mit einem planetaren Megaorganismus“ . New Scientist . Archiviert vom Original am 25. Juli 2016. Abgerufen am 31. Juli 2016 .
- ^ Koonin, Eugene V .; Martin, William F. (1. Dezember 2005). „Zur Entstehung von Genomen und Zellen in anorganischen Kompartimenten“ . Trends in Genetics . 21 (12): 647–654 . doi : 10.1016/j.tig.2005.09.006 . PMC 7172762. PMID 16223546 .
- ^ Garwood, Russell J. (2012). „Muster in der Paläontologie: Die ersten 3 Milliarden Jahre der Evolution“ . Palaeontology Online . 2 (11): 1–14 . Archiviert vom Original am 26. Juni 2015. Abgerufen am 25. Juni 2015 .
- ^ Koonin, Eugene V .; Krupovic, M.; Ishino, S.; Ishino, Y. (2020). „Die Replikationsmaschinerie von LUCA: gemeinsamer Ursprung der DNA-Replikation und Transkription“ . BMC Biology . 18 (1): 61. doi : 10.1186 / s12915-020-00800-9 . PMC 7281927. PMID 32517760 .
- ^ Ahmad, Muzammil; Xu, Dongyi; Wang, Weidong (23. Mai 2017). „Topoisomerasen vom Typ IA können in allen Lebensbereichen sowohl für DNA als auch für RNA als „Magier“ fungieren“ . RNA Biology . 14 (7): 854–864 . doi : 10.1080/15476286.2017.1330741 . PMC 5546716. PMID 28534707 .
- ^ Lupas, Andrei N.; Alva, Vikram (2018). „Histone existierten bereits vor der Trennung von Bakterien und Archaeen“. Bioinformatics . 35 (14): 2349–2353 . doi : 10.1093/bioinformatics/bty1000 . PMID 30520969 .
- Bernstein , H., Bernstein, C. (2017). Sexuelle Kommunikation bei Archaeen, die Vorstufe der eukaryotischen Meiose. In: Witzany, G. (Hrsg.) Biokommunikation der Archaeen. Springer, Cham. https://doi.org/10.1007/978-3-319-65536-9_7 (Archiviert am 23. Februar 2024 im Internet Archive)
- ^ Gogarten, Johann Peter; Taiz, Lincoln (1992). „Evolution der protonenpumpenden ATPasen: Die Wurzel des Lebensbaums“. Photosynthesis Research . 33 (2): 137–146 . Bibcode : 1992PhoRe..33..137G . doi : 10.1007 / bf00039176 . ISSN 0166-8595 . PMID 24408574. S2CID 20013957 .
- ^ Martin, W.; Russell, MJ (Oktober 2007). „Über den Ursprung der Biochemie an einer alkalischen hydrothermalen Quelle“ . Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 362 (1486): 1887–1925 . doi : 10.1098/rstb.2006.1881 . PMC 2442388. PMID 17255002 .
- ^ Lane, Nick ; Allen, JF; Martin, William (April 2010). „Wie hat LUCA seinen Lebensunterhalt bestritten? Chemiosmose im Ursprung des Lebens“. BioEssays . 32 (4): 271–280 . doi : 10.1002/bies.200900131 . PMID 20108228 .
- ^ a b c d Woese, CR ; Kandler, O. ; Wheelis, ML (Juni 1990). „Towards a natural system of organisms: proposal for the domains Archaea, Bacteria, and Eucarya“ . PNAS . 87 ( 12): 4576–4579 . Bibcode : 1990PNAS...87.4576W . doi : 10.1073/pnas.87.12.4576 . PMC 54159. PMID 2112744 .
- ^ Sojo, Víctor; Pomiankowski, Andrew; Lane, Nick (12. August 2014). „Eine bioenergetische Grundlage für die Membrandivergenz bei Archaeen und Bakterien“ . PLOS Biology . 12 (8) e1001926. doi : 10.1371/journal.pbio.1001926 . PMC 4130499. PMID 25116890 .
- ^ Jordan, SF; Nee, E.; Lane, Nick (18. Oktober 2019). „Isoprenoide erhöhen die Stabilität von Fettsäuremembranen bei der Entstehung des Lebens und führen möglicherweise zu einer frühen Lipidteilung“ . Interface Focus . 9 (6). doi : 10.1098/rsfs.2019.0067 . PMC 6802135. PMID 31641436 .
 Dieser Artikel enthält Text aus dieser Quelle, die unter der CC BY 4.0- Lizenz verfügbar ist.
- ^ Szöllősi, Gergely J.; Rosikiewicz, Wojciech; Boussau, Bastien; Tannier, Eric; Daubin, Vincent (18. September 2013). „ Effiziente Exploration des Raums vereinheitlichter Genbäume“ . Systematic Biology . 62 (6): 901–912 . doi : 10.1093/sysbio/syt054 . PMC 3797637. PMID 23925510 .
- Moody , Edmund RR; Álvarez-Carretero, Sandra; Mahendrarajah, Tara A.; Clark, James W.; Betts, Holly C.; et al. (12. Juli 2024). „ Die Natur des letzten gemeinsamen Vorfahren aller Lebewesen und seine Auswirkungen auf das frühe Erdsystem“ . Nature Ecology & Evolution . 8 (9): 1654–1666 . Bibcode : 2024NatEE...8.1654M . doi : 10.1038/ s41559-024-02461-1 . PMC 11383801. PMID 38997462 .
- Weiss , Madeline C.; Sousa, F.L.; Mrnjavac, N.; et al. (2016). „ Die Physiologie und der Lebensraum des letzten gemeinsamen Vorfahren aller Lebewesen“ ( PDF) . Nature Microbiology . 1 (9): 16116. doi : 10.1038/nmicrobiol.2016.116 . PMID 27562259. S2CID 2997255. Archiviert (PDF) vom Original am 18. April 2022. Abgerufen am 10. Oktober 2022 .
- ^ Harrison, Stuart A.; Palmeira, Raquel Nunes; Halpern, Aaron; Lane, Nick (1. November 2022). „Eine biophysikalische Grundlage für die Entstehung des genetischen Codes in Protozellen“ . Biochimica et Biophysica Acta (BBA) – Bioenergetik . 1863 (8) 148597. doi : 10.1016/j.bbabio.2022.148597 . PMID 35868450 .
- ^ Harrison, Stuart A.; Lane, Nick (12. Dezember 2018). „Das Leben als Leitfaden für die präbiotische Nukleotidsynthese“ . Nature Communications . 9 (1): 5176. Bibcode : 2018NatCo...9.5176H . doi : 10.1038/s41467-018-07220- y . PMC 6289992. PMID 30538225 .
- ^ Muchowska, Kamila B.; Varma, Sreejith J.; Chevallot-Beroux, Elodie; Lethuillier-Karl, Lucas; Li, Guang; Moran, Joseph (2. Oktober 2017). „Metalle fördern Sequenzen des umgekehrten Krebszyklus“ . Naturökologie und Evolution . 1 (11): 1716–1721 . Bibcode : 2017NatEE...1.1716M . doi : 10.1038/s41559-017-0311-7 . ISSN 2397-334X . PMC 5659384 . PMID 28970480 .
- ^ Mulkidjanian, Armen Y.; Bychkov, Andrew Yu; Dibrova, Daria V.; Galperin, Michael Y.; Koonin, Eugene V. (2012). „Ursprung der ersten Zellen in terrestrischen, anoxischen Geothermalfeldern“ . Proceedings of the National Academy of Sciences . 109 (14): E821–30. Bibcode : 2012PNAS..109E.821M . doi : 10.1073/pnas.1117774109 . PMC 3325685. PMID 22331915 .
- ^ Adam, Panagiotis S.; Borrel, Guillaume; Gribaldo, Simonetta (6. Februar 2018). „Evolutionsgeschichte der Kohlenmonoxid-Dehydrogenase/Acetyl-CoA-Synthase, eines der ältesten Enzymkomplexe“ . PNAS . 115 ( 6): E1166– E1173. Bibcode : 2018PNAS..115E1166A . doi : 10.1073/pnas.1716667115 . PMC 5819426. PMID 29358391 .
- ^ Wehbi, Sawsan; Wheeler, Andrew; Morel, Benoit; Manepalli, Nandini; Minh, Bui Quang; Lauretta, Dante S.; Masel, Joanna (24. Dezember 2024). „Reihenfolge der Aminosäurerekrutierung in den genetischen Code, aufgelöst durch die Proteindomänen des letzten gemeinsamen Vorfahren“ . Proceedings of the National Academy of Sciences . 121 (52) e2410311121. Bibcode : 2024PNAS..12110311W . doi : 10.1073/pnas.2410311121 . PMC 11670089. PMID 39665745 .
- ^ Galtier, Nicolas; Tourasse, Nicolas; Gouy, Manolo (8. Januar 1999). „Ein nicht-hyperthermophiler gemeinsamer Vorfahre aller heute lebenden Formen“. Science . 283 (5399): 220–221 . doi : 10.1126/science.283.5399.220 . PMID 9880254 .
- ^ Groussin, Mathieu; Boussau, Bastien; Charles, Sandrine; Blanquart, Samuel; Gouy, Manolo (23. Oktober 2013). „Das molekulare Signal für die Anpassung an kalte Temperaturen während des frühen Lebens auf der Erde“ . Biology Letters . 9 (5) 20130608. doi : 10.1098/rsbl.2013.0608 . PMC 3971708. PMID 24046876 .
- ^ a b Cantine, Marjorie D.; Fournier, Gregory P. (6. Juli 2017). „Umweltanpassung vom Ursprung des Lebens bis zum letzten gemeinsamen Vorfahren aller Lebewesen“. Origins of Life and Evolution of Biospheres . 48 (1): 35–54 . doi : 10.1007/s11084-017-9542-5 . hdl : 1721.1/114219 . PMID 28685374. S2CID 254888920 .
- ^ Gogarten, Johann Peter; Deamer, David (2016). „ Ist LUCA ein thermophiler Progenot?“ Nature Microbiology . 1 ( 12): 16229. Bibcode : 2016NatMb...116229G . doi : 10.1038/nmicrobiol.2016.229 . PMID 27886195. S2CID 205428194. Archiviert vom Original am 3. April 2020. Abgerufen am 25. Juni 2019 .
- ^ a b Woese, Carl (Juni 1998). „Der universelle Vorfahre“ . PNAS . 95 ( 12): 6854–6859 . Bibcode : 1998PNAS...95.6854W . doi : 10.1073/pnas.95.12.6854 . PMC 22660. PMID 9618502 .
- ^ Catchpole, Ryan J; Forterre, Patrick (1. Dezember 2019). „Die Evolution der Reverse Gyrase deutet auf einen nicht-hyperthermophilen letzten gemeinsamen Vorfahren hin“ . Molecular Biology and Evolution . 36 (12): 2737–2747 . doi : 10.1093/molbev/msz180 . PMC 6878951. PMID 31504731 .
- ^ Camprubí, E.; de Leeuw, JW; House, CH; Raulin, F.; Russell, MJ; Spang, A.; Tirumalai, MR; Westall, F. (12. Dezember 2019). „Die Entstehung des Lebens“ . Space Science Reviews . 215 (8): 56. Bibcode : 2019SSRv..215...56C . doi : 10.1007/s11214-019-0624-8 .
- ^ Zeldovich, Konstantin B.; Berezovsky, Igor N.; Shakhnovich, Eugene I. (2007). „Protein- und DNA-Sequenzdeterminanten der thermophilen Anpassung“ . PLOS Computational Biology . 3 (1) e5. arXiv : q-bio/0607004 . Bibcode : 2007PLSCB...3....5Z . doi : 10.1371/journal.pcbi.0030005 . PMC 1769408. PMID 17222055 .
- ^ Boussau, Bastien; Blanquart, Samuel; Necsulea, Anamaria; Lartillot, Nicolas; Gouy, Manolo (26. November 2008). „Parallele Anpassungen an hohe Temperaturen im archaischen Zeitalter“ . Natur . 456 (7224): 942–945 . Bibcode : 2008Natur.456..942B . doi : 10.1038/nature07393 . PMID 19037246 . S2CID 4348746 .
- ^ Doolittle, W. F. (Februar 2000). „Die Entwurzelung des Baumes des Lebens“. Scientific American . 282 (2): 90–95 . Bibcode : 2000SciAm.282b..90D . doi : 10.1038/scientificamerican0200-90 . JSTOR 26058605. PMID 10710791 .
- ^ Noffke, N.; Christian, D.; Wacey, D.; Hazen, RM (Dezember 2013). „Mikrobiell induzierte Sedimentstrukturen dokumentieren ein uraltes Ökosystem in der ca. 3,48 Milliarden Jahre alten Dresser-Formation, Pilbara, Westaustralien“ . Astrobiology . 13 ( 12): 1103–1124 . Bibcode : 2013AsBio..13.1103N . doi : 10.1089/ast.2013.1030 . PMC 3870916. PMID 24205812 .
- Ohtomo , Yoko; Kakegawa, Takeshi; Ishida, Akizumi; Nagase, Toshiro; Rosing, Minik T. (2013). „Nachweis von biogenem Graphit in früharchaischen Metasedimenten der Isua-Formation“. Nature Geoscience . 7 (1): 25–28 . Bibcode : 2014NatGe...7...25O . doi : 10.1038/ngeo2025 .
- ^ Hassenkam, T.; Andersson, MP; Dalby, KN; et al. (2017). „Elemente des eoarchaischen Lebens in Mineraleinschlüssen“. Nature . 548 ( 7665): 78–81 . Bibcode : 2017Natur.548...78H . doi : 10.1038/nature23261 . PMID 28738409. S2CID 205257931 .
- ^ Bell, Elizabeth A.; Boehnke, Patrick; Harrison, T. Mark; Mao, Wendy L. (24. November 2015). „ Potenziell biogener Kohlenstoff in einem 4,1 Milliarden Jahre alten Zirkon erhalten“ . PNAS . 112 (47): 14518–14521 . Bibcode : 2015PNAS..11214518B . doi : 10.1073/pnas.1517557112 . PMC 4664351. PMID 26483481 .
- ^ Dodd, Matthew S.; Papineau, Dominic; Grenne, Tor; et al. (2. März 2017). „Hinweise auf frühes Leben in den ältesten hydrothermalen Ausfällungen der Erde“ ( PDF) . Nature . 543 (7643): 60–64 . Bibcode : 2017Natur.543...60D . doi : 10.1038/nature21377 . PMID 28252057. S2CID 2420384. Archiviert (PDF) vom Original am 23. Juli 2018. Abgerufen am 25. Juni 2019 .
- Betts , Holly C.; Puttick, Mark N.; Clark, James W.; Williams, Tom A.; Donoghue, Philip CJ; Pisani, Davide (2018). „Integrierte genomische und fossile Belege beleuchten die frühe Evolution des Lebens und den Ursprung der Eukaryoten“ . Nature Ecology & Evolution . 2 (10): 1556–1562 . Bibcode : 2018NatEE...2.1556B . doi : 10.1038/s41559-018-0644- x . PMC 6152910. PMID 30127539 .
- ^ Moody, Edmund RR; Mahendrarajah, Tara A.; Dombrowski, Nina; Clark, James W.; Petitjean, Celine; Offre, Pierre; Szöllősi, Gergely J.; Spang, Anja; Williams, Tom A. (22. Februar 2022). „Eine Schätzung der tiefsten Verzweigungen des Baumes des Lebens anhand alter vertikal evolvierender Gene“ . eLife . 11 e66695 . doi : 10.7554/eLife.66695 . ISSN 2050-084X . PMC 8890751. PMID 35190025 .
- ^ Goldman, Aaron D.; Becerra, Arturo (1. Oktober 2024). „Eine neue Sicht auf den letzten gemeinsamen Vorfahren aller Lebewesen“ . Journal of Molecular Evolution . 92 (5): 659–661 . Bibcode : 2024JMolE..92..659G . doi : 10.1007/s00239-024-10193- w . PMC 11458664. PMID 39122826 .
- ^ a b c Smets, Barth F.; Barkay, Tamar (September 2005). „Horizontaler Gentransfer: Perspektiven an einem Scheideweg wissenschaftlicher Disziplinen“ . Nature Reviews Microbiology . 3 (9): 675–678 . doi : 10.1038/nrmicro1253 . PMID 16145755. S2CID 2265315 .
- ^ a b Sapp, Jan A. (2009). Die neuen Grundlagen der Evolution: Über den Baum des Lebens . New York: Oxford University Press. S. Kapitel 19: 257ff (neues Konzept des Baumes des Lebens), Kapitel 17–21 plus Schlussbemerkungen: 226–318 (Diskussion des Baumes und seiner Wurzelung), 286ff (LUCA). ISBN 978-0-199-73438-2Archiviert vom Original am 6. November 2023. Abgerufen am 21. November 2023 .
- ^ Madigan, Michael T.; Martinko, John M.; Bender, Kelly S.; Buckley, Daniel H.; Stahl, David A. (2015). Brock Biology of Microorganisms (14. Aufl.). Boston: Pearson Education. S. 29, 374, 381. ISBN 978-1-292-01831-7Die
- ^ a b c Madigan, Michael T.; Aiyer, Jennifer; Buckley, Daniel H.; Sattley, Matthew; Stahl, David A. (2022). Brock Biology of Microorganisms (16. Aufl.). Harlow: Pearson Education. S. Einheit 3, Kapitel 13: 431 (LUCA), 435 (Baum des Lebens), 428, 438, 439 (Viren). ISBN 978-1-292-40479-0Die
- ^ Sapp 2009 , S. 255.
- ^ a b Brown, JR; Doolittle, WF (1995). „Root of the Universal Tree of Life Based on Ancient Aminoacyl-tRNA Synthetase Gene Duplications“ . PNAS . 92 ( 7): 2441–2445 . Bibcode : 1995PNAS...92.2441B . doi : 10.1073/pnas.92.7.2441 . PMC 42233. PMID 7708661 .
- ^ Harold, Franklin M. (2014). Auf der Suche nach der Zellgeschichte: Die Evolution der Bausteine des Lebens . Chicago, London: University of Chicago Press. ISBN 978-0-226-17428-0Archiviert vom Original am 31. Oktober 2023. Abgerufen am 12. Oktober 2023 .
- Valas , RE; Bourne, PE (2011). „Der Ursprung eines abgeleiteten Superreichs: Wie ein grampositives Bakterium die Wüste durchquerte und zu einem Archaeon wurde“ . Biology Direct . 6 : 16. doi : 10.1186/1745-6150-6-16 . PMC 3056875. PMID 21356104 .
- ^ Cavalier-Smith, Tom (2006). „Die Wurzelung des Baumes des Lebens durch Übergangsanalysen“ . Biology Direct . 1 : 19. doi : 10.1186/1745-6150-1-19 . PMC 1586193. PMID 16834776 .
- Raymann , Kasie; Brochier-Armanet, Céline; Gribaldo, Simonetta (26. Mai 2015). „Der Zwei-Domänen-Baum des Lebens ist mit einer neuen Wurzel für die Archaeen verknüpft“ . Proceedings of the National Academy of Sciences . 112 (21): 6670–6675 . Bibcode : 2015PNAS..112.6670R . doi : 10.1073/pnas.1420858112 . ISSN 0027-8424 . PMC 4450401. PMID 25964353 .
- ^ Hug, Laura A.; Baker, Brett J.; Anantharaman, Karthik; et al. (11. April 2016). „ Eine neue Sicht auf den Baum des Lebens“ . Nature Microbiology . 1 (5): 16048. doi : 10.1038/nmicrobiol.2016.48 . ISSN 2058-5276 . PMID 27572647. S2CID 3833474 .
- ^ Williams, Tom A.; Foster, Peter G.; Cox, Cymon J.; Embley, T. Martin (11. Dezember 2013). „ Ein archaischer Ursprung der Eukaryoten stützt nur zwei primäre Domänen des Lebens“ . Nature . 504 (7479): 231–236 . Bibcode : 2013Natur.504..231W . doi : 10.1038/nature12779 . ISSN 1476-4687 . PMID 24336283. S2CID 4461775. Archiviert vom Original am 1. Oktober 2022. Abgerufen am 23. September 2022 .
- ^ a b c Harris, Hugh MB; Hill, Colin (2021). „Ein Platz für Viren im Baum des Lebens“ . Frontiers in Microbiology . 11 604048. doi : 10.3389/fmicb.2020.604048 . PMC 7840587. PMID 33519747 .
- ^ Kandler, Otto (1994). „Die frühe Diversifizierung des Lebens“. In: Stefan Bengtson (Hrsg.). Frühes Leben auf der Erde. Nobel-Symposium 84. New York: Columbia University Press. S. 152–160 .
- ^ Kandler, Otto (1995). „Zellwandbiochemie bei Archaeen und ihre phylogenetischen Implikationen“. Journal of Biological Physics . 20 ( 1–4 ): 165–169 . doi : 10.1007/BF00700433 . S2CID 83906865 .
- ^ Kandler, Otto (1998). „Die frühe Diversifizierung des Lebens und der Ursprung der drei Domänen: Ein Vorschlag“ . In: Wiegel, Jürgen; Adams, Michael W. W. (Hrsg.). Thermophile: Die Schlüssel zur molekularen Evolution und zum Ursprung des Lebens? London: Taylor & Francis. S. 19–31 . ISBN 978-0-203-48420-3Archiviert vom Original am 25. Februar 2023. Abgerufen am 21. Juni 2023 .
- ^ Wächtershäuser, Günter (2003). „Von Präzellen zu Eukaryoten – eine Geschichte zweier Lipide“ . Molecular Microbiology . 47 (1): 13–22 . doi : 10.1046/j.1365-2958.2003.03267.x . PMID 12492850. S2CID 37944519 .
- ^ Wächtershäuser, Günter (Oktober 2006). „Von vulkanischen Ursprüngen chemoautotrophen Lebens zu Bakterien, Archaeen und Eukaryoten“ . Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 361 (1474): 1787–1808 . doi : 10.1098 / rstb.2006.1904 . PMC 1664677. PMID 17008219 .
- ^ a b Egel, Richard (März 2012). „Primale Eukaryogenese: Über den gemeinschaftlichen Charakter präzellulärer Zustände, die dem modernen Leben vorausgingen“ . Life . 2 ( 1): 170–212 . Bibcode : 2012Life....2..170E . doi : 10.3390/life2010170 . PMC 4187143. PMID 25382122 .
- ^ Glansdorff, Nicolas; Xu, Ying; Labedan, Bernard (9. Juli 2008). „Der letzte universelle gemeinsame Vorfahre: Entstehung, Konstitution und genetisches Erbe eines schwer fassbaren Vorläufers“ . Biology Direct . 3 (1): 29. Bibcode : 2008BiDir...3...29G . doi : 10.1186 / 1745-6150-3-29 . PMC 2478661. PMID 18613974. S2CID 18250196 .
- ^ Steel, M.; Penny, D. (Mai 2010). „Ursprung des Lebens: Gemeinsame Abstammung auf dem Prüfstand“ . Nature . 465 (7295): 168–169 . Bibcode : 2010Natur.465..168S . doi : 10.1038 / 465168a . PMID 20463725. S2CID 205055573 .
- ^ Theobald, DL (Mai 2010) . „Ein formaler Test der Theorie der universellen gemeinsamen Abstammung“. Nature . 465 (7295): 219–222 . Bibcode : 2010Natur.465..219T . doi : 10.1038/nature09014 . PMID 20463738. S2CID 4422345 .
- ^ Prosdocimi, Francisco; José, Marco V.; de Farias, Sávio Torres (2019). „Der erste universelle gemeinsame Vorfahre (FUCA) als frühester Vorfahre der Linie des letzten gemeinsamen Vorfahren des letzten gemeinsamen Vorfahren (LUCA) .“ In: Pontarotti, Pierre (Hrsg.). Evolution, Ursprung des Lebens, Konzepte und Methoden . Cham: Springer. S. 43–54 . doi : 10.1007/978-3-030-30363-1_3 . ISBN 978-3-030-30363-1S2CID 199534387. Abgerufen am 2. November 2023 .
- ^ Prosdocimi, Francisco; José, Marco V.; de Farias, Sávio Torres (2019), „Der erste universelle gemeinsame Vorfahre (FUCA) als frühester Vorfahre der Linie des letzten universellen gemeinsamen Vorfahren (LUCA)“, in Pontarotti, Pierre (Hrsg.), Evolution, Ursprung des Lebens, Konzepte und Methoden , Cham: Springer, S. 43–54 , doi : 10.1007/978-3-030-30363-1_3 , ISBN 978-3-030-30363-1, S2CID 199534387
- ^ Forterre, Patrick (2006). „Der Ursprung der Viren“ . Research in Microbiology . 157 (4): 337–347 . doi : 10.1016/j.virusres.2006.01.010 . PMID 16476498 .
- ^ a b Krupovic, M.; Dolja, VV; Koonin, Eugene V. (2020). „The LUCA and its complex virome“ ( PDF) . Nature Reviews Microbiology . 18 ( 11): 661–670 . doi : 10.1038/s41579-020-0408-x . PMID 32665595. S2CID 220516514. Archiviert (PDF) vom Original am 21. Oktober 2022. Abgerufen am 15. August 2021 .
- ^ Forterre, Patrick; Prangishvili, David (2009). „Der Ursprung von Viren“. Research in Microbiology . 160 (7): 466–472 . doi : 10.1016 / j.resmic.2009.07.008 . PMID 19647075. S2CID 2767388 .
- ^ Durzyńska, Julia; Goździcka-Józefiak, Anna (16. Oktober 2015). „Viren und Zellen sind seit Anbeginn der Evolution miteinander verflochten“ . Virologie-Journal . 12 (1): 169. doi : 10.1186/s12985-015-0400-7 . PMC 4609113 . PMID 26475454 .
- ^ Nasir, Arschan; Kim, Kyung Mo; Caetano-Anollés, Gustavo (1. September 2012). „Virale Evolution“ . Mobile genetische Elemente . 2 (5): 247–252 . doi : 10.4161/mge.22797 . PMC 3575434 . PMID 23550145 .
- ^ Forterre, Patrick (19. August 2024). „Der letzte gemeinsame Vorfahre ribosomenkodierender Organismen: Porträt von LUCA“ . Journal of Molecular Evolution . 92 (5): 550–583 . Bibcode : 2024JMolE..92..550F . doi : 10.1007/s00239-024-10186-9 . ISSN 0022-2844 . PMID 39158619 .
Weiterführende Literatur
- Lane, Nick (2016) [2015]. Die entscheidende Frage . London: Profile Books . ISBN 978-1-78125-037-2Die