
In der Molekularbiologie bezeichnet die Doppelhelix [ 1 ] die Struktur doppelsträngiger Nukleinsäuremoleküle wie der DNA . Die Doppelhelixstruktur eines Nukleinsäurekomplexes entsteht durch seine Sekundärstruktur und ist ein grundlegender Bestandteil bei der Bestimmung seiner Tertiärstruktur .
Die DAN-Doppelhelix, ein Biopolymer aus Nukleinsäuren, wird durch Basenpaare zwischen Nukleotiden zusammengehalten . [ 2 ] In der B-DNA, der häufigsten Doppelhelixstruktur in der Natur, ist die Doppelhelix rechtsgängig und weist etwa 10–10,5 Basenpaare pro Windung auf. [ 3 ] Die Doppelhelixstruktur der DNA besitzt eine große und eine kleine Furche . In der B-DNA ist die große Furche breiter als die kleine. [ 2 ] Aufgrund dieses Unterschieds in der Breite der großen und kleinen Furche binden viele Proteine an die B-DNA über die breitere große Furche. [ 4 ]
Die Doppelhelixstruktur der DNA wurde erstmals von James Watson und Francis Crick vorgeschlagen , basierend auf den Arbeiten von Rosalind Franklin , Raymond Gosling , Maurice Wilkins und anderen. [ 5 ] Der Begriff „Doppelhelix“ hielt mit der Veröffentlichung von Watsons Buch „Die Doppelhelix: Ein persönlicher Bericht über die Entdeckung der Struktur der DNA“ im Jahr 1968 Einzug in die Populärkultur .
Geschichte
Das Doppelhelix-Modell der DNA- Struktur wurde 1953 von James Watson und Francis Crick in der Fachzeitschrift Nature veröffentlicht [ 6 ] (X,Y,Z-Koordinaten folgten 1954 [ 7 ] ). Es basierte auf den Arbeiten von Rosalind Franklin und ihrem Schüler Raymond Gosling , die die entscheidende Röntgenbeugungsaufnahme der DNA mit der Bezeichnung „ Foto 51 “ anfertigten [8, 9 ] , sowie auf den Beiträgen von Maurice Wilkins, Alexander Stokes und Herbert Wilson [10] und den chemischen und biochemischen Informationen zur Basenpaarung von Erwin Chargaff [11–16 ] . Zuvor hatten Linus Pauling – der die Konformation von Sekundärstrukturmotiven von Proteinen bereits präzise charakterisiert hatte – und sein Mitarbeiter Robert Corey fälschlicherweise angenommen , dass die DNA eine dreisträngige Konformation einnimmt [ 17 ] .
Die Erkenntnis, dass die DNA eine Doppelhelixstruktur besitzt, klärte den Mechanismus der Basenpaarung auf , durch den genetische Informationen in lebenden Organismen gespeichert und kopiert werden, und gilt weithin als eine der wichtigsten wissenschaftlichen Entdeckungen des 20. Jahrhunderts. Crick, Wilkins und Watson erhielten jeweils ein Drittel des Nobelpreises für Physiologie oder Medizin von 1962 für ihre Beiträge zu dieser Entdeckung. [ 18 ]
Nukleinsäurehybridisierung
Hybridisierung ist der Prozess, bei dem sich komplementäre Basenpaare zu einer Doppelhelix verbinden. Das Aufschmelzen ist der Prozess, bei dem die Wechselwirkungen zwischen den Strängen der Doppelhelix gelöst werden und sich die beiden Nukleinsäurestränge trennen. Diese Bindungen sind schwach und lassen sich leicht durch leichtes Erhitzen, Enzyme oder mechanische Einwirkung lösen. Das Aufschmelzen erfolgt bevorzugt an bestimmten Stellen der Nukleinsäure. [ 19 ] T- und A- reiche Bereiche schmelzen leichter als C- und G- reiche Bereiche. Einige Basenpaare, wie z. B. TA und TG , sind ebenfalls anfällig für das Aufschmelzen der DNA. [ 20 ] Diese mechanischen Eigenschaften spiegeln sich in der Verwendung von Sequenzen wie TATA am Anfang vieler Gene wider, die die RNA-Polymerase beim Aufschmelzen der DNA für die Transkription unterstützen. [ 21 ]
Die Strangtrennung durch schonendes Erhitzen, wie sie in der Polymerase-Kettenreaktion (PCR) angewendet wird, ist einfach, sofern die Moleküle weniger als etwa 10.000 Basenpaare (10 Kilobasenpaare oder 10 kbp) aufweisen. Die Verdrillung der DNA-Stränge erschwert die Trennung langer Abschnitte. [ 22 ] Die Zelle umgeht dieses Problem, indem sie ihren DNA-schmelzenden Enzymen ( Helikasen ) ermöglicht, gleichzeitig mit Topoisomerasen zu arbeiten . Diese können das Phosphatrückgrat eines der Stränge chemisch spalten, sodass dieser sich um den anderen drehen kann. [ 23 ] Helikasen entwinden die Stränge, um das Vorrücken von sequenzlesenden Enzymen wie der DNA-Polymerase zu erleichtern . [ 24 ]
Basenpaargeometrie

Die Geometrie einer Base oder eines Basenpaar-Schritts lässt sich durch sechs Koordinaten charakterisieren: Verschiebung, Gleiten, Anheben, Neigen, Rollen und Verdrehen. Diese Werte definieren präzise die Position und Orientierung jeder Base oder jedes Basenpaars in einem Nukleinsäuremolekül relativ zu seiner Vorgängerbase entlang der Helixachse. Zusammen charakterisieren sie die Helixstruktur des Moleküls. In Bereichen der DNA oder RNA, in denen die normale Struktur gestört ist, kann die Veränderung dieser Werte zur Beschreibung dieser Störung herangezogen werden.
Für jedes Basenpaar, das im Verhältnis zu seinem Vorgänger betrachtet wird, sind die folgenden Basenpaargeometrien zu berücksichtigen: [ 25 ] [ 26 ] [ 27 ]
- Scheren
- Strecken
- Staffeln
- Schnalle
- Propeller : Drehung einer Basis relativ zur anderen innerhalb desselben Basispaares.
- Öffnung
- Verschiebung : Verschiebung entlang einer Achse in der Basenpaarebene senkrecht zur ersten, gerichtet von der kleinen zur großen Rille.
- Gleiten : Verschiebung entlang einer Achse in der Ebene des Basenpaares, gerichtet von einem Strang zum anderen.
- Anstieg : Verschiebung entlang der Helixachse.
- Neigung : Drehung um die Verschiebungsachse.
- Rollen : Drehung um die Gleitachse.
- Drehung : Rotation um die Aufstiegsachse.
- X-Verschiebung
- Y-Verschiebung
- Neigung
- Tipp
- Steigung : die Höhe pro vollständiger Windung der Helix.
Steigung und Drehung bestimmen die Chiralität und Steigung der Helix. Die anderen Koordinaten können hingegen null sein. Gleiten und Verschieben sind in der B-DNA typischerweise gering, in der A- und Z-DNA jedoch erheblich. Rollen und Neigen führen zu einer weniger parallelen Anordnung aufeinanderfolgender Basenpaare und sind typischerweise gering.
Der Begriff „Neigung“ wurde in der wissenschaftlichen Literatur oft unterschiedlich verwendet und bezeichnet die Abweichung der ersten Achse zwischen den Basenpaaren eines Strangs von der Senkrechten zur Helixachse. Dies entspricht einer Verschiebung zwischen aufeinanderfolgenden Basenpaaren und wird in Helix-basierten Koordinaten korrekterweise als „Neigung“ bezeichnet.
Helixgeometrien
Man geht davon aus, dass in der Natur mindestens drei DNA-Konformationen vorkommen: A-DNA , B-DNA und Z-DNA . Die von James Watson und Francis Crick beschriebene B- Form ist vermutlich in Zellen vorherrschend. [ 28 ] Sie ist 23,7 Å breit und erstreckt sich 34 Å pro 10 Basenpaare Sequenz. Die Doppelhelix weist eine Rechtsdrehung auf, die in Lösung alle 10,4–10,5 Basenpaare eine vollständige Umdrehung um die eigene Achse ausführt. Diese Drehfrequenz (die sogenannte Steigung der Helix ) hängt maßgeblich von den Stapelkräften ab, die jede Base auf ihre Nachbarn in der Kette ausübt.
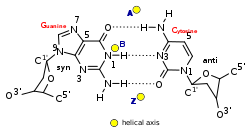
A-DNA und Z-DNA unterscheiden sich in ihrer Geometrie und ihren Dimensionen deutlich von B-DNA, bilden aber dennoch Helixstrukturen. Lange Zeit ging man davon aus, dass die A-Form nur in dehydrierten DNA-Proben im Labor, wie sie beispielsweise in kristallographischen Experimenten verwendet werden, und in Hybridpaarungen von DNA- und RNA- Strängen vorkommt. DNA-Dehydratation findet jedoch auch in vivo statt , und es ist mittlerweile bekannt, dass A-DNA biologische Funktionen besitzt . DNA-Abschnitte, die Zellen zu regulatorischen Zwecken methyliert haben , können die Z-Geometrie annehmen, in der sich die Stränge um die Helixachse in die entgegengesetzte Richtung zu A-DNA und B-DNA drehen. Es gibt auch Hinweise darauf, dass Protein-DNA-Komplexe Z-DNA-Strukturen bilden.
Weitere Konformationen sind möglich; bisher wurden A-DNA, B-DNA, C-DNA , E-DNA, [ 29 ] L -DNA (das Enantiomer der D- DNA), [ 30 ] P-DNA, [ 31 ] S-DNA, Z-DNA usw. beschrieben. [ 32 ] Tatsächlich stehen derzeit nur die Buchstaben F, Q, U, V und Y zur Verfügung, um zukünftig auftretende neue DNA-Strukturen zu beschreiben. [ 33 ] [ 34 ] Die meisten dieser Formen wurden jedoch synthetisch hergestellt und sind in natürlich vorkommenden biologischen Systemen nicht beobachtet worden. Es existieren außerdem dreisträngige DNA- Formen und Quadruplex-Formen wie der G-Quadruplex und das i-Motiv .

| Geometrieattribut | A-DNA | B-DNA | Z-DNA |
|---|---|---|---|
| Helix-Sinn | rechtshändig | rechtshändig | Linkshänder |
| Wiederholungseinheit | 1 bp | 1 bp | 2 bp |
| Rotation/bp | 32,7° | 34,3° | 60°/2 |
| bp/Turn | 11 | 10,5 | 12 |
| Neigung des Blutdrucks zur Achse | +19° | −1,2° | −9° |
| Anstieg/Blutdruck entlang der Achse | 2,3 Å (0,23 nm ) | 3,32 Å (0,332 nm) | 3,8 Å (0,38 nm) |
| Steigung/Windungszahl der Helix | 28,2 Å (2,82 nm) | 33,2 Å (3,32 nm) | 45,6 Å (4,56 nm) |
| Mittlere Propellerdrehung | +18° | +16° | 0° |
| Glycosylwinkel | Anti | Anti | C: anti, G: syn |
| Zuckerkräuselung | C3'-endo | C2'-endo | C: C2'-endo, G: C2'-exo |
| Durchmesser | 23 Å (2,3 nm) | 20 Å (2,0 nm) | 18 Å (1,8 nm) |
Rillen

Zwei helikale Stränge bilden das DNA-Rückgrat. Eine weitere Doppelhelix kann durch die Zwischenräume, die sogenannten Furchen, zwischen den Strängen gefunden werden. Diese Hohlräume liegen neben den Basenpaaren und können Bindungsstellen bilden . [ 38 ] Da die Stränge nicht direkt gegenüberliegen, sind die Furchen unterschiedlich breit. Die eine Furche, die große Furche, ist 22 Å breit, die andere, die kleine Furche, 12 Å. [ 39 ] Die geringere Breite der kleinen Furche bedeutet, dass die Basenränder in der großen Furche besser zugänglich sind. Daher interagieren Proteine wie Transkriptionsfaktoren , die an spezifische Sequenzen in doppelsträngiger DNA binden können, üblicherweise mit den in der großen Furche exponierten Basenrändern. [ 4 ] Diese Situation kann in ungewöhnlichen DNA-Konformationen innerhalb der Zelle variieren (siehe unten) , aber die große und die kleine Furche werden stets so benannt, dass sie die Größenunterschiede widerspiegeln, die sichtbar wären, wenn die DNA in die normale B-Form zurückgedreht würde. [ 40 ]
Nicht-Doppelhelixformen
Alternative , nicht-helikale Modelle wurden Ende der 1970er Jahre kurzzeitig als mögliche Lösung für Probleme der DNA-Replikation in Plasmiden und Chromatin in Betracht gezogen. Aufgrund nachfolgender experimenteller Fortschritte, wie der Röntgenkristallographie von DNA-Doppelsträngen und später des Nukleosomenkernpartikels sowie der Entdeckung von Topoisomerasen , wurden diese Modelle jedoch zugunsten des Doppelhelixmodells verworfen. Auch heute noch werden die nicht-doppelhelikalen Modelle von der wissenschaftlichen Gemeinschaft nicht mehr akzeptiert. [ 41 ] [ 42 ]
Biegung
DNA ist ein relativ starres Polymer, das typischerweise als wurmartige Kette modelliert wird . Sie besitzt drei wesentliche Freiheitsgrade: Biegung, Torsion und Kompression. Jeder dieser Freiheitsgrade setzt der DNA innerhalb einer Zelle gewisse Grenzen. Die Torsionssteifigkeit ist wichtig für die Zirkularisierung der DNA und die Orientierung der an DNA gebundenen Proteine zueinander. Die Biegesteifigkeit ist wichtig für die DNA-Aufwicklung, die Zirkularisierung und Proteininteraktionen. Die Kompressions- und Dehnungssteifigkeit ist bei fehlender hoher Spannung relativ unbedeutend.
Nachgiebigkeitslänge, axiale Steifigkeit
| Sequenz | Persistenzlänge / Basenpaare |
|---|---|
| Zufällig | 154±10 |
| ( CA ) Wiederholung | 133±10 |
| ( CAG ) Wiederholung | 124±10 |
| ( TATA ) wiederholen | 137±10 |
DNA in Lösung nimmt keine starre Struktur an, sondern ändert ihre Konformation ständig aufgrund thermischer Schwingungen und Kollisionen mit Wassermolekülen, wodurch klassische Steifigkeitsmaße nicht anwendbar sind. Daher wird die Biegesteifigkeit der DNA durch die Persistenzlänge gemessen, die wie folgt definiert ist:
Die Biegeflexibilität eines Polymers wird üblicherweise anhand seiner Persistenzlänge Lp quantifiziert, einer Längenskala, unterhalb derer sich das Polymer mehr oder weniger wie ein starrer Stab verhält. Genauer gesagt ist Lp definiert als die Länge des Polymersegments, über das die zeitlich gemittelte Orientierung des Polymers unkorreliert wird... [ 43 ]
Dieser Wert kann direkt mithilfe eines Rasterkraftmikroskops gemessen werden , um DNA-Moleküle unterschiedlicher Länge abzubilden. In wässriger Lösung wurde eine mittlere Persistenzlänge von etwa 50 nm (bzw. 150 Basenpaaren) ermittelt. [ 44 ] Allgemeiner wurde ein Wert zwischen 45 und 60 nm [ 45 ] bzw. 132–176 Basenpaaren (der Durchmesser der DNA beträgt 2 nm) beobachtet. [ 46 ] Dieser Wert kann aufgrund von Schwankungen der Temperatur, der Bedingungen in der wässrigen Lösung und der DNA-Länge erheblich variieren. [ 45 ] Dies macht DNA zu einem mäßig steifen Molekül. [ 44 ]
Die Persistenzlänge eines DNA-Abschnitts hängt unter anderem von seiner Sequenz ab, was zu erheblichen Unterschieden führen kann. Diese Unterschiede sind hauptsächlich auf die Basenstapelungsenergien und die in die kleine und große Furche hineinragenden Aminosäurereste zurückzuführen .
Modelle für die DNA-Krümmung
| Schritt | Stapelung ΔG /kcal mol −1 |
|---|---|
| TA | -0,19 |
| TG oder CA | -0,55 |
| CG | -0,91 |
| AG oder CT | -1,06 |
| AA oder TT | -1,11 |
| BEI | -1,34 |
| GA oder TC | -1,43 |
| CC oder GG | -1,44 |
| Klimaanlage oder GT | -1,81 |
| GC | -2,17 |
Bei Längenskalen oberhalb der Persistenzlänge stimmt die entropische Flexibilität der DNA bemerkenswert gut mit Standardmodellen der Polymerphysik überein , wie beispielsweise dem Kratky-Porod- Modell der wurmartigen Kette . [ 48 ] Im Einklang mit diesem Modell steht die Beobachtung, dass die Biegung von DNA bei sehr kleinen Kräften (im Sub- Pikonewton- Bereich) ebenfalls durch das Hookesche Gesetz beschrieben wird . Für DNA-Segmente unterhalb der Persistenzlänge ist die Biegekraft annähernd konstant, und das Verhalten weicht von den Vorhersagen des wurmartigen Kettenmodells ab.
Dieser Effekt führt zu einer ungewöhnlichen Leichtigkeit bei der Zirkularisierung kleiner DNA-Moleküle und einer höheren Wahrscheinlichkeit, stark gekrümmte DNA-Abschnitte zu finden. [ 49 ]
Biegepräferenz
DNA-Moleküle weisen oft eine bevorzugte Krümmungsrichtung auf, d. h. anisotrope Krümmung. Dies ist wiederum auf die Eigenschaften der Basen zurückzuführen, aus denen die DNA-Sequenz besteht – eine zufällige Sequenz weist keine bevorzugte Krümmungsrichtung auf, d. h. isotrope Krümmung.
Die bevorzugte Krümmungsrichtung der DNA wird durch die Stabilität der Basenpaarung bestimmt. Sind instabile Basenpaarungen stets auf einer Seite der DNA-Helix zu finden, biegt sich die DNA bevorzugt von dieser Richtung weg. Mit zunehmendem Krümmungswinkel spielen sterische Hinderungen und die Fähigkeit der Basen, sich relativ zueinander zu drehen, eine Rolle, insbesondere in der kleinen Furche. Adenin- ( A) und Thyminreste (T) befinden sich bevorzugt in den kleinen Furchen auf der Innenseite der Krümmungen. Dieser Effekt ist besonders bei der DNA-Protein-Bindung zu beobachten, wo eine starke DNA-Krümmung induziert wird, wie beispielsweise in Nukleosomen . Siehe dazu die oben beschriebenen Basenpaarverzerrungen.
DNA-Moleküle mit außergewöhnlicher Biegungsneigung können intrinsisch gekrümmt werden. Dies wurde erstmals in der Kinetoplasten- DNA von Trypanosomatiden beobachtet . Typische Sequenzen, die dies verursachen, enthalten Abschnitte von 4–6 T- und A- Resten, die durch G- und C- reiche Abschnitte getrennt sind. Diese Abschnitte halten die A- und T-Reste auf einer Seite des Moleküls in Phase mit der kleinen Furche. Zum Beispiel:
| ¦ | ¦ | ¦ | ¦ | ¦ | ¦ | |||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| G | A | T | T | C | C | C | A | A | A | A | A | T | G | T | C | A | A | A | A | A | A | T | A | G | G | C | A | A | A | A | A | A | T | G | C | C | A | A | A | A | A | A | T | C | C | C | A | A | A | C |
Die intrinsische Krümmung der Struktur entsteht durch die „Propellerdrehung“ der Basenpaare zueinander, die ungewöhnliche, verzweigte Wasserstoffbrückenbindungen zwischen den Basenpaaren ermöglicht. Bei höheren Temperaturen denaturiert diese Struktur, wodurch die intrinsische Krümmung verloren geht.
Alle DNA-Moleküle, die sich anisotrop biegen, weisen im Durchschnitt eine größere Persistenzlänge und eine höhere axiale Steifigkeit auf. Diese erhöhte Steifigkeit ist erforderlich, um ein zufälliges Biegen zu verhindern, das zu einem isotropen Verhalten des Moleküls führen würde.
Kreislaufwirtschaft
Die Zirkularisierung von DNA hängt sowohl von der axialen (Biege-) als auch von der Torsionssteifigkeit (Rotationssteifigkeit) des Moleküls ab. Für eine erfolgreiche Zirkularisierung muss ein DNA-Molekül lang genug sein, um sich leicht zu einem vollständigen Kreis biegen zu lassen, und die richtige Anzahl an Basen aufweisen, damit die Enden in der korrekten Rotation stehen und Bindungen möglich sind. Die optimale Länge für die Zirkularisierung von DNA liegt bei etwa 400 Basenpaaren (136 nm) mit einer ganzzahligen Anzahl von Windungen der DNA-Helix, d. h. einem Vielfachen von 10⁴ Basenpaaren. Eine nicht-ganzzahlige Anzahl von Windungen stellt eine erhebliche Energiebarriere für die Zirkularisierung dar; beispielsweise zirkularisiert ein Molekül mit 10⁴ × 30 = 312 Basenpaaren um Hunderte Male schneller als ein Molekül mit 10⁴ × 30,5 ≈ 317 Basenpaaren. [ 50 ]
Die Biegung kurzer, zirkularisierter DNA-Abschnitte ist ungleichmäßig. Bei zirkularisierten DNA-Abschnitten, die kürzer als die Persistenzlänge sind, beschränkt sich die DNA-Biegung vielmehr auf 1–2 Knicke, die bevorzugt in AT-reichen Abschnitten auftreten. Ist ein Einzelstrangbruch vorhanden, ist die Biegung auf die Bruchstelle beschränkt. [ 49 ]
Dehnen
elastischer Dehnungsbereich
Längere DNA- Abschnitte verhalten sich unter Spannung entropisch elastisch. In Lösung unterliegt DNA aufgrund der im Lösungsmittelbad verfügbaren Energie kontinuierlichen Strukturveränderungen . Diese beruhen auf der thermischen Schwingung des Moleküls in Kombination mit ständigen Kollisionen mit Wassermolekülen. Aus entropischen Gründen sind kompaktere, entspannte Zustände thermisch leichter zugänglich als gestreckte Zustände, weshalb DNA-Moleküle fast immer in einer verknäuelten, entspannten Struktur vorliegen. Daher dehnt sich ein DNA-Molekül unter Krafteinwirkung und streckt sich. Mithilfe optischer Pinzetten wurde das entropische Dehnungsverhalten von DNA aus polymerphysikalischer Sicht untersucht und analysiert. Dabei zeigte sich, dass sich DNA im physiologisch zugänglichen Energiebereich weitgehend wie das Kratky-Porod -Modell einer wurmartigen Kette verhält.
Phasenübergänge unter Dehnung
Unter ausreichender Spannung und positivem Drehmoment durchläuft die DNA vermutlich einen Phasenübergang, bei dem sich die Basen nach außen spreizen und die Phosphate in die Mitte wandern. Diese vorgeschlagene Struktur für überdehnte DNA wird zu Ehren von Linus Pauling , der sie ursprünglich als mögliche Struktur der DNA vorstellte, als P-Form-DNA bezeichnet . [ 31 ]
Evidence from mechanical stretching of DNA in the absence of imposed torque points to a transition or transitions leading to further structures which are generally referred to as S-form DNA. These structures have not yet been definitively characterised due to the difficulty of carrying out atomic-resolution imaging in solution while under applied force although many computer simulation studies have been made (for example,[51][52]).
Proposed S-DNA structures include those which preserve base-pair stacking and hydrogen bonding (GC-rich), while releasing extension by tilting, as well as structures in which partial melting of the base-stack takes place, while base-base association is nonetheless overall preserved (AT-rich).
Periodic fracture of the base-pair stack with a break occurring once per three bp (therefore one out of every three bp-bp steps) has been proposed as a regular structure which preserves planarity of the base-stacking and releases the appropriate amount of extension,[53] with the term "Σ-DNA" introduced as a mnemonic, with the three right-facing points of the Sigma character serving as a reminder of the three grouped base pairs. The Σ form has been shown to have a sequence preference for GNC motifs which are believed under the GNC hypothesis to be of evolutionary importance.[54]
Supercoiling and topology

The B form of the DNA helix twists 360° per 10.4-10.5 bp in the absence of torsional strain. But many molecular biological processes can induce torsional strain. A DNA segment with excess or insufficient helical twisting is referred to, respectively, as positively or negatively supercoiled. DNA in vivo is typically negatively supercoiled, which facilitates the unwinding (melting) of the double-helix required for RNA transcription.
Within the cell most DNA is topologically restricted. DNA is typically found in closed loops (such as plasmids in prokaryotes) which are topologically closed, or as very long molecules whose diffusion coefficients produce effectively topologically closed domains. Linear sections of DNA are also commonly bound to proteins or physical structures (such as membranes) to form closed topological loops.
Francis Crick was one of the first to propose the importance of linking numbers when considering DNA supercoils. In a paper published in 1976, Crick outlined the problem as follows:
Zur Betrachtung von Superhelixstrukturen geschlossener doppelsträngiger DNA-Moleküle sind bestimmte mathematische Konzepte wie die Verschlingungszahl und die Verdrillung erforderlich. Deren Bedeutung für ein geschlossenes Band wird erläutert, ebenso die der Verdrillungszahl einer geschlossenen Kurve. Es werden einige einfache Beispiele angeführt, von denen einige für die Struktur des Chromatins relevant sein könnten. [ 55 ]
Die Analyse der DNA-Topologie verwendet drei Werte:
- L = Verdrillungszahl – die Anzahl der Umschlingungen eines DNA-Strangs um den anderen. Sie ist eine ganze Zahl für eine geschlossene Schleife und eine Konstante für eine geschlossene topologische Domäne.
- T = Verdrillung – Gesamtzahl der Windungen in der doppelsträngigen DNA-Helix. Dieser Wert nähert sich üblicherweise der Anzahl der Windungen an, die eine topologisch offene doppelsträngige DNA-Helix in Lösung freigibt: Anzahl der Basen/10,5, vorausgesetzt, es sind keine interkalierenden Substanzen (z. B. Ethidiumbromid ) oder andere Elemente vorhanden, die die Steifigkeit der DNA verändern.
- W = Windung – Anzahl der Windungen der doppelsträngigen DNA-Helix um die Superhelixachse
- L = T + W und Δ L = Δ T + Δ W
Jede Änderung der Windungszahl T in einem geschlossenen topologischen Bereich muss durch eine Änderung der Windungszahl W ausgeglichen werden und umgekehrt. Dies führt zu einer höheren Strukturordnung der DNA. Ein ringförmiges DNA-Molekül mit einer Windungszahl von 0 ist ringförmig. Wird die Windungszahl dieses Moleküls anschließend durch Superhelixbildung erhöht oder verringert, ändert sich die Windungszahl entsprechend, wodurch das Molekül eine plectonemische oder toroidale Superhelixbildung durchläuft.
Wenn die Enden eines doppelsträngigen DNA-Moleküls zu einem Ring verbunden werden, entstehen topologisch verknotete Stränge . Das bedeutet, dass die Einzelstränge nur durch einen Strangbruch (z. B. Erhitzen) getrennt werden können. Die Aufgabe, topologisch verknüpfte DNA-Stränge zu entknoten, übernehmen Enzyme, die Topoisomerasen genannt werden . Diese Enzyme sind darauf spezialisiert, ringförmige DNA zu entknoten, indem sie einen oder beide Stränge spalten, sodass ein weiteres doppel- oder einzelsträngiges Segment hindurchtreten kann. Diese Entknotenung ist für die Replikation ringförmiger DNA und verschiedene Arten der Rekombination in linearer DNA, die ähnlichen topologischen Beschränkungen unterliegen, erforderlich.
Das Verknüpfungszahlenparadoxon
Lange Zeit blieb der Ursprung der verbleibenden Superhelixstruktur in eukaryotischen Genomen unklar. Dieses topologische Rätsel wurde von einigen als „Verknüpfungszahlparadoxon“ bezeichnet. [ 56 ] Als jedoch experimentell bestimmte Nukleosomenstrukturen eine übermäßig verdrillte , linkshändige DNA-Schleife um das Histonoktamer zeigten , [ 57 ] [ 58 ] galt dieses Paradoxon in der wissenschaftlichen Gemeinschaft als gelöst .
Siehe auch
- Vergleich von Nukleinsäure-Simulationssoftware
- DNA-Nanotechnologie
- G-Quadruplex
- Molekulare Modelle der DNA
- " Molekulare Struktur von Nukleinsäuren: Eine Struktur für Desoxyribonukleinsäure " (erster Artikel)
- Nicht-B-Datenbank
- Dreisträngige DNA
Referenzen
- ^ Kabai S (2007). "Doppelhelix" . Das Wolfram Demonstrations Project .
- ^ a b Alberts B, Johnson A, Lewis J, Raff M, Roberts K, Walter P (1994). Die Molekularbiologie der Zelle (3. Aufl.). New York: Garland Science. ISBN 978-0-8153-4105-5Die
- ^ Wang JC (Januar 1979). „Helikale Wiederholungen der DNA in Lösung“ . Proceedings of the National Academy of Sciences of the United States of America . 76 (1): 200–203 . Bibcode : 1979PNAS...76..200W . doi : 10.1073 / pnas.76.1.200 . PMC 382905. PMID 284332 .
- ^ a b Pabo CO, Sauer RT (1984). „Protein-DNA recognition“. Annual Review of Biochemistry . 53 (1): 293–321 . Bibcode : 1984ARBio..53..293P . doi : 10.1146/annurev.bi.53.070184.001453 . PMID 6236744 .
- ^ Cobb M, Comfort N (April 2023). „Was Rosalind Franklin wirklich zur Entdeckung der DNA-Struktur beigetragen hat“. Nature . 616 (7958): 657–660 . Bibcode : 2023Natur.616..657C . doi : 10.1038/d41586-023-01313-5 . PMID 37100935 .
- ^ Watson JD, Crick FH (April 1953). „Molekulare Struktur der Nukleinsäuren: Eine Struktur für Desoxyribonukleinsäure“. Nature . 171 (4356): 737–738 . Bibcode : 1953Natur.171..737W . doi : 10.1038 / 171737a0 . PMID 13054692. S2CID 4253007 .
- ^ Crick F, Watson JD (1954). „Die komplementäre Struktur der Desoxyribonukleinsäure“ . Proceedings of the Royal Society of London . 223, Series A (1152): 80–96 . Bibcode : 1954RSPSA.223...80C . doi : 10.1098/rspa.1954.0101 .
- ^ „Due credit“ . Nature . 496 (7445): 270. April 2013. doi : 10.1038/496270a . PMID 23607133 .
- ^ Witkowski J (2019). „Die vergessenen Wissenschaftler, die den Weg zur Doppelhelix ebneten“ . Nature . 568 (7752): 308–309 . Bibcode : 2019Natur.568..308W . doi : 10.1038/d41586-019-01176-9 .
- ^ Wilkins MH, Stokes AR, Wilson HR (April 1953). „Molekulare Struktur von Nukleinsäuren: Molekulare Struktur von Desoxypentose-Nukleinsäuren“. Nature . 171 ( 4356): 738–740 . Bibcode : 1953Natur.171..738W . doi : 10.1038/171738a0 . PMID 13054693. S2CID 4280080 .
- ^ Elson D, Chargaff E (April 1952). „Über den Desoxyribonukleinsäuregehalt von Seeigel-Gameten“. Experientia . 8 ( 4): 143–145 . doi : 10.1007/BF02170221 . PMID 14945441. S2CID 36803326 .
- ^ Chargaff E, Lipshitz R, Green C (März 1952). „Zusammensetzung der Desoxypentose-Nukleinsäuren von vier Seeigelgattungen“ . The Journal of Biological Chemistry . 195 (1): 155–160 . doi : 10.1016/S0021-9258(19)50884-5 . PMID 14938364 .
- ^ Chargaff E, Lipshitz R, Green C, Hodes ME (September 1951). „Die Zusammensetzung der Desoxyribonukleinsäure von Lachsspermien“ . The Journal of Biological Chemistry . 192 (1): 223–230 . doi : 10.1016/S0021-9258(18)55924-X . PMID 14917668 .
- ^ Chargaff E (Juli 1951). „Einige neuere Studien zur Zusammensetzung und Struktur von Nukleinsäuren“. Journal of Cellular and Comparative Physiology . 38 (Suppl 1): 41–59 . doi : 10.1002/jcp.1030380406 . PMID 14861276 .
- ^ Magasanik B, Vischer E, Doniger R, Elson D, Chargaff E (September 1950). „Die Trennung und Bestimmung von Ribonukleotiden in kleinsten Mengen“ . The Journal of Biological Chemistry . 186 (1): 37–50 . doi : 10.1016/S0021-9258(18)56284-0 . PMID 14778802 .
- ^ Chargaff E (Juni 1950). „Chemische Spezifität von Nukleinsäuren und Mechanismus ihres enzymatischen Abbaus“. Experientia . 6 (6): 201–209 . doi : 10.1007/BF02173653 . PMID 15421335. S2CID 2522535 .
- ^ Pauling L, Corey RB (Februar 1953). „Ein vorgeschlagener Strukturvorschlag für die Nukleinsäuren“ . Proceedings of the National Academy of Sciences of the United States of America . 39 (2): 84–97 . Bibcode : 1953PNAS ... 39...84P . doi : 10.1073/pnas.39.2.84 . PMC 1063734. PMID 16578429 .
- ^ "Nobelpreis - Liste aller Nobelpreisträger" .
- ^ Breslauer KJ, Frank R, Blöcker H, Marky LA (Juni 1986). „Vorhersage der DNA-Doppelstrangstabilität anhand der Basensequenz“ . Proceedings of the National Academy of Sciences of the United States of America . 83 (11): 3746–3750 . Bibcode : 1986PNAS...83.3746B . doi : 10.1073/pnas.83.11.3746 . PMC 323600. PMID 3459152 .
- ^ Owczarzy R (28.08.2008). „DNA-Schmelztemperatur – Wie berechnet man sie?“ . High-throughput DNA biophysics . owczarzy.net. Archiviert vom Original am 30.04.2015 . Abgerufen am 02.10.2008 .
- ^ Fukue Y, Sumida N, Tanase Ji, Ohyama T (2005). „Eine hochgradig charakteristische mechanische Eigenschaft, die in der Mehrzahl der menschlichen Promotoren gefunden wurde, und ihre transkriptionelle Relevanz“ . Nucleic Acids Research . 33 (12): 3821–3827 . doi : 10.1093/nar/gki700 . ISSN 1362-4962 . PMC 1175459. PMID 16027106 .
- ^ „Chromosom 16: PV92 PCR-Informatik-Kit“ . Biotechnology Explorer (1. Aufl.). Vereinigte Staaten : Bio-Rad Laboratories. 2016. S. 104.
- ^ „Kapitel 9: DNA-Replikation – Chemie“ . CH450 und CH451: Biochemie – Definition des Lebens auf molekularer Ebene . Western Oregon University . Abgerufen am 10. Juni 2022 .
- ^ Alberts B, Johnson A, Lewis J, Raff M, Roberts K, Walter P (2002). „DNA-Replikationsmechanismen“ . Molekularbiologie der Zelle (4. Aufl.). Garland Science.
- ^ Dickerson RE (März 1989). „Definitionen und Nomenklatur von Nukleinsäurestrukturkomponenten“ . Nucleic Acids Research . 17 (5): 1797–1803 . doi : 10.1093/nar/17.5.1797 . PMC 317523. PMID 2928107 .
- ^ Lu XJ, Olson WK (Januar 1999). „Auflösung der Diskrepanzen zwischen Konformationsanalysen von Nukleinsäuren“. Journal of Molecular Biology . 285 (4): 1563–1575 . doi : 10.1006/jmbi.1998.2390 . PMID 9917397 .
- ^ Olson WK, Bansal M, Burley SK, Dickerson RE, Gerstein M, Harvey SC, et al. (Oktober 2001). „Ein Standardreferenzrahmen zur Beschreibung der Basenpaargeometrie von Nukleinsäuren“. Journal of Molecular Biology . 313 (1): 229–237 . Bibcode : 2001JMBio.313..229O . doi : 10.1006/jmbi.2001.4987 . PMID 11601858 .
- ^ Richmond TJ, Davey CA (Mai 2003) . „Die Struktur der DNA im Nukleosomenkern“. Nature . 423 (6936): 145–150 . Bibcode : 2003Natur.423..145R . doi : 10.1038/nature01595 . PMID 12736678. S2CID 205209705 .
- ^ Vargason JM, Eichman BF, Ho PS (September 2000). „Die durch Cytosinmethylierung oder -bromierung induzierte erweiterte und exzentrische E-DNA-Struktur“. Nature Structural Biology . 7 (9): 758–761 . doi : 10.1038/78985 . PMID 10966645. S2CID 4420623 .
- ^ Hayashi G, Hagihara M, Nakatani K (September 2005). „Anwendung von L-DNA als molekularer Marker“ . Nucleic Acids Symposium Series . 49 (49): 261–262 . doi : 10.1093/nass/49.1.261 . PMID 17150733 .
- Allemand JF, Bensimon D, Lavery R, Croquette V (November 1998). „Gestreckte und überwundene DNA bildet eine Pauling-ähnliche Struktur mit exponierten Basen“ . Proceedings of the National Academy of Sciences of the United States of America . 95 ( 24): 14152–14157 . Bibcode : 1998PNAS...9514152A . doi : 10.1073 / pnas.95.24.14152 . PMC 24342. PMID 9826669 .
- ^ Xiang J. „Liste von 55 Faserstrukturen“ . Fachbereich Chemie und Chemische Biologie . New Brunswick: Rutgers University. Archiviert vom Original am 26.05.2007.
- ^ Bansal M (2003). „DNA-Struktur: Eine Neubetrachtung der Watson-Crick-Doppelhelix“. Current Science . 85 (11): 1556–1563 .
- ^ Ghosh A, Bansal M (April 2003). „Ein Glossar der DNA-Strukturen von A bis Z“. Acta Crystallographica. Section D, Biological Crystallography . 59 (Pt 4): 620–626 . doi : 10.1107/S0907444903003251 . PMID 12657780 .
- ^ Rich A, Nordheim A, Wang AH ( 1984). „Die Chemie und Biologie der linkshändigen Z-DNA“. Annual Review of Biochemistry . 53 (1): 791–846 . Bibcode : 1984ARBio..53..791R . doi : 10.1146/annurev.bi.53.070184.004043 . PMID 6383204 .
- ^ Sinden RR (15.01.1994). DNA-Struktur und -Funktion (1. Aufl.). Academic Press. S. 398. ISBN 0-12-645750-6Die
- Ho PS (September 1994). „Die Nicht-B-DNA-Struktur von d(CA/TG)n unterscheidet sich nicht von der der Z-DNA“ . Proceedings of the National Academy of Sciences of the United States of America . 91 (20): 9549–9553 . Bibcode : 1994PNAS...91.9549H . doi : 10.1073 / pnas.91.20.9549 . PMC 44850. PMID 7937803 .
- ^ „Doppelhelix“ . Genome.gov . Abgerufen am 10. Juni 2022 .
- ^ Wing R, Drew H, Takano T, Broka C, Tanaka S, Itakura K, et al. (Oktober 1980). „Kristallstrukturanalyse einer vollständigen Windung der B-DNA“. Nature . 287 (5784): 755–758 . Bibcode : 1980Natur.287..755W . doi : 10.1038 / 287755a0 . PMID 7432492. S2CID 4315465 .
- ^ Neidle S, Sanderson M (2022). „DNA-Struktur in Fasern und Kristallen*“. Principles of Nucleic Acid Structure . Elsevier. S. 53–108 . doi : 10.1016/B978-0-12-819677-9.00007-X . ISBN 9780128196779S2CID 239504252 .
- ^ Stokes TD (Mai 1982). „Die Doppelhelix und der verzogene Reißverschluss – eine exemplarische Geschichte“. Social Studies of Science . 12 (2): 207–240 . doi : 10.1177/030631282012002002 . PMID 11620855. S2CID 29369576 .
- ^ Gautham N (25. Mai 2004). „Antwort auf ‚Vielfalt in der DNA-Sekundärstruktur‘“(PDF) . Current Science . 86 (10): 1352–1353 . Abgerufen am 25. Mai 2012. Die Entdeckung der Topoisomerasen entkräftete jedoch den topologischen Einwand gegen die plectonämische Doppelhelix. Die kürzlich erfolgte Einkristall -
Röntgenstrukturanalyse des Nukleosomenkernpartikels zeigte fast 150 Basenpaare der DNA (d. h. etwa 15 vollständige Windungen) mit einer Struktur, die in allen wesentlichen Aspekten mit dem Watson-Crick-Modell übereinstimmt. Dies widerlegte die Vorstellung, dass andere DNA-Formen, insbesondere doppelhelikale DNA, nicht als lokale oder transiente Strukturen existieren.
- ^ Drozdetski AV, Mukhopadhyay A, Onufriev AV (November 2019). „Stark gekrümmte doppelsträngige DNA: Theorie und Experiment im Einklang“ . Frontiers in Physics . 7 195. arXiv : 1907.01585 . Bibcode : 2019FrP.....7..195O . doi : 10.3389/fphy.2019.00195 . PMC 7323118. PMID 32601596 .
- ^ a b Manning GS (November 2006). „Die Persistenzlänge der DNA wird durch eine interne elektrostatische Dehnungskraft aus der Persistenzlänge ihres Nullisomers erreicht . “ Biophysical Journal . 91 (10): 3607–3616 . Bibcode : 2006BpJ....91.3607M . doi : 10.1529/biophysj.106.089029 . PMC 1630458. PMID 16935960 .
- ^ a b Mohammed Khalid AA, Parisse P, Medagli B, Onesti S, Casalis L (Februar 2021). „Untersuchung der Wechselwirkungen zwischen der MCM-Helikase und DNA mittels Rasterkraftmikroskopie“ . Materials . 14 (3): 687. Bibcode : 2021Mate...14..687M . doi : 10.3390/ma14030687 . PMC 7867263. PMID 33540751 .
- ^ Maeshima K, Eltsov M (Februar 2008). „Verpackung des Genoms: Die Struktur mitotischer Chromosomen“ . Journal of Biochemistry . 143 (2): 145–153 . doi : 10.1093/jb/ mvm214 . PMC 3943392. PMID 17981824 .
- ^ Protozanova E, Yakovchuk P, Frank-Kamenetskii MD (September 2004). „Gleichgewicht zwischen gestapelten und ungestapelten DNA-Abschnitten“. Journal of Molecular Biology . 342 (3): 775–785 . doi : 10.1016/j.jmb.2004.07.075 . PMID 15342236 .
- ^ Shimada J, Yamakawa H (1984). „Ringschlusswahrscheinlichkeiten für verdrillte wurmartige Ketten. Anwendung auf DNA“. Macromolecules . 17 (4): 4660–4672 . Bibcode : 1984MaMol..17..689S . doi : 10.1021/ma00134a028 .
- ^ a b Harrison RM, Romano F, Ouldridge TE, Louis AA, Doye JP (August 2019). „Identifizierung physikalischer Ursachen der scheinbar verstärkten Zyklisierung kurzer DNA-Moleküle mit einem grobkörnigen Modell“ . Journal of Chemical Theory and Computation . 15 (8): 4660–4672 . Bibcode : 2019JCTC...15.4660H . doi : 10.1021/acs.jctc.9b00112 . PMC 6694408. PMID 31282669 .
- ^ Travers A (Mai 2005). „DNA-Dynamik: Bubble 'n' Flip für die DNA-Zyklisierung?“ Current Biology . 15 (10): R377– R379 . Bibcode : 2005CBio...15.R377T . doi : 10.1016/j.cub.2005.05.007 . PMID 15916938. S2CID 10568179 .
- ^ Konrad MW, Bolonick JW (1996). „Molekulardynamiksimulation der DNA-Streckung stimmt mit der bei Dehnung und Strangtrennung beobachteten Spannung überein und sagt eine neuartige Leiterstruktur voraus“. Journal of the American Chemical Society . 118 (45): 10989–10994 . Bibcode : 1996JAChS.11810989K . doi : 10.1021/ja961751x .
- ^ Roe DR, Chaka AM (November 2009). „Strukturelle Grundlage wegabhängiger Kraftprofile in gestreckter DNA“. The Journal of Physical Chemistry B. 113 ( 46): 15364–15371 . Bibcode : 2009JPCB..11315364R . doi : 10.1021/jp906749j . PMID 19845321 .
- ^ Bosaeus N, Reymer A, Beke-Somfai T, Brown T, Takahashi M, Wittung-Stafshede P, et al. (Januar 2017). „Eine gestreckte DNA-Konformation mit einer biologischen Rolle?“ . Quarterly Reviews of Biophysics . 50 e11. doi : 10.1017/S0033583517000099 . PMID 29233223 .
- Taghavi A, van der Schoot P, Berryman JT (Januar 2017). „DNA partitioniert sich unter Spannung in Gegenwart organischer Kationen in Tripletts, wobei das evolutionäre Alter der Sequenz die Stabilität der Triplettphase vorhersagt“ . Quarterly Reviews of Biophysics . 50 e15. doi : 10.1017/S0033583517000130 . PMID 29233227 .
- ^ Crick FH (August 1976). „Linking numbers and nucleosomes“ . Proceedings of the National Academy of Sciences of the United States of America . 73 (8): 2639–2643 . Bibcode : 1976PNAS...73.2639C . doi : 10.1073 / pnas.73.8.2639 . PMC 430703. PMID 1066673 .
- Prunell A (Mai 1998). „Ein topologischer Ansatz zur Nukleosomenstruktur und -dynamik: Das Verknüpfungszahlparadoxon und andere Probleme“ . Biophysical Journal . 74 (5): 2531–2544 . Bibcode : 1998BpJ....74.2531P . doi : 10.1016 / S0006-3495(98)77961-5 . PMC 1299595. PMID 9591679 .
- ^ Luger K, Mäder AW, Richmond RK, Sargent DF, Richmond TJ (September 1997). „Kristallstruktur des Nukleosomenkernpartikels bei einer Auflösung von 2,8 Å“. Nature . 389 ( 6648): 251–260 . Bibcode : 1997Natur.389..251L . doi : 10.1038/38444 . PMID 9305837. S2CID 4328827 .
- Davey CA, Sargent DF, Luger K, Maeder AW, Richmond TJ (Juni 2002). „Lösungsmittelvermittelte Wechselwirkungen in der Struktur des Nukleosomenkernpartikels bei einer Auflösung von 1,9 Å“. Journal of Molecular Biology . 319 (5): 1097–1113 . doi : 10.1016/S0022-2836(02)00386-8 . PMID 12079350 .


