Ein Mechanorezeptor , auch Mechanorezeptor genannt , ist ein Sinnesrezeptor , der auf mechanischen Druck oder Verformung reagiert . Mechanorezeptoren befinden sich auf sensorischen Neuronen , die mechanischen Druck in elektrische Signale umwandeln, welche bei Tieren an das zentrale Nervensystem weitergeleitet werden .
Mechanorezeptoren der Wirbeltiere
Hautmechanorezeptoren
Kutane Mechanorezeptoren reagieren auf mechanische Reize, die durch physikalische Interaktion entstehen, wie Druck und Vibration. Sie befinden sich, wie andere kutane Rezeptoren auch, in der Haut . Sie werden alle von Aβ-Fasern innerviert, mit Ausnahme der freien Nervenendigungen , die Mechanorezeptoren sind und von Aδ-Fasern innerviert werden . Kutane Mechanorezeptoren lassen sich nach der Art der wahrgenommenen Empfindung, der Adaptationsgeschwindigkeit und der Morphologie kategorisieren. Darüber hinaus besitzt jeder Rezeptor ein unterschiedliches rezeptives Feld .
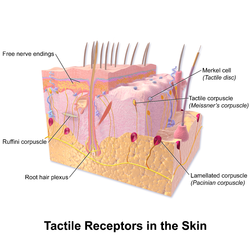
Durch Empfindung
- Der langsam adaptierende Mechanorezeptor Typ 1 (SA1) mit dem Merkel-Körperchen-Endorgan (auch Merkel-Scheiben genannt) detektiert anhaltenden Druck und ist für die Wahrnehmung von Form und Rauheit der Haut verantwortlich. [ 1 ] Er besitzt kleine rezeptive Felder und erzeugt anhaltende Reaktionen auf statische Reize.
- Der langsam adaptierende Mechanorezeptor vom Typ 2 (SA2) mit dem Ruffini-Körperchen-Endorgan (auch als Bulbuskörperchen bekannt ) detektiert Spannungen tief in Haut und Faszie und reagiert auf Hautdehnung, ist aber bisher nicht eng mit propriozeptiven oder mechanorezeptiven Funktionen in der Wahrnehmung verknüpft. [ 2 ] Er erzeugt zudem anhaltende Reaktionen auf statische Reize und besitzt große rezeptive Felder.
- Der schnell adaptierende (RA) Mechanorezeptor mit dem Meissner-Körperchen (auch Tastkörperchen genannt ) ist für die Wahrnehmung leichter Berührungen wie Flattern [ 3 ] und Gleiten auf der Haut [ 4 ] verantwortlich. Er passt sich rasch an Veränderungen der Hautstruktur (Vibrationen um 50 Hz) an. Sein rezeptives Feld ist klein, und er erzeugt kurzzeitige Reaktionen auf das Einsetzen und Abklingen der Stimulation.
- Das Lamellenkörperchen , auch Pacini- oder Vater-Pacini-Körperchen genannt, [ 5 ] in Haut und Faszien detektiert schnelle Vibrationen von etwa 200–300 Hz. [ 3 ] [ 6 ] Es erzeugt auch transiente Reaktionen, besitzt aber ein großes rezeptives Feld.
- Freie Nervenendigungen nehmen Berührung, Druck, Dehnung sowie Kitzeln und Juckreiz wahr. Juckreiz wird durch die Stimulation freier Nervenendigungen durch chemische Substanzen verursacht. [ 7 ]
- Ein Haarfollikelrezeptor , auch Haarwurzelplexus genannt, registriert Positionsveränderungen der Haare . Tatsächlich sind die empfindlichsten Mechanorezeptoren beim Menschen …
- Eine Haarzelle in der Cochlea des Innenohrs (nicht zu verwechseln mit den Follikelrezeptoren – sie ist nach den haarähnlichen, mechanosensorischen Stereozilien benannt ) detektiert Schallfrequenzschwingungen in einem Bereich von etwa20–20 000 Hz , für das Hören. [ 7 ]
Nach Anpassungsrate
Kutane Mechanorezeptoren lassen sich auch anhand ihrer Adaptationsgeschwindigkeit kategorisieren. Empfängt ein Mechanorezeptor einen Reiz, feuert er Impulse oder Aktionspotenziale mit erhöhter Frequenz (je stärker der Reiz, desto höher die Frequenz). Die Zelle adaptiert jedoch schnell an einen konstanten oder statischen Reiz, und die Impulsfrequenz sinkt auf einen normalen Wert. Rezeptoren, die schnell adaptieren (d. h. schnell zu einer normalen Impulsfrequenz zurückkehren), werden als phasisch bezeichnet. Rezeptoren, die nur langsam zu ihrer normalen Feuerrate zurückkehren, heißen tonisch . Phasische Mechanorezeptoren eignen sich zur Wahrnehmung von Texturen oder Vibrationen, während tonische Rezeptoren unter anderem für die Temperatur- und Propriozeption wichtig sind .
- Langsam adaptierend: Zu den langsam adaptierenden Mechanorezeptoren gehören Merkel- und Ruffini-Körperchen-Endorgane sowie einige freie Nervenendigungen .
- Langsam adaptierende Mechanorezeptoren vom Typ I besitzen mehrere Merkel-Körperchen-Endorgane .
- Langsam adaptierende Mechanorezeptoren vom Typ II besitzen einzelne Ruffini-Körperchen als Endorgane .
- Intermediäre Anpassung: Einige freie Nervenendigungen sind intermediär adaptierend.
- Schnell adaptierend: Zu den schnell adaptierenden Mechanorezeptoren gehören Meissner-Körperchen-Endorgane , Pacini-Körperchen-Endorgane , Haarfollikelrezeptoren und einige freie Nervenendigungen .
- Schnell adaptierende Mechanorezeptoren vom Typ I besitzen mehrere Meissner-Körperchen-Endorgane .
- Schnell adaptierende Mechanorezeptoren vom Typ II (üblicherweise Pacini-Rezeptoren genannt) besitzen einzelne Pacini-Körperchen als Endorgane .
Durch rezeptives Feld
Kutane Mechanorezeptoren mit kleinen, präzisen rezeptiven Feldern finden sich in Bereichen, die eine genaue Tastsensibilität erfordern (z. B. den Fingerspitzen). In den Fingerspitzen und Lippen ist die Innervationsdichte langsam adaptierender Typ-I- und schnell adaptierender Typ-I-Mechanorezeptoren stark erhöht. Diese beiden Mechanorezeptortypen besitzen kleine, klar abgegrenzte rezeptive Felder und sind vermutlich die Grundlage für die meisten niedrigschwelligen Fingerfertigkeiten bei der Beurteilung von Textur, Oberflächenbeschaffenheit und Vibrationen. Mechanorezeptoren in Körperregionen mit geringerer taktiler Empfindlichkeit weisen tendenziell größere rezeptive Felder auf .
Lamellenkörperchen
Lamellenkörperchen , auch Pacini-Körperchen oder Vater-Pacini-Körperchen genannt, sind Deformations- bzw. Druckrezeptoren in der Haut und verschiedenen inneren Organen. [ 8 ] Jedes ist mit einem sensorischen Neuron verbunden. Aufgrund ihrer relativ großen Größe lassen sich einzelne Lamellenkörperchen isolieren und ihre Eigenschaften untersuchen. Mit einem Stift kann mechanischer Druck unterschiedlicher Stärke und Frequenz auf das Körperchen ausgeübt werden, und die resultierende elektrische Aktivität wird mit an der Präparation angebrachten Elektroden erfasst.
Die Verformung des Blutkörperchens erzeugt ein Generatorpotenzial im darin entstehenden sensorischen Neuron. Es handelt sich um eine abgestufte Reaktion: Je stärker die Verformung, desto größer das Generatorpotenzial. Erreicht das Generatorpotenzial einen Schwellenwert, wird am ersten Ranvier-Schnürring des sensorischen Neurons eine Salve von Aktionspotenzialen (Nervenimpulsen) ausgelöst.
Sobald der Schwellenwert erreicht ist, wird die Stärke des Reizes in der Frequenz der im Neuron erzeugten Impulse kodiert. Je massiver oder schneller also die Verformung eines einzelnen Blutkörperchens ist, desto höher ist die Frequenz der in seinem Neuron erzeugten Nervenimpulse.
Die optimale Empfindlichkeit eines Lamellenkörperchens liegt bei 250 Hz, dem Frequenzbereich, der auf den Fingerspitzen durch Texturen mit Strukturen kleiner als 200 Mikrometer erzeugt wird . [ 9 ]
Ligamentäre Mechanorezeptoren
Es gibt vier Arten von Mechanorezeptoren, die in Bändern eingebettet sind . Da alle diese Arten von Mechanorezeptoren myelinisiert sind , können sie sensorische Informationen über Gelenkpositionen schnell an das zentrale Nervensystem weiterleiten . [ 10 ]
- Typ I: (klein) Niedrige Reizschwelle, langsame Anpassung sowohl in statischen als auch in dynamischen Umgebungen
- Typ II: (mittel) Niedrige Reizschwelle, schnelle Anpassungsfähigkeit in dynamischen Umgebungen
- Typ III: (groß) Hohe Reizschwelle, langsame Anpassung in dynamischen Umgebungen
- Typ IV: (sehr kleine) Schmerzrezeptoren mit hoher Reizschwelle, die Verletzungen weiterleiten.
Insbesondere Mechanorezeptoren vom Typ II und Typ III stehen vermutlich in Zusammenhang mit dem Propriozeptionssinn .
Andere Mechanorezeptoren
Neben den kutanen Mechanorezeptoren gibt es weitere Mechanorezeptoren, darunter die Haarzellen . Diese Sinnesrezeptoren sind im Vestibularsystem des Innenohrs lokalisiert und tragen dort zum Hörvermögen und zur Gleichgewichtsempfindung bei . Barorezeptoren sind eine Art von Mechanorezeptoren, deren sensorische Neuronen durch die Dehnung eines Blutgefäßes erregt werden. Darüber hinaus existieren juxtakapilläre (J-)Rezeptoren , die auf Ereignisse wie Lungenödeme , Lungenembolien , Pneumonien und Barotrauma reagieren .
Muskelspindeln und der Dehnungsreflex
Der Kniesehnenreflex ist der allgemein bekannte Dehnungsreflex (unwillkürliches Zucken des Unterschenkels), der durch leichtes Antippen des Knies mit einem Gummihammer ausgelöst wird. Der Hammer trifft auf eine Sehne , die einen Streckmuskel an der Vorderseite des Oberschenkels mit dem Unterschenkel verbindet . Durch das Antippen der Sehne wird der Oberschenkelmuskel gedehnt, wodurch Dehnungsrezeptoren im Muskel, die sogenannten Muskelspindeln, aktiviert werden . Jede Muskelspindel besteht aus sensorischen Nervenendigungen, die spezielle Muskelfasern, die intrafusalen Muskelfasern, umhüllen . Die Dehnung einer intrafusalen Faser löst eine Impulsfolge im daran befestigten sensorischen Neuron (einem Ia- Neuron) aus. Die Impulse wandern entlang des sensorischen Axons zum Rückenmark, wo sie verschiedene Arten von Synapsen bilden .
- Einige Äste der Ia-Axone bilden Synapsen direkt mit Alpha-Motoneuronen . Diese leiten Impulse zurück zum selben Muskel und bewirken so dessen Kontraktion. Das Bein streckt sich.
- Einige Äste der Ia-Axone bilden Synapsen mit inhibitorischen Interneuronen im Rückenmark. Diese wiederum bilden Synapsen mit Motoneuronen, die zum Antagonisten, einem Beugemuskel an der Rückseite des Oberschenkels, führen. Durch die Hemmung des Beugemuskels unterstützen diese Interneuronen die Kontraktion des Streckmuskels.
- Weitere Äste der Ia-Axone bilden Synapsen mit Interneuronen, die zu Hirnzentren wie dem Kleinhirn führen, welche die Körperbewegungen koordinieren. [ 11 ]
Empfindungsmechanismus
Bei der somatosensorischen Transduktion übertragen afferente Neuronen Signale über Synapsen in den Hinterstrangkernen . Dort senden Neuronen zweiter Ordnung das Signal an den Thalamus und bilden Synapsen mit Neuronen dritter Ordnung im ventrobasalen Komplex . Die Neuronen dritter Ordnung senden das Signal dann an den somatosensorischen Kortex .
Neuere Arbeiten haben die Rolle der kutanen Mechanorezeptoren für die Rückkopplung in der Feinmotorik erweitert . [ 12 ] Einzelne Aktionspotenziale von Meissner-Körperchen , Pacini-Körperchen und Ruffini-Endigungs -Afferenzen sind direkt mit der Muskelaktivierung verknüpft, wohingegen die Aktivierung des Merkelzell-Neuriten-Komplexes keine Muskelaktivität auslöst. [ 13 ]
Mechanorezeptoren bei Wirbellosen
Zu den Mechanorezeptoren von Insekten und Arthropoden gehören: [ 14 ]
- Campaniforme Sensillen : Kleine, kuppelförmige Strukturen im Exoskelett , die über den gesamten Insektenkörper verteilt sind. Man geht davon aus, dass diese Zellen mechanische Belastungen als Widerstand gegen Muskelkontraktionen wahrnehmen, ähnlich den Golgi-Sehnenorganen der Säugetiere .
- Haarplatten : Sensorische Neuronen, die Haare in den Gelenkfalten von Insekten innervieren. Diese Haare werden ausgelenkt, wenn sich ein Körpersegment relativ zu einem benachbarten Segment bewegt; sie besitzen eine propriozeptive Funktion und fungieren vermutlich als Grenzwertdetektoren, die die maximalen Bewegungsbereiche jedes Gelenks kodieren. [ 15 ]
- Chordotonale Organe : Interne Dehnungsrezeptoren an den Gelenken, die sowohl extero- als auch propriozeptive Funktionen besitzen. Die Neuronen im chordotonalen Organ von Drosophila melanogaster lassen sich in Keulen-, Klauen- und Hakenneuronen unterteilen. Keulenneuronen kodieren vermutlich Vibrationssignale, während Klauen- und Hakenneuronen in Extensions- bzw. Flexionspopulationen unterteilt werden können, die Gelenkwinkel bzw. -bewegung kodieren. [ 16 ]
- Schlitzsensillen : Schlitze im Exoskelett , die physikalische Verformungen des Exoskeletts des Tieres erkennen, haben eine propriozeptive Funktion.
- Borstensensillen : Borstenneuronen sind Mechanorezeptoren, die Haare entlang des gesamten Körpers innervieren. Jedes Neuron besitzt einen Dendritenfortsatz, der ein einzelnes Haar innerviert, und projiziert sein Axon zum ventralen Nervenstrang. Man geht davon aus, dass diese Neuronen die Berührungsempfindung vermitteln, indem sie auf physikalische Auslenkungen des Haares reagieren. [ 17 ] Da viele Insekten Haare unterschiedlicher Größe aufweisen, die gemeinhin als Makrochaeten (dickere, längere Haare) und Mikrochaeten (dünnere, kürzere Haare) bezeichnet werden, legen frühere Studien nahe, dass die Borstenneuronen, die diese unterschiedlich großen Haare innervieren, unterschiedliche Aktivitätseigenschaften wie Ruhemembranpotenzial und Reizschwelle besitzen könnten. [ 18 ] [ 19 ]
Pflanzenmechanorezeptoren
Mechanorezeptoren kommen auch in Pflanzenzellen vor , wo sie eine wichtige Rolle für normales Wachstum, Entwicklung und die Wahrnehmung ihrer Umwelt spielen. [ 20 ] Mechanorezeptoren helfen der Venusfliegenfalle ( Dionaea muscipula Ellis) beim Fangen großer Beutetiere. [ 21 ] [ 22 ]
Molekularbiologie
Mechanorezeptorproteine sind Ionenkanäle , deren Ionenfluss durch Berührung ausgelöst wird. Frühe Untersuchungen zeigten, dass die Berührungstransduktion im Nematoden Caenorhabditis elegans ein zweifach transmembranäres, Amilorid- sensitives Ionenkanalprotein erfordert, das mit epithelialen Natriumkanälen (ENaCs) verwandt ist. [ 23 ] Dieses Protein, MEC-4 genannt, bildet zusammen mit MEC-10 einen heteromeren, Na⁺ - selektiven Kanal. Verwandte Gene werden in Säugetieren in sensorischen Neuronen exprimiert und sind pH- abhängig . Der erste derartige Rezeptor war ASIC1a, benannt nach seiner Eigenschaft als säureempfindlicher Ionenkanal (ASIC). [ 24 ]
Siehe auch
Referenzen
- ^ Johnson KO, Hsiao SS (1992). „Neuronale Mechanismen der taktilen Form- und Texturwahrnehmung“. Annual Review of Neuroscience . 15 : 227–50 . doi : 10.1146/annurev.ne.15.030192.001303 . PMID 1575442 .
- ^ Torebjörk HE, Ochoa JL (Dezember 1980). „Spezifische Empfindungen, die durch Aktivität in einzelnen identifizierten sensorischen Einheiten beim Menschen hervorgerufen werden“. Acta Physiologica Scandinavica . 110 (4): 445–7 . doi : 10.1111/j.1748-1716.1980.tb06695.x . PMID 7234450 .
- ^ a b Talbot WH, Darian-Smith I, Kornhuber HH, Mountcastle VB (März 1968). „Der Sinn für Flattervibrationen: Vergleich der menschlichen Fähigkeit mit den Reaktionsmustern mechanorezeptiver Afferenzen der Affenhand“. Journal of Neurophysiology . 31 (2): 301–334 . doi : 10.1152/jn.1968.31.2.301 . PMID 4972033 .
- ^ Johansson RS, Westling G (1987). „Signale in taktilen Afferenzen der Finger , die adaptive motorische Reaktionen beim Präzisionsgriff auslösen“. Experimental Brain Research . 66 (1): 141–54 . doi : 10.1007/bf00236210 . PMID 3582528. S2CID 22450227 .
- ^ Biswas A, Manivannan M, Srinivasan MA (2015). „Mehrskaliges geschichtetes biomechanisches Modell des Schrittmacherkörperchens“ . IEEE-Transaktionen zur Haptik . 8 (1): 31– 42. doi : 10.1109/TOH.2014.2369416 . PMID 25398182 . S2CID 24658742 .
- ^ Biswas A, Manivannan M, Srinivasan MA (2015). „Vibrotaktile Sensibilitätsschwelle: Nichtlineares stochastisches Mechanotransduktionsmodell des Pacini-Körperchens“ . IEEE Transactions on Haptics . 8 (1): 102–113 . doi : 10.1109/TOH.2014.2369422 . PMID 25398183. S2CID 15326972 .
- ^ a b Tortora GJ (2019). Principles of anatomy and physiology . John Wiley & Sons Australia, Limited. ISBN 978-0-7303-5500-7OCLC 1059417106 .
- ^ Biswas A (2015). Charakterisierung und Modellierung der vibrotaktilen Sensibilitätsschwelle der menschlichen Fingerkuppe und des Pacini-Körperchens (Dissertation). Indian Institute of Technology Madras, Tamil Nadu, Indien. doi : 10.13140/RG.2.2.18103.11687 .
- ^ Scheibert J, Leurent S, Prevost A, Debrégeas G (März 2009). „Die Rolle von Fingerabdrücken bei der Kodierung taktiler Informationen, untersucht mit einem biomimetischen Sensor“. Science . 323 ( 5920): 1503–6 . arXiv : 0911.4885 . Bibcode : 2009Sci...323.1503S . doi : 10.1126/science.1166467 . PMID 19179493. S2CID 14459552 .
- ^ Michelson JD, Hutchins C (März 1995). „Mechanorezeptoren in den Bändern des menschlichen Sprunggelenks“ . The Journal of Bone and Joint Surgery. British Volume . 77 (2): 219–224 . doi : 10.1302/0301-620X.77B2.7706334 . PMID 7706334 .
- ^ Kimball JW (2011). „Mechanorezeptoren“ . Kimball's Biology Pages . Archiviert vom Original am 27. Februar 2011.
- ^ Johansson RS, Flanagan JR (Mai 2009). „Kodierung und Nutzung taktiler Signale der Fingerspitzen bei Objektmanipulationsaufgaben“. Nature Reviews Neuroscience . 10 (5): 345–59 . doi : 10.1038/nrn2621 . PMID 19352402. S2CID 17298704 .
- ^ McNulty PA, Macefield VG (Dezember 2001). „Modulation der kontinuierlichen EMG-Aktivität durch verschiedene Klassen von Mechanorezeptoren mit niedriger Reizschwelle in der menschlichen Hand“ . The Journal of Physiology . 537 (Pt 3): 1021–32 . doi : 10.1111/j.1469-7793.2001.01021.x . PMC 2278990. PMID 11744774 .
- ^ Tuthill JC, Wilson RI (Oktober 2016). „Mechanosensation and Adaptive Motor Control in Insects“ . Current Biology . 26 (20): R1022– R1038 . Bibcode : 2016CBio...26R1022T . doi : 10.1016/j.cub.2016.06.070 . PMC 5120761. PMID 27780045 .
- ^ Bässler, U. (1977-06-01) . „Sensorische Kontrolle der Beinbewegung bei der Stabheuschrecke Carausius morosus“. Biological Cybernetics . 25 (2): 61–72 . doi : 10.1007/BF00337264 . ISSN 1432-0770 . PMID 836915. S2CID 2634261 .
- ^ Mamiya, Akira; Gurung, Pralaksha; Tuthill, John C. (07.11.2018). „ Neuronale Kodierung der Beinpropriozeption bei Drosophila“ . Neuron . 100 ( 3): 636–650.e6. doi : 10.1016/j.neuron.2018.09.009 . ISSN 0896-6273 . PMC 6481666. PMID 30293823. S2CID 52927792 .
- ^ Tuthill, John C.; Wilson, Rachel I. (25.02.2016). „Parallele Transformation taktiler Signale in zentralen Schaltkreisen von Drosophila“ . Cell . 164 ( 5): 1046–1059 . doi : 10.1016/j.cell.2016.01.014 . ISSN 0092-8674 . PMC 4879191. PMID 26919434 .
- ^ Corfas, G.; Dudai, Y. (1990-02-01). „Adaptation and fatigue of a mechanosensory neuron in wild-type Drosophila and in memory mutants“ . The Journal of Neuroscience . 10 (2): 491–499 . doi : 10.1523/JNEUROSCI.10-02-00491.1990 . ISSN 0270-6474 . PMC 6570162. PMID 2154560 .
- ^ Li, Jiefu; Zhang, Wei; Guo, Zhenhao; Wu, Sophia; Jan, Lily Yeh; Jan, Yuh-Nung (2016-11-02). „ Ein defensives Trittverhalten als Reaktion auf mechanische Reize, vermittelt durch die Flügelrandborsten von Drosophila“ . Journal of Neuroscience . 36 (44): 11275–11282 . doi : 10.1523 / JNEUROSCI.1416-16.2016 . ISSN 0270-6474 . PMC 5148243. PMID 27807168. S2CID 2187830 .
- ^ Monshausen GB, Haswell ES (November 2013). „Eine Naturgewalt: Molekulare Mechanismen der Mechanoperzeption in Pflanzen“ . Journal of Experimental Botany . 64 (15): 4663–80 . doi : 10.1093/jxb/ ert204 . PMC 3817949. PMID 23913953 .
- ^ Chamovitz D (2012). Was eine Pflanze weiß: Ein Feldführer zu den Sinnen (1. Aufl.). New York: Scientific American/Farrar, Straus and Giroux. ISBN 978-0-374-53388-5OCLC 755641050 .
- Volkov AG, Forde-Tuckett V, Volkova MI, Markin VS (10.02.2014). „Morphing structures of the Dionaea muscipula Ellis during the trap opening and closing“ . Plant Signaling & Behavior . 9 (2) e27793. Bibcode : 2014PlSiB...9E7793V . doi : 10.4161/psb.27793 . PMC 4091236. PMID 24618927 .
- ^ Driscoll, Monica; Chalfie, Martin (Februar 1991). „Das mec-4-Gen gehört zu einer Familie von Caenorhabditis elegans-Genen, die mutieren und dadurch neuronale Degeneration auslösen können.“ Nature . 349 ( 6310 ): 588–593 . Bibcode : 1991Natur.349..588D . doi : 10.1038/349588a0 . ISSN 0028-0836 . PMID 1672038. S2CID 4334128 .
- Omerbašić , Damir; Schuhmacher, Laura-Nadine; Bernal Sierra, Yinth-Andrea; Smith, Ewan St. John; Lewin, Gary R. (1. Juli 2015). „ASICs und die Funktion von Mechanorezeptoren bei Säugetieren“ . Neuropharmacology . Acid-Sensing Ion Channels in the Nervous System. 94 : 80–86 . doi : 10.1016/j.neuropharm.2014.12.007 . ISSN 0028-3908 . PMID 25528740. S2CID 6721868 .
Externe Links
- Mechanorezeptoren in den Medical Subject Headings (MeSH) der US National Library of Medicine