Caenorhabditis elegans (/ˌsiːnoʊræbˈdaɪtəsˈɛləɡæns/[6]) is a free-living transparent nematode about 1 mm in length that lives in temperate soil environments.[7] It is the type species of its genus.[8] The name is a blend of the Greek caeno- 'recent', rhabditis 'rod-like',[9] and Latin elegans 'elegant'. In 1900, Maupas initially named it Rhabditis elegans.Osche placed it in the subgenusCaenorhabditis in 1952, and in 1955, Dougherty raised Caenorhabditis to the status of genus.[10]
C. elegans is an unsegmented pseudocoelomate and lacks respiratory or circulatory systems.[11] Most of these nematodes are hermaphrodites and a few are males.[12] Males have specialised tails for mating that include spicules.
In 1963, Sydney Brenner proposed research into C. elegans, primarily in the area of neuronal development. In 1974, he began research into the molecular and developmental biology of C. elegans, which has since been extensively used as a model organism.[13] It was the first multicellular organism to have its whole genome sequenced, and in 2019[14] it was the first organism to have its connectome (neuronal "wiring diagram") completed.[15][16][17]
As of 2024, four Nobel prizes have been won for work done on C. elegans.[18]
Anatomy
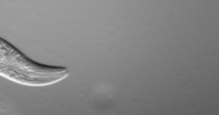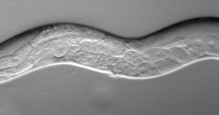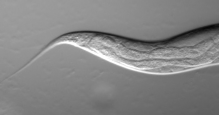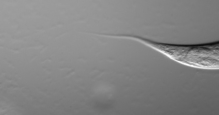
C. elegans is unsegmented, vermiform, and bilaterally symmetrical. It has a cuticle (a strong outer covering, as an exoskeleton), four main epidermal cords, and a fluid-filled pseudocoelom (body cavity). It also has some of the same organ systems as larger animals. About one in a thousand individuals is male and the rest are hermaphrodites.[19] The basic anatomy of C. elegans includes a mouth, pharynx, intestine, gonad, and collagenous cuticle. Like all nematodes, they have neither a circulatory nor a respiratory system. The four bands of muscles that run the length of the body are connected to a neural system that allows the muscles to move the animal's body only as dorsal bending or ventral bending, but not left or right, except for the head, where the four muscle quadrants are wired independently from one another. When a wave of dorsal/ventral muscle contractions proceeds from the back to the front of the animal, the animal is propelled backwards. When a wave of contractions is initiated at the front and proceeds posteriorly along the body, the animal is propelled forwards. Because of this dorsal/ventral bias in body bends, any normal living, moving individual tends to lie on either its left side or its right side when observed crossing a horizontal surface. A set of ridges on the lateral sides of the body cuticle, the alae, is believed to give the animal added traction during these bending motions.


In relation to lipid metabolism, C. elegans does not have any specialized adipose tissues, a pancreas, a liver, or even blood to deliver nutrients compared to mammals. Neutral lipids are instead stored in the intestine, epidermis, and embryos. The epidermis corresponds to the mammalian adipocytes by being the main triglyceride depot.[20]
The pharynx is a muscular food pump in the head of C. elegans, which is triangular in cross-section. This grinds food and transports it directly to the intestine. A set of "valve cells" connects the pharynx to the intestine, but how this valve operates is not understood. After digestion, the contents of the intestine are released via the rectum, as is the case with all other nematodes.[21] No direct connection exists between the pharynx and the excretory canal, which functions in the release of liquid urine.
Males have a single-lobed gonad, a vas deferens, and a tail specialized for mating, which incorporates spicules. Hermaphrodites have two ovaries, oviducts, and spermatheca, and a single uterus.

There are 302 neurons in C. elegans, approximately one-third of all the somatic cells in the whole body.[22] Many neurons contain dendrites which extend from the cell to receive neurotransmitters or other signals, and a process that extends to the nerve ring (the "brain") for a synaptic connection with other neurons.[23]C. elegans has excitatory cholinergic and inhibitory GABAergic motor neurons which connect with body wall muscles to regulate movement. In addition, these neurons and other neurons such as interneurons use a variety of neurotransmitters to control behaviors.[24]
Gut granules

Numerous gut granules are present in the intestine of C. elegans, the functions of which are still not fully known, as are many other aspects of this nematode, despite the many years that it has been studied. These gut granules are found in all of the Rhabditida orders. They are very similar to lysosomes in that they feature an acidic interior and the capacity for endocytosis, but they are considerably larger, reinforcing the view of their being storage organelles. A particular feature of the granules is that when they are observed under ultraviolet light, they react by emitting an intense blue fluorescence. Another phenomenon seen is termed 'death fluorescence'. As the worms die, a dramatic burst of blue fluorescence is emitted. This death fluorescence typically takes place in an anterior to posterior wave that moves along the intestine, and is seen in both young and old worms, whether subjected to lethal injury or peacefully dying of old age.
Many theories have been posited on the functions of the gut granules, with earlier ones being eliminated by later findings. They are thought to store zinc as one of their functions. Recent chemical analysis has identified the blue fluorescent material they contain as a glycosylated form of anthranilic acid (AA). The need for the large amounts of AA the many gut granules contain is questioned. One possibility is that the AA is antibacterial and used in defense against invading pathogens. Another possibility is that the granules provide photoprotection; the bursts of AA fluorescence entail the conversion of damaging UV light to relatively harmless visible light. This is seen as a possible link to the melanin–containing melanosomes.[25]
Reproduction
The hermaphroditic worm is considered to be a specialized form of self-fertile female, as its soma is female. The hermaphroditic germline produces male gametes first, and lays eggs through its uterus after internal fertilization. Hermaphrodites produce all their sperm in the L4 stage (150 sperm cells per gonadal arm) and then produce only oocytes. The hermaphroditic gonad acts as an ovotestis with sperm cells being stored in the same area of the gonad as the oocytes until the first oocyte pushes the sperm into the spermatheca (a chamber wherein the oocytes become fertilized by the sperm).[26]
The male can inseminate the hermaphrodite, which will preferentially use male sperm (both types of sperm are stored in the spermatheca).

Die Spermien von C. elegans sind amöboid und besitzen weder Flagellen noch Akrosomen . [ 28 ] Bei Selbstbefruchtung legt der Wildtyp-Wurm etwa 300 Eier. Bei Befruchtung durch ein Männchen kann die Nachkommenzahl 1000 übersteigen. Hermaphroditen paaren sich normalerweise nicht mit anderen Hermaphroditen. Bei 20 °C hat der Laborstamm von C. elegans (N2) eine durchschnittliche Lebensdauer von etwa 2–3 Wochen und eine Generationszeit von 3 bis 4 Tagen.
C. elegans besitzt fünf Paare Autosomen und ein Paar Geschlechtschromosomen . Die Geschlechtsbestimmung bei C. elegans basiert auf einem X0-Geschlechtsbestimmungssystem . Hermaphroditen von C. elegans besitzen ein Paar Geschlechtschromosomen (XX); die seltenen Männchen haben nur ein Geschlechtschromosom (X0).
Geschlechtsbestimmung
C. elegans sind überwiegend zwittrige Organismen, die sowohl Spermien als auch Eizellen produzieren . [ 29 ] Männchen kommen in der Population mit einer Häufigkeit von etwa 1 zu 200 Zwittern vor, die beiden Geschlechter sind jedoch stark differenziert. [ 30 ] [ 31 ] Männchen unterscheiden sich von ihren zwittrigen Artgenossen durch ihre geringere Größe und lassen sich anhand der Form ihres Schwanzes identifizieren. [ 31 ] C. elegans pflanzen sich durch Androdioezie fort . Das bedeutet, dass sie sich auf zwei Arten fortpflanzen können: entweder durch Selbstbefruchtung bei Zwittern oder durch Paarung von Zwittern mit Männchen. Männchen entstehen durch die Nicht-Trennung der X-Chromosomen während der Meiose. Würmer, die sich durch Selbstbefruchtung fortpflanzen, sind einem hohen Risiko für Kopplungsungleichgewicht ausgesetzt , was zu einer geringeren genetischen Vielfalt in Populationen und einer vermehrten Anhäufung schädlicher Allele führt. [ 32 ] Bei C. elegans wird die somatische Geschlechtsbestimmung dem Gen tra-1 zugeschrieben . [ 33 ] tra -1 ist ein Gen innerhalb des TRA-1-Transkriptionsfaktors, der für die Geschlechtsbestimmung verantwortlich ist. Es wird posttranskriptionell reguliert und fördert die weibliche Entwicklung. [ 33 ] Bei Hermaphroditen (XX) ist die tra-1- Aktivität hoch, was zur Ausbildung des weiblichen Fortpflanzungssystems führt und die männliche Entwicklung hemmt. [ 29 ] [ 33 ] Einen Tag vor Erreichen des Erwachsenenalters lassen sich Hermaphroditen durch die Ausbildung einer Vulva in der Nähe ihres Schwanzes identifizieren. Bei Männchen (XO) ist die tra-1- Aktivität niedrig , was zur Ausbildung eines männlichen Fortpflanzungssystems führt. [ 33 ] Jüngste Forschungsergebnisse haben gezeigt, dass es drei weitere Gene gibt, fem-1, fem-2 und fem-3, die den TRA-1-Signalweg negativ regulieren und als endgültiger Geschlechtsbestimmender bei C. elegans fungieren . [ 29 ]
Evolution
Das Geschlechtsbestimmungssystem von C. elegans beschäftigt Wissenschaftler seit Jahren. [ 30 ] Da C. elegans als Modellorganismus dient, könnten Erkenntnisse über die Evolution dieses Systems die evolutionsbiologische Forschung an anderen Organismen voranbringen. Nach fast 30 Jahren Forschung haben Wissenschaftler begonnen, die einzelnen Puzzleteile der Evolution dieses Systems zusammenzusetzen. [30] Sie entdeckten einen komplexen Signalweg mit mehreren Regulationsebenen. [ 30 ] Der eng verwandte Organismus Caenorhabditis briggsae wurde eingehend untersucht, und seine vollständige Genomsequenz trug dazu bei, die fehlenden Puzzleteile der Evolution der Geschlechtsbestimmung von C. elegans zu ergänzen . [ 30 ] Es wurde festgestellt , dass zwei Gene assimiliert wurden, wodurch die Proteine XOL-1 und MIX-1 auch bei C. elegans einen Einfluss auf die Geschlechtsbestimmung haben . [ 30 ] Mutationen im XOL-1-Signalweg führen bei C. elegans zur Feminisierung. [ 34 ] Das Gen mix-1 ist dafür bekannt, das X-Chromosom zu hypoaktivieren und die Morphologie des männlichen Schwanzes bei C. elegans zu regulieren. [ 35 ] Betrachtet man den Nematoden als Ganzes, so ist anzunehmen, dass sich das männliche und das zwittrige Geschlecht durch parallele Evolution entwickelt haben. [ 30 ] Parallele Evolution bedeutet, dass sich ähnliche Merkmale unter ähnlichen Bedingungen von einem Vorfahren entwickeln; vereinfacht gesagt, entwickeln sich die beiden Arten im Laufe der Zeit auf ähnliche Weise. Ein Beispiel hierfür wären Beuteltiere und Plazentatiere . Wissenschaftler haben auch die Hypothese aufgestellt, dass sich die asexuelle Fortpflanzung von Zwittern, die sogenannte Selbstbefruchtung, konvergent entwickelt haben könnte, indem sie Arten untersuchten, die C. elegans ähneln. [ 30 ] Andere Studien zur Evolution der Geschlechtsbestimmung legen nahe, dass Gene, die Spermien betreffen, sich schneller entwickeln als weibliche Gene. [ 36 ] Allerdings weisen Spermiengene auf dem X-Chromosom reduzierte Evolutionsraten auf. Spermiengene besitzen kurze codierende Sequenzen, eine hohe Codon-Präferenz und sind unter den Orphan-Genen überproportional vertreten . [ 36 ]Diese Eigenschaften der Spermiengene könnten der Grund für ihre hohe Evolutionsrate sein und auch Aufschluss darüber geben, wie sich Spermiengene aus zwittrigen Würmern entwickelt haben. Insgesamt haben Wissenschaftler eine grobe Vorstellung vom Mechanismus der Geschlechtsbestimmung bei C. elegans ; die Evolution dieses Mechanismus ist jedoch noch nicht vollständig geklärt.
Entwicklung

Embryonale Entwicklung
Die befruchtete Zygote durchläuft eine Rotations- Holoblastenteilung .
Das Eindringen des Spermiums in die Eizelle leitet die Ausbildung einer antero-posterioren Achse ein. [ 37 ] Das Mikrotubuli-Organisationszentrum des Spermiums steuert die Bewegung des Spermienvorkerns zum zukünftigen hinteren Pol des Embryos und induziert gleichzeitig die Bewegung von PAR-Proteinen , einer Gruppe von Zytoplasma-Determinierungsfaktoren, an ihre jeweiligen Positionen. [ 38 ] Aufgrund der unterschiedlichen Verteilung der PAR-Proteine verläuft die erste Zellteilung stark asymmetrisch . [ 39 ] Die Embryogenese von C. elegans zählt zu den am besten untersuchten Beispielen für asymmetrische Zellteilung. [ 40 ]
Alle Zellen der Keimbahn entstehen aus einer einzigen Urkeimzelle , der sogenannten P4- Zelle, die früh in der Embryogenese angelegt wird . [ 41 ] [ 42 ] Diese Urkeimzelle teilt sich und erzeugt zwei Keimbahnvorläuferzellen, die sich erst nach dem Schlüpfen weiter teilen. [ 42 ]
Achsenbildung
Die aus der ersten Zellteilung hervorgehenden Tochterzellen werden als AB-Zelle (mit PAR-6 und PAR-3) und P1-Zelle (mit PAR-1 und PAR-2) bezeichnet. Eine zweite Zellteilung erzeugt aus der AB-Zelle die ABp- und ABa-Zellen und aus der P1-Zelle die EMS- und P2-Zellen. Diese Teilung legt die dorsoventrale Achse fest, wobei die ABp-Zelle die dorsale und die EMS-Zelle die ventrale Seite bildet. [ 43 ] Über Wnt-Signalisierung veranlasst die P2-Zelle die EMS-Zelle zur Teilung entlang der anteroposterioren Achse. [ 44 ] Über Notch-Signalisierung differenziert die P2-Zelle die ABp- und ABa-Zellen, wodurch die dorsoventrale Achse weiter definiert wird. Auch die Links-Rechts-Achse wird früh in der Embryogenese sichtbar, obwohl der genaue Zeitpunkt ihrer Festlegung unklar ist. Die meisten Theorien zur Entwicklung der Links-Rechts-Achse gehen jedoch von Unterschieden zwischen den von der AB-Zelle abstammenden Zellen aus. [ 45 ]
Gastrulation
Gastrulation occurs after the embryo reaches the 24-cell stage.[46]C. elegans are a species of protostomes, so the blastopore eventually forms the mouth. Involution into the blastopore begins with movement of the endoderm cells and subsequent formation of the gut, followed by the P4 germline precursor, and finally the mesoderm cells, including the cells that eventually form the pharynx. Gastrulation ends when epiboly of the hypoblasts closes the blastopore.[47]
Post-embryonic development


Under environmental conditions favourable for reproduction, hatched larvae develop through four larval stages - L1, L2, L3, and L4 - in just 3 days at 20 °C. When conditions are stressed, as in food insufficiency, excessive population density or high temperature, C. elegans can enter an alternative third larval stage, L2d, called the dauer stage (Dauer is German for permanent). A specific dauer pheromone regulates entry into the dauer state. This pheromone is composed of similar derivatives of the 3,6-dideoxy sugar, ascarylose. Ascarosides, named after the ascarylose base, are involved in many sex-specific and social behaviors.[48] In this way, they constitute a chemical language that C. elegans uses to modulate various phenotypes. Dauer larvae are stress-resistant; they are thin and their mouths are sealed with a characteristic dauer cuticle and cannot take in food. They can remain in this stage for a few months.[49][50] The stage ends when conditions improve favour further growth of the larva, now moulting into the L4 stage, even though the gonad development is arrested at the L2 stage.[51]
Jeder Stadiumsübergang wird durch eine Häutung der transparenten Kutikula des Wurms eingeleitet. Die Übergänge zwischen diesen Stadien werden durch Gene des heterochronen Signalwegs gesteuert, einem evolutionär konservierten Satz regulatorischer Faktoren. [ 52 ] Viele heterochrone Gene kodieren für microRNAs (miRNAs) , welche die Expression heterochroner Transkriptionsfaktoren und anderer heterochroner miRNAs unterdrücken. [ 53 ] miRNAs wurden ursprünglich in C. elegans entdeckt. [ 54 ] Wichtige Entwicklungsereignisse, die von heterochronen Genen gesteuert werden, umfassen die Teilung und die anschließende synzytiale Fusion der hypodermischen Nahtzellen sowie deren darauffolgende Sekretion der Flügel (Alae) bei jungen adulten Würmern. Es wird angenommen, dass der heterochrone Signalweg einen evolutionär konservierten Vorläufer der circadianen Uhr darstellt . [ 55 ]
Einige Nematoden besitzen eine festgelegte, genetisch determinierte Zellzahl, ein Phänomen, das als Eutelie bekannt ist . Der adulte Hermaphrodit C. elegans hat 959 somatische Zellen, das Männchen 1033 Zellen [ 56 ] [ 57 ] [ 58 ]. Es wurde jedoch vermutet, dass sich die Anzahl der Darmzellen als Reaktion auf Darmmikroben, denen die Mütter ausgesetzt sind, um ein bis drei erhöhen kann [ 59 ] . In der Literatur wird die Zellzahl bei Männchen häufig mit 1031 angegeben, doch die Entdeckung eines Paares von Neuronen im linken und rechten MCM erhöhte diese Zahl im Jahr 2015 um zwei [ 58 ]. Die Zellzahl ändert sich nicht mehr, nachdem die Zellteilung am Ende des Larvenstadiums eingestellt wurde; das weitere Wachstum beruht ausschließlich auf einer Vergrößerung der einzelnen Zellen [ 60 ] .
Ökologie
Die verschiedenen Caenorhabditis- Arten besiedeln diverse nährstoff- und bakterienreiche Umgebungen. Sie ernähren sich von Bakterien, die sich in verrottendem organischem Material entwickeln ( Mikrobivorie ). Sie besitzen chemosensorische Rezeptoren, die es ihnen ermöglichen, Bakterien und von ihnen ausgeschiedene Metabolite (wie Eisensiderophore) zu erkennen und so zu ihrer bakteriellen Beute zu wandern. [ 61 ] Im Boden fehlt es an organischer Substanz, um selbsterhaltende Populationen zu ermöglichen. C. elegans kann zwar von einer Vielzahl von Bakterien leben, seine natürliche Ökologie ist jedoch weitgehend unerforscht. Die meisten Laborstämme stammen aus künstlichen Umgebungen wie Gärten und Komposthaufen . Neuere Studien zeigen, dass C. elegans auch in anderen organischen Materialien, insbesondere in verrottendem Obst, gedeiht. [ 62 ] C. elegans kann zudem Schadstoffe, insbesondere winzige Nanoplastikpartikel , aufnehmen. Dies könnte die Assoziation mit antibiotikaresistenten Bakterien ermöglichen und zur Verbreitung von Nanoplastik und antibiotikaresistenten Bakterien durch C. elegans im Boden führen. [ 63 ] Darüber hinaus können Mikroplastikpartikel die Nahrungspräferenzen von C. elegans über Generationen hinweg verändern, sodass C. elegans mikroplastikbelastete Nahrung gegenüber nicht kontaminierten Bakterien bevorzugt. [ 64 ]
C. elegans kann auch verschiedene Hefearten , darunter Cryptococcus laurentii und C. kuetzingii , als alleinige Nahrungsquelle nutzen. [ 65 ] Obwohl C. elegans ein Bakterienfresser ist , kann er durch eine Reihe pathogener Bakterien, darunter humane Krankheitserreger wie Staphylococcus aureus [ 66 ] , Pseudomonas aeruginosa [ 67 ] , Salmonella enterica oder Enterococcus faecalis [ 68 ] , abgetötet werden . Pathogene Bakterien können zudem Biofilme bilden, deren klebrige Exopolymermatrix die Beweglichkeit von C. elegans beeinträchtigen [ 69 ] und bakterielle Quorum-Sensing-Chemoattraktanten vor der Erkennung durch Fressfeinde verbergen kann. [ 70 ]
Wirbellose Tiere wie Tausendfüßer , Insekten , Asseln und Schnecken können Dauerlarven an verschiedene geeignete Orte transportieren. Es wurde auch beobachtet, dass sich die Larven von ihren Wirten ernähren, wenn diese sterben. [ 71 ] Nematoden können Austrocknung überleben , und bei C. elegans wurde gezeigt, dass der Mechanismus für diese Fähigkeit in späten Embryogenese-Abundant-Proteinen (LEAP) liegt . [ 72 ] C. elegans kann, wie andere Nematoden auch, von räuberischen Nematoden und anderen Allesfressern, einschließlich einiger Insekten, gefressen werden. [ 73 ]
Das Orsay-Virus ist ein Virus, das C. elegans befällt , ebenso wie das Caenorhabditis elegans Cer1-Virus [ 74 ] und das Caenorhabditis elegans Cer13-Virus .
- Wechselwirkungen mit Pilzen
Bei Wildpopulationen von Caenorhabditis elegans werden regelmäßig Infektionen mit Mikrosporidien- Pilzen gefunden. Eine dieser Arten, Nematocida parisii , vermehrt sich im Darm von C. elegans . [ 75 ]
Arthrobotrys oligospora ist der Modellorganismus für die Wechselwirkungen zwischen Pilzen und Nematoden. [ 76 ] Es ist der häufigste und am weitesten verbreitete nematodenfangende Pilz.
Verwendung als Modellorganismus
1963 schlug Sydney Brenner vor, C. elegans als Modellorganismus für die Untersuchung der neuronalen Entwicklung bei Tieren zu verwenden . Er ist einer der einfachsten Organismen mit einem Nervensystem . Die Neuronen feuern keine Aktionspotenziale und exprimieren keine spannungsgesteuerten Natriumkanäle . [ 77 ] Bei dem Hermaphroditen besteht dieses System aus 302 Neuronen [ 78 ], deren Muster umfassend kartiert wurde [ 14 ] , in einem sogenannten Konnektom [ 79 ] , das sich als Small-World-Netzwerk erwiesen hat . [ 80 ]
Die Forschung hat die neuronalen und molekularen Mechanismen untersucht, die verschiedene Verhaltensweisen von C. elegans steuern , darunter Chemotaxis , Thermotaxis , Mechanotransduktion , Lernen , Gedächtnis und Paarungsverhalten . [ 81 ] Im Jahr 2019 wurde das Konnektom des Männchens mithilfe einer anderen Technik als der für den Hermaphroditen verwendeten publiziert. In derselben Publikation wurde die neue Technik eingesetzt, um das Konnektom des Hermaphroditen erneut zu erstellen und dabei 1.500 neue Synapsen zu identifizieren. [ 82 ]
Es wurde als Modellorganismus zur Untersuchung molekularer Mechanismen bei Stoffwechselerkrankungen eingesetzt. [ 83 ] Brenner wählte es auch, weil es sich leicht in großen Populationen züchten lässt und sich gut für genetische Analysen eignet. [ 84 ] Es ist ein vielzelliger eukaryotischer Organismus, aber dennoch einfach genug, um detailliert untersucht zu werden. Die Transparenz von C. elegans erleichtert die Untersuchung der Zelldifferenzierung und anderer Entwicklungsprozesse im intakten Organismus. Die Spicula der Männchen unterscheiden diese deutlich von den Weibchen. Die Stämme sind kostengünstig zu züchten und können eingefroren werden. Nach dem Auftauen bleiben sie lebensfähig und ermöglichen so eine Langzeitlagerung. [ 13 ] Die Haltung ist im Vergleich zu anderen vielzelligen Modellorganismen einfach. Einige hundert Nematoden können auf einer einzigen Agarplatte mit geeignetem Nährmedium gehalten werden. Brenner beschrieb die Verwendung einer E. coli- Mutante – OP50. OP50 ist ein Uracil -abhängiger Organismus, und sein Mangel auf der Agarplatte verhindert das übermäßige Wachstum von Bakterien, die die Würmer verdecken würden. [ 85 ] Die Verwendung von OP50 erfordert keine besonderen Sicherheitsvorkehrungen im Labor, da es nicht pathogen ist und sich leicht über Nacht in Luria-Bertani (LB)-Medium anzüchten lässt. [ 86 ]
Zelllinienkartierung
Die Entwicklung jeder einzelnen somatischen Zelle (959 beim adulten Hermaphroditen; 1031 beim adulten Männchen) wurde kartiert. [ 87 ] [ 88 ] Diese Zelllinienmuster sind zwischen Individuen weitgehend invariant, wohingegen die Zellentwicklung bei Säugetieren stärker von zellulären Signalen aus dem Embryo abhängt.
Wie bereits erwähnt, zählen die ersten Zellteilungen der frühen Embryogenese bei C. elegans zu den am besten verstandenen Beispielen für asymmetrische Zellteilungen , und der Wurm ist ein sehr beliebtes Modellsystem für die Erforschung der Entwicklungsbiologie. [ 40 ]
Programmed cell death
Programmed cell death (apoptosis) eliminates many additional cells (131 in the hermaphrodite, most of which would otherwise become neurons); this "apoptotic predictability" has contributed to the elucidation of some apoptotic genes. Cell death-promoting genes and a single cell-death inhibitor have been identified.[89]
RNA interference and gene silencing

RNA interference (RNAi) is a relatively straightforward method of disrupting the function of specific genes. By introducing dsRNA into cells, homologous mRNA is degraded, silencing the function of the associated gene.[90] Selective disruption of a single gene can allow a researchers to infer its possible function. The nematode can be soaked in, injected with,[91] or fed with genetically transformed bacteria that express the double-stranded RNA of interest, the sequence of which complements the sequence of the gene that the researcher wishes to disable.[92] RNAi has emerged as a powerful tool in the study of functional genomics. C. elegans has been used to analyse gene functions and claim the promise of future findings in the systematic genetic interactions.[93]
Environmental RNAi uptake is much worse in other species of worms in the genus Caenorhabditis. Although injecting RNA into the body cavity of the animal induces gene silencing in most species, only C. elegans and a few other distantly related nematodes can take up RNA from the bacteria they eat for RNAi.[94] This ability has been mapped down to a single gene, sid-2, which, when inserted as a transgene in other species, allows them to take up RNA for RNAi as C. elegans does.[95]
Cell division and cell cycle
Die Erforschung der Meiose wurde erheblich vereinfacht, da sich jeder Keimzellkern während seiner Wanderung durch die Gonade an derselben Position befindet und somit im selben Stadium der Meiose ist. In einer frühen Phase der Meiose entwickeln die Oozyten eine extrem hohe Strahlenresistenz. Diese Resistenz hängt von der Expression der Gene rad51 und atm ab , die eine Schlüsselrolle bei der rekombinatorischen Reparatur spielen. [ 96 ] [ 97 ] Auch das Gen mre-11 ist für die rekombinatorische Reparatur von DNA-Schäden während der Meiose entscheidend. [ 98 ] Darüber hinaus interagieren während der Meiose in C. elegans der Tumorsuppressor BRCA1 /BRC-1 und der Proteinkomplex SMC5 / SMC6 , der für die strukturelle Erhaltung der Chromosomen verantwortlich ist, um eine hochpräzise Reparatur von DNA-Doppelstrangbrüchen zu fördern . [ 99 ]
Eine Studie zur Häufigkeit von Fremdbefruchtung in natürlichen Populationen zeigte, dass Selbstbefruchtung der vorherrschende Fortpflanzungsmodus bei C. elegans ist , Fremdbefruchtung jedoch selten mit einer Rate von etwa 1 % vorkommt. [ 100 ] Meiosevorgänge, die zu Selbstbefruchtung führen, tragen wahrscheinlich nicht wesentlich zu einer vorteilhaften genetischen Variabilität bei, können aber den adaptiven Vorteil der Rekombinationsreparatur von DNA-Schäden bieten, die insbesondere unter Stressbedingungen auftreten. [ 101 ]
Drogenmissbrauch und Abhängigkeit
Die Nikotinabhängigkeit kann auch mithilfe von C. elegans untersucht werden , da dieser Organismus Verhaltensreaktionen auf Nikotin zeigt, die denen von Säugetieren ähneln. Zu diesen Reaktionen gehören akute Reaktionen, Toleranzentwicklung , Entzugserscheinungen und Sensibilisierung. [ 102 ]
Biologische Datenbanken
Wie bei den meisten Modellorganismen pflegen Wissenschaftler, die auf diesem Gebiet arbeiten, eine eigene Online-Datenbank. WormBase ist die Datenbank für C. elegans . WormBase versucht, alle veröffentlichten Informationen über C. elegans und andere verwandte Nematoden zusammenzutragen. Informationen zu C. elegans sind zusammen mit Daten zu anderen Modellorganismen in der Alliance of Genome Resources (AGR) verfügbar. [ 103 ]
Altern
C. elegans has been a model organism for research into ageing; for example, the inhibition of an insulin-like growth factor signaling pathway has been shown to increase adult lifespan threefold;[104][105] while glucose feeding promotes oxidative stress and reduces adult lifespan by a half.[83] Similarly, induced degradation of an insulin/IGF-1 receptor late in life extended life expectancy of worms dramatically.[106] Long-lived mutants of C. elegans were demonstrated to be resistant to oxidative stress and UV light.[107] These long-lived mutants had a higher DNA repair capability than wild-type C. elegans.[107] Knockdown of the nucleotide excision repair gene Xpa-1 increased sensitivity to UV and reduced the life span of the long-lived mutants. These findings indicate that DNA repair capability underlies longevity. Consistent with the idea that oxidative DNA damage causes aging, it was found that in C. elegans, exosome-mediated delivery of superoxide dismutase (SOD) reduces the level of reactive oxygen species (ROS) and significantly extends lifespan, i.e. delays aging under normal, as well as hostile conditions.[108]
The capacity to repair DNA damage by the process of nucleotide excision repair declines with age.[109]
C. elegans exposed to 5mM lithium chloride (LiCl) showed lengthened life spans.[110] When exposed to 10μM LiCl, reduced mortality was observed, but not with 1μM.[111]
C. elegans has been instrumental in the identification of the functions of genes implicated in Alzheimer's disease, such as presenilin.[112] Moreover, extensive research on C. elegans has identified RNA-binding proteins as essential factors during germline and early embryonic development.[113]
Telomeres, the length of which have been shown to correlate with increased lifespan and delayed onset of senescence in a multitude of organisms, from C. elegans[114][115] to humans,[116] show an interesting behaviour in C. elegans. While C. elegans maintains its telomeres in a canonical way similar to other eukaryotes, in contrast Drosophila melanogaster is noteworthy in its use of retrotransposons to maintain its telomeres,[117] during knock-out of the catalytic subunit of the telomerase (trt-1)C. elegans can gain the ability of alternative telomere lengthening (ALT). C. elegans was the first eukaryote to gain ALT functionality after knock-out of the canonical telomerase pathway.[118] ALT is also observed in about 10-15% of all clinical cancers.[119] Thus C. elegans is a prime candidate for ALT research.[120][121][122] Bayat et al. showed the paradoxical shortening of telomeres during trt-1over-expression which lead to near sterility while the worms even exhibited a slight increase in lifespan, despite shortened telomeres.[123]
Sleep
C. elegans is notable in animal sleep studies as the most primitive organism to display sleep-like states. In C. elegans, a lethargus phase occurs shortly before each moult.[124]C. elegans has also been demonstrated to sleep after exposure to physical stress, including heat shock, UV radiation, and bacterial toxins.[125]
Sensory biology
While the worm has no eyes, it has been found to be sensitive to light due to a third type of light-sensitive animal photoreceptor protein, LITE-1, which is 10 to 100 times more efficient at absorbing light than the other two types of photopigments (opsins and cryptochromes) found in the animal kingdom.[126]
C. elegans is remarkably adept at tolerating acceleration. It can withstand 400,000 g's, according to geneticists at the University of São Paulo in Brazil. In an experiment, 96% of them were still alive without adverse effects after an hour in an ultracentrifuge.[127]
Drug library screening
Having a small size and short life cycle, C. elegans is one of the few organisms that can enable in vivo high throughput screening (HTS) platforms for the evaluation of chemical libraries of drugs and toxins in a multicellular organism.[128] Orthologous phenotypes observable in C. elegans for human diseases have the potential to enable profiling of drug library profiling that can inform potential repurposing of existing approved drugs for therapeutic indications in humans.[129]
Spaceflight research
C. elegans made news when specimens were discovered to have survived the Space Shuttle Columbia disaster in February 2003.[130] Later, in January 2009, live samples of C. elegans from the University of Nottingham were announced to be spending two weeks on the International Space Station that October, in a space research project to explore the effects of zero gravity on muscle development and physiology. The research was primarily about genetic basis of muscle atrophy, which relates to spaceflight or being bed-ridden, geriatric, or diabetic.[131] Descendants of the worms aboard Columbia in 2003 were launched into space on Endeavour for the STS-134 mission.[132] Additional experiments on muscle dystrophy during spaceflight were carried on board the ISS starting in 2018.[133] It was shown that the genes affecting muscles attachment were expressed less in space. However, it has yet to be seen if this affects muscle strength.
Social behavior
Eine Studie aus dem Jahr 2017 über oxytocinabhängige soziale Interaktionen zwischen Larven und adulten C. elegans zeigte, dass Eltern ihre Nachkommen erkennen, bevor die Nahrungsquellen knapp werden. [ 134 ] Anschließend verlassen sie die Nahrungsquellen, um ihren Nachkommen zu helfen. Da dieses Verhalten von Nematocin abhängt , einer evolutionär alten Nematodenvariante des Oxytocins (umgangssprachlich als „Liebeshormon“ bezeichnet), gilt C. elegans als Beleg für fürsorgliches Verhalten bei Nematoden.
Genetik
Genom
 Karyotyp von C. elegans Erklärung der Farben Mitotische Chromosomen von C. elegans . DNA (rot)/ Kinetochoren (grün). Holozentrische Organismen, einschließlich C. elegans , bilden diffuse Kinetochoren entlang der gesamten polwärts gerichteten Seite jeder Schwesterchromatide aus. | |
| NCBI- ID | GCA_000002985.3 |
|---|---|
| Ploidie | diploid |
| Genomgröße | 101,169 Mb (haploid) |
| Anzahl der Chromosomen | 5 Paare von Autosomen (I, II, III, IV und V) + 1 oder 2 Geschlechtschromosomen (X [ 135 ] ) |
| Jahr der Fertigstellung | 1998 |
| Sequenziertes Organell | Mitochondrium |
| Organellengröße | 0,01 MB |
| UCSC Genome Browser Assembly-ID | ce11 |

C. elegans war der erste vielzellige Organismus, dessen gesamtes Genom sequenziert wurde . Die Sequenz wurde 1998 veröffentlicht [ 136 ] , obwohl noch einige kleine Lücken vorhanden waren; die letzte Lücke wurde im Oktober 2002 geschlossen. Im Vorfeld der vollständigen Genomsequenzierung veröffentlichte das C. elegans Sequencing Consortium/ C. elegans Genome Project mehrere Teilsequenzen, darunter die von Wilson et al. 1994 [ 137 ] [ 138 ] [ 139 ].
Größe und Geninhalt
Das Genom von C. elegans ist etwa 100 Millionen Basenpaare lang und besteht bei Hermaphroditen aus sechs Chromosomenpaaren bzw. bei männlichen C. elegans aus fünf Autosomenpaaren mit XO-Chromosom und einem mitochondrialen Genom . Die Gendichte beträgt etwa ein Gen pro fünf Kilobasenpaare . Introns machen 26 % und intergene Regionen 47 % des Genoms aus. Viele Gene sind in Clustern angeordnet, und wie viele davon Operons sind , ist unklar. [ 140 ] C. elegans und andere Nematoden gehören zu den wenigen Eukaryoten, von denen derzeit bekannt ist, dass sie Operons besitzen; dazu zählen auch Trypanosomen , Plattwürmer (insbesondere der Trematode Schistosoma mansoni ) und die primitive Chordatier- Mannikate Oikopleura dioica . Es ist wahrscheinlich, dass bei vielen weiteren Organismen Operons nachgewiesen werden. [ 141 ]
Das Genom enthält schätzungsweise 20.470 proteinkodierende Gene . [ 142 ] Etwa 35 % der C. elegans -Gene besitzen Homologe im Menschen . Bemerkenswerterweise wurde wiederholt gezeigt, dass menschliche Gene ihre C. elegans -Homologen ersetzen , wenn sie in C. elegans eingeführt werden . Umgekehrt können viele C. elegans -Gene eine ähnliche Funktion wie Säugetiergene ausüben. [ 49 ]
Die Anzahl der bekannten RNA-Gene im Genom hat sich aufgrund der Entdeckung einer neuen Klasse namens 21U-RNA- Gene im Jahr 2006 stark erhöht [ 143 ] , und man geht heute davon aus, dass das Genom mehr als 16.000 RNA-Gene enthält, gegenüber nur 1.300 im Jahr 2005. [ 144 ]
Wissenschaftliche Kuratoren bewerten fortlaufend die Menge der bekannten Gene; neue Genmodelle werden ständig hinzugefügt und fehlerhafte Modelle modifiziert oder entfernt.
Die Referenzgenomsequenz von C. elegans wird fortlaufend aktualisiert, da neue Erkenntnisse Fehler in der ursprünglichen Sequenzierung aufdecken. Die meisten Änderungen sind geringfügig und betreffen lediglich das Hinzufügen oder Entfernen weniger Basenpaare. Beispielsweise wurden mit der WS202-Version von WormBase (April 2009) zwei Basenpaare zur Genomsequenz hinzugefügt. [ 145 ] Gelegentlich werden auch umfangreichere Änderungen vorgenommen, wie etwa mit der WS197-Version vom Dezember 2008, die eine Region von über 4.300 bp zur Sequenz hinzufügte. [ 146 ] [ 147 ]
The C. elegans Genome Project's Wilson et al. 1994 found CelVav[139] and a von Willebrand factor A domain[137] and with Wilson et al. 1998 provides the first credible evidence for an aryl hydrocarbon receptor (AHR) homolog outside of vertebrates.[138]
Related genomes
In 2003, the genome sequence of the related nematode C. briggsae was also determined, allowing researchers to study the comparative genomics of these two organisms.[148] The genome sequences of more nematodes from the same genus e.g., C. remanei,[149]C. japonica[150] and C. brenneri (named after Brenner), have also been studied using the shotgun sequencing technique.[151] These sequences have now been completed.[152][153]
Other genetic studies

As of 2014, C. elegans is the sister to all other species in the 'Elegans' group (10 species) of the 'Elegans' supergroup (17 species) in phylogenetic studies. It forms a branch of its own distinct to any other species of the group.[154]
Tc1 transposon is a DNA transposon active in C. elegans.
Scientific community
Mehrere Wissenschaftler wurden mit dem Nobelpreis für Physiologie oder Medizin für wissenschaftliche Entdeckungen ausgezeichnet, die sie mit C. elegans gemacht haben . Er wurde 2002 an Sydney Brenner , H. Robert Horvitz und John Sulston für ihre Arbeiten zur Genetik der Organentwicklung und des programmierten Zelltods verliehen , 2006 an Andrew Fire und Craig C. Mello für die Entdeckung der RNA-Interferenz und 2024 an Victor Ambros und Gary Ruvkun für die Entdeckung der microRNA und ihrer Rolle in der Genregulation. [ 155 ] [ 156 ] 2008 teilte sich Martin Chalfie den Nobelpreis für Chemie für seine Arbeit zum grün fluoreszierenden Protein ; ein Teil seiner Forschung umfasste die Verwendung von C. elegans .
Viele Wissenschaftler, die C. elegans erforschen , sind eng mit Sydney Brenner verbunden, mit dem in den 1970er Jahren fast die gesamte Forschung auf diesem Gebiet begann. Sie arbeiteten entweder als Postdoktoranden oder Doktoranden in Brenners Labor oder im Labor eines ehemaligen Mitarbeiters von Brenner. Die meisten seiner ehemaligen Mitarbeiter gründeten später eigene Forschungslabore für Würmer und schufen so eine recht gut dokumentierte „Linie“ von C. elegans -Wissenschaftlern, die auf dem Internationalen Wurmtreffen 2003 detailliert in der WormBase -Datenbank erfasst wurde . [ 157 ]
Siehe auch
Referenzen
- ^ Maupas, É (1900). „Modi et formes de reproduzierung des nématodes“. Archives de Zoologie Expérimentale et Générale . 8 : 463–624 .
- ^ Nigon V. (1949). „Die Modalitäten der Reproduktion und die Bestimmung des Geschlechts, wenn Nematoden frei sind“. Ann. Wissenschaft. Nat. Zool. Biol. Animation . 11 : 1– 132.
- ^ Moerman DG, Waterston RH (Dezember 1984). „ Spontane instabile unc-22 IV-Mutationen in C. elegans var. Bergerac“ . Genetics . 108 (4): 859–77 . doi : 10.1093/genetics/108.4.859 . PMC 1224270. PMID 6096205 .
- ^Babity JM, Starr TV, Rose AM (June 1990). "Tc1 transposition and mutator activity in a Bristol strain of Caenorhabditis elegans". Molecular & General Genetics. 222 (1): 65–70. doi:10.1007/bf00283024. PMID 1978238. S2CID 11275388.
- ^Harris LJ, Rose AM (July 1989). "Structural analysis of Tc1 elements in Caenorhabditis elegans var. Bristol (strain N2)". Plasmid. 22 (1): 10–21. doi:10.1016/0147-619x(89)90031-0. PMID 2550981.
- ^"Caenorhabditis". Merriam-Webster.com Dictionary. Merriam-Webster. OCLC 1032680871.
- ^Wood, WB (1988). The Nematode Caenorhabditis elegans. Cold Spring Harbor Laboratory Press. p. 1. ISBN 978-0-87969-433-3.
- ^Sudhaus W, Kiontke K (2009). "Phylogeny of Rhabditis subgenus Caenorhabditis (Rhabditidae, Nematoda)". Journal of Zoological Systematics and Evolutionary Research. 34 (4): 217–233. doi:10.1111/j.1439-0469.1996.tb00827.x.
- ^καινός (caenos) = new, recent; ῥάβδος (rhabdos) = rod, wand.
- ^Ferris, H (30 November 2013). "Caenorhabditis elegans". University of California, Davis. Archived from the original on 9 December 2013. Retrieved 2013-11-19.
- ^Wallace RL, Ricci C, Melone G (1996). "A cladistic analysis of pseudocoelomate (aschelminth) morphology". Invertebrate Biology. 115 (2): 104–112. Bibcode:1996InvBi.115..104W. doi:10.2307/3227041. JSTOR 3227041.
- ^"Introduction to sex determination". www.wormbook.org. Retrieved 2017-03-15.
- ^ a b Brenner S (Mai 1974). „ Die Genetik von Caenorhabditis elegans “ . Genetics . 77 (1): 71–94 . doi : 10.1093/genetics/77.1.71 . PMC 1213120. PMID 4366476 .
- Cook , SJ; Jarrell, TA; Brittin, CA; Wang, Y; Bloniarz, AE; Yakovlev, MA; Nguyen, KCQ; Tang, Lt-H; Bayer, EA; Duerr, JS; Bulow, HE; Hobert, O; Hall, DH; Emmons, SW (3. Dezember 2019). „ Ganztier -Konnektome beider Geschlechter von Caenorhabditis elegans “ . Nature . 571 (7763). US National Library of Medicine, National Institutes of Health: 63–71 . Bibcode : 2019Natur.571...63C . doi : 10.1038/ s41586-019-1352-7 . PMC 6889226. PMID 31270481 .
- ^ White JG, Southgate E, Thomson JN, Brenner S (November 1986). „Die Struktur des Nervensystems des Nematoden Caenorhabditis elegans “ . Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 314 (1165): 1–340 . Bibcode : 1986RSPTB.314....1W . doi : 10.1098/rstb.1986.0056 . PMID 22462104 .
- ^ White JG (Juni 2013). „ Einblicke in die Denkweise eines Wurms – eine persönliche Sichtweise“ . WormBook : 1–10 . doi : 10.1895/wormbook.1.158.1 . PMC 4781474. PMID 23801597 .
- ^ Jabr F (2012-10-02). „Die Konnektom-Debatte: Lohnt es sich, das Gehirn eines Wurms zu kartieren?“ Scientific American . Abgerufen am 18.01.2014 .
- ^ „Diese winzigen Würmer sind für mindestens 4 Nobelpreise verantwortlich“ , New York Times , 17. Oktober 2024
- ^ Alberts B, Johnson A, Lewis J, Raff M, Roberts K, Walter P (2007). Molekularbiologie der Zelle (5. Aufl.). Garland Science . S. 1321. ISBN 978-0-8153-4105-5Die
- ^ Lemieux GA, Ashrafi K (August 2016). „Untersuchung der Zusammenhänge zwischen Stoffwechsel, Langlebigkeit und Verhalten bei Caenorhabditis elegans“ . Trends in Endocrinology and Metabolism . 27 (8): 586–596 . doi : 10.1016/j.tem.2016.05.004 . PMC 4958586. PMID 27289335 .
- ^ „Der Pharynx von C. elegans : ein Modell für die Organogenese“ . www.wormbook.org . Abgerufen am 15.03.2017 .
- ^ Soares FA, Fagundez DA, Avila DS (2017). „Metallinduzierte Neurodegeneration bei Caenorhabditis elegans“. Neurotoxizität von Metallen . Fortschritte in der Neurobiologie. Band 18. S. 55–383 . doi : 10.1007/978-3-319-60189-2_18 . ISBN 978-3-319-60188-5PMID 28889277 .
- ^ Nonet, M. (2004) Über den Nematoden Caenorhabtis elegans
- ^ Hobert, Oliver (2005). „ Spezifikation des Nervensystems“ . WormBook : 1–19 . doi : 10.1895/wormbook.1.12.1 . PMC 4781215. PMID 18050401 .
- ^ Coburn C, Gems D (2013). „Der mysteriöse Fall des Darmgranulums von C. elegans : Todesfluoreszenz, Anthranilsäure und der Kynurenin-Stoffwechselweg“ . Frontiers in Genetics . 4 : 151. doi : 10.3389/fgene.2013.00151 . PMC 3735983. PMID 23967012 .
- ^ Nayak S, Goree J, Schedl T (Januar 2005). „fog-2 und die Evolution des selbstbefruchtenden Hermaphroditismus bei Caenorhabditis “ . PLOS Biology . 3 (1) e6. doi : 10.1371/ journal.pbio.0030006 . PMC 539060. PMID 15630478 .
- ^ Loer CM, Kenyon CJ (Dezember 1993). „Serotonin-defiziente Mutanten und das Paarungsverhalten von Männchen beim Nematoden Caenorhabditis elegans “ . The Journal of Neuroscience . 13 (12): 5407–17 . doi : 10.1523 / jneurosci.13-12-05407.1993 . PMC 6576401. PMID 8254383 .
- ^ Ma X, Zhao Y, Sun W, Shimabukuro K, Miao L (Oktober 2012). „Transformation: Wie werden Nematodenspermien aktiviert und kriechen?“ . Protein & Cell . 3 (10): 755– 61. doi : 10.1007/s13238-012-2936-2 . PMC 4875351 . PMID 22903434 .
- ^ a b c Starostina NG, Lim JM, Schvarzstein M, Wells L, Spence AM, Kipreos ET (Juli 2007). „Eine CUL-2-Ubiquitinligase mit drei FEM-Proteinen degradiert TRA-1 und reguliert so die Geschlechtsbestimmung von C. elegans“ . Developmental Cell . 13 (1): 127–39 . doi : 10.1016/j.devcel.2007.05.008 . PMC 2064902. PMID 17609115 .
- ^ a b c d e f g h Haag ES (Dezember 2005). „Die Evolution der Geschlechtsbestimmung bei Nematoden: C. elegans als Referenzpunkt für die vergleichende Biologie“ . WormBook : The Online Review of C. elegans Biology : 1–14 . doi : 10.1895/wormbook.1.120.1 . PMC 4781019. PMID 18050417 .
- ^ a b „Handbuch – Einführung für Männer“ . www.wormatlas.org . Abgerufen am 30.03.2021 .
- ^ Frézal L, Félix MA (März 2015). „C. elegans außerhalb der Petrischale“ . eLife . 4 e05849. Bibcode : 2015eLife...405849F . doi : 10.7554/eLife.05849 . PMC 4373675. PMID 25822066 .
- Conradt , Barbara; Horvitz, H. Robert (06.08.1999). „ Das Geschlechtsbestimmungsprotein TRA-1A von C. elegans reguliert den geschlechtsspezifischen Zelltod durch Repression des Zelltodaktivatorgens egl-1“ . Cell . 98 ( 3): 317–327 . doi : 10.1016/S0092-8674(00) 81961-3 . ISSN 0092-8674 . PMID 10458607. S2CID 14951719 .
- ^Miller LM, Plenefisch JD, Casson LP, Meyer BJ (October 1988). "xol-1: a gene that controls the male modes of both sex determination and X chromosome dosage compensation in C. elegans". Cell. 55 (1): 167–83. doi:10.1016/0092-8674(88)90019-0. PMID 3167975. S2CID 5005906.
- ^"mix-1 (gene) - WormBase: Nematode Information Resource". wormbase.org. Retrieved 2021-04-23.
- ^ abCutter AD, Ward S (January 2005). "Sexual and temporal dynamics of molecular evolution in C. elegans development". Molecular Biology and Evolution. 22 (1): 178–88. doi:10.1093/molbev/msh267. PMID 15371532.
- ^Goldstein B, Hird SN (May 1996). "Specification of the anteroposterior axis in Caenorhabditis elegans". Development. 122 (5): 1467–74. doi:10.1242/dev.122.5.1467. PMID 8625834.
- ^Gilbert SF (2016). Developmental biology (11th ed.). Sinauer. p. 268. ISBN 978-1-60535-470-5.
- ^Guo S, Kemphues KJ (May 1995). "par-1, a gene required for establishing polarity in C. elegans embryos, encodes a putative Ser/Thr kinase that is asymmetrically distributed". Cell. 81 (4): 611–20. Bibcode:1995Cell...81..611G. doi:10.1016/0092-8674(95)90082-9. PMID 7758115.
- ^ abGönczy P, Rose LS (October 2005). "Asymmetric cell division and axis formation in the embryo". WormBook: 1–20. doi:10.1895/wormbook.1.30.1. PMC 4780927. PMID 18050411.
- ^Kimble J, Crittenden SL. Germline proliferation and its control. 2005 Aug 15. In: WormBook: The Online Review of C. elegans Biology [Internet]. Pasadena (CA): WormBook; 2005-. Available from: https://www.ncbi.nlm.nih.gov/books/NBK19769/
- ^ ab"WBbt:0006773 (anatomy term)". WormBase (WS242 ed.). May 14, 2014. WBbt:0006773.
- ^ Gilbert SF (2016). Entwicklungsbiologie (11. Aufl.). Sinauer. S. 272. ISBN 978-1-60535-470-5Die
- ^ Thorpe CJ, Schlesinger A, Carter JC, Bowerman B (August 1997). „Wnt-Signalgebung polarisiert eine frühe C. elegans- Blastomere zur Unterscheidung von Endoderm und Mesoderm“ . Cell . 90 (4): 695–705 . Bibcode : 1997Cell...90..695T . doi : 10.1016/s0092-8674(00)80530-9 . PMID 9288749 .
- ^ Pohl C, Bao Z (September 2010). „Chirale Kräfte organisieren die Links-Rechts-Musterbildung in C. elegans durch Entkopplung der Mittellinie und der anteroposterioren Achse“ . Developmental Cell . 19 (3): 402–12 . doi : 10.1016/j.devcel.2010.08.014 . PMC 2952354. PMID 20833362 . Villares JC, Carlini EA (1988). „[Quantifizierung der Talgsekretion bei Freiwilligen: Einfluss von chronologischem Alter, Geschlecht und Rasse]“. Med Cutan Ibero Lat Am . 16 (6): 439–44 . PMID 3073266 .Gilbert SF (2016). Entwicklungsbiologie (11. Aufl.). Sinauer. S. 269. ISBN 978-1-60535-470-5Die
- ^ Skiba F, Schierenberg E (Juni 1992). „Zelllinien, Entwicklungszeitpunkt und räumliche Musterbildung in Embryonen freilebender Bodennematoden“. Developmental Biology . 151 (2): 597–610 . doi : 10.1016/0012-1606(92)90197-o . PMID 1601187 .
- ^ Gilbert SF (2016). Entwicklungsbiologie (11. Aufl.). Sinauer. S. 273. ISBN 978-1-60535-470-5Die
- ^ Ludewig, Andreas H.; Schroeder, Frank C. (18.01.2013). „Ascarosid - Signalisierung in C. elegans“ . WormBook : 1–22 . doi : 10.1895/wormbook.1.155.1 . ISSN 1551-8507 . PMC 3758900. PMID 23355522 .
- ^ a b „Einführung in C. elegans “ . C. elegans als Modellorganismus . Rutgers University. Archiviert vom Original am 18.08.2002 . Abgerufen am 15.08.2014 .
- ^ "Handbuch - Einleitung" .
- ^ „Dauer“ . www.wormbook.org . Abgerufen am 27.09.2018 .
- ^ Resnick TD, McCulloch KA, Rougvie AE (Mai 2010). „miRNAs schenken Würmern die Zeit ihres Lebens: Kleine RNAs und zeitliche Kontrolle in Caenorhabditis elegans “ . Developmental Dynamics . 239 (5): 1477–89 . doi : 10.1002 / dvdy.22260 . PMC 4698981. PMID 20232378 .
- ^ Rougvie AE, Moss EG (2013). „Entwicklungsübergänge in den Larvenstadien von C. elegans “. Aktuelle Themen der Entwicklungsbiologie . Entwicklungszeitpunkt. Band 105. Academic Press. S. 153–180 . doi : 10.1016/B978-0-12-396968-2.00006-3 . ISBN 978-0-12-396968-2PMID 23962842 .
- ^ Lee RC, Feinbaum RL, Ambros V (Dezember 1993). „Das heterochrone Gen lin-4 von C. elegans kodiert kleine RNAs mit antisense-Komplementarität zu lin-14“ . Cell . 75 (5): 843–54 . doi : 10.1016/0092-8674(93)90529-y . PMID 8252621 .
- ^ Banerjee D, Kwok A, Lin SY, Slack FJ (Februar 2005). „Die Entwicklungszeitsteuerung in C. elegans wird durch kin-20 und tim-1, Homologe von zentralen circadianen Uhrgenen, reguliert“ . Developmental Cell . 8 (2): 287–95 . doi : 10.1016/j.devcel.2004.12.006 . PMID 15691769 .
- ^ Sulston, JE; Horvitz, HR (März 1977). „Postembryonale Zelllinien des Nematoden Caenorhabditis elegans“ . Developmental Biology . 56 (1): 110–156 . doi : 10.1016/0012-1606(77)90158-0 . PMID 838129 .
- ^ Sulston, JE; Schierenberg, E; White, JG; Thomson, JN (November 1983). „Die embryonale Zelllinie des Nematoden Caenorhabditis elegans“ . Developmental Biology . 100 (1): 64–119 . doi : 10.1016/0012-1606(83)90201-4 . PMID 6684600 .
- ^ a b Sammut, Michele; Cook, Steven J.; Nguyen, Ken CQ; Felton, Terry; Hall, David H.; Emmons, Scott W.; Poole, Richard J.; Barrios, Arantza (Oktober 2015). „Glia-derived neurons are required for sex-specific learning in C. elegans“ . Nature . 526 (7573): 385–390 . Bibcode : 2015Natur.526..385S . doi : 10.1038 / nature15700 . ISSN 0028-0836 . PMC 4650210. PMID 26469050 .
- ^ Ohno, Hayao; Bao, Zhirong (2022). „ Kleine RNAs verknüpfen embryonale Entwicklungsprogramme mit Darmmikroben“ . Science Advances . 8 (12) eabl7663. bioRxiv 10.1101/2020.11.13.381830 . doi : 10.1126/sciadv.abl7663 . PMC 8942359. PMID 35319987 .
- ^ Ruppert EE, Fox RS, Barnes RD (2004). Invertebrate Zoology (7. Aufl.). Cengage Learning. S. 753. ISBN 978-81-315-0104-7Die
- ^ Hu, Minqi; Ma, Yeping; Chua, Song Lin (16.01.2024). „Bakterivore Nematoden entschlüsseln mikrobielle Eisensiderophore als Beutesignal in Räuber-Beute-Interaktionen“ . Proceedings of the National Academy of Sciences . 121 (3) e2314077121. Bibcode : 2024PNAS..12114077H . doi : 10.1073/pnas.2314077121 . ISSN 0027-8424 . PMC 10801909. PMID 38190542 .
- ^ Félix MA, Braendle C (November 2010). „Die Naturgeschichte von Caenorhabditis elegans “ . Current Biology . 20 (22): R965–9. Bibcode : 2010CBio...20.R965F . doi : 10.1016/j.cub.2010.09.050 . PMID 21093785 .
- ^ Chan, Shepherd Yuen; Liu, Sylvia Yang; Wu, Rongben; Wei, Wei; Fang, James Kar-Hei; Chua, Song Lin (2023-06-02). „Gleichzeitige Verbreitung von Nanoplastik und Antibiotikaresistenz durch Nematoden als Boten“ . Environmental Science & Technology . 57 (23): 8719–8727 . Bibcode : 2023EnST...57.8719C . doi : 10.1021 / acs.est.2c07129 . ISSN 0013-936X . PMID 37267481. S2CID 259047038 .
- ^ Yang, Amber Huizi; Ma, Yeping; Huang, Ruilin; Chua, Song Lin (12.08.2025). „Mikroplastik verändert die Beutepräferenzen von Räubern durch assoziatives Lernen“. Environmental Science & Technology Letters . 12 (8): 1032–1037 . Bibcode : 2025EnSTL..12.1032Y . doi : 10.1021/acs.estlett.5c00492 .
- ^ Mylonakis E, Ausubel FM, Perfect JR, Heitman J, Calderwood SB (November 2002). „Abtötung von Caenorhabditis elegans durch Cryptococcus neoformans als Modell für die Pathogenese von Hefen“ . Proceedings of the National Academy of Sciences of the United States of America . 99 (24): 15675–80 . Bibcode : 2002PNAS...9915675M . doi : 10.1073/pnas.232568599 . PMC 137775. PMID 12438649 .
- ^ Sifri CD, Begun J, Ausubel FM, Calderwood SB (April 2003). „Caenorhabditis elegans als Modellwirt für die Pathogenese von Staphylococcus aureus“ . Infection and Immunity . 71 (4): 2208–17 . doi : 10.1128/IAI.71.4.2208-2217.2003 . PMC 152095. PMID 12654843 .
- ^ Tan MW, Mahajan-Miklos S, Ausubel FM (Januar 1999). „Abtötung von Caenorhabditis elegans durch Pseudomonas aeruginosa als Modell für die bakterielle Pathogenese bei Säugetieren“ . Proceedings of the National Academy of Sciences of the United States of America . 96 (2): 715–20 . Bibcode : 1999PNAS...96..715T . doi : 10.1073/pnas.96.2.715 . PMC 15202. PMID 9892699 .
- ^ Garsin DA, Villanueva JM, Begun J, Kim DH, Sifri CD, Calderwood SB, et al. (Juni 2003). „Langlebige C. elegans daf-2-Mutanten sind resistent gegen bakterielle Krankheitserreger“. Science . 300 ( 5627): 1921. Bibcode : 2003Sci...300.1921G . doi : 10.1126/science.1080147 . PMID 12817143. S2CID 37703980 .
- ^ Chan, Shepherd Yuen; Liu, Sylvia Yang; Seng, Zijing; Chua, Song Lin (Januar 2021). „Biofilmmatrix stört die Motilität und das räuberische Verhalten von Nematoden“ . The ISME Journal . 15 (1): 260–269 . Bibcode : 2021ISMEJ..15..260C . doi : 10.1038/s41396-020-00779-9 . ISSN 1751-7370 . PMC 7852553. PMID 32958848 .
- ^ Li, Shaoyang; Liu, Sylvia Yang; Chan, Shepherd Yuen; Chua, Song Lin (Mai 2022). „Biofilmmatrix maskiert bakterielle Quorum-Sensing-Chemoattraktanten vor der Erkennung durch Fressfeinde“ . The ISME Journal . 16 (5): 1388–1396 . Bibcode : 2022ISMEJ..16.1388L . doi : 10.1038/s41396-022-01190-2 . ISSN 1751-7370 . PMC 9038794. PMID 35034106 .
- ^ Kiontke K, Sudhaus W (Januar 2006). „Ökologie der Caenorhabditis-Arten“ . WormBook : 1–14 . doi : 10.1895/wormbook.1.37.1 . PMC 4780885 . PMID 18050464 .
- ^ Gal TZ, Glazer I, Koltai H (November 2004). „Ein Mitglied der LEA-Gruppe 3 ist am Überleben von C. elegans unter Stressbedingungen beteiligt“ . FEBS Letters . 577 ( 1–2 ): 21–6 . Bibcode : 2004FEBSL.577...21G . doi : 10.1016/j.febslet.2004.09.049 . PMID 15527756. S2CID 21960486 .
- ^ Elaine R. Ingham, Einführung in die Bodenbiologie, USDA
- ^Bowen, N. J. (1999). "Genomic Analysis of Caenorhabditis elegans Reveals Ancient Families of Retroviral-like Elements". Genome Research. 9 (10): 924–935. doi:10.1101/gr.9.10.924. PMID 10523521.
- ^Cuomo CA, Desjardins CA, Bakowski MA, Goldberg J, Ma AT, Becnel JJ, Didier ES, Fan L, Heiman DI, Levin JZ, Young S, Zeng Q, Troemel ER (December 2012). "Microsporidian genome analysis reveals evolutionary strategies for obligate intracellular growth". Genome Research. 22 (12): 2478–88. doi:10.1101/gr.142802.112. PMC 3514677. PMID 22813931.
- ^Niu XM, Zhang KQ (2011). "Arthrobotrys oligospora: A model organism for understanding the interaction between fungi and nematodes". Mycology. 2 (2): 59–78. doi:10.1080/21501203.2011.562559.
- ^Clare JJ, Tate SN, Nobbs M, Romanos MA (November 2000). "Voltage-gated sodium channels as therapeutic targets". Drug Discovery Today. 5 (11): 506–520. doi:10.1016/S1359-6446(00)01570-1. PMID 11084387.
- ^Kosinski RA, Zaremba M (2007). "Dynamics of the Model of the Caenorhabditis Elegans Neural Network". Acta Physica Polonica B. 38 (6): 2201. Bibcode:2007AcPPB..38.2201K.
- ^Brouillette, Monique (21 April 2022). "Mapping the brain to understand the mind". Knowable Magazine. doi:10.1146/knowable-042122-1.
- ^Watts DJ, Strogatz SH (June 1998). "Collective dynamics of 'small-world' networks". Nature. 393 (6684): 440–2. Bibcode:1998Natur.393..440W. doi:10.1038/30918. PMID 9623998. S2CID 4429113.
- ^ Schafer WR (September 2005). „Entschlüsselung der neuronalen und molekularen Mechanismen des Verhaltens von C. elegans“ . Current Biology . 15 (17): R723–9. Bibcode : 2005CBio...15.R723S . doi : 10.1016/j.cub.2005.08.020 . PMID 16139205 .
- ^ Cook SJ, Jarrell TA, Brittin CA, Wang Y, Bloniarz AE, Yakovlev MA, et al. (Juli 2019). „Ganztier-Konnektome beider Caenorhabditis elegans-Geschlechter“ . Natur . 571 (7763): 63– 71. Bibcode : 2019Natur.571...63C . doi : 10.1038/s41586-019-1352-7 . PMC 6889226 . PMID 31270481 .
- ^ Alcántar -Fernández J, Navarro RE, Salazar-Martínez AM, Pérez-Andrade ME, Miranda-Ríos J (2018) . „Caenorhabditis elegans reagiert auf Diäten mit hohem Glukosegehalt durch ein Netzwerk von auf Stress reagierenden Transkriptionsfaktoren . “ PLUS EINS . 13 (7) e0199888. Bibcode : 2018PLoSO..1399888A . doi : 10.1371/journal.pone.0199888 . PMC 6039004 . PMID 29990370 .
- ^ Avery, L. „Sydney Brenner“ . Southwestern Medical Center . Archiviert vom Original am 15. August 2011.Alternative URL , archiviert am 08.12.2013 in der Wayback Machine
- ^ Brenner, S (1974). „Die Genetik von Caenorhabditis elegans“ . Genetics . 77 ( 1): 71–94 . doi : 10.1093/genetics/77.1.71 . PMC 1213120. PMID 4366476 .
- ^ „Verhalten“ . www.wormbook.org . Abgerufen am 26.09.2018 .
- ^ Sulston JE, Horvitz HR (März 1977). „Postembryonale Zelllinien des Nematoden Caenorhabditis elegans“. Developmental Biology . 56 (1): 110–56 . doi : 10.1016/0012-1606(77)90158-0 . PMID 838129 .
- ^ Kimble J, Hirsh D (Juni 1979). „Die postembryonalen Zelllinien der Hermaphroditen- und männlichen Gonaden von Caenorhabditis elegans“. Developmental Biology . 70 (2): 396–417 . doi : 10.1016/0012-1606(79)90035-6 . PMID 478167 .
- ^ Peden E, Killian DJ, Xue D (August 2008). „Spezifizierung des Zelltods in C. elegans“ . Cell Cycle . 7 (16): 2479–84 . doi : 10.4161/cc.7.16.6479 . PMC 2651394. PMID 18719375 .
- ^ Alder, Matthew (9. Januar 2003). „Gen-Silencing in Caenorhabditis elegans by transitive RNA interference“ . RNA . 9 : 25–32 .
- ^ NIDDK, Nationales Institut für Diabetes und Verdauungs- und Nierenerkrankungen (5. März 2015). „Injektion von C. elegans-Gonaden“ . YouTube . Archiviert vom Original am 17. November 2021. Abgerufen am 21. März 2020 .
- ^ Kamath RS, Fraser AG, Dong Y, Poulin G, Durbin R, Gotta M, Kanapin A, Le Bot N, Moreno S, Sohrmann M, Welchman DP, Zipperlen P, Ahringer J (Januar 2003). „Systematische funktionelle Analyse des Caenorhabditis elegans-Genoms mittels RNAi“. Nature . 421 (6920): 231–7 . Bibcode : 2003Natur.421..231K . doi : 10.1038 / nature01278 . hdl : 10261/63159 . PMID 12529635. S2CID 15745225 .
- ^ Fortunato A, Fraser AG (2005). „Aufdeckung genetischer Interaktionen in Caenorhabditis elegans mittels RNA-Interferenz“. Bioscience Reports . 25 ( 5–6 ): 299–307 . doi : 10.1007/s10540-005-2892-7 . PMID 16307378. S2CID 6983519 .
- ^ Félix MA (November 2008). „RNA-Interferenz bei Nematoden und der Zufall , der Sydney Brenner begünstigte“ . Journal of Biology . 7 (9): 34. doi : 10.1186/jbiol97 . PMC 2776389. PMID 19014674 .
- ^ Winston WM, Sutherlin M, Wright AJ, Feinberg EH, Hunter CP (Juni 2007). „Caenorhabditis elegans SID-2 is required for environmental RNA interference“ . Proceedings of the National Academy of Sciences of the United States of America . 104 (25): 10565–70 . Bibcode : 2007PNAS..10410565W . doi : 10.1073 / pnas.0611282104 . PMC 1965553. PMID 17563372 .
- ^ Takanami T, Mori A, Takahashi H, Higashitani A (November 2000). „Hyperresistenz meiotischer Zellen gegenüber Strahlung aufgrund einer starken Expression eines einzelnen recA-ähnlichen Gens in Caenorhabditis elegans“ . Nucleic Acids Research . 28 (21): 4232–6 . doi : 10.1093 / nar/28.21.4232 . PMC 113154. PMID 11058122 .
- ^ Takanami T, Zhang Y, Aoki H, Abe T, Yoshida S, Takahashi H, Horiuchi S, Higashitani A (September 2003). „Effiziente Reparatur von DNA-Schäden, die durch Schwerionenpartikel in meiotischen Prophase-I-Kernen von Caenorhabditis elegans verursacht werden“ . Zeitschrift für Strahlenforschung . 44 (3): 271– 6. Bibcode : 2003JRadR..44..271T . doi : 10.1269/jrr.44.271 . PMID 14646232 .
- ^ Chin GM, Villeneuve AM (März 2001). „C. elegans mre-11 ist für die meiotische Rekombination und DNA-Reparatur erforderlich, aber für den meiotischen G(2)-DNA-Schadens-Checkpoint entbehrlich.“ Genes & Development . 15 (5): 522–34 . doi : 10.1101/gad.864101 . PMC 312651. PMID 11238374 .
- ^ Toraason E, Salagean A, Almanzar DE, Brown JE, Richter CM, Kurhanewicz NA, Rog O, Libuda DE (August 2024). „BRCA1/BRC-1 und SMC-5/6 regulieren die Aktivierung des DNA-Reparaturwegs während der Meiose von Caenorhabditis elegans“ . eLife . 13 e80687. doi : 10.7554/eLife.80687 . PMC 11368404. PMID 39115289 .
- ^Barrière A, Félix MA (July 2005). "High local genetic diversity and low outcrossing rate in Caenorhabditis elegans natural populations". Current Biology. 15 (13): 1176–84. arXiv:q-bio/0508003. Bibcode:2005CBio...15.1176B. doi:10.1016/j.cub.2005.06.022. PMID 16005289. S2CID 2229622.
- ^Bernstein H, Bernstein C (July 2010) "Evolutionary Origin of Recombination during Meiosis," BioScience 60(7), 498-505. https://doi.org/10.1525/bio.2010.60.7.5
- ^Feng Z, Li W, Ward A, Piggott BJ, Larkspur ER, Sternberg PW, Xu XZ (November 2006). "A C. elegans model of nicotine-dependent behavior: regulation by TRP-family channels". Cell. 127 (3): 621–33. doi:10.1016/j.cell.2006.09.035. PMC 2859215. PMID 17081982.
- ^"Alliance of Genome Resources Community Forum". Alliance of Genome Resources Community Forum. Retrieved 2024-08-01.
- ^Wolkow CA, Kimura KD, Lee MS, Ruvkun G (October 2000). "Regulation of C. elegans life-span by insulinlike signaling in the nervous system". Science. 290 (5489): 147–50. Bibcode:2000Sci...290..147W. doi:10.1126/science.290.5489.147. PMID 11021802.
- ^Ewald CY, Landis JN, Porter Abate J, Murphy CT, Blackwell TK (March 2015). "Dauer-independent insulin/IGF-1-signalling implicates collagen remodelling in longevity". Nature. 519 (7541): 97–101. Bibcode:2015Natur.519...97E. doi:10.1038/nature14021. PMC 4352135. PMID 25517099.
- ^Venz, Richard; Pekec, Tina; Katic, Iskra; Ciosk, Rafal; Ewald, Collin Yvès (2021-09-10). Leiser, Scott F; Kaeberlein, Matt; Alcedo, Joy (eds.). "End-of-life targeted degradation of DAF-2 insulin/IGF-1 receptor promotes longevity free from growth-related pathologies". eLife. 10 e71335. doi:10.7554/eLife.71335. ISSN 2050-084X. PMC 8492056. PMID 34505574.
- ^ abHyun, Moonjung; Lee, Jihyun; Lee, Kyungjin; May, Alfred; Bohr, Vilhelm A.; Ahn, Byungchan (2008). "Longevity and resistance to stress correlate with DNA repair capacity in Caenorhabditis elegans". Nucleic Acids Research. 36 (4): 1380–1389. doi:10.1093/nar/gkm1161. PMC 2275101. PMID 18203746.
- ^Shao X, Zhang M, Chen Y, Sun S, Yang S, Li Q (June 2023). "Exosome-mediated delivery of superoxide dismutase for anti-aging studies in Caenorhabditis elegans". Int J Pharm. 641 123090. doi:10.1016/j.ijpharm.2023.123090. PMID 37268030.
- ^Meyer, Joel N.; Boyd, Windy A.; Azzam, Gregory A.; Haugen, Astrid C.; Freedman, Jonathan H.; Van Houten, Bennett (2007). "Decline of nucleotide excision repair capacity in aging Caenorhabditis elegans". Genome Biology. 8 (5): R70. doi:10.1186/gb-2007-8-5-r70. PMC 1929140. PMID 17472752.
- ^McColl G, Killilea DW, Hubbard AE, Vantipalli MC, Melov S, Lithgow GJ (January 2008). "Pharmacogenetic analysis of lithium-induced delayed aging in Caenorhabditis elegans". The Journal of Biological Chemistry. 283 (1): 350–7. Bibcode:2008JBiCh.283..350M. doi:10.1074/jbc.M705028200. PMC 2739662. PMID 17959600.
- ^ Zarse K, Terao T, Tian J, Iwata N, Ishii N, Ristow M (August 2011). „Niedrigdosierte Lithiumaufnahme fördert die Langlebigkeit bei Menschen und Metazoen“ . European Journal of Nutrition . 50 (5): 387–9 . doi : 10.1007/s00394-011-0171-x . PMC 3151375. PMID 21301855 .
- ^ Ewald CY, Li C (März 2010). „Das Verständnis der molekularen Grundlagen der Alzheimer-Krankheit mithilfe eines Caenorhabditis elegans - Modellsystems“ . Brain Structure & Function . 214 ( 2–3 ): 263–83 . doi : 10.1007/s00429-009-0235-3 . PMC 3902020. PMID 20012092 .
- ^ Hanazawa M, Yonetani M, Sugimoto A (März 2011). „PGL-Proteine assoziieren sich selbst und binden an RNPs , um die Bildung von Keimgranula in C. elegans zu vermitteln“ . The Journal of Cell Biology . 192 (6): 929–37 . doi : 10.1083/jcb.201010106 . PMC 3063142. PMID 21402787 .
- ^ Coutts, Fiona; Palmos, Alish B.; Duarte, Rodrigo RR; de Jong, Simone; Lewis, Cathryn M.; Dima, Danai; Powell, Timothy R. (März 2019). „Die polygene Natur der Telomerlänge und die Anti-Aging-Eigenschaften von Lithium“ . Neuropsychopharmacology . 44 ( 4): 757–765 . doi : 10.1038/s41386-018-0289-0 . ISSN 1740-634X . PMC 6372618. PMID 30559463 .
- ^ Raices, Marcela; Maruyama, Hugo; Dillin, Andrew; Karlseder, Jan (September 2005). „Entkopplung von Langlebigkeit und Telomerlänge bei C. elegans“ . PLOS Genetics . 1 (3) e30. doi : 10.1371/journal.pgen.0010030 . ISSN 1553-7404 . PMC 1200426. PMID 16151516 .
- ^Lulkiewicz, M.; Bajsert, J.; Kopczynski, P.; Barczak, W.; Rubis, B. (September 2020). "Telomere length: how the length makes a difference". Molecular Biology Reports. 47 (9): 7181–7188. doi:10.1007/s11033-020-05551-y. ISSN 1573-4978. PMC 7561533. PMID 32876842.
- ^Pardue, Mary-Lou; DeBaryshe, P. G. (2011-12-20). "Retrotransposons that maintain chromosome ends". Proceedings of the National Academy of Sciences of the United States of America. 108 (51): 20317–20324. doi:10.1073/pnas.1100278108. ISSN 1091-6490. PMC 3251079. PMID 21821789.
- ^Meier, Bettina; Clejan, Iuval; Liu, Yan; Lowden, Mia; Gartner, Anton; Hodgkin, Jonathan; Ahmed, Shawn (February 2006). "trt-1 is the Caenorhabditis elegans catalytic subunit of telomerase". PLOS Genetics. 2 (2) e18. doi:10.1371/journal.pgen.0020018. ISSN 1553-7404. PMC 1361356. PMID 16477310.
- ^Cesare, Anthony J.; Reddel, Roger R. (May 2010). "Alternative lengthening of telomeres: models, mechanisms and implications". Nature Reviews. Genetics. 11 (5): 319–330. doi:10.1038/nrg2763. ISSN 1471-0064. PMID 20351727. S2CID 19224032.
- ^Ijomone, Omamuyovwi M.; Miah, Mahfuzur R.; Peres, Tanara V.; Nwoha, Polycarp U.; Aschner, Michael (December 2016). "Null allele mutants of trt-1, the catalytic subunit of telomerase in Caenorhabditis elegans, are less sensitive to Mn-induced toxicity and DAergic degeneration". Neurotoxicology. 57: 54–60. Bibcode:2016NeuTx..57...54I. doi:10.1016/j.neuro.2016.08.016. ISSN 1872-9711. PMID 27593554.
- ^ Shtessel, Ludmila; Lowden, Mia Rochelle; Cheng, Chen; Simon, Matt; Wang, Kyle; Ahmed, Shawn (Februar 2013). „Caenorhabditis elegans POT-1 und POT-2 unterdrücken Telomererhaltungswege“ . G3: Genes, Genomes, Genetics . 3 (2): 305–313 . doi : 10.1534 / g3.112.004440 . ISSN 2160-1836 . PMC 3564990. PMID 23390606 .
- ^ Kwon, Mi-Sun; Min, Jaewon; Jeon, Hee-Yeon; Hwang, Kwangwoo; Kim, Chuna; Lee, Junho; Joung, Je-Gun; Park, Woong-Yang; Lee, Hyunsook (Oktober 2016). „ Paradoxe Verzögerung der Seneszenz nach Depletion von BRCA2 in telomerase-defizienten Würmern“ . FEBS Open Bio . 6 (10): 1016–1024 . doi : 10.1002/2211-5463.12109 . ISSN 2211-5463 . PMC 5055038. PMID 27761361 .
- ^ Bayat, Melih; Tanny, Robyn E.; Wang, Ye; Herden, Carla; Daniel, Jens; Andersen, Erik C.; Liebau, Eva; Waschk, Daniel EJ (30.03.2020). „Auswirkungen der Telomerase-Überexpression im Modellorganismus Caenorhabditis elegans“. Gene 732 144367. doi : 10.1016 / j.gene.2020.144367 . ISSN 1879-0038 . PMID 31954861. S2CID 210829489 .
- ^ Iwanir S, Tramm N, Nagy S, Wright C, Ish D, Biron D (März 2013). „ Die Mikroarchitektur des Verhaltens von C. elegans während Lethargie: Homöostatische Phasendynamik, eine typische Körperhaltung und Regulation durch ein zentrales Neuron“ . Sleep . 36 (3): 385–95 . doi : 10.5665/Sleep.2456 . PMC 3571756. PMID 23449971 .
- ^ Hill AJ, Mansfield R, Lopez JM, Raizen DM, Van Buskirk C (Oktober 2014). „Zellulärer Stress induziert einen schützenden schlafähnlichen Zustand in C. elegans“ . Current Biology . 24 (20): 2399–405 . Bibcode : 2014CBio...24.2399H . doi : 10.1016 / j.cub.2014.08.040 . PMC 4254280. PMID 25264259 .
- ^ Winzige, augenlose Würmer besitzen völlig neue lichtempfindliche Zellen
- ^ Scientific American, August 2018, Seite 14
- ^ Dranchak, PK; Oliphant, E.; Queme, B.; Lamy, L.; Wang, Y.; Huang, R.; Xia, M.; Tao, D.; Inglese, J. (2023). „Quantitatives In-vivo-Hochdurchsatz-Screening für die Wirkstoffforschung und vergleichende Toxikologie“ . Dis Model Mech . 16 (3): dmm049863. doi : 10.1242/dmm.049863 . PMC 10067442. PMID 36786055 .
- ^ Kropp, PA; Bauer, R.; Zafra, I.; Graham, C.; Golden, A. (2021). „Caenorhabditis elegans für die Modellierung seltener Erkrankungen und die Wirkstoffforschung: Strategien und Stärken“ . Dis Model Mech . 14 (8): dmm049010. doi : 10.1242/dmm.049010 . PMC 8380043. PMID 34370008 .
- ^ „Würmer überlebten Columbia-Katastrophe“ . BBC News . 1. Mai 2003. Abgerufen am 11. Juli 2008 .
- ^ „Universität schickt Würmer ins Weltall“ . BBC News . 17. Januar 2009. Abgerufen am 9. Juli 2009 .
- ^ Klotz, I (16. Mai 2011). „Legacy Space Worms Flying on Shuttle“ . Discovery News . Archiviert vom Original am 16. Juni 2012. Abgerufen am 17. Mai 2011 .
- ^ Soni, Purushottam; Anupom, Taslim; Lesanpezeshki, Leila; Rahman, Mizanur; Hewitt, Jennifer E.; Vellone, Matthew; Stodieck, Louis; Blawzdziewicz, Jerzy; Szewczyk, Nathaniel J.; Vanapalli, Siva A. (07.11.2022). „Mikrofluidik-integrierte Raumfahrthardware zur Messung der Muskelkraft von Caenorhabditis elegans auf der Internationalen Raumstation“ . npj Microgravity . 8 (1): 50. Bibcode : 2022npjMG...8...50S . doi : 10.1038/s41526-022-00241-4 . ISSN 2373-8065 . PMC 9640571. PMID 36344513 .
- ^ Scott, E., Hudson, A., Feist, E. et al. (2017). „Eine oxytocinabhängige soziale Interaktion zwischen Larven und adulten C. elegans“ . Scientific Reports . 7, 10122. doi : 10.1038/s41598-017-09350-7 . PMID 23967012 .
- ^ Strome S, Kelly WG, Ercan S, Lieb JD (März 2014). „Regulation der X-Chromosomen in Caenorhabditis elegans “ . Cold Spring Harbor Perspectives in Biology . 6 ( 3) a018366. doi : 10.1101/cshperspect.a018366 . PMC 3942922. PMID 24591522 .
- ^ Das C. elegans Sequencing Consortium (Dezember 1998). „Genomsequenz des Nematoden C. elegans : Eine Plattform zur Erforschung der Biologie“. Science . 282 (5396): 2012–8 . Bibcode : 1998Sci...282.2012. doi : 10.1126 /science.282.5396.2012 . PMID 9851916 .
- ^ a b Sadler, J. Evan (1998). „ Biochemie und Genetik des von-Willebrand-Faktors“ . Annual Review of Biochemistry . 67 (1). Annual Reviews : 395–424 . Bibcode : 1998ARBio..67..395S . doi : 10.1146/annurev.biochem.67.1.395 . ISSN 0066-4154 . PMID 9759493 .
- Hahn , Mark E. (2002). „Aryl-Kohlenwasserstoff-Rezeptoren: Diversität und Evolution“. Chemico-Biological Interactions . 141 ( 1–2 ). Elsevier : 131–160 . Bibcode : 2002CBI...141..131H . doi : 10.1016/s0009-2797(02) 00070-4 . ISSN 0009-2797 . PMID 12213389 .
- ^ a b Bustelo, Xosé R. (2000). „Regulatorische und Signalwirkungen der Vav-Familie“ . Molecular and Cellular Biology . 20 (5). American Society for Microbiology : 1461–1477 . doi : 10.1128 / mcb.20.5.1461-1477.2000 . ISSN 0270-7306 . PMC 85310. PMID 10669724 .
- ^ Blumenthal T, Evans D, Link CD, Guffanti A, Lawson D, Thierry-Mieg J, Thierry-Mieg D, Chiu WL, Duke K, Kiraly M, Kim SK (Juni 2002). „Eine globale Analyse der Operons von Caenorhabditis elegans “ . Nature . 417 (6891): 851–4 . Bibcode : 2002Natur.417..851B . doi : 10.1038/nature00831 . PMID 12075352. S2CID 4351788 .
- ^ Blumenthal T (November 2004). „Operons in eukaryotes“ . Briefings in Functional Genomics & Proteomics . 3 (3): 199–211 . doi : 10.1093/bfgp/3.3.199 . PMID 15642184 .
- ^ „WS227 Release Letter“ . WormBase . 10. August 2011. Abgerufen am 19. November 2013 .
{{cite web}}CS1-Wartung: Veralteter Archivierungsdienst ( Link ) - Ruby JG, Jan C, Player C, Axtell MJ, Lee W, Nusbaum C, Ge H, Bartel DP (Dezember 2006). „Large-scale sequencing reveals 21U-RNAs and additional microRNAs and endogenous siRNAs in C. elegans “ . Cell . 127 (6): 1193–207 . Bibcode : 2006Cell..127.1193R . doi : 10.1016/j.cell.2006.10.040 . PMID 17174894 .
- ^ Stricklin SL, Griffiths-Jones S, Eddy SR (Juni 2005). „ Nichtkodierende RNA-Gene von C. elegans“ . WormBook : 1–7 . doi : 10.1895 / wormbook.1.1.1 . PMC 4781554. PMID 18023116 .
- ^ „WS202 Release Letter“ . WormBase . 29. Mai 2009. Abgerufen am 19. November 2013 .
{{cite web}}CS1-Wartung: Veralteter Archivierungsdienst ( Link ) - ^ „WS197 Release Letter“ . WormBase . 27. November 2008. Archiviert vom Original am 17. Oktober 2019. Abgerufen am 19. November 2013 .
- ^ „Genomsequenzänderungen“ . WormBase . 15. Juni 2011. Archiviert vom Original am 17. Oktober 2019. Abgerufen am 13. August 2011 .
- ^Stein LD, Bao Z, Blasiar D, Blumenthal T, Brent MR, Chen N, Chinwalla A, Clarke L, Clee C, Coghlan A, Coulson A, D'Eustachio P, Fitch DH, Fulton LA, Fulton RE, Griffiths-Jones S, Harris TW, Hillier LW, Kamath R, Kuwabara PE, Mardis ER, Marra MA, Miner TL, Minx P, Mullikin JC, Plumb RW, Rogers J, Schein JE, Sohrmann M, Spieth J, Stajich JE, Wei C, Willey D, Wilson RK, Durbin R, Waterston RH (November 2003). "The genome sequence of Caenorhabditis briggsae: a platform for comparative genomics". PLOS Biology. 1 (2) E45. doi:10.1371/journal.pbio.0000045. PMC 261899. PMID 14624247.
- ^Genome Sequencing Center. "Caenorhabditis remanei: Background". Washington University School of Medicine. Archived from the original on 2008-06-16. Retrieved 2008-07-11.
- ^Genome Sequencing Center. "Caenorhabditis japonica: Background". Washington University School of Medicine. Archived from the original on 2008-06-26. Retrieved 2008-07-11.
- ^Staden R (June 1979). "A strategy of DNA sequencing employing computer programs". Nucleic Acids Research. 6 (7): 2601–10. doi:10.1093/nar/6.7.2601. PMC 327874. PMID 461197.
- ^"UCSC genome browser". Retrieved 8 July 2014.
- ^Kuhn RM, Karolchik D, Zweig AS, Wang T, Smith KE, Rosenbloom KR, Rhead B, Raney BJ, Pohl A, Pheasant M, Meyer L, Hsu F, Hinrichs AS, Harte RA, Giardine B, Fujita P, Diekhans M, Dreszer T, Clawson H, Barber GP, Haussler D, Kent WJ (January 2009). "The UCSC Genome Browser Database: update 2009". Nucleic Acids Research. 37 (Database issue): D755–61. doi:10.1093/nar/gkn875. PMC 2686463. PMID 18996895.
- Félix MA, Braendle C, Cutter AD (2014). „Ein optimiertes System zur Artendiagnose bei Caenorhabditis (Nematoda: Rhabditidae) mit Namensgebungen für 15 verschiedene biologische Arten“ . PLOS ONE . 9 (4) e94723. Bibcode : 2014PLoSO...994723F . doi : 10.1371/ journal.pone.0094723 . PMC 3984244. PMID 24727800 .
- ^ Fire A, Xu S, Montgomery MK, Kostas SA, Driver SE, Mello CC (Februar 1998). „Potente und spezifische genetische Interferenz durch doppelsträngige RNA in Caenorhabditis elegans“ . Nature . 391 ( 6669): 806–11 . Bibcode : 1998Natur.391..806F . doi : 10.1038/35888 . PMID 9486653. S2CID 4355692 .
- ^ Callaway, Ewen; Sanderson, Katharine (07.10.2024). „Nobelpreis für Medizin für genregulatorische ‚microRNAs‘ verliehen“" . Nature . 634 (8034). Nature Publishing Group: 524– 525. Bibcode : 2024Natur.634..524C . doi : 10.1038/d41586-024-03212-9 . PMID 39375555 . Abgerufen am 8. Oktober 2024 .
- ^ Harris TW, Antoshechkin I, Bieri T, Blasiar D, Chan J, Chen WJ, et al. (Januar 2010). „WormBase: eine umfassende Ressource für die Nematodenforschung“ . Nucleic Acids Research . 38 (Datenbankausgabe): D463-7. doi : 10.1093/nar/ gkp952 . PMC 2808986. PMID 19910365 .
Weiterführende Literatur
- Bird J, Bird AC (1991). Die Struktur der Nematoden . Academic Press . S. 1, 69–70 , 152–153 , 165, 224–225 . ISBN 978-0-12-099651-3Die
- Hope, IA (1999).C. elegans : Ein praktischer Ansatz . Oxford University Press . S. 1–6 . ISBN 978-0-19-963738-6Die
- Riddle DL, Blumenthal T, Meyer RJ, Priess JR (1997).C. elegans II . Cold Spring Harbor Laboratory Press . S. 1–4 , 679–683 . ISBN 978-0-87969-532-3PMID 21413221 .
Externe Links
- Brenner S (2002) Nature's Gift to Science. In: http://nobelprize.org/nobel_prizes/medicine/laureates/2002/brenner-lecture.pdf (siehe auch die Horvitz- und Sulston-Vorlesungen)
- WormBase – eine umfangreiche Online-Datenbank zur Biologie und Genomik von C. elegans und anderen Nematoden
- WormAtlas – Online-Datenbank zu allen Aspekten der Anatomie von C. elegans mit detaillierten Erklärungen und hochauflösenden Bildern
- WormBook – Online-Rezension der Biologie von C. elegans
- AceView WormGenes – eine weitere Genomdatenbank für C. elegans , die vom NCBI verwaltet wird.
- C. elegans II – ein kostenloses Online-Lehrbuch.
- WormWeb Neural Network – ein Online-Tool zur Visualisierung und Navigation des Konnektoms von C. elegans
- C. elegans -Filme – eine visuelle Einführung in C. elegans
- Die Genomsequenz von ce11 kann im UCSC Genome Browser angezeigt werden.
- Caenorhabditis elegans auf eppo.int ( EPPO-Code CAEOEL)
- Cylinder, Drew (2022). Verwendung von C. elegans zur Untersuchung der Anästhesie . Visualise Your Thesis . doi : 10.6084/m9.figshare.20963590.v1 .


