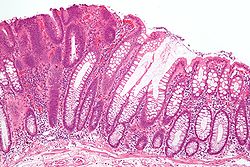
Ein Neoplasma ( / ˈ niː oʊ p l æ z əm , ˈ niː ə - / ) [ 1 ] [ 2 ] ist eine Form des abnormen und übermäßigen Gewebewachstums . Der Prozess, der zur Bildung eines Neoplasmas führt, wird als Neoplasie bezeichnet . Das Wachstum eines Neoplasmas ist unkoordiniert mit dem des umgebenden normalen Gewebes und setzt sich auch nach Beseitigung des ursprünglichen Auslösers fort. [ 3 ] [ 4 ] [ 5 ] Dieses abnorme Wachstum bildet üblicherweise eine Raumforderung , die als Tumor bezeichnet wird . [ 6 ]
Die ICD-10 klassifiziert Neubildungen in vier Hauptgruppen: gutartige Neubildungen , Neoplasien in situ , bösartige Neubildungen und Neubildungen mit unklarem oder unbekanntem Verhalten. [ 7 ] Bösartige Neubildungen werden auch einfach als Krebs bezeichnet und stehen im Mittelpunkt der Onkologie .
Vor dem abnormalen Gewebewachstum, wie beispielsweise einer Neoplasie, durchlaufen Zellen häufig ein abnormes Wachstumsmuster, wie etwa Metaplasie oder Dysplasie . [ 8 ] Metaplasie oder Dysplasie führen jedoch nicht immer zu einer Neoplasie und können auch bei anderen Erkrankungen auftreten. [ 3 ] Das Wort Neoplasma stammt aus dem Altgriechischen: νέος- neo „neu“ und πλάσμα plasma „Bildung, Entstehung“.
Typen
| -plasia und -trophy |
|---|
|
|
Eine Neubildung kann gutartig , potenziell bösartig oder bösartig ( Krebs ) sein. [ 9 ]
- Gutartige Tumoren umfassen Uterusmyome , Osteophyten und melanozytäre Nävi (Hautmuttermale). Sie sind abgegrenzt und lokalisiert und entarten nicht. [ 8 ]
- Zu den potenziell bösartigen Neubildungen gehört das Carcinoma in situ . Sie sind lokalisiert und dringen nicht in das umliegende Gewebe ein und zerstören es nicht, können sich aber mit der Zeit zu Krebs entwickeln.
- Bösartige Neubildungen werden gemeinhin als Krebs bezeichnet. Sie dringen in das umliegende Gewebe ein und zerstören es, können Metastasen bilden und führen, wenn sie unbehandelt bleiben oder nicht auf die Behandlung ansprechen, in der Regel zum Tod.
- Als sekundäre Neoplasie bezeichnet man eine Klasse von Krebstumoren, die entweder eine Metastase eines primären Tumors sind oder ein scheinbar unabhängiger Tumor, dessen Häufigkeit nach bestimmten Krebsbehandlungen wie Chemotherapie oder Strahlentherapie zunimmt .
- In seltenen Fällen kann es zu einer metastasierten Neubildung kommen, bei der der Ursprung des Primärtumors unbekannt ist; dies wird als Krebs unbekannter primärer Herkunft klassifiziert .
Klonalität
Neoplastische Tumoren sind oft heterogen und enthalten mehr als einen Zelltyp, ihre Entstehung und ihr weiteres Wachstum hängen jedoch in der Regel von einer einzigen Population neoplastischer Zellen ab. Diese Zellen gelten als monoklonal – das heißt, sie stammen von derselben Zelle ab [ 10 ] und tragen alle dieselbe genetische oder epigenetische Anomalie – ein Hinweis auf Klonität. Bei lymphatischen Neoplasien, z. B. Lymphomen und Leukämien , wird die Klonität durch die Amplifikation einer einzelnen Rearrangierung ihres Immunglobulin- Gens (bei B-Zell -Läsionen) oder ihres T-Zell-Rezeptor -Gens (bei T-Zell -Läsionen) nachgewiesen. Der Nachweis der Klonität gilt heute als notwendig, um eine lymphatische Zellproliferation als neoplastisch zu identifizieren [ 11 ] .
Neoplasie vs. Tumor
Das Wort Tumor stammt vom lateinischen Wort für Schwellung , einem der Hauptsymptome einer Entzündung. Ursprünglich bezeichnete es jede Form von Schwellung , ob neoplastisch oder nicht. Im modernen Englisch wird Tumor (nicht-US-amerikanische Schreibweise: tumour) synonym für eine Neoplasie ( eine feste oder flüssigkeitsgefüllte zystische Läsion , die durch abnormes Wachstum neoplastischer Zellen entstehen kann oder nicht) verwendet, die vergrößert erscheint. [ 12 ] [ 13 ] Manche Neoplasien bilden keinen Tumor; dazu gehören Leukämie und die meisten Formen des Carcinoma in situ . Tumor ist auch nicht gleichbedeutend mit Krebs . Während Krebs per Definition bösartig ist, kann ein Tumor gutartig , präkanzerös oder bösartig sein . [ 14 ] [ 15 ]
Die Begriffe Raumforderung und Knoten werden oft synonym mit Tumor verwendet . Im Allgemeinen wird der Begriff Tumor jedoch allgemein verwendet, ohne Bezugnahme auf die tatsächliche Größe der Läsion. [ 3 ] Genauer gesagt wird der Begriff Raumforderung häufig verwendet, wenn die Läsion einen maximalen Durchmesser von mindestens 20 Millimetern (mm) in ihrer größten Ausdehnung aufweist, während der Begriff Knoten üblicherweise verwendet wird, wenn die Läsion in ihrer größten Ausdehnung weniger als 20 mm (25,4 mm = 1 Zoll) misst. [ 3 ]
Ursachen


Tumoren beim Menschen entstehen durch die Anhäufung genetischer und epigenetischer Veränderungen in einzelnen Zellen, die zu unkontrollierter Zellteilung und -vermehrung führen. [ 16 ] Eine Neoplasie kann durch abnorme Gewebeproliferation verursacht werden, die wiederum auf genetische Mutationen zurückzuführen sein kann . Nicht alle Neoplasien führen zu einem tumorartigen Gewebewachstum (wie beispielsweise Leukämie oder Carcinoma in situ ); es wurden jedoch Ähnlichkeiten zwischen neoplastischem Wachstum und regenerativen Prozessen, wie etwa Dedifferenzierung und rascher Zellproliferation, festgestellt. [ 17 ]
Das Tumorwachstum wurde mithilfe mathematischer Methoden und der Kontinuumsmechanik untersucht . Vaskuläre Tumoren wie Hämangiome und Lymphangiome (die aus Blut- oder Lymphgefäßen entstehen) werden dabei als Mischung aus einem festen Gerüst aus klebrigen Zellen und einer organischen Flüssigkeit betrachtet, die die Zwischenräume ausfüllt, in denen die Zellen wachsen können. [ 18 ] Mit diesem Modell lassen sich mechanische Spannungen und Dehnungen berücksichtigen und deren Einfluss auf das Wachstum des Tumors sowie des umgebenden Gewebes und der Blutgefäße aufklären. Jüngste experimentelle Ergebnisse, die dieses Modell verwenden, zeigen, dass das aktive Tumorwachstum auf die äußeren Ränder des Tumors beschränkt ist und dass eine Versteifung des darunterliegenden gesunden Gewebes das Tumorwachstum ebenfalls hemmt. [ 19 ]
Gutartige Erkrankungen, die nicht mit einer abnormen Gewebewucherung einhergehen (wie z. B. Talgdrüsenzysten ), können zwar auch als Tumoren auftreten, haben aber kein malignes Potenzial. Beispiele hierfür sind Brustzysten, die häufig während der Schwangerschaft und auch zu anderen Zeitpunkten auftreten [ 20 ] [ 21 ] , sowie andere abgekapselte Drüsenschwellungen (Schilddrüse, [ 22 ] [ 23 ] Nebenniere, Bauchspeicheldrüse).
Eingekapselte Hämatome, eingekapseltes nekrotisches Gewebe (infolge eines Insektenstichs, eines Fremdkörpers oder eines anderen schädlichen Mechanismus), Keloide (abgegrenzte Wucherungen von Narbengewebe) und Granulome können ebenfalls als Tumore auftreten.
Abgegrenzte, lokalisierte Erweiterungen normaler Strukturen (Harnleiter, Blutgefäße, intra- oder extrahepatische Gallengänge, pulmonale Einschlüsse oder gastrointestinale Duplikationen ) aufgrund von Abflussbehinderungen oder -verengungen oder abnormen Verbindungen können sich ebenfalls als Tumor manifestieren. Beispiele hierfür sind arteriovenöse Fisteln oder Aneurysmen (mit oder ohne Thrombose), Gallenwegs-Fisteln oder -Aneurysmen, sklerosierende Cholangitis, Zystizerkose oder Echinokokkuszysten, intestinale Duplikationen und pulmonale Einschlüsse, wie sie bei Mukoviszidose vorkommen. Die Biopsie bestimmter Tumorarten kann gefährlich sein, da ein Austreten des Tumorinhalts potenziell katastrophale Folgen haben könnte. Wenn solche Tumore auftreten, werden vor (oder während) einer Biopsie oder chirurgischen Exploration/Exzision diagnostische Verfahren wie Ultraschall, CT-Scans, MRT, Angiographien und nuklearmedizinische Untersuchungen eingesetzt, um solche schwerwiegenden Komplikationen zu vermeiden.
Bösartige Neubildungen
DNA-Schäden

DNA-Schäden gelten als Hauptursache bösartiger Neubildungen, bekannt als Krebs. [ 24 ] Ihre zentrale Rolle bei der Krebsentstehung wird in der Abbildung in diesem Abschnitt, im oberen Kasten, veranschaulicht. (Die zentralen Merkmale von DNA-Schäden, epigenetischen Veränderungen und mangelhafter DNA-Reparatur bei der Krebsentstehung sind rot dargestellt.) DNA-Schäden sind sehr häufig. Natürlich entstehende DNA-Schäden (hauptsächlich bedingt durch den Zellstoffwechsel und die Eigenschaften der DNA in Wasser bei Körpertemperatur) treten durchschnittlich mit mehr als 10.000 neuen Schäden pro menschlicher Zelle und Tag auf. [ 25 ] Zusätzliche DNA-Schäden können durch die Einwirkung exogener Faktoren entstehen. Tabakrauch führt zu vermehrten exogenen DNA-Schäden, und diese DNA-Schäden sind wahrscheinlich die Ursache für Lungenkrebs durch Rauchen. [ 26 ] UV-Licht aus der Sonnenstrahlung verursacht DNA-Schäden, die bei Melanomen eine wichtige Rolle spielen . [ 27 ] Eine Infektion mit Helicobacter pylori führt zur Produktion hoher Konzentrationen reaktiver Sauerstoffspezies , die die DNA schädigen und zur Entstehung von Magenkrebs beitragen. [ 28 ] Gallensäuren , die in hohen Konzentrationen im Dickdarm von Menschen mit fettreicher Ernährung vorkommen, verursachen ebenfalls DNA-Schäden und tragen zur Entstehung von Darmkrebs bei . [ 29 ] Katsurano et al. zeigten, dass Makrophagen und Neutrophile im entzündeten Dickdarmepithel die Quelle reaktiver Sauerstoffspezies sind, welche die DNA-Schäden verursachen, welche die Tumorentstehung im Dickdarm auslösen. [ 30 ] Einige Quellen von DNA-Schäden sind in den Kästchen am oberen Rand der Abbildung in diesem Abschnitt aufgeführt.
Personen mit einer Keimbahnmutation, die einen Defekt in einem der 34 DNA-Reparaturgene verursacht (siehe Artikel DNA-Reparaturdefekt ), haben ein erhöhtes Krebsrisiko . Einige Keimbahnmutationen in DNA-Reparaturgenen führen zu einem bis zu 100%igen Lebenszeitrisiko für Krebs (z. B. p53 -Mutationen). [ 31 ] Diese Keimbahnmutationen sind in einem Kasten links in der Abbildung dargestellt; ein Pfeil zeigt ihren Beitrag zum DNA-Reparaturdefekt an.
Etwa 70 % der malignen (krebsartigen) Neubildungen weisen keine erbliche Komponente auf und werden als „sporadische Karzinome“ bezeichnet. [ 32 ] Nur bei einer Minderheit der sporadischen Karzinome liegt ein Defekt in der DNA-Reparatur aufgrund einer Mutation in einem DNA-Reparaturgen vor. Die Mehrheit der sporadischen Karzinome weist jedoch einen Defekt in der DNA-Reparatur aufgrund epigenetischer Veränderungen auf, die die Expression von DNA-Reparaturgenen reduzieren oder unterdrücken. Beispielsweise wiesen von 113 aufeinanderfolgenden kolorektalen Karzinomen nur vier eine Missense-Mutation im DNA-Reparaturgen MGMT auf , während die Mehrheit eine reduzierte MGMT-Expression aufgrund einer Methylierung der MGMT-Promotorregion (einer epigenetischen Veränderung) zeigte. [ 33 ] Fünf Berichte liefern Hinweise darauf, dass zwischen 40 % und 90 % der kolorektalen Karzinome eine reduzierte MGMT-Expression aufgrund einer Methylierung der MGMT-Promotorregion aufweisen. [ 34 ] [ 35 ] [ 36 ] [ 37 ] [ 38 ]
In ähnlicher Weise war bei 119 Fällen von kolorektalen Karzinomen mit Mismatch-Reparaturdefizienz, bei denen die Expression des DNA-Reparaturgens PMS2 fehlte, PMS2 in 6 Fällen aufgrund von Mutationen im PMS2-Gen defizient, während in 103 Fällen die PMS2-Expression aufgrund der Repression seines Paarungspartners MLH1 durch Promotormethylierung beeinträchtigt war (das PMS2-Protein ist in Abwesenheit von MLH1 instabil). [ 39 ] In den übrigen 10 Fällen war der Verlust der PMS2-Expression wahrscheinlich auf eine epigenetische Überexpression der microRNA miR-155 zurückzuführen , welche MLH1 herunterreguliert. [ 40 ]
In weiteren Beispielen wurden epigenetische Defekte mit einer Häufigkeit von 13–100 % für die DNA-Reparaturgene BRCA1 , WRN , FANCB , FANCF , MGMT, MLH1 , MSH2 , MSH4 , ERCC1 , XPF , NEIL1 und ATM gefunden . Diese epigenetischen Defekte traten bei verschiedenen Krebsarten auf, darunter Brust-, Eierstock-, Darm- und Kopf-Hals-Tumoren. Zwei oder drei Expressionsdefizite von ERCC1, XPF oder PMS2 traten gleichzeitig in der Mehrzahl der 49 von Facista et al. [ 41 ] untersuchten Darmkrebsfälle auf . Epigenetische Veränderungen, die zu einer reduzierten Expression von DNA-Reparaturgene führen, sind in einem zentralen Kasten auf der dritten Ebene von oben in der Abbildung dieses Abschnitts dargestellt, und der daraus resultierende DNA-Reparaturdefekt ist auf der vierten Ebene dargestellt.
Bei reduzierter Expression von DNA-Reparaturgenen akkumulieren sich DNA-Schäden in Zellen in erhöhtem Maße, was zu einer erhöhten Mutations- und Epimutationsrate führt. Die Mutationsraten steigen stark in Zellen mit Defekten in der DNA-Mismatch-Reparatur [ 42 ] [ 43 ] oder in der homologen Rekombinationsreparatur (HRR) [ 44 ] .
Bei der Reparatur von DNA-Doppelstrangbrüchen oder anderen DNA-Schäden können unvollständig gereinigte Reparaturstellen zu epigenetischer Genstilllegung führen . [ 45 ] DNA-Reparaturdefekte (Stufe 4 in der Abbildung) verursachen vermehrte DNA-Schäden (Stufe 5 in der Abbildung), was wiederum zu vermehrten somatischen Mutationen und epigenetischen Veränderungen führt (Stufe 6 in der Abbildung).
Felddefekte, also scheinbar normales Gewebe mit vielfältigen Veränderungen (siehe unten), sind häufige Vorstufen der Entwicklung eines ungeordneten und unkontrolliert proliferierenden Gewebeklons in einem malignen Tumor. Solche Felddefekte (zweite Ebene von unten in der Abbildung) können multiple Mutationen und epigenetische Veränderungen aufweisen.
Sobald sich ein Tumor gebildet hat, weist er in der Regel Genominstabilität auf . Diese Instabilität ist wahrscheinlich auf eine verminderte DNA-Reparatur oder übermäßige DNA-Schäden zurückzuführen. Aufgrund dieser Instabilität entwickelt sich der Tumor weiter und bildet Subklone. Beispielsweise wies ein Nierenzellkarzinom, das in neun Bereichen untersucht wurde, 40 ubiquitäre Mutationen auf, was die Heterogenität des Tumors belegt (d. h. sie waren in allen Bereichen des Tumors vorhanden), 59 Mutationen, die in einigen (aber nicht allen) Bereichen vorkamen, und 29 „private“ Mutationen, die nur in einem der Bereiche des Tumors auftraten. [ 46 ]
Felddefekte

Zur Beschreibung dieses Phänomens wurden verschiedene andere Begriffe verwendet , darunter Feldeffekt , Feldkanzerisierung und Feldkarzinogenese . Der Begriff Feldkanzerisierung wurde erstmals 1953 verwendet, um ein Epithelgebiet zu beschreiben, das durch (damals) weitgehend unbekannte Prozesse so prädisponiert wurde, dass es für die Entstehung von Krebs anfällig ist. [ 47 ] Seitdem werden die Begriffe Feldkanzerisierung und Felddefekt verwendet, um präkanzeröses Gewebe zu beschreiben, in dem mit hoher Wahrscheinlichkeit neue Tumore entstehen.
Felddefekte spielen eine wichtige Rolle bei der Krebsentstehung. [ 48 ] [ 49 ] Wie Rubin [ 50 ] jedoch betont, wurden die meisten Krebsstudien an klar definierten Tumoren in vivo oder an diskreten neoplastischen Herden in vitro durchgeführt. Es gibt jedoch Hinweise darauf, dass über 80 % der somatischen Mutationen in humanen kolorektalen Tumoren mit Mutatorphänotyp vor Beginn der terminalen klonalen Expansion auftreten. [ 51 ] Auch Vogelstein et al. [ 52 ] weisen darauf hin, dass mehr als die Hälfte der in Tumoren identifizierten somatischen Mutationen in einer präneoplastischen Phase (in einem Felddefekt) während des Wachstums scheinbar normaler Zellen auftraten. Ebenso könnten epigenetische Veränderungen in Tumoren in präneoplastischen Felddefekten entstanden sein.
Eine erweiterte Sichtweise des Feldeffekts wurde als „ätiologischer Feldeffekt“ bezeichnet, der nicht nur molekulare und pathologische Veränderungen in präneoplastischen Zellen umfasst, sondern auch Einflüsse exogener Umweltfaktoren und molekularer Veränderungen in der lokalen Mikroumgebung auf die neoplastische Evolution von der Tumorentstehung bis zum Tod des Patienten. [ 53 ]
Im Dickdarm entsteht ein Felddefekt wahrscheinlich durch natürliche Selektion einer mutierten oder epigenetisch veränderten Stammzelle an der Basis einer Darmkrypte auf der Darminnenfläche. Eine mutierte oder epigenetisch veränderte Stammzelle kann durch natürliche Selektion die anderen, benachbarten Stammzellen verdrängen. So kann ein Bereich mit abnormalem Gewebe entstehen. Die Abbildung in diesem Abschnitt zeigt ein Foto eines frisch resezierten und längs geöffneten Dickdarmsegments mit einem Dickdarmkarzinom und vier Polypen. Unterhalb des Fotos befindet sich eine schematische Darstellung der möglichen Entstehung eines großen Bereichs mutierter oder epigenetisch veränderter Zellen (gelb markiert). Innerhalb dieses ersten großen Bereichs (eines großen Zellklons) kann eine zweite Mutation oder epigenetische Veränderung auftreten, sodass eine bestimmte Stammzelle gegenüber anderen Stammzellen innerhalb des Bereichs einen Vorteil erlangt. Diese veränderte Stammzelle kann sich klonal ausbreiten und einen sekundären Bereich oder Subklon innerhalb des ursprünglichen Bereichs bilden. Dies wird im Diagramm durch vier kleinere, unterschiedlich farbige Bereiche innerhalb des großen gelben Ursprungsbereichs dargestellt. Innerhalb dieser neuen Bereiche (Subklone) kann sich der Prozess mehrfach wiederholen, was durch die noch kleineren Bereiche innerhalb der vier sekundären Bereiche (im Diagramm weiterhin unterschiedlich gefärbt) angezeigt wird, die sich klonal ausbreiten, bis Stammzellen entstehen, die entweder kleine Polypen oder eine bösartige Neubildung (Krebs) bilden.
Auf dem Foto ist ein offensichtlicher Gewebedefekt in diesem Dickdarmabschnitt zu sehen, der vier Polypen (6 mm, 5 mm und zwei 3 mm große) sowie einen Tumor mit einem Durchmesser von ca. 3 cm in seiner längsten Ausdehnung verursacht hat. Diese Neubildungen sind in der Abbildung unterhalb des Fotos durch vier kleine hellbraune Kreise (Polypen) und einen größeren roten Bereich (Tumor) gekennzeichnet. Der Tumor auf dem Foto trat im Blinddarm auf, wo der Dickdarm in den Dünndarm (markiert) mündet und wo sich der Blinddarm befindet (markiert). Das Fettgewebe auf dem Foto liegt außerhalb der äußeren Dickdarmwand. Der hier gezeigte Dickdarmabschnitt wurde längs aufgeschnitten, um die Innenfläche des Dickdarms freizulegen und den Tumor sowie die Polypen innerhalb der inneren Epithelschicht des Dickdarms darzustellen.
Wenn die Entstehung sporadischer Darmkrebserkrankungen im Allgemeinen durch die Bildung eines präneoplastischen Klons erfolgt, der sich durch natürliche Selektion ausbreitet, gefolgt von der Bildung interner Subklone innerhalb des ursprünglichen Klons und weiterer Sub-Subklone innerhalb dieser, dann sollten Darmkrebserkrankungen im Allgemeinen mit Bereichen zunehmender Anomalie einhergehen und diesen vorausgehen, die die Abfolge prämaligner Ereignisse widerspiegeln. Der ausgedehnteste Bereich der Anomalie (der äußerste gelbe unregelmäßige Bereich im Diagramm) würde das früheste Ereignis bei der Entstehung einer malignen Neubildung darstellen.
Bei der experimentellen Untersuchung spezifischer DNA-Reparaturdefekte in Tumoren zeigte sich, dass viele dieser Defekte auch in den umliegenden Gewebedefekten auftreten. Die folgende Tabelle enthält Beispiele, bei denen der DNA-Reparaturdefekt in einem Tumor auf eine epigenetische Veränderung zurückzuführen ist, sowie die etwas geringere Häufigkeit, mit der derselbe epigenetisch bedingte DNA-Reparaturdefekt im umgebenden Gewebedefekt gefunden wurde.
| Krebs | Gen | Häufigkeit bei Krebs | Häufigkeit bei Feldfehlern | Ref. |
|---|---|---|---|---|
| Kolorektal | MGMT | 46 % | 34 % | [ 34 ] |
| Kolorektal | MGMT | 47% | 11% | [ 36 ] |
| Kolorektal | MGMT | 70 % | 60% | [ 54 ] |
| Kolorektal | MSH2 | 13% | 5% | [ 36 ] |
| Kolorektal | ERCC1 | 100% | 40 % | [ 41 ] |
| Kolorektal | PMS2 | 88% | 50% | [ 41 ] |
| Kolorektal | XPF | 55% | 40 % | [ 41 ] |
| Kopf und Hals | MGMT | 54 % | 38 % | [ 55 ] |
| Kopf und Hals | MLH1 | 33 % | 25 % | [ 56 ] |
| Kopf und Hals | MLH1 | 31 % | 20 % | [ 57 ] |
| Magen | MGMT | 88% | 78 % | [ 58 ] |
| Magen | MLH1 | 73 % | 20 % | [ 59 ] |
| Speiseröhre | MLH1 | 77 %–100 % | 23 %–79 % | [ 60 ] |
Einige der kleinen Polypen im im Foto des eröffneten Kolonsegments sichtbaren Defekt könnten relativ gutartige Neubildungen sein. Von den Polypen mit einer Größe von weniger als 10 mm, die während einer Koloskopie gefunden und über einen Zeitraum von drei Jahren mittels wiederholter Koloskopien nachbeobachtet wurden, blieben 25 % unverändert in ihrer Größe, 35 % bildeten sich zurück oder verkleinerten sich, während 40 % an Größe zunahmen. [ 61 ]
Genominstabilität
Es ist bekannt, dass Krebszellen Genominstabilität oder einen Mutator-Phänotyp aufweisen . [ 62 ] Die proteinkodierende DNA im Zellkern macht etwa 1,5 % der gesamten genomischen DNA aus. [ 63 ] Innerhalb dieser proteinkodierenden DNA (dem sogenannten Exom ) können in einem durchschnittlichen Brust- oder Darmkrebs etwa 60 bis 70 proteinverändernde Mutationen vorkommen, von denen etwa 3 oder 4 als „Treibermutationen“ und die übrigen als „Passagiermutationen“ fungieren können. [ 52 ] Die durchschnittliche Anzahl an DNA-Sequenzmutationen im gesamten Genom (einschließlich nicht-proteinkodierender Regionen ) einer Brustkrebsgewebeprobe beträgt jedoch etwa 20.000. [ 64 ] In einer durchschnittlichen Melanomgewebeprobe (bei der Melanome eine höhere Exom- Mutationsfrequenz aufweisen [ 52 ] ) beträgt die Gesamtzahl der DNA-Sequenzmutationen etwa 80.000. [ 65 ] Dies steht im Gegensatz zur sehr niedrigen Mutationsfrequenz von etwa 70 neuen Mutationen im gesamten Genom zwischen den Generationen (Eltern zu Kindern) beim Menschen. [ 66 ] [ 67 ]
Die hohe Mutationsrate in den gesamten Nukleotidsequenzen von Tumoren deutet darauf hin, dass eine frühe Veränderung in den Felddefekten, die zu einem Tumor führen (z. B. gelber Bereich in der Abbildung in diesem Abschnitt), oft auf einen Defekt in der DNA-Reparatur zurückzuführen ist. Facista et al. [ 41 ] zeigten, dass die großen Felddefekte, die Darmkrebs umgeben (und sich beidseitig bis zu etwa 10 cm erstrecken) , häufig epigenetische Defekte in zwei oder drei DNA-Reparaturproteinen ( ERCC1 , XPF oder PMS2 ) über die gesamte Fläche des Felddefekts aufweisen. Defekte in der DNA-Reparatur führen zu erhöhten Mutationsraten. [ 42 ] [ 43 ] [ 44 ] Ein Defekt in der DNA-Reparatur selbst kann die Akkumulation von DNA-Schäden ermöglichen, und eine fehlerhafte Transläsionssynthese, die einige dieser Schäden überbrückt, kann zu Mutationen führen. Darüber hinaus kann die fehlerhafte Reparatur dieser akkumulierten DNA-Schäden Epimutationen hervorrufen. Diese neuen Mutationen oder Epimutationen können einen Proliferationsvorteil bieten und so einen Felddefekt erzeugen. Obwohl die Mutationen/Epimutationen in DNA-Reparaturgenen selbst keinen Selektionsvorteil bieten, können sie als Mitläufer in Zellen übertragen werden, wenn die Zellen zusätzliche Mutationen/Epimutationen erwerben, die einen proliferativen Vorteil bieten.
Etymologie
Der Begriff Neoplasma ist ein Synonym für Tumor . Neoplasie bezeichnet den Prozess der Entstehung von Neubildungen/Tumoren; dieser Prozess wird als neoplastischer Prozess bezeichnet . Das Wort neoplastisch selbst stammt aus dem Griechischen : neo bedeutet „neu“ und plastisch „geformt, gestaltet“.
Der Begriff Tumor leitet sich vom lateinischen Substantiv tumor („Schwellung“) ab, letztlich vom Verb tumēre („anschwellen“). Im britischen Commonwealth ist die Schreibweise tumour üblich, während in den USA üblicherweise tumor geschrieben wird .
Im medizinischen Sinne bezeichnete „Tumor“ traditionell eine abnorme Schwellung des Gewebes. Der römische medizinische Enzyklopädist Celsus ( ca. 30 v. Chr.–38 n. Chr.) beschrieb die vier Hauptsymptome einer akuten Entzündung als „Tumor“ , „Dolor “ , „Calor “ und „Rubor“ (Schwellung, Schmerz, erhöhte Wärme und Rötung). (Sein Werk „ De Medicina “ war das erste medizinische Buch, das 1478 nach der Erfindung des Buchdrucks mit beweglichen Lettern gedruckt wurde.)
Im heutigen Englisch wird das Wort Tumor oft synonym für eine zystische (flüssigkeitsgefüllte) Wucherung oder einen soliden Tumor (krebsartig oder gutartig) verwendet, [ 68 ] wobei andere Formen von Schwellungen oft als „Schwellungen“ bezeichnet werden . [ 69 ]
Verwandte Begriffe sind in der medizinischen Literatur weit verbreitet. Die Substantive „Tumefaktion“ und „Tumeszenz“ (abgeleitet vom Adjektiv „tumeszent“ ) [ 70 ] bezeichnen gängige medizinische Bezeichnungen für nicht-neoplastische Schwellungen. Diese Art von Schwellung wird meist durch Entzündungen infolge von Traumata, Infektionen oder anderen Faktoren verursacht.
Tumoren können jedoch auch durch andere Ursachen als ein übermäßiges Wachstum neoplastischer Zellen entstehen. Zysten (wie beispielsweise Talgdrüsenzysten) werden ebenfalls als Tumoren bezeichnet, obwohl sie keine neoplastischen Zellen enthalten. Dies entspricht der gängigen Praxis in der medizinischen Abrechnungsterminologie (insbesondere bei der Abrechnung einer Wucherung, deren Pathologie noch nicht geklärt ist).
Siehe auch
- Epidemiologie von Krebs
- Liste der biologischen Entwicklungsstörungen
- Pleomorphismus
- Somatische Evolution bei Krebs
Referenzen
- ^ „Neoplasma“ . Lexico UK English Dictionary . Oxford University Press . Archiviert vom Original am 28. April 2021.
- ^ „Neoplasma“ . Dictionary.com Unabridged (Online). nd
- Birbrair A, Zhang T, Wang ZM, Messi ML, Olson JD, Mintz A, Delbono O (Juli 2014). „ Perizyten vom Typ 2 sind an der normalen und tumoralen Angiogenese beteiligt“ . Am . J. Physiol., Cell Physiol . 307 (1): C25–38. doi : 10.1152/ajpcell.00084.2014 . PMC 4080181. PMID 24788248 .
- ^ Cooper GM (1992). Elemente des menschlichen Krebses . Boston: Jones and Bartlett Publishers. S. 16. ISBN 978-0-86720-191-8Die
- ^ Taylor, Elizabeth J. (2000). Dorlands illustriertes medizinisches Wörterbuch (29. Aufl.). Philadelphia: Saunders. S. 1184. ISBN 978-0-7216-6254-1Die
- ^ Stedmans medizinisches Wörterbuch (28. Aufl.). Philadelphia: Lippincott Williams & Wilkins. 2006. S. Neoplasma. ISBN 978-0-7817-3390-8Die
- ^ „II Neubildungen“ . Internationale statistische Klassifikation der Krankheiten und verwandter Gesundheitsprobleme, 10. Revision (ICD-10), Version für 2010. Weltgesundheitsorganisation. Archiviert vom Original am 24. Juli 2018. Abgerufen am 19. Juni 2014 .
- ^ a b Abrams, Gerald. „Neoplasia I“ . Archiviert vom Original am 31. Oktober 2015. Abgerufen am 23. Januar 2012 .
- ^ „Krebs – Aktivität 1 – Glossar, Seite 4 von 5“ . Archiviert vom Original am 9. Mai 2008. Abgerufen am 8. Januar 2008 .
- ^ „Medizinische Definition von Klon“ . Medterms . Archiviert vom Original am 25.10.2012 . Abgerufen am 10.02.2015 .
- ^ Lee ES, Locker J, Nalesnik M, Reyes J, Jaffe R, Alashari M, Nour B, Tzakis A, Dickman PS (Januar 1995). „Der Zusammenhang des Epstein-Barr-Virus mit glattmuskulären Tumoren nach Organtransplantation“ . N. Engl. J. Med . 332 (1): 19–25 . doi : 10.1056/NEJM199501053320104 . PMID 7990861 .
- ^ „Pankreaskrebs: Glossar der Begriffe“ . Archiviert vom Original am 05.06.2010 . Abgerufen am 08.01.2008 .
- ^ „Tumor“. Dorlands illustriertes medizinisches Wörterbuch (31. Aufl.). Saunders . 2007. ISBN 978-1-84972-348-0Die
- Mehrad , Mitra; Ning, Gang; Chen, Eleanor Y.; Mehra, Karishma K.; Crum, Christopher Paul (2010). „Ein Leitfaden für Pathologen zur Beurteilung benigner, präkanzeröser und maligner intraepithelialer Proliferationen im Eileiter“ . Advances in Anatomic Pathology . 17 (5): 293–302 . doi : 10.1097/PAP.0b013e3181ecdee1 . ISSN 1072-4109 . PMID 20733351. Archiviert vom Original am 30.01.2025.
- ^ Patel, Aisha (01.09.2020). „Benigne vs. Maligne Tumors“ . JAMA Oncology . 6 (9): 1488. doi : 10.1001/jamaoncol.2020.2592 . ISSN 2374-2437 . PMID 32729930. Archiviert vom Original am 14.01.2026.
- ^ Tammela, Tuomas; Sage, Julien (2020). „Untersuchung der Tumorheterogenität in Mausmodellen“ . Annual Review of Cancer Biology . 4 (1): 99–119 . doi : 10.1146/annurev-cancerbio-030419-033413 . PMC 8218894. PMID 34164589 .
- ^ Asashima M, Oinuma T, Meyer-Rochow VB (1987). „Tumoren bei Amphibien“. Zoological Science . 4 : 411–425 .
- ^ Ambrosi D, Mollica F (2002). „Zur Mechanik eines wachsenden Tumors“. International Journal of Engineering Science . 40 (12): 1297–316 . Bibcode : 2002IJES...40.1297A . doi : 10.1016/S0020-7225(02)00014-9 .
- ^ Volokh KY (September 2006). „Stresses in growing soft tissues“. Acta Biomater . 2 (5): 493–504 . doi : 10.1016/j.actbio.2006.04.002 . PMID 16793355 .
- ^ Norwood, SL (1990). „Fibrozystische Brusterkrankung. Ein Update und Überblick“. Journal of Obstetric, Gynecologic, and Neonatal Nursing . 19 (2): 116–121 . doi : 10.1111/j.1552-6909.1990.tb01629.x . ISSN 0884-2175 . PMID 2181087 .
- ^ Kowalski, Andrew; Okoye, Eloka (2025), „Brustzyste“ , StatPearls , Treasure Island (FL): StatPearls Publishing, PMID 32965867 , abgerufen am 14.02.2026
- ^ Dioufa, Nikolina; Baloch, Zubair W. (2026). „ Gekapselte Neoplasien der Schilddrüse“ . Virchows Archiv . 488 (1): 95–111 . doi : 10.1007/s00428-025-04375-0 . ISSN 1432-2307 . PMC 12876452. PMID 41413696 .
- ^ de los Santos, Edith T. (1990-07-01). „Zystische Schilddrüsenknoten“ . Archives of Internal Medicine . 150 (7): 1422. doi : 10.1001/archinte.1990.00390190082012 . ISSN 0003-9926 . Archiviert vom Original am 16.07.2022.
- ^ Kastan MB (2008). „DNA-Schadensreaktionen: Mechanismen und Rolle bei menschlichen Erkrankungen: GHA Clowes Memorial Award Lecture 2007“ . Mol. Cancer Res . 6 (4): 517–24 . doi : 10.1158/1541-7786.MCR-08-0020 . PMID 18403632 .
- ^ Ames BN, Shigenaga MK, Hagen TM (September 1993). „Oxidantien, Antioxidantien und die degenerativen Erkrankungen des Alterns“ . Proc Natl Acad Sci USA . 90 (17): 7915–22 . Bibcode : 1993PNAS...90.7915A . doi : 10.1073/pnas.90.17.7915 . PMC 47258. PMID 8367443 .
- ^ Cunningham FH, Fiebelkorn S, Johnson M, Meredith C (November 2011). „Eine neuartige Anwendung des Expositionsgrenzwertansatzes: Trennung von Schadstoffen im Tabakrauch“. Food Chem. Toxicol . 49 (11): 2921–33 . doi : 10.1016/j.fct.2011.07.019 . PMID 21802474 .
- ^ Kanavy HE, Gerstenblith MR (Dezember 2011). „Ultraviolette Strahlung und Melanom“. Semin Cutan Med Surg . 30 (4): 222–8 . doi : 10.1016/j.sder.2011.08.003 (inaktiv seit 3. Juni 2026). PMID 22123420 .
{{cite journal}}: CS1 Wartung: DOI inaktiv ab Juni 2026 ( Link ) - ^ Handa O, Naito Y , Yoshikawa T (2011). „Redoxbiologie und Magenkarzinogenese: Die Rolle von Helicobacter pylori“ . Redox Rep . 16 (1): 1–7 . doi : 10.1179/174329211X12968219310756 . PMC 6837368. PMID 21605492 .
- Bernstein C, Holubec H, Bhattacharyya AK, Nguyen H, Payne CM, Zaitlin B, Bernstein H (August 2011). „ Karzinogenität von Desoxycholat, einer sekundären Gallensäure“ . Arch. Toxicol . 85 (8): 863–71 . Bibcode : 2011ArTox..85..863B . doi : 10.1007/s00204-011-0648-7 . PMC 3149672. PMID 21267546 .
- ^ Katsurano M, Niwa T, Yasui Y, Shigematsu Y, Yamashita S, Takeshima H, Lee MS, Kim YJ, Tanaka T, Ushijima T (Januar 2012). „Frühe Entstehung eines epigenetischen Felddefekts in einem Maus-Colitis-Modell und nicht-essentielle Rollen von T- und B-Zellen bei der Induktion der DNA-Methylierung“ . Oncogene . 31 (3): 342–51 . doi : 10.1038/onc.2011.241 . PMID 21685942 .
- ^ Malkin D (April 2011). „Li-Fraumeni-Syndrom“ . Genes Cancer . 2 (4): 475–84 . doi : 10.1177/1947601911413466 . PMC 3135649. PMID 21779515 .
- ^ Lichtenstein P, Holm NV, Verkasalo PK, Iliadou A, Kaprio J, Koskenvuo M, Pukkala E, Skytthe A, Hemminki K (Juli 2000). „Umweltbedingte und erbliche Faktoren in der Krebsentstehung – Analysen von Zwillingskohorten aus Schweden, Dänemark und Finnland“ . N. Engl. J. Med . 343 (2): 78–85 . doi : 10.1056/NEJM200007133430201 . PMID 10891514 .
- Halford S, Rowan A, Sawyer E, Talbot I, Tomlinson I (Juni 2005). „O(6)-Methylguanin-Methyltransferase in kolorektalen Karzinomen: Nachweis von Mutationen, Expressionsverlust und schwache Assoziation mit G:C>A:T-Transitionen“ . Gut . 54 (6): 797–802 . doi : 10.1136/gut.2004.059535 . PMC 1774551. PMID 15888787 .
- ^ a b Shen L, Kondo Y, Rosner GL, Xiao L, Hernandez NS, Vilaythong J, Houlihan PS, Krouse RS, Prasad AR, Einspahr JG, Buckmeier J, Alberts DS, Hamilton SR, Issa JP (September 2005). „MGMT-Promotor-Methylierung und Felddefekt bei sporadischem Kolorektalkarzinom“ . J. Natl. Cancer Inst . 97 (18): 1330–8 . doi : 10.1093/jnci/dji275 . PMID 16174854 .
- ^ Psofaki V, Kalogera C, Tzambouras N, Stephanou D, Tsianos E, Seferiadis K, Kolios G (Juli 2010). „Promoter-Methylierungsstatus von hMLH1, MGMT und CDKN2A/p16 in kolorektalen Adenomen“ . World J. Gastroenterol . 16 (28): 3553–60 . doi : 10.3748 / wjg.v16.i28.3553 . PMC 2909555. PMID 20653064 .
- ^ a b c Lee KH, Lee JS, Nam JH, Choi C, Lee MC, Park CS, Juhng SW, Lee JH (Oktober 2011). „Promoter-Methylierungsstatus der hMLH1-, hMSH2- und MGMT-Gene bei kolorektalem Karzinom in Verbindung mit der Adenom-Karzinom-Sequenz“. Langenbecks Arch Surg . 396 (7): 1017–26 . doi : 10.1007/s00423-011-0812-9 . PMID 21706233. S2CID 8069716 .
- ^ Amatu A, Sartore-Bianchi A, Moutinho C, Belotti A, Bencardino K, Chirico G, Cassingena A, Rusconi F, Esposito A, Nichelatti M, Esteller M, Siena S (April 2013). „Hypermethylierung der Promotor-CpG-Insel des DNA-Reparaturenzyms MGMT sagt das klinische Ansprechen auf Dacarbazin in einer Phase-II-Studie bei metastasiertem Kolorektalkarzinom voraus“ . Clin. Cancer Res . 19 (8): 2265–72 . doi : 10.1158/1078-0432.CCR-12-3518 . PMID 23422094 .
- ^ Mokarram P, Zamani M, Kavousipour S, Naghibalhossaini F, Irajie C, Moradi Sarabi M, et al. (Mai 2013). „Unterschiedliche Muster der DNA-Methylierung der beiden verschiedenen O6-Methylguanin-DNA-Methyltransferase (O6-MGMT)-Promotorregionen in kolorektalen Karzinomen“. Mol . Biol. Rep . 40 (5): 3851–7 . doi : 10.1007/s11033-012-2465-3 . PMID 23271133. S2CID 18733871 .
- ^ Truninger K, Menigatti M, Luz J, Russell A, Haider R, Gebbers JO, et al. (Mai 2005). „Immunhistochemische Analyse zeigt hohe Häufigkeit von PMS2-Defekten bei kolorektalem Karzinom“ . Gastroenterology . 128 (5): 1160–71 . doi : 10.1053/j.gastro.2005.01.056 . PMID 15887099 .
- Valeri N, Gasparini P, Fabbri M, Braconi C, Veronese A, Lovat F, et al. (April 2010). „Modulation of mismatch repair and genomic stability by miR-155“ . Proc. Natl. Acad. Sci. USA . 107 (15): 6982–7 . Bibcode : 2010PNAS..107.6982V . doi : 10.1073/pnas.1002472107 . PMC 2872463. PMID 20351277 .
- Facista A, Nguyen H, Lewis C, Prasad AR, Ramsey L, Zaitlin B, et al. (2012). „ Defizitäre Expression von DNA-Reparaturenzymen im frühen Stadium der sporadischen Kolonkarzinomentwicklung“ . Genome Integr . 3 (1): 3. doi : 10.1186/2041-9414-3-3 . PMC 3351028. PMID 22494821 .
- ^ a b Narayanan L, Fritzell JA, Baker SM, Liskay RM, Glazer PM (April 1997). „Erhöhte Mutationsraten in verschiedenen Geweben von Mäusen mit einem Defekt im DNA-Mismatch-Reparaturgen Pms2“ . Proc . Natl. Acad. Sci. USA . 94 (7): 3122–7 . Bibcode : 1997PNAS...94.3122N . doi : 10.1073/pnas.94.7.3122 . PMC 20332. PMID 9096356 .
- ^ a b Hegan DC, Narayanan L, Jirik FR, Edelmann W, Liskay RM, Glazer PM (Dezember 2006). „ Unterschiedliche Muster genetischer Instabilität bei Mäusen mit Defizienz der DNA-Reparaturgene Pms2, Mlh1, Msh2, Msh3 und Msh6“ . Carcinogenesis . 27 (12): 2402–8 . doi : 10.1093/carcin/bgl079 . PMC 2612936. PMID 16728433 .
- ^ a b Tutt AN, van Oostrom CT, Ross GM, van Steeg H, Ashworth A (März 2002). „ Disruption of Brca2 increases the spontaneous mutation rate in vivo: synergism with ionizing radiation“ . EMBO Rep . 3 (3): 255–60 . doi : 10.1093/embo-reports/kvf037 . PMC 1084010. PMID 11850397 .
- ^ O'Hagan HM, Mohammad HP, Baylin SB (2008). Lee JT (Hrsg.). „Doppelstrangbrüche können die Genstilllegung und den SIRT1-abhängigen Beginn der DNA-Methylierung in einer exogenen Promotor-CpG-Insel initiieren“ . PLOS Genet . 4 (8) e1000155. doi : 10.1371/ journal.pgen.1000155 . PMC 2491723. PMID 18704159 .
- ^ Gerlinger M, Rowan AJ, Horswell S, Larkin J, Endesfelder D, Gronroos E, et al. (März 2012). „Intratumorale Heterogenität und verzweigte Evolution, aufgedeckt durch Multiregionen-Sequenzierung“ . N. Engl. J. Med . 366 (10): 883–92 . doi : 10.1056/NEJMoa1113205 . PMC 4878653. PMID 22397650 .
- ^ Slaughter DP, Southwick HW, Smejkal W (September 1953). „Feldkanzerisierung im mehrschichtigen Plattenepithel der Mundhöhle; klinische Implikationen multizentrischen Ursprungs“ . Cancer . 6 (5): 963–8 . doi : 10.1002/1097-0142(195309)6:5<963::AID-CNCR2820060515>3.0.CO;2- Q . PMID 13094644. S2CID 6736946 .
- Bernstein C, Bernstein H, Payne CM, Dvorak K, Garewal H (Februar 2008). „Felddefekte bei der Progression zu gastrointestinalen Tumoren“ . Cancer Lett . 260 ( 1–2 ): 1–10 . doi : 10.1016/j.canlet.2007.11.027 . PMC 2744582. PMID 18164807 .
- ^ Nguyen H, Loustaunau C, Facista A, Ramsey L, Hassounah N, Taylor H, Krouse R, Payne CM, Tsikitis VL, Goldschmid S, Banerjee B, Perini RF, Bernstein C (2010). „Mangelhaftes Pms2, ERCC1, Ku86, CcOI bei Felddefekten während des Fortschreitens zu Dickdarmkrebs“ . J Vis Exp (41): 1931. doi : 10.3791/1931 . PMC 3149991 . PMID 20689513 .
- ^ Rubin H (März 2011). „Felder und Feldkanzerisierung: Die präneoplastischen Ursprünge von Krebs: Asymptomatische hyperplastische Felder sind Vorläufer von Neoplasien, und ihre Progression zu Tumoren kann durch Sättigungsdichte in der Kultur verfolgt werden“. BioEssays . 33 (3): 224–31 . doi : 10.1002 / bies.201000067 . PMID 21254148. S2CID 44981539 .
- ^ Tsao JL, Yatabe Y, Salovaara R, Järvinen HJ, Mecklin JP, Aaltonen LA, Tavaré S, Shibata D (Februar 2000). „Genetische Rekonstruktion individueller kolorektaler Tumorgeschichten“ . Proc. Natl. Acad. Sci. USA . 97 (3): 1236–41 . Bibcode : 2000PNAS...97.1236T . doi : 10.1073/pnas.97.3.1236 . PMC 15581. PMID 10655514 .
- Vogelstein B , Papadopoulos N, Velculescu VE, Zhou S, Diaz LA , Kinzler KW (März 2013). „Cancer genome landscapes“ . Science . 339 ( 6127): 1546–58 . Bibcode : 2013Sci...339.1546V . doi : 10.1126/science.1235122 . PMC 3749880. PMID 23539594 .
- ^ Lochhead P, Chan AT, Nishihara R, Fuchs CS, Beck AH, Giovannucci E, Ogino S (2014). „ Ätiologischer Feldeffekt: Neubewertung des Feldeffektkonzepts in der Krebsprädisposition und -progression“ . Mod Pathol . 28 (1): 14–29 . doi : 10.1038/modpathol.2014.81 . PMC 4265316. PMID 24925058 .
- ^ Svrcek M, Buhard O, Colas C, Coulet F, Dumont S, Massaoudi I, et al. (November 2010). „Methylierungstoleranz aufgrund eines O6-Methylguanin-DNA-Methyltransferase (MGMT)-Felddefekts in der Dickdarmschleimhaut: ein initialer Schritt in der Entwicklung von Mismatch-Reparatur-defizienten kolorektalen Karzinomen“. Gut . 59 ( 11): 1516–26 . doi : 10.1136/gut.2009.194787 . PMID 20947886. S2CID 206950452 .
- ^ Paluszczak J, Misiak P, Wierzbicka M, Woźniak A, Baer-Dubowska W (Februar 2011). „Häufige Hypermethylierung von DAPK, RARbeta, MGMT, RASSF1A und FHIT bei Plattenepithelkarzinomen des Kehlkopfes und angrenzender normaler Schleimhaut“. Orale Onkol . 47 (2): 104– 7. doi : 10.1016/j.oraloncology.2010.11.006 . PMID 21147548 .
- Zuo C, Zhang H, Spencer HJ, Vural E, Suen JY, Schichman SA, Smoller BR, Kokoska MS, Fan CY (Oktober 2009). „Erhöhte Mikrosatelliteninstabilität und epigenetische Inaktivierung des hMLH1-Gens im Plattenepithelkarzinom des Kopf-Hals-Bereichs“. Otolaryngol Head Neck Surg . 141 (4): 484–90 . doi : 10.1016/j.otohns.2009.07.007 . PMID 19786217. S2CID 8357370 .
- ^ Tawfik HM, El-Maqsoud NM, Hak BH, El-Sherbiny YM (2011). „Plattenepithelkarzinom im Kopf-Hals-Bereich: Immunhistochemische Untersuchung der DNA-Reparatur und Hypermethylierung des hMLH1-Genpromotors“. Am J Otolaryngol . 32 (6): 528–36 . doi : 10.1016/j.amjoto.2010.11.005 . PMID 21353335 .
- ^ Zou XP, Zhang B, Zhang XQ, Chen M, Cao J, Liu WJ (November 2009). „Promoter-Hypermethylierung multipler Gene im frühen Magenadenokarzinom und in präkanzerösen Läsionen“. Hum. Pathol . 40 (11): 1534–42 . doi : 10.1016/j.humpath.2009.01.029 . PMID 19695681 .
- ^ Wani M, Afroze D, Makhdoomi M, Hamid I, Wani B, Bhat G, Wani R, Wani K (2012). „Promoter-Methylierungsstatus des DNA-Reparaturgens (hMLH1) bei Magenkarzinompatienten aus dem Kaschmir-Tal“ . Asian Pac. J. Cancer Prev . 13 (8): 4177–81 . doi : 10.7314/APJCP.2012.13.8.4177 . PMID 23098428 .
- ^ Agarwal A, Polineni R, Hussein Z, Vigoda I, Bhagat TD, Bhattacharyya S, Maitra A, Verma A (2012). „ Rolle epigenetischer Veränderungen in der Pathogenese des Barrett-Ösophagus und des Ösophagusadenokarzinoms“ . Int J Clin Exp Pathol . 5 (5): 382–96 . PMC 3396065. PMID 22808291 .
- ^ Hofstad B, Vatn MH, Andersen SN, Huitfeldt HS, Rognum T, Larsen S, Osnes M (September 1996). „ Wachstum von kolorektalen Polypen: Wiederentdeckung und Bewertung nicht resektierter Polypen über einen Zeitraum von drei Jahren“ . Gut . 39 (3): 449–56 . doi : 10.1136/gut.39.3.449 . PMC 1383355. PMID 8949653 .
- ^ Schmitt MW, Prindle MJ, Loeb LA (September 2012). „Implikationen der genetischen Heterogenität bei Krebs“ . Ann. NY Acad. Sci . 1267 (1): 110–116 . Bibcode : 2012NYASA1267..110S . doi : 10.1111 / j.1749-6632.2012.06590.x . PMC 3674777. PMID 22954224 .
- ^ Lander ES, Linton LM, Birren B, Nusbaum C, Zody MC, Baldwin J, Devon K, Dewar K, Doyle M, FitzHugh W, et al. (Februar 2001). „Erste Sequenzierung und Analyse des menschlichen Genoms“ ( PDF) . Nature . 409 (6822): 860–921 . Bibcode : 2001Natur.409..860L . doi : 10.1038/35057062 . PMID 11237011. Archiviert vom Original am 29.07.2020 . Abgerufen am 02.09.2019 .
- ^ Yost SE, Smith EN, Schwab RB, Bao L, Jung H, Wang X, Voest E, Pierce JP, Messer K, Parker BA, Harismendy O, Frazer KA (August 2012). „Identifizierung hochkonfidenter somatischer Mutationen in der Gesamtgenomsequenz formalinfixierter Brustkrebsgewebeproben“ . Nucleic Acids Res . 40 (14): e107. doi : 10.1093 / nar/gks299 . PMC 3413110. PMID 22492626 .
- ^ Berger MF, Hodis E, Heffernan TP, Deribe YL, Lawrence MS, Protopopov A, et al. (Mai 2012). „Melanom-Genomsequenzierung deckt häufige PREX2-Mutationen auf“ . Nature . 485 ( 7399): 502–6 . Bibcode : 2012Natur.485..502B . doi : 10.1038/nature11071 . PMC 3367798. PMID 22622578 .
- ^ Roach JC, Glusman G, Smit AF, Huff CD, Hubley R, Shannon PT, et al. (April 2010). „ Analyse der genetischen Vererbung in einem Familienquartett mittels Ganzgenomsequenzierung“ . Science . 328 (5978): 636–9 . Bibcode : 2010Sci...328..636R . doi : 10.1126/science.1186802 . PMC 3037280. PMID 20220176 .
- ^ Campbell CD, Chong JX, Malig M, Ko A, Dumont BL, Han L, et al. (November 2012). „Schätzung der menschlichen Mutationsrate mittels Autozygosität in einer Gründerpopulation“ . Nat. Genet . 44 (11): 1277–81 . doi : 10.1038/ng.2418 . PMC 3483378. PMID 23001126 .
- ^ Tumor in der medizinischen Enzyklopädie
- ^ „Schwellung“ . MedlinePlus Medizinische Enzyklopädie . 14. Oktober 2012.
- ^ „Tumeszenz“ . Oxford English Dictionary (Online-Ausgabe). Oxford University Press.(Abonnement oder Mitgliedschaft in einer teilnehmenden Institution erforderlich.)