| Zellbiologie | |
|---|---|
| Diagramm der Tierzelle | |
 Bestandteile einer typischen Tierzelle:
|
Ein Ribosom ( / ˈ raɪ b ə z oʊ m , - soʊ m / ) ist ein Ribonukleoproteinpartikel , das in allen Zellen , sowohl prokaryotischen als auch eukaryotischen , vorkommt und für die Proteinsynthese verantwortlich ist . Es fungiert als molekulare Maschine bei der Translation von mRNA- Strängen und der Produktion von Proteinen . Ein Ribosom verknüpft Aminosäuren in der durch die Codons der mRNA-Moleküle vorgegebenen Reihenfolge zu Polypeptidketten . Es besteht aus einer großen und einer kleinen Untereinheit, die jeweils aus einem oder mehreren ribosomalen RNA- Molekülen und zahlreichen ribosomalen Proteinen bestehen . Die Ribosomen und die assoziierten Moleküle werden auch als Translationsapparat bezeichnet .
Die Ribosomenbiogenese ist der Prozess der Ribosomenbildung. Es handelt sich um einen energieaufwendigen, dynamischen Prozess, der die Synthese von etwa 200 Proteinen für die Prozessierung ribosomaler RNAs und deren Zusammenbau mit ribosomalen Proteinen zu den Ribosomenuntereinheiten erfordert.
Überblick
Die RNA -Sequenz , die die Aminosäuresequenz eines Proteins codiert, wird in eine Messenger-RNA (mRNA)-Kette transkribiert. Ribosomen binden an die mRNA-Moleküle und bestimmen anhand der Nukleotidsequenz der RNA die Aminosäuresequenz, die zur Proteinsynthese benötigt wird. Aminosäuren werden ausgewählt und von Transfer-RNA (tRNA)-Molekülen zum Ribosom transportiert. Diese Moleküle dringen in das Ribosom ein und binden über eine Anticodon -Stamm-Schleife an die mRNA-Kette . Für jedes codierende Triplett ( Codon ) in der mRNA gibt es eine spezifische Transfer-RNA, die das exakt passende Anticodon aufweisen muss und die korrekte Aminosäure für den Einbau in die wachsende Polypeptidkette transportiert . Nach der Proteinsynthese kann sich das Protein falten und eine funktionelle dreidimensionale Struktur bilden . [ 1 ] [ 2 ]
Die Translation, also die Synthese von Proteinen aus ihren Bausteinen, erfolgt in vier Phasen: Initiation, Elongation, Termination und Ribosomen-Recycling. [ 3 ] Das Startcodon aller mRNA-Moleküle hat die Sequenz AUG. Das Stoppcodon ist entweder UAA, UAG oder UGA; da es keine tRNA-Moleküle gibt, die diese Codons erkennen, signalisiert das Ribosom das Ende der Translation. [ 4 ] Sobald ein Ribosom ein mRNA-Molekül abgelesen hat, trennen sich die beiden Untereinheiten und werden üblicherweise abgebaut, können aber wiederverwendet werden. Ribosomen sind Enzyme , sogenannte Ribozyme , da die katalytische Peptidyltransferase- Aktivität, die Aminosäuren miteinander verknüpft, von der ribosomalen RNA katalysiert wird. [ 5 ]
Ribosomen von Bakterien , Archaeen und Eukaryoten (im Drei-Domänen-System ) ähneln einander bemerkenswert stark, was auf einen gemeinsamen Ursprung hindeutet. Sie unterscheiden sich in Größe, Sequenz, Struktur und dem Verhältnis von Protein zu RNA. Aufgrund dieser Strukturunterschiede können manche Antibiotika Bakterien abtöten, indem sie deren Ribosomen hemmen, während menschliche Ribosomen unbeeinträchtigt bleiben. In allen Domänen kann sich ein Polysom aus zwei oder mehr Ribosomen gleichzeitig entlang einer einzelnen mRNA-Kette bewegen, wobei jedes Ribosom eine spezifische Sequenz abliest und das entsprechende Proteinmolekül produziert.
Die mitochondrialen Ribosomen (Mitoribosomen) eukaryotischer Zellen unterscheiden sich von anderen Ribosomen. Funktionell ähneln sie denen von Bakterien, was den evolutionären Ursprung der Mitochondrien als endosymbiontische Bakterien widerspiegelt. [ 6 ] [ 7 ]
Entdeckung
Ribosomen wurden Mitte der 1950er Jahre erstmals als dichte Partikel oder Granula von dem rumänisch-amerikanischen Zellbiologen George Emil Palade mithilfe eines Elektronenmikroskops beobachtet . [ 8 ] Aufgrund ihrer granulären Struktur wurden sie zunächst Palade-Granula genannt. [ 9 ] Der Begriff „Ribosom“ wurde 1958 von Howard M. Dintzis vorgeschlagen: [ 10 ]
Im Verlauf des Symposiums wurde eine semantische Schwierigkeit deutlich. Für einige Teilnehmer bezeichneten „Mikrosomen“ Ribonukleoproteinpartikel der Mikrosomenfraktion, die mit anderem Protein- und Lipidmaterial verunreinigt waren; für andere bestanden die Mikrosomen aus Protein und Lipid, die mit Partikeln verunreinigt waren. Der Ausdruck „mikrosomale Partikel“ erschien unzureichend, und „Ribonukleoproteinpartikel der Mikrosomenfraktion“ war zu umständlich. Während des Treffens wurde der Begriff „Ribosom“ vorgeschlagen, der einen sehr passenden Namen und einen angenehmen Klang hat. Die gegenwärtige Verwirrung ließe sich beseitigen, wenn „Ribosom“ zur Bezeichnung von Ribonukleoproteinpartikeln mit einer Größe von 35 bis 100 µm verwendet würde .
— Albert Claude, Mikrosomale Partikel und Proteinsynthese [ 11 ]
Albert Claude , Christian de Duve und George Emil Palade erhielten 1974 gemeinsam den Nobelpreis für Physiologie oder Medizin für die Entdeckung des Ribosoms. [ 12 ] Der Nobelpreis für Chemie 2009 wurde Venkatraman Ramakrishnan , Thomas A. Steitz und Ada E. Yonath für die Aufklärung der detaillierten Struktur und des Mechanismus des Ribosoms verliehen . [ 13 ]
Struktur

Ein Ribosom ist ein Ribonukleoproteinpartikel , das aus Komplexen ribosomaler RNAs und Proteinen besteht und in zwei ribosomale Untereinheiten, eine große und eine kleine, angeordnet ist. Ribosomen sind komplexe molekulare Maschinen, die in allen Zellen, sowohl prokaryotischen als auch eukaryotischen , vorkommen . Die ribosomalen Untereinheiten von Prokaryoten und Eukaryoten sind einander sehr ähnlich. [ 14 ]
Ein Ribosom besteht größtenteils aus spezialisierter, nicht-kodierender ribosomaler RNA (rRNA) sowie Dutzenden verschiedener ribosomaler Proteine (die Anzahl variiert leicht zwischen den Spezies). Die ribosomalen Proteine und die rRNA sind in zwei verschiedene ribosomale Untereinheiten angeordnet, eine große und eine kleine. Die Untereinheiten passen zusammen, umschließen einen mRNA-Strang und arbeiten zusammen, um die mRNA während der Proteinbiosynthese in eine Polypeptidkette zu übersetzen . [ 15 ]
Prokaryoten
Bakterien
Bakterielle Ribosomen haben einen Durchmesser von etwa 20 nm (200 Å ) und bestehen zu 65 % aus rRNA und zu 35 % aus ribosomalen Proteinen . [ 16 ] Eukaryotische Ribosomen weisen einen Durchmesser zwischen 25 und 30 nm (250–300 Å) auf, mit einem rRNA-Protein-Verhältnis nahe 1. [ 17 ] Kristallographische Untersuchungen [ 18 ] haben gezeigt, dass sich keine ribosomalen Proteine in der Nähe des Reaktionszentrums für die Polypeptidsynthese befinden. Dies deutet darauf hin, dass die Proteinkomponenten der Ribosomen nicht direkt an der Katalyse der Peptidbindung beteiligt sind, sondern vielmehr als Gerüst fungieren, das die Fähigkeit der rRNA zur Proteinsynthese verstärken kann. [ 19 ]

Die Maßeinheit zur Beschreibung der ribosomalen Untereinheiten und der rRNA-Fragmente ist die Svedberg-Einheit (STU) , ein Maß für die Sedimentationsgeschwindigkeit bei der Zentrifugation und nicht für die Größe. Dies erklärt, warum die Fragmentbezeichnungen nicht übereinstimmen: Beispielsweise bestehen bakterielle 70S-Ribosomen aus 50S- und 30S-Untereinheiten.
Prokaryoten besitzen 70S - Ribosomen, die jeweils aus einer kleinen ( 30S ) und einer großen ( 50S ) Untereinheit bestehen. E. coli beispielsweise besitzt eine 16S- RNA-Untereinheit (bestehend aus 1540 Nukleotiden), die an 21 Proteine gebunden ist. Die große Untereinheit setzt sich aus einer 5S -RNA-Untereinheit (120 Nukleotide), einer 23S-RNA-Untereinheit (2900 Nukleotide) und 31 Proteinen zusammen . [ 14 ]
Ribosom von E. coli (einem Bakterium) [ 21 ] : 962 Ribosom Untereinheit rRNAs r-Proteine 70er Jahre 50er Jahre 23S (2904 nt ) 31 5S (120 nt) 30S 16S (1542 nt) 21
Die Affinitätsmarkierung der tRNA-Bindungsstellen am Ribosom von E. coli ermöglichte die Identifizierung von A- und P-Stellen-Proteinen, die höchstwahrscheinlich mit der Peptidyltransferase-Aktivität assoziiert sind; [ 5 ] die markierten Proteine sind L27, L14, L15, L16 und L2; mindestens L27 befindet sich an der Donorstelle, wie E. Collatz und A. P. Czernilofsky gezeigt haben. [ 22 ] [ 23 ] Weitere Untersuchungen haben gezeigt, dass die Proteine S1 und S21 in Assoziation mit dem 3′-Ende der 16S ribosomalen RNA an der Initiation der Translation beteiligt sind. [ 24 ]
Archaeen
Archaeen- Ribosomen werden üblicherweise als ähnlich groß wie bakterielle Ribosomen beschrieben; es handelt sich um ein 70S-Ribosom, bestehend aus einer großen 50S- und einer kleinen 30S-Untereinheit. [ 25 ] Die rRNA-Ketten werden ebenfalls häufig als 16S, 23S und 5S bezeichnet, obwohl nur wenige (wenn überhaupt) neuere Studien ihre Sedimentationskoeffizienten gemessen haben . [ 26 ] Auf Sequenz- und Strukturebene sind sie jedoch eukaryotischen Ribosomen deutlich ähnlicher als bakteriellen. Jedes zusätzliche ribosomale Protein, das Archaeen im Vergleich zu Bakterien aufweisen, besitzt ein eukaryotisches Gegenstück, während zwischen Archaeen und Bakterien keine solche Verwandtschaft besteht. [ 27 ] [ 28 ] [ 29 ]
Ribosom von Pyrococcus furiosus (einem Archaebakterium) [ 30 ] [ 31 ] Ribosom Untereinheit rRNAs r-Proteine 70er Jahre 50er Jahre 23S (3049 nt ) 42 5S (120 nt) 30S 16S (1495 nt) 26
Eukaryoten
Eukaryotische Zellen besitzen 80S-Ribosomen im Zytosol, die jeweils aus einer kleinen (40S) und einer großen (60S) Untereinheit bestehen . Die 40S-Untereinheit enthält eine 18S-RNA (1900 Nukleotide) und 33 Proteine. [ 32 ] [ 33 ] Die große Untereinheit setzt sich aus einer 5S-RNA (120 Nukleotide), einer 28S-RNA (4700 Nukleotide), einer 5,8S-RNA (160 Nukleotide) und 49 Proteinen zusammen. [ 14 ] [ 32 ] [ 34 ]
eukaryontische zytosolische Ribosomen ( R. norvegicus ) [ 21 ] : 65 Ribosom Untereinheit rRNAs r-Proteine 80er Jahre 60er Jahre 28S (4718 nt) 49 5,8S (160 nt) 5S (120 nt) 40S 18S (1874 nt) 33
Im Jahr 1977 veröffentlichte Czernilofsky Forschungsergebnisse, in denen er mithilfe von Affinitätsmarkierung tRNA-Bindungsstellen an Rattenleberribosomen identifizierte. Mehrere Proteine, darunter L32/33, L36, L21, L23, L28/29 und L13, wurden als im oder in der Nähe des Peptidyltransferasezentrums lokalisiert identifiziert . [ 35 ]
Plastoribosomen und Mitoribosomen
Bei Eukaryoten kommen Ribosomen in Mitochondrien (manchmal auch Mitoribosomen genannt ) und in Plastiden wie Chloroplasten (auch Plastoribosomen genannt) vor. Sie bestehen aus großen und kleinen Untereinheiten, die zusammen mit Proteinen ein 70S-Partikel bilden. [ 14 ] Diese Ribosomen ähneln denen von Bakterien, und man geht davon aus, dass diese Organellen aus symbiotischen Bakterien entstanden sind . [ 14 ] Chloroplasten-Ribosomen sind den bakteriellen Ribosomen ähnlicher als mitochondriale. Viele Abschnitte der ribosomalen RNA in den Mitochondrien sind verkürzt und im Fall der 5S rRNA bei Tieren und Pilzen durch andere Strukturen ersetzt. [ 36 ] Insbesondere Leishmania tarentolae besitzt einen minimalen Satz mitochondrialer rRNA. [ 37 ] Im Gegensatz dazu weisen pflanzliche Mitoribosomen im Vergleich zu Bakterien sowohl eine verlängerte rRNA als auch zusätzliche Proteine auf, insbesondere viele Pentatricopetid-Repeat-Proteine. [ 38 ]
Die Cryptomonaden und Chlorarachniophyten- Algen können ein Nukleomorph enthalten , das einem rudimentären eukaryotischen Zellkern ähnelt. [ 39 ] Eukaryotische 80S-Ribosomen können in dem Kompartiment vorhanden sein, das das Nukleomorph enthält.
Die Unterschiede nutzen
Die Unterschiede zwischen bakteriellen und eukaryotischen Ribosomen werden von Pharmazeuten genutzt, um Antibiotika zu entwickeln , die bakterielle Infektionen bekämpfen, ohne die Zellen des Infizierten zu schädigen. Aufgrund ihrer unterschiedlichen Struktur sind bakterielle 70S-Ribosomen anfällig für diese Antibiotika, während eukaryotische 80S-Ribosomen resistent sind. [ 40 ] Obwohl Mitochondrien Ribosomen besitzen, die denen von Bakterien ähneln, werden sie von diesen Antibiotika nicht beeinträchtigt, da sie von einer Doppelmembran umgeben sind, die das Eindringen der Antibiotika in das Organell erschwert . [ 41 ] Ein bemerkenswertes Gegenbeispiel ist das Antineoplastikum Chloramphenicol , das sowohl bakterielle 50S- als auch eukaryotische mitochondriale 50S-Ribosomen hemmt. [ 42 ] Ribosomen in Chloroplasten sind jedoch anders: Antibiotikaresistenz in ribosomalen Proteinen der Chloroplasten ist ein Merkmal, das mittels Gentechnik als Marker eingeführt werden muss. [ 43 ]
Gemeinsame Eigenschaften
Die verschiedenen Ribosomen besitzen eine gemeinsame Kernstruktur, die trotz der großen Größenunterschiede sehr ähnlich ist. Ein Großteil der RNA ist in verschiedene tertiäre Strukturmotive , beispielsweise Pseudoknoten mit koaxialer Stapelung , hochgradig organisiert . Die zusätzliche RNA in den größeren Ribosomen liegt in mehreren langen, zusammenhängenden Insertionen vor [ 44 ] , die Schleifen um die Kernstruktur bilden, ohne diese zu stören oder zu verändern. [ 14 ] Die gesamte katalytische Aktivität des Ribosoms wird von der RNA getragen ; die Proteine befinden sich auf der Oberfläche und scheinen die Struktur zu stabilisieren. [ 14 ]
Hochauflösende Struktur

Die allgemeine Molekularstruktur des Ribosoms ist seit den frühen 1970er Jahren bekannt. Anfang der 2000er Jahre wurde die Struktur mit hoher Auflösung im Bereich von wenigen Ångström aufgeklärt . [ 46 ]
Die ersten Arbeiten, die die Struktur des Ribosoms in atomarer Auflösung beschrieben, wurden Ende 2000 nahezu zeitgleich veröffentlicht. Die 50S-Untereinheit (große prokaryotische Untereinheit) wurde aus dem Archaebakterium Haloarcula marismortui [ 45 ] und dem Bakterium Deinococcus radiodurans bestimmt , die Struktur der 30S-Untereinheit aus dem Bakterium Thermus thermophilus [ 20 , 47 ] . Diese Strukturuntersuchungen wurden 2009 mit dem Nobelpreis für Chemie ausgezeichnet. Im Mai 2001 wurden diese Koordinaten verwendet, um das gesamte 70S-Partikel von T. thermophilus mit einer Auflösung von 5,5 Å zu rekonstruieren [ 48 ] .
Im November 2005 wurden zwei Arbeiten mit Strukturen des 70S-Ribosoms von Escherichia coli veröffentlicht . Die Strukturen eines leeren Ribosoms wurden mittels Röntgenkristallographie mit einer Auflösung von 3,5 Å bestimmt . [ 49 ] Zwei Wochen später wurde eine Struktur basierend auf Kryo-Elektronenmikroskopie publiziert, [ 50 ] die das Ribosom mit einer Auflösung von 11–15 Å beim Transport eines neu synthetisierten Proteinstrangs in den Proteinkanal zeigt.
Die ersten Atomstrukturen des Ribosoms im Komplex mit tRNA- und mRNA- Molekülen wurden von zwei unabhängigen Forschungsgruppen mittels Röntgenkristallographie mit Auflösungen von 2,8 Å [ 51 ] bzw. 3,7 Å [ 52 ] aufgeklärt . Diese Strukturen ermöglichen die detaillierte Untersuchung der Wechselwirkungen des Ribosoms von Thermus thermophilus mit mRNA und mit an klassischen ribosomalen Bindungsstellen gebundenen tRNAs . Kurz darauf wurden Wechselwirkungen des Ribosoms mit langen mRNAs, die Shine-Dalgarno-Sequenzen enthalten, mit einer Auflösung von 4,5–5,5 Å visualisiert [ 53 ] . Im Jahr 2023 wurde in einer Kryo-Elektronenmikroskopie-Studie die Struktur des 70S-Ribosoms von Escherichia coli im Translationszustand mit einer Auflösung von 1,55 Å beschrieben. Diese Struktur lieferte nahezu atomare Details zu rRNA-Modifikationen, tRNA-mRNA-Wechselwirkungen und Ionenkoordination. Die hochauflösende Karte ermöglichte die Identifizierung von ribosomalen Polymorphismusstellen und die Visualisierung transienter chimärer Hybridzustände, die mit der tRNA-Translokation assoziiert sind, mit einer Auflösung von etwa 2 Å. Diese Ergebnisse verbesserten das strukturelle Verständnis der funktionellen Regionen des Ribosoms und lieferten wertvolle Erkenntnisse für die Entwicklung von Antibiotika. [ 54 ]
Im Jahr 2011 wurde die erste vollständige Atomstruktur des eukaryotischen 80S-Ribosoms aus der Hefe Saccharomyces cerevisiae mittels Kristallographie aufgeklärt. [ 32 ] Das Modell offenbart die Architektur eukaryotenspezifischer Elemente und deren Interaktion mit dem universell konservierten Kern. Gleichzeitig wurde das vollständige Modell einer eukaryotischen 40S-Ribosomenstruktur aus Tetrahymena thermophila veröffentlicht. Es beschreibt die Struktur der 40S-Untereinheit sowie deren Interaktion mit eIF1 während der Translationsinitiation . [ 33 ] Ebenso wurde die Struktur der eukaryotischen 60S-Untereinheit aus Tetrahymena thermophila im Komplex mit eIF6 bestimmt . [ 34 ] Darüber hinaus lieferten hochauflösende Kryo-EM-Strukturen eines thermophilen eukaryotischen 80S-Ribosoms, die in zwei Rotationszuständen mit Auflösungen von ~2,9 Å und ~3,0 Å aufgenommen wurden, atomistische Details des eukaryotischen Translokationsmechanismus und der Konformationsdynamik von eEF2 während der GTP-Hydrolyse. [ 55 ]
Funktion
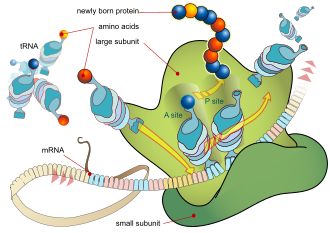
Ribosomen sind winzige Partikel, die aus RNA und assoziierten Proteinen bestehen und der Proteinsynthese dienen. Proteine sind für viele Zellfunktionen unerlässlich, beispielsweise für die Reparatur von Schäden oder die Steuerung chemischer Prozesse. Ribosomen können frei im Zytoplasma vorliegen oder an das raue endoplasmatische Retikulum gebunden sein . Ihre Hauptfunktion besteht darin, den genetischen Code in eine Aminosäuresequenz zu übersetzen und aus Aminosäuremonomeren Proteinpolymere aufzubauen.
Ribosomen fungieren als Katalysatoren in zwei äußerst wichtigen biologischen Prozessen, der Peptidyltransferase und der Peptidylhydrolyse.
Zusammenfassend haben Ribosomen zwei Hauptfunktionen: die Entschlüsselung der genetischen Information und die Bildung von Peptidbindungen. Diese beiden Funktionen sind in den ribosomalen Untereinheiten lokalisiert. Jede Untereinheit besteht aus einer oder mehreren rRNAs und mehreren ribosomalen Proteinen (r-Proteinen). Die kleine Untereinheit (30S bei Bakterien und Archaeen, 40S bei Eukaryoten) ist für die Entschlüsselung zuständig, während die große Untereinheit (50S bei Bakterien und Archaeen, 60S bei Eukaryoten) die Bildung von Peptidbindungen katalysiert, die als Peptidyltransferase-Aktivität bezeichnet wird. Die bakterielle (und archaische) kleine Untereinheit enthält die 16S rRNA und 21 r-Proteine ( Escherichia coli ), wohingegen die eukaryotische kleine Untereinheit die 18S rRNA und 32 r-Proteine enthält (Saccharomyces cerevisiae, wobei die Anzahl zwischen den Arten variiert). Die bakterielle große Untereinheit enthält die 5S- und 23S-rRNAs sowie 34 ribosomale Proteine ( E. coli ), während die eukaryotische große Untereinheit die 5S-, 5,8S- und 25S/28S-rRNAs sowie 46 ribosomale Proteine enthält ( S. cerevisiae ; die genauen Zahlen variieren zwischen den Arten). [ 56 ]
Übersetzung

Ribosomen sind die Orte der Proteinbiosynthese , dem Prozess der Übersetzung von mRNA in Protein . Die mRNA besteht aus einer Reihe von Codons , die vom Ribosom decodiert werden, um das Protein herzustellen. Anhand der mRNA als Vorlage durchläuft das Ribosom jedes Codon (3 Nukleotide ) der mRNA und paart es mit der passenden Aminosäure, die von einer Aminoacyl-tRNA bereitgestellt wird . Die Aminoacyl-tRNA enthält an einem Ende ein komplementäres Anticodon und am anderen Ende die passende Aminosäure. Für die schnelle und präzise Erkennung der passenden tRNA nutzt das Ribosom große Konformationsänderungen ( Konformationskorrektur ). [ 57 ] Die kleine ribosomale Untereinheit, die typischerweise an eine Aminoacyl-tRNA mit der ersten Aminosäure Methionin gebunden ist , bindet an ein AUG-Codon auf der mRNA und rekrutiert die große ribosomale Untereinheit. Das Ribosom besitzt drei RNA-Bindungsstellen, A, P und E. Die A-Stelle bindet eine Aminoacyl-tRNA oder Terminationsfreisetzungsfaktoren; [ 58 ] [ 59 ] die P-Stelle bindet eine Peptidyl-tRNA (eine an die Polypeptidkette gebundene tRNA); und die E-Stelle (Exit-Stelle) bindet eine freie tRNA. Die Proteinbiosynthese beginnt mit dem Startcodon AUG nahe dem 5′-Ende der mRNA. Die mRNA bindet zunächst an die P-Stelle des Ribosoms. Das Ribosom erkennt das Startcodon mithilfe der Shine-Dalgarno-Sequenz der mRNA bei Prokaryoten und der Kozak-Box bei Eukaryoten.
Obwohl die Katalyse der Peptidbindung die C2- Hydroxylgruppe des P-Stellen -Adenosins der RNA in einem Protonenshuttle-Mechanismus involviert , werden andere Schritte der Proteinsynthese (wie die Translokation) durch Konformationsänderungen des Proteins hervorgerufen. Da ihr katalytischer Kern aus RNA besteht, werden Ribosomen als „ Ribozyme “ klassifiziert [ 60 ] , und es wird angenommen, dass sie Überreste der RNA-Welt sein könnten [ 61 ] .

In Abbildung 5 lagern sich beide ribosomalen Untereinheiten ( kleine und große ) am Startcodon (am 5'-Ende der mRNA ) zusammen. Das Ribosom verwendet tRNA , die zum aktuellen Codon (Triplett) auf der mRNA passt, um eine Aminosäure an die Polypeptidkette anzuhängen. Dies geschieht für jedes Triplett auf der mRNA, während sich das Ribosom zum 3'-Ende der mRNA bewegt. In Bakterienzellen arbeiten üblicherweise mehrere Ribosomen parallel an einer einzigen mRNA und bilden so ein sogenanntes Polyribosom oder Polysom .
Cotranslationale Faltung
Es ist bekannt, dass das Ribosom aktiv an der Proteinfaltung beteiligt ist . [ 62 ] [ 63 ] Die so erhaltenen Strukturen sind in der Regel identisch mit denen, die bei der chemischen Proteinfaltung entstehen; die Wege zum Endprodukt können jedoch unterschiedlich sein. [ 64 ] [ 65 ] In manchen Fällen ist das Ribosom entscheidend für die Ausbildung der funktionsfähigen Proteinform. Beispielsweise beruht einer der möglichen Faltungsmechanismen stark verknoteter Proteine darauf, dass das Ribosom die Kette durch die angehängte Schleife schiebt. [ 66 ]
Hinzufügung von translationsunabhängigen Aminosäuren
Das Vorhandensein des ribosomalen Qualitätskontrollproteins Rqc2 ist mit einer mRNA-unabhängigen Proteinverlängerung assoziiert. [ 67 ] [ 68 ] Diese Verlängerung resultiert aus der ribosomalen Anlagerung von CAT-Schwänzen (mittels von Rqc2 transportierter tRNAs) : Ribosomen verlängern das C - Terminus eines blockierten Proteins mit zufälligen, translationsunabhängigen Sequenzen von Alaninen und Threoninen . [ 69 ] [ 70 ]
Ribosomen-Standorte
Ribosomen werden in „freie“ und „membrangebundene“ Ribosomen unterteilt. [ 71 ] Freie und membrangebundene Ribosomen unterscheiden sich lediglich in ihrer räumlichen Verteilung; ihre Struktur ist identisch. Ob ein Ribosom frei oder membrangebunden vorliegt, hängt vom Vorhandensein einer ER-Targeting-Sequenz auf dem synthetisierten Protein ab. So kann ein einzelnes Ribosom bei der Synthese eines Proteins membrangebunden sein, bei der Synthese eines anderen Proteins jedoch frei im Zytosol vorliegen.
Ribosomen werden manchmal als Organellen bezeichnet , doch der Begriff Organelle wird häufig nur für subzelluläre Komponenten verwendet, die eine Phospholipidmembran besitzen, was bei Ribosomen, die vollständig aus Partikeln bestehen, nicht der Fall ist. Aus diesem Grund werden Ribosomen manchmal auch als „nicht-membranöse Organellen“ bezeichnet. [ 72 ]
Freie Ribosomen
Freie Ribosomen können sich im gesamten Zytosol bewegen , sind aber vom Zellkern und anderen Organellen ausgeschlossen. Proteine, die aus freien Ribosomen gebildet werden, gelangen ins Zytosol und werden innerhalb der Zelle verwendet. Da das Zytosol hohe Glutathionkonzentrationen aufweist und somit ein reduzierendes Milieu darstellt , können Proteine mit Disulfidbrücken , die aus oxidierten Cysteinresten entstehen, dort nicht synthetisiert werden.
Membrangebundene Ribosomen
Wenn ein Ribosom mit der Synthese von Proteinen beginnt, die in bestimmten Organellen benötigt werden, kann es „membrangebunden“ werden. In eukaryotischen Zellen geschieht dies in einem Bereich des endoplasmatischen Retikulums (ER), dem sogenannten rauen ER. Die neu produzierten Polypeptidketten werden durch das Ribosom, das die gerichtete Synthese durchführt, direkt in das ER eingefügt und anschließend über den Sekretionsweg zu ihren Bestimmungsorten transportiert . Membrangebundene Ribosomen produzieren üblicherweise Proteine, die in der Plasmamembran verwendet oder durch Exozytose aus der Zelle abgegeben werden . [ 73 ]
Biogenese
In Bakterienzellen werden Ribosomen im Zytoplasma durch die Transkription mehrerer Ribosomen-Genoperons synthetisiert . Bei Eukaryoten findet dieser Prozess sowohl im Zytoplasma als auch im Nukleolus , einem Bereich innerhalb des Zellkerns , statt . Der Zusammenbau erfordert das koordinierte Zusammenwirken von über 200 Proteinen bei der Synthese und Prozessierung der vier rRNA-Moleküle sowie deren Assemblierung mit den ribosomalen Proteinen. [ 74 ]
Herkunft
Das Ribosom entstand möglicherweise ursprünglich als Protoribosom [ 75 ] , das in einer RNA-Welt möglicherweise ein Peptidyltransferasezentrum (PTC) enthielt und als selbstreplizierender Komplex auftrat. Erst später, mit dem Auftreten von Aminosäuren, entwickelte es die Fähigkeit zur Proteinsynthese. [ 76 ] Studien legen nahe, dass frühe Ribosomen, die ausschließlich aus rRNA bestanden, die Fähigkeit zur Synthese von Peptidbindungen entwickelt haben könnten . [ 77 ] [ 78 ] [ 79 ] [ 80 ] [ 81 ] Darüber hinaus deuten starke Hinweise darauf hin, dass frühe Ribosomen selbstreplizierende Komplexe waren, in denen die rRNA informative, strukturelle und katalytische Funktionen erfüllte, da sie für tRNAs und Proteine codiert haben könnte, die für die ribosomale Selbstreplikation benötigt wurden. [ 82 ] Hypothetische zelluläre Organismen mit selbstreplizierender RNA, aber ohne DNA, werden als Ribocyten (oder Ribozellen) bezeichnet. [ 83 ] [ 84 ]
As amino acids gradually appeared in the RNA world under prebiotic conditions,[85][86] their interactions with catalytic RNA would increase both the range and efficiency of function of catalytic RNA molecules.[76] Thus, the driving force for the evolution of the ribosome from an ancient self-replicating machine into its current form as a translational machine may have been the selective pressure to incorporate proteins into the ribosome's self-replicating mechanisms, so as to increase its capacity for self-replication.[82][87][88]
Heterogeneous ribosomes
In 1958, Francis Crick famously proposed the "one gene-one ribosome-one protein hypothesis," where each ribosome carries the genetic information required to encode a single protein. Although discredited at that time, from the discovery of the first ribosomopathy Diamond–Blackfan Anemia in 1999, the ribosome has transitioned from a passive molecular machine to a dynamic macromolecular machine[89][90].Ribosomes are compositionally heterogeneous between species and even within the same cell, as evidenced by the existence of cytoplasmic and mitochondria ribosomes within the same eukaryotic cells. Certain researchers have suggested that heterogeneity in the composition of ribosomal proteins in mammals is important for gene regulation, i.e., the specialized ribosome hypothesis.[91][92] However, this hypothesis is controversial and the topic of ongoing research.[93][94]
Heterogeneity in ribosome composition was first proposed to be involved in translational control of protein synthesis by Vince Mauro and Gerald Edelman.[95] They proposed the ribosome filter hypothesis to explain the regulatory functions of ribosomes. Evidence has suggested that specialized ribosomes specific to different cell populations may affect how genes are translated.[96] Some ribosomal proteins exchange from the assembled complex with cytosolic copies[97] suggesting that the structure of the in vivo ribosome can be modified without synthesizing an entire new ribosome.
Bestimmte ribosomale Proteine sind für das Zellleben absolut essenziell, andere hingegen nicht. In Bäckerhefe sind 14 von 78 ribosomalen Proteinen für das Wachstum nicht essentiell, während dies beim Menschen vom jeweiligen Zelltyp abhängt. [ 98 ] Weitere Formen der Heterogenität umfassen posttranslationale Modifikationen ribosomaler Proteine wie Acetylierung, Methylierung und Phosphorylierung. [ 99 ] Arabidopsis , [ 100 ] [ 101 ] [ 102 ] [ 103 ] Virale interne Ribosomen-Eintrittsstellen (IRES) können die Translation durch Ribosomen mit unterschiedlicher Zusammensetzung vermitteln. Beispielsweise können 40S-Ribosomen ohne eS25 in Hefe- und Säugetierzellen die CrPV-IGR-IRES nicht rekrutieren . [ 104 ]
Die Heterogenität ribosomaler RNA-Modifikationen spielt eine wichtige Rolle für die Strukturstabilität und/oder Funktion, und die meisten mRNA-Modifikationen finden sich in hochkonservierten Regionen. [ 105 ] [ 106 ] Die häufigsten rRNA-Modifikationen sind die Pseudouridylierung und die 2'-O-Methylierung der Ribose . [ 107 ]
Siehe auch
- Aminoglykoside
- Posttranslationale Modifikation
- Proteindynamik
- Ribosomenassoziiertes Vesikel
- Wackelbasispaar
Referenzen
- ^ Bashan, Anat; Agmon, Ilana; Zarivach, Raz; Schlünzen, Frank; Harms, Jörg; Berisio, Rita; Bartels, Heike; Franceschi, Francois; Auerbach, Tamar; Hansen, Harly AS; Kossoy, Elizaveta; Kessler, Maggie; Yonath, Ada (Januar 2003). „Strukturelle Grundlagen der ribosomalen Maschinerie für die Bildung, Translokation und das Fortschreiten der entstehenden Kette“ von Peptidbindungen. Molekulare Zelle . 11 (1): 91– 102. doi : 10.1016/s1097-2765(03)00009-1 . ISSN 1097-2765 . PMID 12535524 .
- Gregory , Brian; Rahman, Nusrat; Bommakanti, Ananth; Shamsuzzaman, Md; Thapa, Mamata; Lescure, Alana; Zengel, Janice M.; Lindahl, Lasse (April 2019). „Die kleinen und großen ribosomalen Untereinheiten sind für Stabilität und Akkumulation voneinander abhängig . “ Life Science Alliance . 2 (2) e201800150. doi : 10.26508/lsa.201800150 . ISSN 2575-1077 . PMC 6402506. PMID 30837296 .
- ^ Schuller AP, Green R (August 2018). „Hindernisse und Lösungsansätze bei der eukaryotischen Translation“ . Nat Rev Mol Cell Biol . 19 ( 8): 526–541 . doi : 10.1038/s41580-018-0011-4 . PMC 6054806. PMID 29760421 .
- ^ "Scitable by nature translation / RNA translation" .
- ^ a b Tirumalai MR, Rivas M, Tran Q, Fox GE (November 2021). „Das Peptidyltransferasezentrum: Ein Fenster in die Vergangenheit“ . Microbiol Mol Biol Rev. 85 ( 4) e00104-21: e0010421. Bibcode : 2021MMBR...85...21T . doi : 10.1128/MMBR.00104-21 . PMC 8579967. PMID 34756086 .
- ^ Benne R, Sloof P (1987). „Evolution der mitochondrialen Proteinsynthese-Maschinerie“. Bio Systems . 21 (1): 51–68 . Bibcode : 1987BiSys..21...51B . doi : 10.1016/0303-2647(87)90006-2 . PMID 2446672 .
- ^ „Ribosomen“ . Archiviert vom Original am 20.03.2009 . Abgerufen am 28.04.2011 .
- ^ Palade GE (Januar 1955). „Eine kleine partikuläre Komponente des Zytoplasmas“ . The Journal of Biophysical and Biochemical Cytology . 1 (1): 59–68 . doi : 10.1083/jcb.1.1.59 . PMC 2223592. PMID 14381428 .
- ^ Palade, George E. (1955). „ Eine kleine partikuläre Komponente des Zytoplasmas“ . Journal of Biophysical and Biochemical Cytology . 1 (1): 59–68 . doi : 10.1083/jcb.1.1.59 . PMC 2223592. PMID 14381428 . Aufgrund ihrer körnigen Struktur wurden sie zunächst Palade-Granula genannt. „George E. Palade – Biographical“ . NobelPrize.org . Nobel Prize Outreach AB . Abgerufen am 22. April 2026.
Er beschrieb auch die kleinen partikulären Bestandteile des Zytoplasmas (die als „Palade-Granula“ oder Ribosomen bekannt wurden)...
- ^ Rheinberger, Hans-Jörg (September 2022). „Eine kurze Geschichte der Proteinbiosynthese und der Ribosomenforschung“ . Lindauer Nobelpreisträgertagung . Abgerufen am 16.08.2023 .
- ^ Roberts RB, Hrsg. (1958). „Einleitung“. Mikrosomale Partikel und Proteinsynthese . New York: Pergamon Press, Inc.
- ^ „Der Nobelpreis für Physiologie oder Medizin 1974“ . Nobelprize.org . Die Nobelstiftung. Archiviert vom Original am 26. Januar 2013. Abgerufen am 10. Dezember 2012 .
- ^ „Nobelpreis für Chemie 2009“ . Die Nobelstiftung. Archiviert vom Original am 28. April 2012. Abgerufen am 10. Dezember 2012 .
- ^ a b c d e f g Alberts B, Johnson A, Lewis J, Raff M, Roberts K, Walter P (2002). „Membrangebundene Ribosomen definieren das raue ER“ . Molekularbiologie der Zelle (4. Aufl.). New York: Garland Science. S. 342. ISBN 978-0-8153-4072-0Die
- ^ „Ribosom“ . www.genome.gov . Abgerufen am 6. Januar 2026 .
- ^ Kurland CG (1960). „Molekulare Charakterisierung von Ribonukleinsäure aus Escherichia coli Ribosomen“. Journal of Molecular Biology . 2 (2): 83–91 . doi : 10.1016/s0022-2836(60)80029-0 .
- ^ Wilson DN, Doudna Cate JH (Mai 2012). „Die Struktur und Funktion des eukaryotischen Ribosoms“ . Cold Spring Harbor Perspectives in Biology . 4 (5) a011536. Bibcode : 2012CSHPB...411536W . doi : 10.1101 / cshperspect.a011536 . PMC 3331703. PMID 22550233 .
- ^ Nissen P, Hansen J, Ban N, Moore PB, Steitz TA (August 2000). „Die strukturelle Grundlage der Ribosomenaktivität bei der Peptidbindungssynthese“ ( PDF) . Science . 289 (5481): 920–30 . Bibcode : 2000Sci...289..920N . doi : 10.1126/science.289.5481.920 . PMID 10937990. S2CID 8370119. Archiviert vom Original (PDF) am 30.11.2020.
- ^ Polacek, N. (2005). „Das ribosomale Peptidyltransferasezentrum: Struktur, Funktion, Evolution, Hemmung“ (PDF) . Critical Reviews in Biochemistry and Molecular Biology . 40 (5): 285–311 . doi : 10.1080/10409230500326334 . PMID 16257828 .
- ^ a b Wimberly BT, Brodersen DE, Clemons WM, Morgan-Warren RJ, Carter AP, Vonrhein C, Hartsch T, Ramakrishnan V (September 2000). „Struktur der 30S ribosomalen Untereinheit“. Nature . 407 (6802): 327–339 . Bibcode : 2000Natur.407..327W . doi : 10.1038 / 35030006 . PMID 11014182. S2CID 4419944 .
- ^ a b Garrett R, Grisham CM (2009). Biochemie (4. Aufl.). Cengage Learning Services. ISBN 978-0-495-11464-2Die
- ^ Collatz E, Küchler E, Stöffler G, Czernilofsky AP (April 1976). „Die Reaktionsstelle am ribosomalen Protein L27 mit einem Affinitätsmarkierungsderivat der tRNA<sup>Met</sup> f“ . FEBS Letters . 63 (2): 283–6 . Bibcode : 1976FEBSL..63..283C . doi : 10.1016/0014-5793(76)80112-3 . PMID 770196 .
- ^ Czernilofsky AP, Collatz EE, Stöffler G, Kuechler E (Januar 1974). „Proteine an den tRNA-Bindungsstellen von Escherichia coli-Ribosomen“ . Proceedings of the National Academy of Sciences of the United States of America . 71 (1): 230–4 . Bibcode : 1974PNAS...71..230C . doi : 10.1073/pnas.71.1.230 . PMC 387971. PMID 4589893 .
- ^ Czernilofsky AP, Kurland CG, Stöffler G (Oktober 1975). „30S ribosomale Proteine, die mit dem 3'-Terminus der 16S RNA assoziiert sind“ . FEBS Letters . 58 (1): 281–4 . Bibcode : 1975FEBSL..58..281C . doi : 10.1016/0014-5793(75)80279-1 . PMID 1225593 .
- ^ Hassan, AH; Pinkas, M; Yaeshima, C; Ishino, S; Uchiumi, T; Ito, K; Demo, G (11. Januar 2025). „Neuartiger archaeischer Ribosomen-Dimerisierungsfaktor, der eine einzigartige 30S-30S-Dimerisierung ermöglicht“ . Nukleinsäureforschung . 53 (2) gkae1324. doi : 10.1093/nar/gkae1324 . PMC 11724365 . PMID 39797736 .
- ^ Garrett, RA; Dalgaard, J; Larsen, N; Kjems, J; Mankin, AS (Januar 1991). „Archaeal rRNA-Operons“. Trends in den biochemischen Wissenschaften . 16 (1): 22– 6. doi : 10.1016/0968-0004(91)90011-j . PMID 1905072 .
- ^ Cullen KE (2009). „Archaeale Ribosomen“. Encyclopedia of Life Science . New York: Facts On File. S. 1–5 . doi : 10.1002/9780470015902.a0000293.pub3 . ISBN 978-0-470-01590-2. S2CID 243730576 .
- ^ Tirumalai MR, Anane-Bediakoh D, Rajesh R, Fox GE (November 2021). „Nettoladungen der ribosomalen Proteine der S10- und spc- Cluster von Halophilen verhalten sich umgekehrt proportional zum Grad der Halotoleranz“ . Microbiol. Spectr . 9 (3) e01782-21: e0178221. Bibcode : 2021MicSp...9.1782T . doi : 10.1128/spectrum.01782-21 . PMC 8672879. PMID 34908470 .
- ^ Wang J, Dasgupta I, Fox GE (28. April 2009). „Viele nicht-universelle ribosomale Proteine von Archaeen befinden sich in konservierten Genclustern“ . Archaea . 2 ( 4): 241–51 . doi : 10.1155/2009/971494 . PMC 2686390. PMID 19478915 .
- ^ Armache, JP; Anger, AM; Márquez, V; Franckenberg, S; Fröhlich, T; Villa, E; Berninghausen, O; Thomm, M; Arnold, GJ; Beckmann, R; Wilson, DN (Januar 2013). „Promiskuitives Verhalten archäaler ribosomaler Proteine: Implikationen für die Evolution eukaryotischer Ribosomen“ . Nucleic Acids Research . 41 (2): 1284–93 . doi : 10.1093/nar/gks1259 . PMC 3553981. PMID 23222135. Basierend auf Genomanalysen enthält das 70S-Ribosom von
P. furiosus voraussichtlich 64 ribosomale Proteine, 25 in der 30S- und 39 in der 50S-Untereinheit. [...] Überraschenderweise blieben nach der Anpassung aller rRNA und r-Proteine vier Regionen zusätzlicher Dichte ungeklärt; eine davon befand sich auf der 30S-Untereinheit und drei auf der 50S-Untereinheit.
- ^ "Genom-Annotationssuche: Pyrococcus furiosus DSM 3638 Genom-Assembly ASM730v1, Typ: rRNA" . NCBI .
- ^ a b c Ben-Shem A, Garreau de Loubresse N, Melnikov S, Jenner L, Yusupova G, Yusupov M (Dezember 2011). „Die Struktur des eukaryotischen Ribosoms bei 3,0 Å Auflösung“ . Wissenschaft . 334 (6062): 1524– 9. Bibcode : 2011Sci...334.1524B . doi : 10.1126/science.1212642 . PMID 22096102 . S2CID 9099683 .
- Rabl J, Leibundgut M, Ataide SF, Haag A, Ban N (Februar 2011). „ Kristallstruktur der eukaryotischen 40S-Ribosomenuntereinheit im Komplex mit dem Initiationsfaktor 1“ ( PDF ) . Science . 331 (6018): 730–736 . Bibcode : 2011Sci...331..730R . doi : 10.1126/science.1198308 . hdl : 20.500.11850/153130 . PMID 21205638. S2CID 24771575 .
- Klinge S, Voigts-Hoffmann F, Leibundgut M, Arpagaus S, Ban N (November 2011). „Kristallstruktur der eukaryotischen 60S-Ribosomenuntereinheit im Komplex mit dem Initiationsfaktor 6“. Science . 334 ( 6058 ) : 941–948 . Bibcode : 2011Sci...334..941K . doi : 10.1126/science.1211204 . PMID 22052974. S2CID 206536444 .
- ^Fabijanski S, Pellegrini M (1977). "Identification of proteins at the peptidyl-tRNA binding site of rat liver ribosomes". Molecular & General Genetics. 184 (3): 551–6. doi:10.1007/BF00431588. PMID 6950200. S2CID 9751945.
- ^Agrawal RK, Sharma MR (December 2012). "Structural aspects of mitochondrial translational apparatus". Current Opinion in Structural Biology. 22 (6): 797–803. doi:10.1016/j.sbi.2012.08.003. PMC 3513651. PMID 22959417.
- ^Sharma MR, Booth TM, Simpson L, Maslov DA, Agrawal RK (June 2009). "Structure of a mitochondrial ribosome with minimal RNA". Proceedings of the National Academy of Sciences of the United States of America. 106 (24): 9637–42. Bibcode:2009PNAS..106.9637S. doi:10.1073/pnas.0901631106. PMC 2700991. PMID 19497863.
- ^Waltz F, Nguyen TT, Arrivé M, Bochler A, Chicher J, Hammann P, Kuhn L, Quadrado M, Mireau H, Hashem Y, Giegé P (January 2019). "Small is big in Arabidopsis mitochondrial ribosome". Nature Plants. 5 (1): 106–117. Bibcode:2019NatPl...5..106W. doi:10.1038/s41477-018-0339-y. PMID 30626926. S2CID 58004990.
- ^Archibald JM, Lane CE (2009). "Going, going, not quite gone: nucleomorphs as a case study in nuclear genome reduction". The Journal of Heredity. 100 (5): 582–90. doi:10.1093/jhered/esp055. PMID 19617523.
- ^Recht MI, Douthwaite S, Puglisi JD (June 1999). "Basis for prokaryotic specificity of action of aminoglycoside antibiotics". The EMBO Journal. 18 (11): 3133–8. doi:10.1093/emboj/18.11.3133. PMC 1171394. PMID 10357824.
- ^ O'Brien TW (Mai 1971). „Das allgemeine Vorkommen von 55S-Ribosomen in Lebermitochondrien von Säugetieren“ . The Journal of Biological Chemistry . 246 (10): 3409–17 . doi : 10.1016/S0021-9258(18)62239-2 . PMID 4930061 .
- ^ „Chloramphenicol-induzierte Knochenmarksuppression“ . JAMA . 213 (7): 1183–1184 . 17.08.1970. doi : 10.1001/jama.1970.03170330063011 . ISSN 0098-7484 . PMID 5468266 .
- ^ Newman SM, Boynton JE, Gillham NW, Randolph-Anderson BL, Johnson AM, Harris EH (Dezember 1990). „ Transformation von Chloroplasten-ribosomalen RNA-Genen in Chlamydomonas: Molekulare und genetische Charakterisierung von Integrationsereignissen“ . Genetics . 126 (4): 875–88 . doi : 10.1093/genetics/126.4.875 . PMC 1204285. PMID 1981764 .
- ^ Penev PI, Fakhretaha-Aval S, Patel VJ, Cannone JJ, Gutell RR, Petrov AS, Williams LD, Glass JB (August 2020). „Übergroße ribosomale RNA-Expansionssegmente in Asgard-Archaeen“ . Genome Biology and Evolution . 12 (10): 1694–1710 . doi : 10.1093/gbe/evaa170 . PMC 7594248. PMID 32785681 .
- ^ a b Ban N, Nissen P, Hansen J, Moore PB, Steitz TA (August 2000). „Die vollständige Atomstruktur der großen ribosomalen Untereinheit bei einer Auflösung von 2,4 Å“. Science . 289 (5481): 905–20 . Bibcode : 2000Sci...289..905B . CiteSeerX 10.1.1.58.2271 . doi : 10.1126/science.289.5481.905 . PMID 10937989 .
- ^ Ramakrishnan, V. (November 2014). „Das Ribosom entsteigt einer Blackbox“. Cell . 159 (5): 979–984 . doi : 10.1016/j.cell.2014.10.052 . PMID 25416939 .
- ^ Schluenzen F, Tocilj A, Zarivach R, Harms J, Gluehmann M, Janell D, Bashan A, Bartels H, Agmon I, Franceschi F, Yonath A (September 2000). „Struktur der funktionell aktivierten kleinen ribosomalen Untereinheit mit einer Auflösung von 3,3 Ångström“ . Cell . 102 ( 5): 615–23 . doi : 10.1016/S0092-8674(00)00084-2 . PMID 11007480. S2CID 1024446 .
- ^ Yusupov MM, Yusupova GZ, Baucom A, Lieberman K, Earnest TN, Cate JH, Noller HF (Mai 2001). „Kristallstruktur des Ribosoms mit einer Auflösung von 5,5 Å“ . Science . 292 ( 5518): 883–96 . Bibcode : 2001Sci...292..883Y . doi : 10.1126/science.1060089 . PMID 11283358. S2CID 39505192 .
- Schuwirth BS, Borovinskaya MA, Hau CW, Zhang W, Vila-Sanjurjo A, Holton JM, Cate JH (November 2005). „ Strukturen des bakteriellen Ribosoms mit einer Auflösung von 3,5 Å“ . Science . 310 ( 5749): 827–34 . Bibcode : 2005Sci...310..827S . doi : 10.1126/science.1117230 . PMC 7550191. PMID 16272117. S2CID 37382005 .
- ^ Mitra K, Schaffitzel C, Shaikh T, Tama F, Jenni S, Brooks CL, Ban N, Frank J (November 2005). „Struktur des an ein translatierendes Ribosom gebundenen Proteinkanals von E. coli“ . Nature . 438 ( 7066): 318–24 . Bibcode : 2005Natur.438..318M . doi : 10.1038/nature04133 . PMC 1351281. PMID 16292303 .
- Selmer M, Dunham CM, Murphy FV, Weixlbaumer A, Petry S, Kelley AC, Weir JR, Ramakrishnan V (September 2006). „Struktur des 70S-Ribosoms im Komplex mit mRNA und tRNA“. Science . 313 ( 5795): 1935–42 . Bibcode : 2006Sci...313.1935S . doi : 10.1126/science.1131127 . PMID 16959973. S2CID 9737925 .
- ^ Korostelev A, Trakhanov S, Laurberg M, Noller HF (September 2006). „Die Kristallstruktur eines 70S-Ribosom-tRNA-Komplexes offenbart funktionelle Interaktionen und Umlagerungen“ . Cell . 126 ( 6): 1065–77 . doi : 10.1016/j.cell.2006.08.032 . PMID 16962654. S2CID 13452915 .
- ^ Yusupova G, Jenner L, Rees B, Moras D, Yusupov M (November 2006). „Strukturelle Grundlage der mRNA-Bewegung am Ribosom“. Nature . 444 ( 7117): 391–4 . Bibcode : 2006Natur.444..391Y . doi : 10.1038/nature05281 . PMID 17051149. S2CID 4419198 .
- Fromm , Simon A.; O'Connor, Kate M.; Purdy, Michael; Bhatt, Pramod R.; Loughran, Gary; Atkins, John F.; Jomaa, Ahmad; Mattei, Simone (25.02.2023). „Das translatierende bakterielle Ribosom mit einer Auflösung von 1,55 Å , erzeugt durch Kryo-EM-Bildgebung“ . Nature Communications . 14 (1): 1095. Bibcode : 2023NatCo..14.1095F . doi : 10.1038/s41467-023-36742-3 . ISSN 2041-1723 . PMC 9968351. PMID 36841832 .
- ^ Kišonaitė, Miglė; Wild, Klemens; Lapouge, Karine; Ruppert, Thomas; Sinning, Irmgard (25.01.2022). „ Hochauflösende Strukturen eines thermophilen eukaryotischen 80S-Ribosoms enthüllen atomistische Details der Translokation“ . Nature Communications . 13 (1): 476. Bibcode : 2022NatCo..13..476K . doi : 10.1038/s41467-022-27967-9 . ISSN 2041-1723 . PMC 8789840. PMID 35079002 .
- ^ Lafontaine, D.; Tollervey, D. (2001). „Funktion und Synthese von Ribosomen“. Nat Rev Mol Cell Biol . 2 (7): 514–520 . doi : 10.1038/35080045 . hdl : 1842/729 . PMID 11433365. S2CID 2637106 .
- ^ Savir Y, Tlusty T (April 2013). „Das Ribosom als optimaler Decoder: Eine Lektion in molekularer Erkennung“ . Cell . 153 (2): 471–479 . Bibcode : 2013APS..MARY46006T . doi : 10.1016/j.cell.2013.03.032 . PMID 23582332 .
- ^ Korkmaz G, Sanyal S (September 2017). " Escherichia coli " . The Journal of Biological Chemistry . 292 (36): 15134–15142 . doi : 10.1074 / jbc.M117.785238 . PMC 5592688. PMID 28743745 .
- ^ Konevega AL, Soboleva NG, Makhno VI, Semenkov YP, Wintermeyer W, Rodnina MV, Katunin VI (Januar 2004). „Purinbasen an Position 37 der tRNA stabilisieren die Codon-Anticodon-Interaktion in der ribosomalen A-Stelle durch Stapelung und Mg²⁺ - abhängige Wechselwirkungen“ . RNA . 10 ( 1): 90–101 . doi : 10.1261/rna.5142404 . PMC 1370521. PMID 14681588 .
- ^ Rodnina MV, Beringer M, Wintermeyer W (Januar 2007). „Wie Ribosomen Peptidbindungen herstellen“. Trends in Biochemical Sciences . 32 (1): 20–26 . doi : 10.1016/j.tibs.2006.11.007 . PMID 17157507 .
- ^ Cech, TR (August 2000). „ Strukturbiologie. Das Ribosom ist ein Ribozym“. Science . 289 (5481): 878–879 . doi : 10.1126/science.289.5481.878 . PMID 10960319. S2CID 24172338 .
- ^ Banerjee D, Sanyal S (Oktober 2014). „Protein Folding activity of the ribosome (PFAR) – a target for antiprion compounds“ . Viruses . 6 ( 10): 3907–3924 . doi : 10.3390/v6103907 . PMC 4213570. PMID 25341659 .
- ^ Fedorov AN, Baldwin TO (Dezember 1997). „Cotranslationale Proteinfaltung“ . The Journal of Biological Chemistry . 272 (52): 32715–32718 . doi : 10.1074/jbc.272.52.32715 . PMID 9407040 .
- ^ Baldwin RL (Juni 1975). „Intermediates in protein folding reactions and the mechanism of protein folding“. Annual Review of Biochemistry . 44 (1): 453–475 . doi : 10.1146/annurev.bi.44.070175.002321 . PMID 1094916 .
- ^ Das D, Das A, Samanta D, Ghosh J, Dasgupta S, Bhattacharya A, Basu A, Sanyal S, Das Gupta C (August 2008). „Die Rolle des Ribosoms bei der Proteinfaltung“ (PDF) . Biotechnology Journal . 3 (8): 999–1009 . doi : 10.1002/biot.200800098 . PMID 18702035 .
- ^ Dabrowski-Tumanski P, Piejko M, Niewieczerzal S, Stasiak A, Sulkowska JI (Dezember 2018). „Proteinverknotung durch aktives Einfädeln der entstehenden Polypeptidkette beim Austritt aus dem Ribosomen-Exit-Kanal“. The Journal of Physical Chemistry B. 122 ( 49): 11616–11625 . Bibcode : 2018JPCB..12211616D . doi : 10.1021/acs.jpcb.8b07634 . PMID 30198720. S2CID 52176392 .
- ^ Brandman O, Stewart-Ornstein J, Wong D, Larson A, Williams CC, Li GW, Zhou S, King D, Shen PS, Weibezahn J, Dunn JG, Rouskin S, Inada T, Frost A, Weissman JS (November 2012). „Ein ribosomengebundener Qualitätskontrollkomplex löst den Abbau neu synthetisierter Peptide aus und signalisiert Translationsstress“ . Cell . 151 ( 5): 1042–1054 . doi : 10.1016/j.cell.2012.10.044 . PMC 3534965. PMID 23178123 .
- ^ Defenouillère Q, Yao Y, Mouaikel J, Namane A, Galopier A, Decourty L, Doyen A, Malabat C, Saveanu C, Jacquier A, Fromont-Racine M (März 2013). „Der an 60S-Partikel gebundene Cdc48-assoziierte Komplex ist für die Beseitigung aberranter Translationsprodukte erforderlich“ . Proceedings of the National Academy of Sciences of the United States of America . 110 ( 13 ): 5046–5051 . Bibcode : 2013PNAS..110.5046D . doi : 10.1073/pnas.1221724110 . PMC 3612664. PMID 23479637 .
- ^ Shen PS, Park J, Qin Y, Li X, Parsawar K, Larson MH, Cox J, Cheng Y, Lambowitz AM, Weissman JS, Brandman O, Frost A (Januar 2015). „Proteinsynthese. Rqc2p und 60S ribosomale Untereinheiten vermitteln die mRNA-unabhängige Elongation neu synthetisierter Ketten“ . Science . 347 ( 6217): 75–78 . Bibcode : 2015Sci...347...75S . doi : 10.1126/science.1259724 . PMC 4451101. PMID 25554787 .
- ^ Keeley, J.; Gutnikoff, R. (2. Januar 2015). „Ribosomenstudien enthüllen neuen Mechanismus der Proteinsynthese“ (Pressemitteilung). Howard Hughes Medical Institute . Archiviert vom Original am 12. Januar 2015. Abgerufen am 16. Januar 2015 .
- Cooper HL, Berger SL, Braverman R (August 1976). „Freie Ribosomen in physiologisch nicht teilenden Zellen. Menschliche periphere Lymphozyten“ . J Biol Chem . 251 (16): 4891–900 . doi : 10.1016/S0021-9258(17)33199-X . PMID 956167 .
- ^ Stroberg, Wylie; Schnell, Santiago (7. Dezember 2017). „Über den Ursprung nicht-membrangebundener Organellen und ihre physiologische Funktion“ . Journal of Theoretical Biology . 434. Elsevier: 42–49 . Bibcode : 2017JThBi.434...42S . doi : 10.1016 /j.jtbi.2017.04.006 . PMC 5630510. PMID 28392184 .
- ^ Alberts B, Johnson A, Lewis J, Raff M, Roberts K, Walter P (2002). „Membrangebundene Ribosomen definieren das raue ER“ . Molekularbiologie der Zelle (4. Aufl.). New York: Garland Science. ISBN 978-0-8153-4072-0Die
- ^ Kressler, Dieter; Hurt, Ed; Babler, Jochen (2009). „Driving ribosome assembly“ (PDF) . Biochimica et Biophysica Acta (BBA) - Molecular Cell Research . 1803 (6): 673–683 . doi : 10.1016/j.bbamcr.2009.10.009 . PMID 19879902 .
- ^ Dance, Amber (28. Februar 2023). „Wie entstand das Leben? Ein Schlüsselelement rückt in den Fokus – Das Team eines Nobelpreisträgers hat einen großen Schritt nach vorn bei der Rekonstruktion einer frühen RNA der Erde gemacht, die Proteine bilden kann . “ Nature . 615 (7950): 22–25 . doi : 10.1038/d41586-023-00574-4 . PMID 36854922 .
- ^ a b Noller HF (April 2012). „Evolution der Proteinsynthese aus einer RNA-Welt“ . Cold Spring Harbor Perspectives in Biology . 4 (4) a003681. Bibcode : 2012CSHPB...4.3681N . doi : 10.1101 / cshperspect.a003681 . PMC 3312679. PMID 20610545 .
- ^ Dabbs ER (1986). Mutantenstudien am prokaryotischen Ribosom . New York: Springer-Verlag.
- ^ Noller HF, Hoffarth V, Zimniak L (Juni 1992). „Ungewöhnliche Resistenz der Peptidyltransferase gegenüber Proteinextraktionsverfahren“. Science . 256 (5062): 1416–9 . Bibcode : 1992Sci...256.1416N . doi : 10.1126/science.1604315 . PMID 1604315 .
- ^ Nomura M, Mizushima S, Ozaki M, Traub P, Lowry CV (1969). „Struktur und Funktion von Ribosomen und ihren molekularen Komponenten“. Cold Spring Harbor Symposia on Quantitative Biology . 34 : 49–61 . doi : 10.1101/sqb.1969.034.01.009 . PMID 4909519 .
- ^ Krupkin M, Matzov D, Tang H, Metz M, Kalaora R, Belousoff MJ, Zimmerman E, Bashan A, Yonath A (Okt. 2011). „Ein Überbleibsel eines präbiotischen Bindungsmechanismus ist im heutigen Ribosom funktionsfähig“ . Phil. Trans. R. Soc. B. 366 ( 1580): 2972–8 . doi : 10.1098 / rstb.2011.0146 . PMC 3158926. PMID 21930590 .
- ^ Bose T, Fridkin G, Davidovich C, Krupkin M, Dinger N, Falkovich AH, Peleg Y, Agmon I, Bashan A, Yonat A (Februar 2022). „Ursprung des Lebens: Das Protoribosom bildet Peptidbindungen und verbindet RNA- und proteindominierte Welten“ . Nucleic Acids Res . 50 (4): 1815–1828 . doi : 10.1093/nar/gkac052 . PMC 8886871. PMID 35137169 .
- Root -Bernstein M, Root-Bernstein R (Februar 2015). „ Das Ribosom als fehlendes Bindeglied in der Evolution des Lebens“ . Journal of Theoretical Biology . 367 : 130–158 . Bibcode : 2015JThBi.367..130R . doi : 10.1016/j.jtbi.2014.11.025 . PMID 25500179 .
- ^ Yarus M (2002). „Primordiale Genetik: Phänotyp des Ribozyten“. Annual Review of Genetics . 36 : 125–51 . doi : 10.1146/annurev.genet.36.031902.105056 . PMID 12429689 .
- ^ Forterre P, Krupovic M (2012). „Der Ursprung von Virionen und Virozellen: Die Escape-Hypothese neu betrachtet“. Viren: Essentielle Lebensakteure . S. 43–60 . doi : 10.1007/978-94-007-4899-6_3 . ISBN 978-94-007-4898-9Die
- ^ Caetano-Anollés G, Seufferheld MJ (2013). „Die koevolutionären Wurzeln der Biochemie und der zellulären Organisation stellen das RNA-Welt-Paradigma in Frage“. Journal of Molecular Microbiology and Biotechnology . 23 ( 1–2 ): 152–77 . doi : 10.1159/000346551 . PMID 23615203. S2CID 41725226 .
- ^ Saladino R, Botta G, Pino S, Costanzo G, Di Mauro E (August 2012). „Genetik zuerst oder Metabolismus zuerst? Der Formamid-Hinweis“. Chemical Society Reviews . 41 (16): 5526–65 . Bibcode : 2012CSRev..41.5526S . doi : 10.1039/c2cs35066a . hdl : 11573/494138 . PMID 22684046 .
- ^ Fox GE (September 2010). „Ursprung und Evolution des Ribosoms“ . Cold Spring Harb Perspect Biol . 2 ( 9) a003483. Bibcode : 2010CSHPB...203483F . doi : 10.1101/cshperspect.a003483 . PMC 2926754. PMID 20534711 .
- ^ Fox GE (2016). „Ursprung und frühe Evolution des Ribosoms“. In: Hernández G, Jagus R (Hrsg.). Evolution der Proteinsynthese-Maschinerie und ihrer Regulation . Schweiz: Springer, Cham. S. 31–60 . doi : 10.1007/978-3-319-39468-8 . ISBN 978-3-319-39468-8. S2CID 27493054 .
- ^ Crick, FH (1958). „Über die Proteinsynthese“. Symposien der Gesellschaft für Experimentelle Biologie . 12 : 138–163 . ISSN 0081-1386 . PMID 13580867 .
- ^ Draptchinskaia, Natalia; Gustavsson, Peter; Andersson, Björn; Pettersson, Monica; Willig, Thiébaut-Noël; Dianzani, Irma; Ball, Sarah; Tchernia, Gil; Klar, Joakim; Matsson, Hans; Tentler, Dimitri; Mohandas, Narla; Carlsson, Birgit; Dahl, Niklas (Februar 1999). „Das Gen, das für das ribosomale Protein S19 kodiert, ist bei Diamond-Blackfan-Anämie mutiert . “ Naturgenetik . 21 (2): 169–175 . doi : 10.1038/5951 . ISSN 1546-1718 . PMID 9988267 .
- ^ Shi Z, Fujii K, Kovary KM, Genuth NR, Röst HL, Teruel MN, Barna M (Juli 2017). „Heterogene Ribosomen translieren bevorzugt unterschiedliche mRNA - Subpools im gesamten Genom“ . Molecular Cell . 67 (1). Elsevier BV: 71–83.e7. doi : 10.1016/j.molcel.2017.05.021 . PMC 5548184. PMID 28625553 .
- Xue S, Barna M (Mai 2012). „Spezialisierte Ribosomen: Eine neue Grenze in der Genregulation und Organismenbiologie“ . Nature Reviews Molecular Cell Biology . 13 (6). Springer Science and Business Media LLC: 355–369 . Bibcode : 2012NRMCB..13..355X . doi : 10.1038 / nrm3359 . PMC 4039366. PMID 22617470 .
- ^ Ferretti MB, Karbstein K ( Mai 2019). „Gibt es wirklich eine funktionelle Spezialisierung von Ribosomen?“ RNA . 25 (5). Cold Spring Harbor Laboratory: 521–538 . doi : 10.1261 / rna.069823.118 . PMC 6467006. PMID 30733326 .
- ^ Farley-Barnes KI, Ogawa LM, Baserga SJ (Oktober 2019). „Ribosomopathien: Alte Konzepte, neue Kontroversen“ . Trends in Genetics . 35 (10). Elsevier BV: 754–767 . doi : 10.1016/j.tig.2019.07.004 . PMC 6852887. PMID 31376929 .
- ^ Mauro VP, Edelman GM (September 2002). „Die Ribosomenfilterhypothese“ . Proceedings of the National Academy of Sciences of the United States of America . 99 (19): 12031–6 . Bibcode : 2002PNAS...9912031M . doi : 10.1073 / pnas.192442499 . PMC 129393. PMID 12221294 .
- Xue S, Barna M (Mai 2012). „Spezialisierte Ribosomen: Eine neue Grenze in der Genregulation und Organismenbiologie“ . Nature Reviews Molecular Cell Biology . 13 (6): 355–69 . Bibcode : 2012NRMCB..13..355X . doi : 10.1038 / nrm3359 . PMC 4039366. PMID 22617470 .
- ^ Mathis AD, Naylor BC, Carson RH, Evans E, Harwell J, Knecht J, Hexem E, Peelor FF, Miller BF, Hamilton KL, Transtrum MK, Bikman BT, Price JC (Februar 2017). „Mechanismen der Ribosomen-Erhaltungsänderung in vivo als Reaktion auf Nährstoffsignale“ . Molecular & Cellular Proteomics . 16 (2): 243–254 . doi : 10.1074/mcp.M116.063255 . PMC 5294211. PMID 27932527 .
- ^ Steffen KK, McCormick MA, Pham KM, MacKay VL, Delaney JR, Murakami CJ et al. (Mai 2012). „ Ribosomenmangel schützt vor ER-Stress in Saccharomyces cerevisiae“ . Genetics . 191 (1). Genetics Society of America: 107–118 . doi : 10.1534/genetics.111.136549 . PMC 3338253. PMID 22377630 .
- ^ Lee SW, Berger SJ, Martinović S, Pasa-Tolić L, Anderson GA, Shen Y, et al. (April 2002). „Direkte massenspektrometrische Analyse intakter Proteine der großen ribosomalen Untereinheit der Hefe mittels Kapillar-LC/FTICR“ . Proceedings of the National Academy of Sciences of the United States of America . 99 (9): 5942–5947 . Bibcode : 2002PNAS...99.5942L . doi : 10.1073 / pnas.082119899 . PMC 122881. PMID 11983894 .
- ^ Carroll AJ, Heazlewood JL, Ito J, Millar AH (Februar 2008). „Analyse des cytosolischen Ribosomenproteoms von Arabidopsis liefert detaillierte Einblicke in seine Komponenten und deren posttranslationale Modifikation“ . Molecular & Cellular Proteomics . 7 (2): 347–369 . doi : 10.1074/mcp.m700052-mcp200 . PMID 17934214 .
- ^ Odintsova TI, Müller EC, Ivanov AV, Egorov TA, Bienert R, Vladimirov SN et al. (April 2003). „Charakterisierung und Analyse posttranslationaler Modifikationen der großen zytoplasmatischen ribosomalen Untereinheitproteine des Menschen mittels Massenspektrometrie und Edman-Sequenzierung“. Journal of Protein Chemistry . 22 (3): 249–258 . doi : 10.1023/a:1025068419698 . PMID 12962325. S2CID 10710245 .
- ^ Yu Y, Ji H, Doudna JA, Leary JA (Juni 2005). „Massenspektrometrische Analyse der humanen 40S ribosomalen Untereinheit: native und HCV IRES-gebundene Komplexe“ . Protein Science . 14 (6): 1438–1446 . doi : 10.1110/ps.041293005 . PMC 2253395. PMID 15883184 .
- ^ Zeidan Q, Wang Z, De Maio A, Hart GW (Juni 2010). „O-GlcNAc-cyclische Enzyme assoziieren mit der Translationsmaschinerie und modifizieren ribosomale Kernproteine“ . Molecular Biology of the Cell . 21 (12): 1922–1936 . doi : 10.1091/mbc.e09-11-0941 . PMC 2883937. PMID 20410138 .
- ^ Landry DM, Hertz MI, Thompson SR (Dezember 2009). „RPS25 ist essentiell für die Translationsinitiierung durch die IRESs der Dicistroviridae und des Hepatitis-C-Virus“ . Genes & Development . 23 (23): 2753–2764 . doi : 10.1101/gad.1832209 . PMC 2788332. PMID 19952110 .
- ^ Decatur WA, Fournier MJ (Juli 2002). „rRNA-Modifikationen und Ribosomenfunktion“. Trends in Biochemical Sciences . 27 (7): 344–51 . doi : 10.1016/s0968-0004(02)02109-6 . PMID 12114023 .
- ^ Natchiar SK, Myasnikov AG, Kratzat H, Hazemann I, Klaholz BP (November 2017). „Visualisierung chemischer Modifikationen in der Struktur des humanen 80S-Ribosoms“. Nature . 551 (7681): 472–477 . Bibcode : 2017Natur.551..472N . doi : 10.1038 / nature24482 . PMID 29143818. S2CID 4465175 .
- ^ Guo H (August 2018). „ Spezialisierte Ribosomen und die Kontrolle der Translation“. Biochemical Society Transactions . 46 (4): 855–869 . doi : 10.1042/BST20160426 . PMID 29986937. S2CID 51609077 .
Externe Links
- Ein Laborcomputer simuliert Ribosomen in Bewegung
- Die Rolle des Ribosoms , Gwen V. Childs, hier kopiert
- Ribosom in Proteopedia – Die freie, kollaborative 3D-Enzyklopädie der Proteine und anderer Moleküle
- Ribosomale Proteinfamilien in ExPASy (Archiviert am 30.04.2011 im Internet Archive)
- Molekül des Monats , archiviert am 27.10.2009 in der Wayback Machine © RCSB Protein Data Bank :
- Ribosomen- Archiv vom 14.11.2010 im Internetarchiv Wayback Machine
- Dehnungsfaktoren (Archiviert am 16.03.2011 im Internet Archive)
- Palade
- 3D-Elektronenmikroskopie-Strukturen von Ribosomen in der EM Data Bank (EMDB)
 Dieser Artikel enthält gemeinfreies Material aus Science Primer . NCBI . Archiviert vom Original am 8. Dezember 2009.