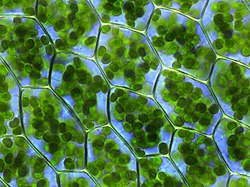
Ein Chloroplast ( / ˈ k l ɔːr ə ˌ p l æ st , - p l ɑː st / KLOR -ə-plast, -plahst ) [ 1 ] [ 2 ] ist ein Organell , das als Plastid bekannt ist und hauptsächlich in Pflanzen- und Algenzellen die Photosynthese betreibt . Chloroplasten besitzen eine hohe Konzentration an Chlorophyllpigmenten , die die Energie des Sonnenlichts einfangen , in chemische Energie umwandeln und Wasser spalten , um Sauerstoff freizusetzen . Die dabei entstehende chemische Energie wird dann im Calvin-Zyklus genutzt, um aus Kohlendioxid Zucker und andere organische Moleküle herzustellen . Chloroplasten erfüllen darüber hinaus eine Reihe weiterer Funktionen, darunter die Fettsäure- und Aminosäuresynthese sowie die Immunantwort in Pflanzen. Die Anzahl der Chloroplasten pro Zelle variiert von einem in einigen einzelligen Algen bis zu 100 in Pflanzen wie Arabidopsis und Weizen .
Chloroplasten sind hochdynamisch – sie zirkulieren und werden innerhalb der Zellen transportiert. Ihr Verhalten wird stark von Umweltfaktoren wie Lichtfarbe und -intensität beeinflusst. Chloroplasten können von der Pflanzenzelle nicht neu gebildet werden und müssen bei der Zellteilung an jede Tochterzelle vererbt werden. Man geht davon aus, dass sie von ihrem Vorfahren stammen – einem urzeitlichen photosynthetischen Cyanobakterium , das von einer frühen eukaryotischen Zelle aufgenommen wurde . [ 3 ]
Aufgrund ihres endosymbiotischen Ursprungs enthalten Chloroplasten, ähnlich wie Mitochondrien , ihre eigene DNA , getrennt vom Zellkern . Mit einer Ausnahme (der amöboiden Art Paulinella chromatophora ) lassen sich alle Chloroplasten auf ein einziges endosymbiotisches Ereignis zurückführen . Trotzdem finden sich Chloroplasten in extrem unterschiedlichen Organismen, die nicht direkt miteinander verwandt sind – eine Folge zahlreicher sekundärer und sogar tertiärer endosymbiotischer Ereignisse .
Entdeckung und Etymologie
Die erste eindeutige Beschreibung eines Chloroplasten ( Chlorophyllkörnen , „Chlorophyllkorn“) erfolgte 1837 durch Hugo von Mohl als abgegrenzte Körper innerhalb der grünen Pflanzenzelle. [ 4 ] 1883 benannte Andreas Franz Wilhelm Schimper diese Körper als „Chloroplastiden“ ( Chloroplastida ). [ 5 ] 1884 übernahm Eduard Strasburger den Begriff „Chloroplasten“ ( Chloroplasten ). [ 6 ] [ 7 ] [ 8 ]
Das Wort Chloroplast leitet sich von den griechischen Wörtern chloros (χλωρός), was grün bedeutet, und plastes (πλάστης), was „der Bildende“ bedeutet, ab. [ 9 ]
Endosymbiotischer Ursprung der Chloroplasten
Chloroplasten sind eine von vielen Organellenarten in photosynthetischen eukaryotischen Zellen. Sie entwickelten sich aus Cyanobakterien durch einen Prozess namens Organellogenese . [ 10 ] Cyanobakterien sind ein vielfältiger Stamm gramnegativer Bakterien, die zur oxygenen Photosynthese fähig sind . Wie Chloroplasten besitzen sie Thylakoide . [ 11 ] Die Thylakoidmembranen enthalten Photosynthesepigmente , darunter Chlorophyll a . [ 12 ] [ 13 ] Dieser Ursprung der Chloroplasten wurde erstmals 1905 von dem russischen Biologen Konstantin Mereschkowski vorgeschlagen [ 14 ] , nachdem Andreas Franz Wilhelm Schimper 1883 beobachtet hatte, dass Chloroplasten Cyanobakterien stark ähneln . [ 5 ] Chloroplasten kommen nur in Pflanzen , Algen [ 15 ] und einigen Arten der amöboiden Gattung Paulinella vor . [ 16 ]
Man geht davon aus, dass Mitochondrien durch ein ähnliches Endosymbioseereignis entstanden sind , bei dem ein aerober Prokaryot aufgenommen wurde. [ 17 ]
Primäre Endosymbiose

Vor etwa zwei Milliarden Jahren [ 18 ] [ 19 ] [ 20 ] drang ein freilebendes Cyanobakterium in eine frühe eukaryotische Zelle ein, entweder als Nahrung oder als innerer Parasit [ 17 ] . Es konnte jedoch der phagozytischen Vakuole entkommen, in der es eingeschlossen war, und in der Zelle überleben [ 12 ] . Dieses Ereignis wird als Endosymbiose bezeichnet , also als „Leben einer Zelle in einer anderen Zelle zum gegenseitigen Nutzen“. Die äußere Zelle wird üblicherweise als Wirt , die innere Zelle als Endosymbiont bezeichnet [ 17 ] . Das aufgenommene Cyanobakterium bot dem Wirt einen Vorteil, indem es Zucker aus der Photosynthese lieferte [ 17 ] . Im Laufe der Zeit wurde das Cyanobakterium assimiliert, und viele seiner Gene gingen verloren oder wurden in den Zellkern des Wirts übertragen. [ 21 ] Einige der Cyanobakterienproteine wurden dann von der Wirtszelle synthetisiert und zurück in den Chloroplasten (ehemals Cyanobakterium) importiert, wodurch der Wirt die Kontrolle über den Chloroplasten erlangen konnte. [ 21 ] [ 22 ]
Chloroplasten, die direkt auf einen cyanobakteriellen Vorfahren zurückgeführt werden können (d. h. ohne nachfolgende Endosymbiose), werden als primäre Plastiden bezeichnet („ Plastid “ bedeutet in diesem Zusammenhang nahezu dasselbe wie Chloroplast [ 17 ] ). [ 23 ] Chloroplasten, die auf einen anderen photosynthetischen eukaryotischen Endosymbionten zurückgeführt werden können, werden als sekundäre oder tertiäre Plastiden bezeichnet (siehe unten).
Ob die primären Chloroplasten durch ein einziges endosymbiotisches Ereignis oder durch mehrere unabhängige Aufnahmevorgänge in verschiedenen eukaryotischen Abstammungslinien entstanden sind, war lange umstritten. Heute geht man allgemein davon aus, dass Chloroplasten – mit einer Ausnahme (der amöboiden Paulinella chromatophora ) – vor etwa zwei Milliarden Jahren durch ein einziges endosymbiotisches Ereignis entstanden sind und alle einen gemeinsamen Vorfahren haben . [ 19 ] Es wurde vorgeschlagen, dass der nächste lebende Verwandte des aufgenommenen Cyanobakteriums Gloeomargarita lithophora ist . [ 24 ] [ 25 ] [ 26 ] Unabhängig davon ereignete sich dieser Prozess vor etwa 90–140 Millionen Jahren erneut in der amöboiden Paulinella mit einem Cyanobakterium der Gattung Prochlorococcus . Dieser unabhängig entstandene Chloroplast wird oft als Chromatophore anstatt als Chloroplast bezeichnet . [ 27 ] [ Anmerkung 1 ]
Man geht davon aus, dass Chloroplasten nach den Mitochondrien entstanden sind , da alle Eukaryoten Mitochondrien, aber nicht alle Chloroplasten besitzen. [ 17 ] [ 28 ] Dies wird als serielle Endosymbiose bezeichnet – dabei nahm ein früher Eukaryot den mitochondrialen Vorfahren auf, und dessen Nachkommen wiederum den chloroplastischen Vorfahren, wodurch eine Zelle mit sowohl Chloroplasten als auch Mitochondrien entstand. [ 17 ]
Sekundäre und tertiäre Endosymbiose

Viele andere Organismen erhielten Chloroplasten aus den primären Chloroplastenlinien durch sekundäre Endosymbiose – indem sie eine Rotalge oder Grünalge mit einem primären Chloroplasten aufnahmen. Diese Chloroplasten werden als sekundäre Plastiden bezeichnet . [ 23 ]
Infolge der sekundären Endosymbiose besitzen sekundäre Chloroplasten zusätzliche Membranen neben den beiden ursprünglichen Membranen primärer Chloroplasten. [ 29 ] In sekundären Plastiden bleibt typischerweise nur der Chloroplast selbst erhalten, manchmal auch seine Zellmembran und sein Zellkern . Dadurch entsteht ein Chloroplast mit drei oder vier Membranen [ 30 ] – den beiden Membranen der Cyanobakterien, gegebenenfalls der Zellmembran der aufgenommenen Alge und der phagosomalen Vakuole der Wirtszelle. [ 29 ]
Die Gene im Zellkern des phagozytierten Eukaryoten werden häufig in den Zellkern des sekundären Wirts übertragen. [ 29 ] Cryptomonas und Chlorarachniophyten behalten den Zellkern des phagozytierten Eukaryoten, ein sogenanntes Nukleomorph , [ 29 ] das sich zwischen der zweiten und dritten Membran des Chloroplasten befindet. [ 12 ] [ 22 ]
Alle sekundären Chloroplasten stammen von Grün- und Rotalgen . Von Glaukophyten wurden keine sekundären Chloroplasten beobachtet, wahrscheinlich weil Glaukophyten in der Natur relativ selten sind und daher weniger wahrscheinlich von anderen Eukaryoten aufgenommen wurden. [ 29 ]
Wieder andere Organismen, darunter die Dinoflagellaten Karlodinium und Karenia , erlangten Chloroplasten durch die Aufnahme eines Organismus mit einem sekundären Plastiden. Diese werden als tertiäre Plastiden bezeichnet . [ 23 ]

a Es ist nun erwiesen, dass Chromalveolata paraphyletisch zu Rhizaria ist. [ 32 ]
Primäre Chloroplastenlinien
Alle primären Chloroplasten gehören zu einer von vier Chloroplastenlinien: der Glaucophyten -Linie, der Rhodophyten -Linie („rote“ Chloroplasten), der Chloroplastida- Linie („grüne“ Chloroplasten) und der amöboiden Paulinella-chromatophora- Linie. [ 33 ] Die Glaucophyten-, Rhodophyten- und Chloroplastida-Linien stammen alle von einem gemeinsamen endosymbiotischen Ereignis ab und gehören alle zur Gruppe der Archaeplastida . [ 29 ]
Chloroplasten der Glaukophyten

Die Chloroplastengruppe der Glaukophyten ist mit nur 25 beschriebenen Arten die kleinste der drei primären Chloroplastenlinien. [ 34 ] Die Glaukophyten spalteten sich vor den roten und grünen Chloroplastenlinien ab. [ 35 ] Daher werden sie mitunter als Zwischenformen zwischen Cyanobakterien und den roten und grünen Chloroplasten betrachtet. [ 36 ] Diese frühe Abspaltung wird sowohl durch phylogenetische Studien als auch durch physikalische Merkmale gestützt, die in Glaukophyten-Chloroplasten und Cyanobakterien, nicht aber in den roten und grünen Chloroplasten vorkommen. So besitzen Glaukophyten-Chloroplasten beispielsweise eine Peptidoglykanwand , einen Zellwandtyp, der sonst nur bei Bakterien (einschließlich Cyanobakterien) vorkommt. [ Anmerkung 2 ] Zweitens enthalten die Chloroplasten der Glaukophyten konzentrische, nicht gestapelte Thylakoide , die ein Carboxysom umgeben – eine ikosaedrische Struktur, die das für die Kohlenstofffixierung verantwortliche Enzym RuBisCO enthält . Drittens wird die vom Chloroplasten produzierte Stärke außerhalb des Chloroplasten gesammelt. [ 37 ] Zusätzlich sind, ähnlich wie bei Cyanobakterien, die Thylakoide von Glaukophyten und Rhodophyten mit lichtabsorbierenden Strukturen, den sogenannten Phycobilisomen , besetzt .
Rhodophyta (rote Chloroplasten)
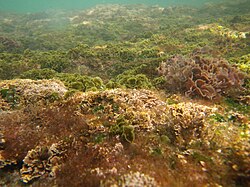
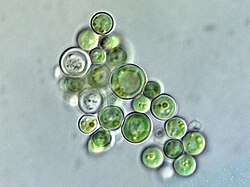
- Vielfalt der Rotalgen. Die Chloroplasten der Rotalgen zeichnen sich durch Phycobilin -Pigmente aus, die ihnen oft ihre rötliche Farbe verleihen.
 Bornetia secundiflora
 Peyssonnelia squamaria
 Cyanidium

 Callophyllis laciniata
Die Rhodophyten, auch Rotalgen genannt , bilden eine große und vielfältige Gruppe. [ 29 ] Rhodophyten-Chloroplasten werden auch Rhodoplasten genannt , [ 23 ] wörtlich „rote Chloroplasten“. [ 38 ] Rhodoplasten besitzen eine Doppelmembran mit einem Intermembranraum und Phycobilin -Pigmente, die in Phycobilisomen auf den Thylakoidmembranen organisiert sind und so ein Stapeln der Thylakoide verhindern. [ 12 ] Einige enthalten Pyrenoide . [ 23 ] Rhodoplasten enthalten Chlorophyll a und Phycobiline [ 32 ] als Photosynthese-Pigmente; das Phycobilin Phycoerythrin ist für die charakteristische rote Farbe vieler Rotalgen verantwortlich . [ 39 ] Da sie jedoch auch das blaugrüne Chlorophyll a und andere Pigmente enthalten, weisen viele aufgrund dieser Kombination eine rötliche bis violette Färbung auf. [ 23 ] Das rote Phycoerythrin-Pigment ist eine Anpassung, die Rotalgen hilft, in tiefem Wasser mehr Sonnenlicht einzufangen [ 23 ] – daher enthalten einige Rotalgen, die in flachem Wasser leben, weniger Phycoerythrin in ihren Rhodoplasten und können grünlicher erscheinen. [ 39 ] Rhodoplasten synthetisieren eine Stärkeform namens Florideenstärke [ 23 ] , die sich in Granula außerhalb des Rhodoplasten im Zytoplasma der Rotalge ansammelt. [ 12 ]
Chloroplastida (grüne Chloroplasten)
- Vielfalt der Grünalgen. Die Chloroplasten der Grünalgen zeichnen sich durch ihre Pigmente Chlorophyll a und Chlorophyll b aus , die ihnen ihre grüne Farbe verleihen.


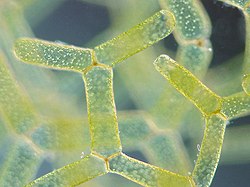


Die Chloroplastida- Gruppe ist eine weitere große, sehr vielfältige Abstammungslinie, zu der sowohl Grünalgen als auch Landpflanzen gehören . [ 40 ] Diese Gruppe wird auch Viridiplantae genannt und umfasst zwei Kernkladen – Chlorophyta und Streptophyta .
Die meisten grünen Chloroplasten sind grün , einige jedoch nicht. Dies liegt an zusätzlichen Pigmenten, die die grüne Farbe der Chlorophylle überdecken, wie beispielsweise in den Ruhezellen von Haematococcus pluvialis . Grüne Chloroplasten unterscheiden sich von denen der Glaukophyten und Rotalgen dadurch, dass sie ihre Phycobilisomen verloren haben und Chlorophyll b enthalten . [ 12 ] Außerdem fehlt ihnen die Peptidoglykanwand zwischen den beiden Membranen, wodurch ein Intermembranraum entstanden ist. [ 12 ] Einige Pflanzen haben zwar Gene für die Peptidoglykansynthese beibehalten, diese aber für die Chloroplastenteilung umfunktioniert . [ 41 ] Chloroplastida-Linien speichern ihre Stärke ebenfalls in den Chloroplasten. [ 12 ] [ 32 ] [ 40 ] Bei Pflanzen und einigen Algen sind die Chloroplasten-Thylakoide in Granastapeln angeordnet. Einige Chloroplasten von Grünalgen sowie von Hornmoosen enthalten eine Struktur namens Pyrenoid [ 12 ] , die RuBisCO und CO 2 im Chloroplasten konzentriert und funktionell dem Carboxysom der Glaucophyten ähnelt . [ 42 ] [ 43 ]
Es gibt einige Linien nicht-photosynthetischer, parasitärer Grünalgen, die ihre Chloroplasten vollständig verloren haben, wie beispielsweise Prototheca [ 32 ] , oder die zwar keine Chloroplasten besitzen, aber das separate Chloroplastengenom beibehalten haben, wie etwa Helicosporidium [ 44 ] . Morphologische und physiologische Ähnlichkeiten sowie phylogenetische Analysen bestätigen, dass es sich um Linien handelt, die ursprünglich Chloroplasten besaßen , diese aber im Laufe der Zeit verloren haben. [ 44 ] [ 45 ]
Paulinella chromatophora

Die photosynthetischen Amöben der Gattung Paulinella – P. chromatophora, P. micropora und die marine Art P. longichromatophora – besitzen den einzigen bekannten, unabhängig entwickelten Chloroplasten, der oft als Chromatophor bezeichnet wird . [ Anmerkung 1 ] Während alle anderen Chloroplasten auf ein einziges, uraltes endosymbiotisches Ereignis zurückgehen, erwarb Paulinella vor etwa 90–140 Millionen Jahren unabhängig ein endosymbiotisches Cyanobakterium der Gattung Synechococcus . [ 27 ] [ 29 ] Jede Paulinella- Zelle enthält einen oder zwei wurstförmige Chloroplasten; [ 21 ] [ 46 ] sie wurden erstmals 1894 von dem deutschen Biologen Robert Lauterborn beschrieben. [ 47 ]
Der Chromatophor ist im Vergleich zu seinen freilebenden cyanobakteriellen Verwandten stark reduziert und hat nur begrenzte Funktionen. So besitzt er beispielsweise ein Genom von etwa einer Million Basenpaaren , nur ein Drittel der Größe des Synechococcus -Genoms, und kodiert lediglich für rund 850 Proteine. [ 21 ] Dies ist jedoch immer noch deutlich größer als andere Chloroplastengenome, die typischerweise etwa 150.000 Basenpaare umfassen. Chromatophoren haben zudem wesentlich weniger ihrer DNA in den Zellkern ihrer Wirte übertragen. Etwa 0,3–0,8 % der nukleären DNA in Paulinella stammen vom Chromatophor, verglichen mit 11–14 % aus dem Chloroplasten in Pflanzen. [ 46 ] Ähnlich wie andere Chloroplasten stellt Paulinella dem Chromatophor mithilfe einer spezifischen Zielsequenz spezifische Proteine zur Verfügung. [ 48 ] Da Chromatophoren im Vergleich zu den kanonischen Chloroplasten viel jünger sind, wird Paulinella chromatophora untersucht, um zu verstehen, wie sich frühe Chloroplasten entwickelt haben. [ 21 ]
Sekundäre und tertiäre Chloroplastenlinien
Chloroplasten aus Grünalgen
Grünalgen wurden in drei oder vier separaten Ereignissen von vielen Gruppen assimiliert. [ 49 ] Sekundäre Chloroplasten, die von Grünalgen abstammen, finden sich vor allem in den Euglenophyten und Chlorarachniophyten . Sie kommen auch in einer Linie der Dinoflagellaten [ 32 ] und möglicherweise im Vorfahren der CASH-Linie ( Cryptomonaden , Alveolaten , Stramenopilen und Haptophyten ) vor. [ 50 ] Viele von Grünalgen abstammende Chloroplasten enthalten Pyrenoide , aber im Gegensatz zu den Chloroplasten ihrer grünalgenartigen Vorfahren sammelt sich das Speicherprodukt in Granula außerhalb des Chloroplasten. [ 12 ]
Euglenophyten
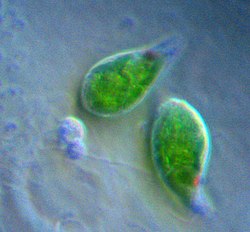
Die Euglenophyten sind eine Gruppe häufig vorkommender begeißelter Protisten , deren Chloroplasten von einer Grünalge abstammen. [ 29 ] Euglenophyten sind die einzige Gruppe außerhalb der Diaphoretickes , die Chloroplasten ohne Kleptoplastie besitzt . [ 51 ] [ 52 ] Euglenophyten-Chloroplasten besitzen drei Membranen. Man geht davon aus, dass die Membran des primären Endosymbiontenwirts (z. B. die Grünalgenmembran) verloren ging, sodass die beiden Cyanobakterienmembranen und die Phagosomenmembran des sekundären Wirts erhalten blieben. [ 29 ] Euglenophyten-Chloroplasten besitzen Pyrenoid und Thylakoide , die in Dreiergruppen angeordnet sind. Der durch Photosynthese fixierte Kohlenstoff wird in Form von Paramylon gespeichert , das in membrangebundenen Granula im Zytoplasma des Euglenophyten enthalten ist. [ 12 ] [ 32 ]
Chlorarachniophyten

Chlorarachniophyten sind eine seltene Organismengruppe, die ebenfalls Chloroplasten grünalgenartiger Herkunft besitzt [ 29 ] , obwohl ihre Entstehungsgeschichte komplexer ist als die der Euglenophyten. Der Vorfahre der Chlorarachniophyten war vermutlich ein Eukaryot mit einem von einer Rotalge stammenden Chloroplasten. Dieser verlor dann vermutlich seinen ersten Chloroplasten roter Alge und nahm später eine Grünalge auf, wodurch er seinen zweiten, von einer Grünalge stammenden Chloroplasten erhielt. [ 32 ]
Die Chloroplasten der Chlorarachniophyten sind von vier Membranen umgeben, außer in der Nähe der Zellmembran, wo die Chloroplastenmembranen zu einer Doppelmembran verschmelzen. [ 12 ] Ihre Thylakoide sind in lockeren Dreierstapeln angeordnet. [ 12 ] Chlorarachniophyten besitzen ein Polysaccharid namens Chrysolaminarin , das sie im Zytoplasma speichern [ 32 ] , oft um das ins Zytoplasma hineinragende Chloroplastenpyrenoid herum. [ 12 ]
Chloroplasten der Chlorarachniophyten sind deshalb bemerkenswert, weil die Grünalge, aus der sie stammen, nicht vollständig abgebaut wurde – ihr Zellkern bleibt als Nukleomorph [ 29 ] zwischen der zweiten und dritten Chloroplastenmembran [ 12 ] erhalten – dem periplasmatischen Raum , der dem Zytoplasma der Grünalge entspricht. [ 32 ]
Chloroplasten aus Prasinophyten

Dinoflagellaten der Gattung Lepidodinium haben ihren ursprünglichen Peridinin-Chloroplasten verloren und ihn durch einen Chloroplasten grüner Algen (genauer: eines Prasinophyten ) ersetzt. [ 12 ] [ 53 ] Lepidodinium ist der einzige Dinoflagellat, dessen Chloroplast nicht von Rhodoplasten abstammt. Der Chloroplast ist von zwei Membranen umgeben und besitzt keinen Nukleomorph – alle Nukleomorph-Gene wurden in den Dinophyten- Kern übertragen . [ 53 ] Die endosymbiotische Entstehung dieses Chloroplasten war eine serielle sekundäre Endosymbiose und keine tertiäre Endosymbiose – der Endosymbiont war eine Grünalge mit einem primären Chloroplasten (wodurch ein sekundärer Chloroplast entstand). [ 32 ]
Dreigliedrige Symbiose

Das Wimpertierchen Pseudoblepharisma tenue besitzt zwei bakterielle Symbionten, einen rosafarbenen und einen grünen. Im Jahr 2021 wurde bestätigt, dass beide Symbionten photosynthetisch aktiv sind: Ca. Thiodictyon intracellulare ( Chromatiaceae ), ein purpurnes Schwefelbakterium mit einem Genom, das nur halb so groß ist wie das seiner nächsten bekannten Verwandten; und Chlorella sp. K10, eine Grünalge. [ 54 ] Es existiert außerdem eine Variante von Pseudoblepharisma tenue , die ausschließlich Chloroplasten von Grünalgen enthält und keine endosymbiotischen purpurnen Bakterien aufweist. [ 55 ]
Chloroplasten aus Rotalgen
Sekundäre Chloroplasten, die von Rotalgen abstammen , scheinen nur einmal aufgenommen worden zu sein und diversifizierten sich anschließend in eine große Gruppe, die Chromisten oder Chromalveolaten genannt wird. Heute kommen sie in Haptophyten , Cryptomonaden , Heterokonten , Dinoflagellaten und Apicomplexa (der CASH-Linie) vor. [ 32 ] Sekundäre Chloroplasten von Rotalgen enthalten üblicherweise Chlorophyll c und sind von vier Membranen umgeben. [ 12 ]
Die Monophylie der Chromisten wurde jedoch verworfen, und es gilt als wahrscheinlicher, dass einige Chromisten ihre Plastiden durch die Integration eines anderen Chromisten erworben haben, anstatt sie von einem gemeinsamen Vorfahren zu erben. Cryptophyten scheinen Plastiden von Rotalgen erworben zu haben, die dann von diesen sowohl an die Heterokontophyten als auch an die Haptophyten und schließlich von diesen an die Myzozoa weitergegeben wurden . [ 56 ]
Cryptophyten

Cryptophyten , auch Cryptomonaden genannt, sind eine Algengruppe mit Chloroplasten, die von Rotalgen abstammen. Die Chloroplasten der Cryptophyten besitzen ein Nukleomorph , das dem der Chlorarachniophyten oberflächlich ähnelt . [ 29 ] Cryptophyten-Chloroplasten sind von vier Membranen umgeben. Die äußerste Membran ist mit dem rauen endoplasmatischen Retikulum verbunden . Sie synthetisieren gewöhnliche Stärke , die in Granula im Periplastidenraum gespeichert wird – außerhalb der ursprünglichen Doppelmembran, an der Stelle, die dem Cytoplasma der ursprünglichen Rotalge entspricht. Im Inneren der Cryptophyten-Chloroplasten befinden sich ein Pyrenoid und Thylakoide in Zweierstapeln. [ 12 ] Cryptophyten-Chloroplasten besitzen keine Phycobilisomen , [ 12 ] jedoch Phycobilin-Pigmente , die sie im Thylakoidraum speichern, anstatt sie an der Außenseite ihrer Thylakoidmembranen zu verankern. [ 12 ] [ 29 ]
Cryptophyten könnten eine Schlüsselrolle bei der Verbreitung von Chloroplasten aus Rotalgen gespielt haben. [ 57 ] [ 58 ]
Haptophyten

Haptophyten ähneln Cryptophyten oder Heterokontophyten und sind eng mit ihnen verwandt. [ 32 ] Ihre Chloroplasten besitzen keinen Nukleomorph, [ 12 ] [ 29 ] ihre Thylakoide sind in Dreierstapeln angeordnet, und sie synthetisieren Chrysolaminarin- Zucker, der in Granula vollständig außerhalb des Chloroplasten, im Cytoplasma des Haptophyten, gespeichert wird. [ 12 ]
Stramenopiles (Heterokontophyten)

Die Stramenopiles , auch Heterokontophyten genannt, sind eine sehr große und vielfältige Gruppe von Eukaryoten. Dazu gehören Ochrophyta – zu denen Kieselalgen , Braunalgen (Algen) und Goldalgen (Chrysophyten) gehören [ 39 ] – und Xanthophyceae (auch Gelbalgen genannt). [ 32 ]
Die Chloroplasten der Heterokonten ähneln stark denen der Haptophyten. Sie besitzen ein Pyrenoid , Triplett-Thylakoide und, mit einigen Ausnahmen [ 12 ] , eine vierschichtige Plastidenhülle, deren äußerste Membran mit dem endoplasmatischen Retikulum verbunden ist . Wie die Haptophyten speichern auch die Stramenopilen Zucker in Chrysolaminarin- Granula im Cytoplasma. [ 12 ] Die Chloroplasten der Stramenopilen enthalten Chlorophyll a und, mit wenigen Ausnahmen [ 12 ] , Chlorophyll c . [ 29 ] Sie enthalten außerdem Carotinoide , die ihnen ihre vielfältigen Farben verleihen. [ 39 ]
Apicomplexa, Chromeriden und Dinophyten
Die Alveolaten bilden eine bedeutende Gruppe einzelliger Eukaryoten mit sowohl autotrophen als auch heterotrophen Vertretern. Viele von ihnen besitzen ein von Rotalgen stammendes Plastid. Ein bemerkenswertes Merkmal dieser vielfältigen Gruppe ist der häufige Verlust der Photosynthese. Die meisten dieser Heterotrophen verarbeiten jedoch weiterhin ein nicht-photosynthetisches Plastid. [ 59 ]
Apicomplexa

Apicomplexa sind eine Gruppe der Alveolaten. Wie die Helicosproida sind sie parasitär und besitzen einen nicht-photosynthetischen Chloroplasten. [ 32 ] Früher nahm man an, sie seien mit den Helicosproida verwandt, heute weiß man jedoch, dass die Helicosproida Grünalgen sind und nicht zur CASH-Linie gehören. [ 32 ] Zu den Apicomplexa zählt Plasmodium , der Malariaerreger . Viele Apicomplexa besitzen einen rudimentären, von Rotalgen stammenden Chloroplasten [ 60 ] [ 32 ] , den sogenannten Apicoplasten , den sie von ihren Vorfahren geerbt haben. Apicoplasten haben ihre gesamte Photosynthesefunktion verloren und enthalten weder Photosynthesepigmente noch echte Thylakoide. Sie sind von vier Membranen umgeben, die jedoch nicht mit dem endoplasmatischen Retikulum verbunden sind . [ 12 ] Andere Apicomplexa wie Cryptosporidium haben den Chloroplasten vollständig verloren. [ 60 ] Apicomplexa speichern ihre Energie in Amylopektingranula in ihrem Zytoplasma, obwohl sie nicht photosynthetisch aktiv sind. [ 12 ]
Die Tatsache, dass Apicomplexa ihre nicht-photosynthetischen Chloroplasten beibehalten, zeigt, dass diese neben der Photosynthese wichtige Funktionen erfüllen . Pflanzliche Chloroplasten versorgen Pflanzenzellen neben Zucker mit vielen wichtigen Stoffen, und Apicoplasten bilden da keine Ausnahme: Sie synthetisieren Fettsäuren , Isopentenylpyrophosphat und Eisen-Schwefel-Cluster und sind an einem Teil des Häm- Stoffwechselwegs beteiligt. [ 60 ] Die wichtigste Funktion der Apicoplasten ist die Isopentenylpyrophosphat- Synthese. Tatsächlich sterben Apicomplexa ab, wenn diese Funktion gestört wird, und wenn sie in einem isopentenylpyrophosphatreichen Medium kultiviert werden, stoßen sie das Organell ab. [ 60 ]
Chromeriden

Die Chromeriden sind eine Gruppe von Algen, die in australischen Korallen vorkommen und enge photosynthetische Verwandte der Apicomplexa darstellen. Das erste Mitglied, Chromera velia , wurde 2001 entdeckt und erstmals isoliert. Die Entdeckung von Chromera velia mit ihrer ähnlichen Struktur wie die Apicomplexa liefert ein wichtiges Bindeglied in der Evolutionsgeschichte der Apicomplexa und Dinoflagellaten. Ihre Plastiden besitzen vier Membranen, enthalten kein Chlorophyll c und nutzen die Typ-II-Form der RuBisCO , die sie durch horizontalen Gentransfer erworben haben. [ 61 ]
Dinophyten
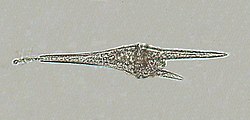
Die Dinoflagellaten bilden eine weitere sehr große und vielfältige Gruppe, von der etwa die Hälfte zumindest teilweise photosynthetisch aktiv ist (d. h. mixotroph ). [ 39 ] [ 53 ] Die Chloroplasten der Dinoflagellaten weisen eine relativ komplexe Entstehungsgeschichte auf. Die meisten Chloroplasten der Dinoflagellaten sind sekundäre, von Rotalgen stammende Chloroplasten. Viele Dinoflagellaten haben den Chloroplasten verloren (und sind somit nicht photosynthetisch aktiv geworden), einige haben ihn durch tertiäre Endosymbiose ersetzt. [ 63 ] Andere ersetzten ihren ursprünglichen Chloroplasten durch einen von Grünalgen stammenden Chloroplasten. [ 29 ] [ 32 ] [ 53 ] Der Peridinin-Chloroplast gilt als der „ursprüngliche“ Chloroplast der Dinoflagellaten, [ 53 ] der in mehreren anderen Dinoflagellaten-Linien verloren gegangen, reduziert, ersetzt wurde oder dort ebenfalls vorkommt. [ 32 ]
Der häufigste Chloroplast der Dinoflagellaten ist der Peridinin-Typ. Er zeichnet sich durch das Carotinoidpigment Peridinin in seinen Chloroplasten sowie durch Chlorophyll a und Chlorophyll c aus. [29] [53 ] Peridinin kommt in keiner anderen Chloroplastengruppe vor . [ 53 ] Der Peridinin - Chloroplast ist von drei Membranen ( gelegentlich zwei) umgeben [ 12 ] , da er die ursprüngliche Zellmembran des Endosymbionten der Rotalge verloren hat. [ 29 ] [ 32 ] Die äußerste Membran ist nicht mit dem endoplasmatischen Retikulum verbunden. [ 12 ] [ 53 ] Peridinin-Chloroplasten enthalten ein Pyrenoid und besitzen dreifach gestapelte Thylakoide. Stärke befindet sich außerhalb des Chloroplasten. [ 12 ] Die DNA von Peridinin-Chloroplasten ist stark reduziert und in viele kleine Ringe fragmentiert. [ 53 ] Der größte Teil des Genoms ist in den Zellkern gewandert, nur noch kritische Gene, die mit der Photosynthese in Zusammenhang stehen, verbleiben im Chloroplasten.
Die meisten Chloroplasten der Dinoflagellaten enthalten RuBisCO der Form II, mindestens die Photosynthesepigmente Chlorophyll a , Chlorophyll c₂ , β -Carotin und mindestens ein für Dinoflagellaten spezifisches Xanthophyll ( Peridinin , Dinoxanthin oder Diadinoxanthin ), was vielen von ihnen eine goldbraune Farbe verleiht. [ 59 ] [ 53 ] Alle Dinoflagellaten speichern Stärke in ihrem Cytoplasma, und die meisten besitzen Chloroplasten mit in Dreierstapeln angeordneten Thylakoiden. [ 12 ]
Chloroplasten, die von Haptophyten stammen
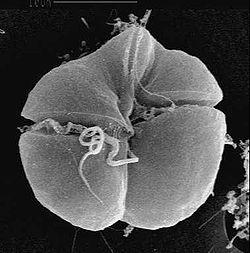
Die Fucoxanthin -Dinophyten-Linien (einschließlich Karlodinium und Karenia ) [ 32 ] verloren ihren ursprünglichen, von Rotalgen stammenden Chloroplasten und ersetzten ihn durch einen neuen, von einem Haptophyten- Endosymbionten stammenden Chloroplasten. Dadurch entstanden tertiäre Plastiden. Karlodinium und Karenia nahmen wahrscheinlich unterschiedliche Endosymbionten auf. [ 32 ] Da der Haptophyten-Chloroplast vier Membranen besitzt, würde man erwarten, dass eine tertiäre Endosymbiose einen sechsmembranigen Chloroplasten hervorbringt, der die Zellmembran des Haptophyten und die phagosomale Vakuole des Dinoflagellaten hinzufügt . [ 64 ] Der Haptophyt wurde jedoch stark reduziert, ihm wurden einige Membranen und sein Zellkern entfernt, sodass nur noch sein Chloroplast (mit seiner ursprünglichen Doppelmembran) und möglicherweise ein oder zwei zusätzliche Membranen um ihn herum übrig blieben. [ 32 ] [ 64 ]
Fucoxanthinhaltige Chloroplasten zeichnen sich durch das Vorhandensein des Pigments Fucoxanthin (genauer gesagt 19′-Hexanoyloxy-Fucoxanthin und/oder 19′-Butanoyloxy-Fucoxanthin ) und das Fehlen von Peridinin aus. Fucoxanthin findet sich auch in Chloroplasten von Haptophyten, was einen Hinweis auf gemeinsame Vorfahren liefert. [ 53 ]
von Kieselalgen stammende Chloroplasten

Einige Dinoflagellaten, wie Kryptoperidinium und Durinskia [ 32 ] , besitzen einen von einer Kieselalge ( Heterokontophyten ) stammenden Chloroplasten [ 29 ] . Diese Chloroplasten sind von bis zu fünf Membranen umgeben [ 29 ] (je nachdem, ob der gesamte Kieselalgen-Endosymbiont oder nur der darin enthaltene, von der Rotalge stammende Chloroplast als Chloroplast gezählt wird). Der Kieselalgen-Endosymbiont ist relativ wenig reduziert – er besitzt noch seine ursprünglichen Mitochondrien [ 32 ] und verfügt über endoplasmatisches Retikulum , Ribosomen , einen Zellkern und natürlich von der Rotalge stammende Chloroplasten – praktisch eine vollständige Zelle [ 66 ] , die sich allesamt im Lumen des endoplasmatischen Retikulums des Wirts befindet . [ 32 ] Der Kieselalgen-Endosymbiont kann jedoch seine eigene Nahrung nicht speichern – sein Speicherpolysaccharid befindet sich stattdessen in Granula im Zytoplasma des Dinoflagellaten-Wirts. [ 12 ] [ 66 ] Der Zellkern des Kieselalgen-Endosymbionten ist zwar vorhanden, kann aber wahrscheinlich nicht als Nukleomorph bezeichnet werden , da er keine Anzeichen einer Genomreduktion aufweist und möglicherweise sogar vergrößert ist . [ 32 ] Kieselalgen wurden mindestens dreimal von Dinoflagellaten phagozytiert. [ 32 ]
Der Kieselalgen-Endosymbiont ist von einer einfachen Membran umgeben [ 53 ] , im Inneren befinden sich Chloroplasten mit vier Membranen. Wie beim Kieselalgen-Vorfahren des Kieselalgen-Endosymbionten besitzen die Chloroplasten Triplett-Thylakoide und -Pyrenoide [ 66 ] .
Bei einigen dieser Gattungen sind die Chloroplasten des Kieselalgen-Endosymbionten nicht die einzigen Chloroplasten im Dinoflagellaten. Der ursprüngliche dreimembranige Peridinin-Chloroplast ist noch vorhanden und hat sich zu einem Augenfleck umgewandelt . [ 29 ] [ 32 ]
Kleptoplastik
Bei einigen mixotrophen Protisten , wie beispielsweise einigen Dinoflagellaten (z. B. Dinophysis ), werden Chloroplasten von einer gefangenen Alge abgetrennt und vorübergehend genutzt. Diese Kleptochloroplasten haben möglicherweise nur eine Lebensdauer von wenigen Tagen und werden dann ersetzt. [ 67 ] [ 68 ]
Chloroplasten von Cryptophyten, einer Dinophytenart
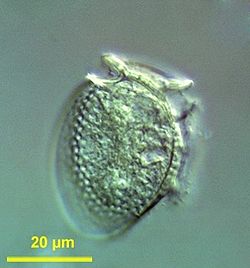
Mitglieder der Gattung Dinophysis besitzen einen Phycobilin -haltigen Chloroplasten [ 64 ], der von einem Cryptophyten stammt . [ 29 ] Der Cryptophyt ist jedoch kein Endosymbiont – es scheint lediglich der Chloroplast übernommen worden zu sein, wobei ihm der Nukleomorph und die beiden äußersten Membranen entfernt wurden , sodass nur noch ein zweimembraniger Chloroplast übrig bleibt. Da Cryptophyten-Chloroplasten ihren Nukleomorph für ihren Erhalt benötigen und Dinophysis- Arten in Zellkultur allein nicht überleben können, ist es möglich (aber nicht bestätigt), dass es sich bei dem Dinophysis- Chloroplasten um einen Kleptoplasten handelt . In diesem Fall würden die Chloroplasten von Dinophysis verschleißen, und Dinophysis - Arten müssten fortwährend Cryptophyten aufnehmen, um neue Chloroplasten zu erhalten und die alten zu ersetzen. [ 53 ]
Chloroplasten-DNA
Chloroplasten besitzen, wie andere endosymbiotische Organellen, ein vom Zellkern getrenntes Genom . Die Existenz der Chloroplasten-DNA (cpDNA) wurde 1959 biochemisch nachgewiesen [ 69 ] und 1962 elektronenmikroskopisch bestätigt [ 70 ]. Die Entdeckung, dass Chloroplasten Ribosomen enthalten [ 71 ] und Proteine synthetisieren [ 72 ] , zeigte, dass sie genetisch semi-autonom sind. Die Chloroplasten-DNA wurde erstmals 1986 sequenziert [ 73 ]. Seitdem wurden Hunderte von Chloroplastengenomen verschiedener Arten sequenziert , wobei es sich hauptsächlich um Landpflanzen und Grünalgen handelt . Glaukophyten , Rotalgen und andere Algengruppen sind stark unterrepräsentiert, was möglicherweise zu einer Verzerrung der Vorstellungen über die „typische“ Struktur und Zusammensetzung der Chloroplasten-DNA führt [ 74 ] .

Molekülstruktur
Mit wenigen Ausnahmen ist das gesamte Genom der meisten Chloroplasten in einem einzigen großen, ringförmigen DNA-Molekül vereint [ 74 ] , typischerweise 120.000–170.000 Basenpaare lang [ 75 ] [ 76 ] [ 77 ] [ 18 ] und mit einer Masse von etwa 80–130 Millionen Dalton [ 78 ] . Während Chloroplastengenome fast immer zu einer ringförmigen Struktur zusammengesetzt werden können, nehmen die physikalischen DNA-Moleküle innerhalb der Zellen eine Vielzahl linearer und verzweigter Formen an [ 74 ] [ 79 ] . Neue Chloroplasten können bis zu 100 Kopien ihres Genoms enthalten [ 75 ] , wobei die Anzahl der Kopien mit zunehmendem Alter der Chloroplasten auf etwa 15–20 abnimmt [ 80 ] .
Die Chloroplasten-DNA ist üblicherweise in Nukleoiden kondensiert , die mehrere Kopien des Chloroplastengenoms enthalten können. In jedem Chloroplasten finden sich zahlreiche Nukleoide. [ 78 ] Bei primitiven Rotalgen sind die Chloroplasten-DNA-Nukleoide im Zentrum des Chloroplasten konzentriert, während sie bei grünen Pflanzen und Grünalgen im gesamten Stroma verteilt sind . [ 81 ] Die Chloroplasten-DNA ist nicht mit echten Histonen assoziiert , Proteinen, die DNA-Moleküle in eukaryotischen Zellkernen dicht verpacken. [ 17 ] Bei Rotalgen hingegen verpacken ähnliche Proteine jeden Chloroplasten-DNA-Ring in einem Nukleoid dicht . [ 81 ]
Viele Chloroplastengenome enthalten zwei invertierte Sequenzwiederholungen , die einen langen Einzelkopie-Abschnitt (LSC) von einem kurzen Einzelkopie-Abschnitt (SSC) trennen. [ 77 ] Ein Paar invertierter Sequenzwiederholungen ist selten identisch, aber stets sehr ähnlich, was offenbar auf konzertierte Evolution zurückzuführen ist . [ 74 ] Die Länge der invertierten Sequenzwiederholungen variiert stark und reicht von 4.000 bis 25.000 Basenpaaren. Sie enthalten zwischen vier und über 150 Gene. [ 74 ] Die invertierten Sequenzwiederholungen sind in Landpflanzen hochkonserviert und weisen nur wenige Mutationen auf. [ 77 ] [ 82 ]
Ähnliche invertierte Wiederholungen finden sich in den Genomen von Cyanobakterien und den beiden anderen Chloroplastenlinien ( Glaucophyta und Rhodophyceae ), was darauf hindeutet, dass sie älter sind als die Chloroplasten selbst. [ 74 ] Einige Chloroplastengenome haben diese invertierten Wiederholungen seither verloren [ 82 ] [ 83 ] oder umgekehrt (wodurch sie zu direkten Wiederholungen wurden ). [ 74 ] Es ist möglich, dass die invertierten Wiederholungen zur Stabilisierung des restlichen Chloroplastengenoms beitragen, da Chloroplastengenome, die einige der invertierten Wiederholungssegmente verloren haben, tendenziell stärker umstrukturiert werden. [ 83 ]
DNA-Reparatur und -Replikation
In den Chloroplasten des Mooses Physcomitrella patens interagiert das DNA-Mismatch- Reparaturprotein Msh1 mit den Rekombinationsreparaturproteinen RecA und RecG, um die Stabilität des Chloroplastengenoms aufrechtzuerhalten . [ 84 ] In den Chloroplasten der Pflanze Arabidopsis thaliana erhält das RecA- Protein die Integrität der Chloroplasten-DNA durch einen Prozess aufrecht, der wahrscheinlich die Rekombinationsreparatur von DNA-Schäden beinhaltet . [ 85 ]

Der Mechanismus der Chloroplasten-DNA-Replikation (cpDNA) ist noch nicht vollständig aufgeklärt, es wurden jedoch zwei Hauptmodelle vorgeschlagen. Wissenschaftler versuchen seit den 1970er Jahren, die Chloroplasten-Replikation mittels Elektronenmikroskopie zu beobachten. [ 86 ] [ 87 ] Die Ergebnisse dieser Mikroskopie-Experimente führten zu der Annahme, dass die Chloroplasten-DNA mithilfe einer Doppelverdrängungsschleife (D-Schleife) repliziert wird. Während sich die D-Schleife durch die ringförmige DNA bewegt, nimmt sie eine Theta-Zwischenform an, auch bekannt als Cairns-Replikationsintermediat, und schließt die Replikation durch einen Rolling-Circle-Mechanismus ab. [ 86 ] [ 88 ] Die Transkription beginnt an spezifischen Replikationsursprüngen. Mehrere Replikationsgabeln öffnen sich und ermöglichen es der Replikationsmaschinerie, die DNA zu transkribieren. Im Verlauf der Replikation wachsen die Gabeln und konvergieren schließlich. Die neu entstandenen cpDNA-Strukturen trennen sich und bilden Tochterchromosomen.
Zusätzlich zu den frühen mikroskopischen Experimenten wird dieses Modell auch durch die in cpDNA beobachteten Desaminierungsgrade gestützt. [ 86 ] Desaminierung tritt auf, wenn eine Aminogruppe verloren geht, und ist eine Mutation, die häufig zu Basenänderungen führt. Bei der Desaminierung von Adenin entsteht Hypoxanthin . Hypoxanthin kann an Cytosin binden, und bei der Replikation des XC-Basenpaares entsteht ein GC (also eine A → G-Basenänderung). [ 89 ]

In der cpDNA existieren mehrere A→G-Desaminierungsgradienten. DNA ist anfällig für Desaminierungsereignisse, wenn sie einzelsträngig vorliegt. Bei der Bildung von Replikationsgabeln ist der nicht kopierte Strang einzelsträngig und somit gefährdet, A→G-Desaminierung zu erleiden. Daher deuten Desaminierungsgradienten darauf hin, dass Replikationsgabeln mit hoher Wahrscheinlichkeit vorhanden waren und in welche Richtung sie sich ursprünglich öffneten (der höchste Gradient befindet sich höchstwahrscheinlich in der Nähe des Startpunkts, da dieser am längsten einzelsträngig war). [ 86 ] Dieser Mechanismus gilt bis heute als führende Theorie; eine zweite Theorie besagt jedoch, dass der größte Teil der cpDNA linear ist und durch homologe Rekombination repliziert wird. Sie geht weiterhin davon aus, dass nur ein kleiner Teil des genetischen Materials in zirkulären Chromosomen vorliegt, während der Rest in verzweigten, linearen oder anderen komplexen Strukturen existiert. [ 86 ] [ 88 ]
Ein konkurrierendes Modell zur cpDNA-Replikation besagt, dass der größte Teil der cpDNA linear ist und an homologer Rekombination und Replikationsstrukturen beteiligt ist, die den linearen und zirkulären DNA-Strukturen des Bakteriophagen T4 ähneln . [ 88 ] [ 90 ] Es ist bekannt, dass einige Pflanzen, wie beispielsweise Mais, lineare cpDNA besitzen und dass weitere Arten komplexe Strukturen aufweisen, die Wissenschaftler noch nicht vollständig verstehen. [ 88 ] Bei den ersten Experimenten mit cpDNA beobachteten Wissenschaftler zwar lineare Strukturen, führten diese jedoch auf gebrochene Ringe zurück. [ 88 ] Sollten die in cpDNA-Experimenten beobachteten verzweigten und komplexen Strukturen real sein und nicht Artefakte von aneinandergereihter zirkulärer DNA oder gebrochenen Ringen darstellen, reicht ein D-Loop-Replikationsmechanismus nicht aus, um die Replikation dieser Strukturen zu erklären. [ 88 ] Gleichzeitig erweitert die homologe Rekombination nicht die in Plastiden beobachteten multiplen A→G-Gradienten. [ 86 ] Da es nicht gelingt, den Desaminierungsgradienten sowie die zahlreichen Pflanzenarten, bei denen zirkuläre cpDNA nachgewiesen wurde, zu erklären, geht man weiterhin davon aus, dass der größte Teil der cpDNA zirkulär ist und sich höchstwahrscheinlich über einen D-Schleifen-Mechanismus repliziert.
Geninhalt und Proteinsynthese
Die Vorfahren der Cyanobakterien, aus denen die Chloroplasten hervorgingen, besaßen vermutlich ein Genom mit über 3000 Genen, doch in den heutigen Chloroplastengenomen sind nur noch etwa 100 Gene erhalten. [ 18 ] [ 22 ] [ 76 ] Diese Gene codieren für verschiedene Funktionen, hauptsächlich für die Proteinbiosynthese und die Photosynthese . Wie bei Prokaryoten sind die Gene in der Chloroplasten-DNA in Operons organisiert . [ 22 ] Im Gegensatz zu prokaryotischen DNA-Molekülen enthalten Chloroplasten-DNA-Moleküle Introns (auch pflanzliche mitochondriale DNA enthält Introns, die menschliche mtDNA jedoch nicht). [ 91 ]
Bei Landpflanzen ist der Inhalt des Chloroplastengenoms recht ähnlich. [ 77 ]
Reduktion des Chloroplastengenoms und Gentransfer
Im Laufe der Zeit wurden viele Teile des Chloroplastengenoms in das Kerngenom des Wirts übertragen [ 75 ] [ 76 ] [ 92 ], ein Prozess, der als endosymbiotischer Gentransfer bezeichnet wird . Dadurch ist das Chloroplastengenom im Vergleich zu dem freilebender Cyanobakterien stark reduziert . Chloroplasten enthalten etwa 60–100 Gene, während Cyanobakterien oft mehr als 1500 Gene in ihrem Genom aufweisen [ 93 ] . Kürzlich wurde ein Plastid ohne Genom entdeckt, was zeigt, dass Chloroplasten ihr Genom während des endosymbiotischen Gentransfers verlieren können [ 94 ] .
Durch endosymbiotischen Gentransfer wissen wir mehr über den Verlust von Chloroplasten in vielen CASH-Linien. Selbst wenn ein Chloroplast verloren geht, bleiben die von ihm an den Zellkern des ehemaligen Wirts abgegebenen Gene erhalten und liefern so Beweise für die Existenz des verlorenen Chloroplasten. Beispielsweise besitzen Kieselalgen (eine Heterokontophytengruppe ) heute zwar einen von Rotalgen stammenden Chloroplasten , doch das Vorhandensein vieler Gene von Grünalgen im Zellkern der Kieselalge belegt, dass der Vorfahre der Kieselalge einst einen von Grünalgen stammenden Chloroplasten besaß, der später durch den Rotalgenchloroplasten ersetzt wurde. [ 50 ]
Bei Landpflanzen lassen sich etwa 11–14 % der DNA in ihren Zellkernen auf die Chloroplasten zurückführen [ 46 ] , bei Arabidopsis sogar bis zu 18 % , was etwa 4.500 proteinkodierenden Genen entspricht [ 95 ] . In jüngster Zeit kam es bei Landpflanzen zu einigen wenigen Gentransfers von der Chloroplasten-DNA in das Kerngenom [ 76 ] .
Von den etwa 3000 in Chloroplasten vorkommenden Proteinen werden rund 95 % von Kerngenen kodiert. Viele Proteinkomplexe der Chloroplasten bestehen aus Untereinheiten sowohl des Chloroplastengenoms als auch des Kerngenoms der Wirtszelle. Daher muss die Proteinsynthese zwischen Chloroplast und Zellkern koordiniert werden. Die Chloroplasten unterliegen größtenteils der nukleären Kontrolle, können aber auch Signale aussenden, die die Genexpression im Zellkern regulieren ( retrograde Signalübertragung) . [ 96 ] Jüngste Forschungsergebnisse deuten darauf hin, dass Teile des retrograden Signalnetzwerks, die einst als charakteristisch für Landpflanzen galten, bereits in einem Algenvorfahren entstanden sind [ 97 ] [ 98 ] [ 99 ] und sich in koexprimierte Gencluster der nächsten Algenverwandten der Landpflanzen integriert haben. [ 100 ]
Proteinsynthese
Die Proteinsynthese in Chloroplasten ist auf zwei RNA-Polymerasen angewiesen . Eine wird von der Chloroplasten-DNA codiert, die andere stammt aus dem Zellkern . Die beiden RNA-Polymerasen können unterschiedliche Promotoren im Chloroplastengenom erkennen und binden. [ 101 ] Die Ribosomen in Chloroplasten ähneln bakteriellen Ribosomen. [ 102 ]
Protein-Targeting und Import
Da so viele Chloroplastengene in den Zellkern verlagert wurden, werden viele Proteine , die ursprünglich im Chloroplasten translatiert worden wären , nun im Zytoplasma der Pflanzenzelle synthetisiert. Diese Proteine müssen zurück in den Chloroplasten transportiert und durch mindestens zwei Chloroplastenmembranen importiert werden. [ 103 ]
Interessanterweise wird etwa die Hälfte der Proteinprodukte transferierter Gene nicht einmal wieder in die Chloroplasten transportiert. Viele entwickeln sich zu Exaptationen und übernehmen neue Funktionen, wie die Beteiligung an der Zellteilung , dem Proteintransport und sogar der Krankheitsresistenz . Einige Chloroplastengene finden neue Funktionen im mitochondrialen Genom – die meisten werden zu nicht-funktionalen Pseudogenen , obwohl einige tRNA- Gene weiterhin in den Mitochondrien aktiv sind . [ 93 ] Manche transferierten Chloroplasten-DNA-Proteinprodukte werden in den Sekretionsweg geleitet , [ 93 ] obwohl viele sekundäre Plastiden von einer äußeren Membran umgeben sind, die von der Zellmembran der Wirtszelle stammt und sich daher topologisch außerhalb der Zelle befindet. Um vom Zytosol in die Chloroplasten zu gelangen , muss die Zellmembran durchquert werden, was den Eintritt in den extrazellulären Raum bedeutet . In diesen Fällen werden die für die Chloroplasten bestimmten Proteine zunächst über den Sekretionsweg transportiert. [ 32 ]
Da die Zelle, die einen Chloroplasten aufnahm, bereits Mitochondrien (und Peroxisomen sowie eine Zellmembran für die Sekretion) besaß , musste der neue Chloroplastenwirt ein einzigartiges Protein-Targeting-System entwickeln , um zu vermeiden, dass Chloroplastenproteine zum falschen Organell transportiert werden . [ 103 ]

In den meisten, aber nicht allen Fällen werden nukleär kodierte Chloroplastenproteine mit einem abspaltbaren Transitpeptid translatiert , das an den N-Terminus des Proteinvorläufers angefügt wird. Manchmal befindet sich die Transitsequenz am C-Terminus des Proteins [ 105 ] oder innerhalb des funktionellen Teils des Proteins. [ 103 ]
Transportproteine und Membrantranslokone
Nach der Synthese eines Chloroplasten- Polypeptids an einem Ribosom im Zytosol phosphoryliert ein für Chloroplastenproteine spezifisches Enzym [ 106 ] viele (aber nicht alle) dieser Proteine in ihren Transitsequenzen, d. h. es fügt ihnen eine Phosphatgruppe hinzu. [ 103 ] Die Phosphorylierung unterstützt viele Proteine bei der Bindung des Polypeptids und verhindert dessen vorzeitige Faltung . [ 103 ] Dies ist wichtig, da es verhindert, dass Chloroplastenproteine ihre aktive Form annehmen und ihre Chloroplastenfunktionen am falschen Ort – im Zytosol – ausführen . [ 107 ] [ 108 ] Gleichzeitig müssen sie eine ausreichende Struktur beibehalten, um vom Chloroplasten erkannt zu werden. [ 107 ] Diese Proteine unterstützen außerdem den Import des Polypeptids in den Chloroplasten. [ 103 ]
Von hier aus müssen Chloroplastenproteine , die für das Stroma bestimmt sind , zwei Proteinkomplexe passieren: den TOC - Komplex ( Translokon auf der äußeren Chloroplastenmembran ) und den TIC-Translokon ( Translokon auf der inneren Chloroplastenmembran ) . [ 103 ] Chloroplasten-Polypeptidketten durchlaufen wahrscheinlich oft beide Komplexe gleichzeitig, aber der TIC-Komplex kann auch im Intermembranraum verlorene Präproteine zurückholen . [ 103 ]
Struktur

Bei Landpflanzen sind Chloroplasten im Allgemeinen linsenförmig, 3–10 μm im Durchmesser und 1–3 μm dick. [ 109 ] [ 18 ] Die Chloroplasten von Maiskeimlingen haben ein Volumen von ≈20 μm³. [ 18 ] Eine größere Vielfalt an Chloroplastenformen findet sich bei Algen , die oft nur einen einzigen Chloroplasten besitzen [ 12 ] , der netzartig (z. B. Oedogonium ), [ 110 ] becherförmig (z. B. Chlamydomonas ), [ 111 ] spiralförmig wie ein Band um die Zellränder (z. B. Spirogyra ), [ 112 ] oder als leicht verdrehte Bänder an den Zellrändern (z. B. Sirogonium ) [ 113 ] geformt sein kann. Einige Algen besitzen zwei Chloroplasten pro Zelle; Bei Zygnema sind sie sternförmig [ 114 ] , bei Desmidiales hingegen nehmen sie die Form einer halben Zelle ein [ 115 ] . Bei manchen Algen füllt der Chloroplast den größten Teil der Zelle aus und enthält Taschen für den Zellkern und andere Organellen [ 12 ] . So besitzen beispielsweise einige Chlorella -Arten einen becherförmigen Chloroplasten, der einen Großteil der Zelle einnimmt [ 116 ] .
Alle Chloroplasten besitzen mindestens drei Membransysteme: die äußere Chloroplastenmembran, die innere Chloroplastenmembran und das Thylakoidsystem . Die beiden innersten Lipiddoppelschichtmembranen [ 117 ] , die alle Chloroplasten umgeben, entsprechen der äußeren und inneren Membran der gramnegativen Zellwand des ursprünglichen Cyanobakteriums [ 29 ] [ 118 ] [ 119 ] und nicht der Phagosomenmembran des Wirts, die wahrscheinlich verloren ging. [ 29 ] Chloroplasten, die durch sekundäre Endosymbiose entstanden sind, können zusätzliche Membranen besitzen, die diese drei umgeben. [ 30 ] Innerhalb der äußeren und inneren Chloroplastenmembranen befindet sich das Chloroplastenstroma , eine halbgelartige Flüssigkeit [ 23 ], die einen Großteil des Chloroplastenvolumens ausmacht und in der das Thylakoidsystem schwimmt.

Es gibt einige weit verbreitete Missverständnisse bezüglich der äußeren und inneren Chloroplastenmembranen. Die Tatsache, dass Chloroplasten von einer Doppelmembran umgeben sind, wird oft als Beweis dafür angeführt, dass sie von endosymbiontischen Cyanobakterien abstammen . Dies wird häufig so interpretiert, als sei die äußere Chloroplastenmembran das Produkt einer Einstülpung der Wirtszellmembran zu einem Vesikel, das das ursprüngliche Cyanobakterium umschließt – was jedoch nicht stimmt. Beide Chloroplastenmembranen sind homolog zu den ursprünglichen Doppelmembranen des Cyanobakteriums. [ 29 ]
Die Chloroplasten-Doppelmembran wird häufig mit der Mitochondrien- Doppelmembran verglichen. Dieser Vergleich ist jedoch nicht zulässig, da die innere Mitochondrienmembran Protonenpumpen transportiert und die oxidative Phosphorylierung zur ATP- Gewinnung ermöglicht. Die einzige vergleichbare Chloroplastenstruktur ist das innere Thylakoidsystem. Dennoch verläuft der H + -Ionenfluss im Chloroplasten entgegengesetzt zur oxidativen Phosphorylierung in den Mitochondrien. [ 23 ] [ 120 ] Zudem besitzt die innere Chloroplastenmembran, die den Metabolitentransport reguliert und bestimmte Stoffe synthetisiert, kein funktionelles Gegenstück in den Mitochondrien. [ 23 ]
Äußere Chloroplastenmembran
Die äußere Chloroplastenmembran ist eine semipermeable Membran, durch die kleine Moleküle und Ionen leicht diffundieren können. [ 121 ] Sie ist jedoch für größere Proteine nicht durchlässig , sodass die im Zytoplasma der Zelle synthetisierten Chloroplastenpolypeptide mithilfe des TOC - Komplexes oder Translokons auf der äußeren Chloroplastenmembran transportiert werden müssen . [ 103 ]
Die Chloroplastenmembranen ragen manchmal in das Zytoplasma hinein und bilden ein Stromulum oder ein Stroma - haltiges Tubulus . Stromulen sind in Chloroplasten sehr selten und kommen in anderen Plastiden wie Chromoplasten in Blütenblättern und Amyloplasten in Wurzeln viel häufiger vor. [ 122 ] [ 123 ] Sie dienen möglicherweise der Vergrößerung der Chloroplastenoberfläche für den Transport durch die Membran, da sie oft verzweigt und mit dem endoplasmatischen Retikulum verflochten sind . [ 124 ] Als sie 1962 erstmals beobachtet wurden, hielten einige Pflanzenbiologen diese Strukturen für Artefakte und behaupteten, Stromulen seien lediglich ungewöhnlich geformte Chloroplasten mit verengten Bereichen oder sich teilende Chloroplasten . [ 125 ] Es gibt jedoch zunehmend Hinweise darauf, dass Stromulen funktionelle, integrale Bestandteile pflanzlicher Zellplastiden und nicht bloß Artefakte sind. [ 126 ]
Intermembranraum und Peptidoglykanwand

Normalerweise existiert zwischen der äußeren und der inneren Chloroplastenmembran ein dünner Intermembranraum von etwa 10–20 Nanometern Dicke. [ 127 ]
Die Chloroplasten der Glaucophyten-Algen besitzen eine Peptidoglykanschicht zwischen den Chloroplastenmembranen. Diese entspricht der Peptidoglykan-Zellwand ihrer cyanobakteriellen Vorfahren, die sich ebenfalls zwischen den beiden Zellmembranen befindet. Diese Chloroplasten werden Muroplasten genannt (vom lateinischen „mura“ , was „Wand“ bedeutet). Man ging zunächst davon aus, dass andere Chloroplasten die cyanobakterielle Zellwand verloren hätten, wodurch ein Intermembranraum zwischen den beiden Chloroplastenhüllmembranen entstanden sei [ 23 ]. Inzwischen wurde diese Struktur jedoch auch bei Moosen, Bärlappgewächsen und Farnen nachgewiesen [ 128 ] .
Innere Chloroplastenmembran
Die innere Chloroplastenmembran grenzt an das Stroma und reguliert den Stoffaustausch zwischen Chloroplast und Umgebung. Nach dem Durchtritt durch den TOC-Komplex in der äußeren Chloroplastenmembran müssen Polypeptide den TIC-Komplex ( Translokon der inneren Chloroplastenmembran ) passieren, der sich in der inneren Chloroplastenmembran befindet. [ 103 ]
Die innere Chloroplastenmembran reguliert nicht nur den Stoffaustausch, sondern ist auch der Ort der Synthese von Fettsäuren , Lipiden und Carotinoiden . [ 23 ]
Peripheres Retikulum
Einige Chloroplasten enthalten eine Struktur namens peripheres Chloroplastenretikulum . [ 127 ] Es findet sich häufig in den Chloroplasten von C4 - Pflanzen , wurde aber auch in einigen C3-Angiospermen [23] und sogar in einigen Gymnospermen [129] nachgewiesen . Das periphere Chloroplastenretikulum besteht aus einem Labyrinth von Membranröhrchen und Vesikeln, die mit der inneren Chloroplastenmembran verbunden sind und sich in die innere Stromaflüssigkeit des Chloroplasten erstrecken . Man geht davon aus, dass es die Oberfläche des Chloroplasten für den transmembranären Transport zwischen Stroma und Zytoplasma vergrößert . Die gelegentlich beobachteten kleinen Vesikel könnten als Transportvesikel für den Stoffaustausch zwischen Thylakoiden und Intermembranraum dienen. [ 130 ]
Stroma
Die proteinreiche , [ 23 ] alkalische , [ 120 ] wässrige Flüssigkeit innerhalb der inneren Chloroplastenmembran und außerhalb des Thylakoidraums wird als Stroma bezeichnet [ 23 ] und entspricht dem Cytosol des ursprünglichen Cyanobakteriums . Nukleoide der Chloroplasten-DNA , Chloroplasten- Ribosomen , das Thylakoidsystem mit Plastoglobuli , Stärkekörner und zahlreiche Proteine befinden sich darin. Der Calvin-Zyklus , der CO₂ in G3P fixiert , findet im Stroma statt.
Chloroplasten-Ribosomen

Chloroplasten besitzen eigene Ribosomen, mit denen sie einen kleinen Teil ihrer Proteine synthetisieren. Chloroplastenribosomen sind etwa zwei Drittel so groß wie cytoplasmatische Ribosomen (ca. 17 nm gegenüber 25 nm ). [ 127 ] Sie nehmen mRNAs auf , die von der Chloroplasten-DNA transkribiert werden , und übersetzen diese in Proteine. Obwohl die Translation in Chloroplasten Ähnlichkeiten mit bakteriellen Ribosomen aufweist , [ 17 ] ist sie komplexer als in Bakterien, weshalb Chloroplastenribosomen einige chloroplastenspezifische Merkmale besitzen. [ 131 ] [ 132 ]
Die kleinen ribosomalen RNA- Untereinheiten einiger Chlorophyten und Eugleniden- Chloroplasten weisen keine Motive für die Shine-Dalgarno-Sequenzerkennung auf [ 133 ] , die für den Translationsstart in den meisten Chloroplasten und Prokaryoten als essentiell gilt . [ 134 ] [ 135 ] Ein solcher Verlust wird selten auch in anderen Plastiden und Prokaryoten beobachtet. [ 133 ] [ 136 ] Eine zusätzliche 4,5S rRNA mit Homologie zum 3'-Ende der 23S rRNA findet sich in höheren Pflanzen. [ 132 ]
Plastoglobuli
Plastoglobuli ( Singular Plastoglobulus , manchmal auch Plastoglobuli(s) geschrieben ) sind kugelförmige Bläschen aus Lipiden und Proteinen [ 23 ] mit einem Durchmesser von etwa 45–60 Nanometern. [ 137 ] Sie sind von einer Lipidmonoschicht umgeben . [ 137 ] Plastoglobuli kommen in allen Chloroplasten vor [ 127 ] , treten aber häufiger auf, wenn der Chloroplast oxidativem Stress ausgesetzt ist [ 137 ] oder wenn er altert und sich zu einem Gerontoplasten entwickelt . [ 23 ] Unter diesen Bedingungen weisen Plastoglobuli auch eine größere Größenvariation auf. [ 137 ] Sie sind auch in Etioplasten häufig , ihre Anzahl nimmt jedoch mit der Reifung der Etioplasten zu Chloroplasten ab. [ 137 ]
Plastoglobuli enthalten sowohl Strukturproteine als auch Enzyme, die an der Lipidsynthese und dem Lipidstoffwechsel beteiligt sind . Sie enthalten viele Arten von Lipiden , darunter Plastochinon , Vitamin E , Carotinoide und Chlorophylle . [ 137 ]
Früher ging man davon aus, dass Plastoglobuli frei im Stroma schwimmen , heute nimmt man jedoch an, dass sie permanent entweder an ein Thylakoid oder an einen anderen, an ein Thylakoid gebundenen Plastoglobulus anhaften. Diese Konfiguration ermöglicht den Austausch von Inhalten zwischen einem Plastoglobulus und dem Thylakoidnetzwerk. [ 137 ] In normalen grünen Chloroplasten kommen die meisten Plastoglobuli einzeln vor und sind direkt an ihr zugehöriges Thylakoid gebunden. In alten oder gestressten Chloroplasten treten Plastoglobuli eher in Gruppen oder Ketten auf, die jedoch stets an ein Thylakoid verankert sind. [ 137 ]
Plastoglobuli entstehen, wenn sich zwischen den Schichten der Lipiddoppelschicht der Thylakoidmembran eine Blase bildet oder von bereits vorhandenen Plastoglobuli abknospen – sie lösen sich jedoch nie ab und schwimmen nicht ins Stroma. [ 137 ] Praktisch alle Plastoglobuli bilden sich an oder nahe den stark gekrümmten Rändern der Thylakoidscheiben oder -membranen. Sie kommen zudem häufiger auf Stromathylakoiden als auf Granalthylakoiden vor . [ 137 ]

Stärkekörner
Stärkekörner sind in Chloroplasten sehr häufig und nehmen typischerweise 15 % des Organellenvolumens ein [ 138 ]. In einigen anderen Plastiden wie Amyloplasten können sie jedoch so groß werden, dass sie die Form des Organells verändern [ 127 ] . Stärkekörner sind lediglich Ansammlungen von Stärke im Stroma und werden nicht von einer Membran umschlossen [ 127 ] .
Stärkekörner entstehen und wachsen im Laufe des Tages, während die Chloroplasten Zucker synthetisieren . Nachts werden sie verbraucht, um die Atmung anzutreiben und den Zuckerexport in das Phloem fortzusetzen . [ 139 ] In reifen Chloroplasten ist es jedoch selten, dass ein Stärkekorn vollständig verbraucht wird oder sich ein neues ansammelt. [ 138 ]
Stärkekörner unterscheiden sich in ihrer Zusammensetzung und Lage zwischen verschiedenen Chloroplastenlinien. Bei Rotalgen befinden sich die Stärkekörner im Zytoplasma und nicht in den Chloroplasten. [ 140 ] Bei C4 - Pflanzen fehlen den Mesophyllchloroplasten , die keine Zucker synthetisieren, Stärkekörner. [ 23 ]
RuBisCO

Das Chloroplastenstroma enthält zahlreiche Proteine, wobei RuBisCO das häufigste und wichtigste ist und wahrscheinlich auch das am häufigsten vorkommende Protein der Erde darstellt. [ 120 ] RuBisCO ist das Enzym, das CO₂ in Zuckermoleküle umwandelt . In C₃ - Pflanzen ist RuBisCO in allen Chloroplasten reichlich vorhanden, während es in C₄ - Pflanzen auf die Bündelscheidenchloroplasten beschränkt ist , wo der Calvin -Zyklus stattfindet . [ 141 ]
Pyrenoide
Die Chloroplasten einiger Hornmoose [ 142 ] und Algen enthalten sogenannte Pyrenoide . Diese kommen in höheren Pflanzen nicht vor. [ 143 ] Pyrenoide sind annähernd kugelförmige und stark lichtbrechende Gebilde, in denen Stärke in Pflanzen, die sie enthalten, gespeichert wird. Sie bestehen aus einer für Elektronen undurchsichtigen Matrix, die von zwei halbkugelförmigen Stärkeplättchen umgeben ist. Die Stärke lagert sich während der Reifung der Pyrenoide ab. [ 144 ] In Algen mit Kohlenstoffkonzentrierungsmechanismen befindet sich das Enzym RuBisCO in den Pyrenoiden. Stärke kann sich auch um die Pyrenoide herum anreichern, wenn CO₂ knapp ist. [ 143 ] Pyrenoide können sich teilen und neue Pyrenoide bilden oder „de novo“ entstehen . [ 144 ] [ 145 ]
Thylakoidsystem

Thylakoide (manchmal auch Thylakoïden geschrieben ) [ 147 ] sind kleine, miteinander verbundene Säckchen, die die Membranen enthalten, auf denen die Lichtreaktionen der Photosynthese stattfinden. Das Wort Thylakoid stammt vom griechischen Wort thylakos , was „Sack“ bedeutet. [ 148 ]
Im Stroma der Chloroplasten befindet sich das Thylakoidsystem , eine hochdynamische Ansammlung von Membransäckchen, den Thylakoiden , in denen Chlorophyll vorkommt und die Lichtreaktionen der Photosynthese stattfinden. [ 11 ] In den meisten Chloroplasten von Gefäßpflanzen sind die Thylakoide in Stapeln, den Grana, angeordnet, [ 149 ] während sie in bestimmten Chloroplasten von C4 - Pflanzen [ 141 ] und einigen Algenchloroplasten frei schwimmen. [ 12 ]
Thylakoidstruktur

Mit einem Lichtmikroskop lassen sich winzige grüne Körnchen – die Grana genannt werden – gerade noch erkennen . [ 127 ] Die Elektronenmikroskopie ermöglichte es, das Thylakoidsystem detaillierter darzustellen. Dabei zeigte sich, dass es aus Stapeln flacher Thylakoide , den Grana, und langen, miteinander verbundenen Stromathylakoiden besteht, die verschiedene Grana verknüpfen. [ 127 ] Im Transmissionselektronenmikroskop erscheinen die Thylakoidmembranen als abwechselnd helle und dunkle Bänder mit einer Dicke von 8,5 Nanometern. [ 127 ]
Die dreidimensionale Struktur des Thylakoidmembransystems ist umstritten. Es wurden zahlreiche Modelle vorgeschlagen, wobei das helikale Modell am weitesten verbreitet ist. In diesem Modell sind Granastapel aus Thylakoiden von helikalen Stromathylakoiden umhüllt. [ 150 ] Ein anderes Modell, das sogenannte Bifurkationsmodell, das auf der ersten elektronenmikroskopischen Tomographiestudie pflanzlicher Thylakoidmembranen basiert, beschreibt die Stromamembranen als breite, lamellare Schichten, die senkrecht zu den Granasäulen verlaufen und sich in mehrere parallele Scheiben aufspalten, welche die Granum-Stroma-Einheit bilden. [ 151 ] Das helikale Modell wurde durch mehrere weitere Arbeiten gestützt, [ 149 ] [ 152 ] letztendlich konnte jedoch 2019 festgestellt werden, dass Merkmale beider Modelle – des helikalen und des Bifurkationsmodells – durch neu entdeckte linksgängige helikale Membranverbindungen zusammengeführt werden. [ 146 ] Wahrscheinlich aus Gründen der Einfachheit wird das Thylakoidsystem immer noch häufig durch ältere „Naben-Speichen“-Modelle dargestellt, bei denen die Grana durch Röhren aus Stromathylakoiden miteinander verbunden sind. [ 153 ]
Grana bestehen aus Stapeln abgeflachter, kreisförmiger Granalthylakoide, die Pfannkuchen ähneln. Jedes Granum kann zwischen zwei und hundert Thylakoiden enthalten [ 127 ] , wobei Grana mit 10–20 Thylakoiden am häufigsten vorkommen [ 149 ] . Um die Grana herum sind mehrere parallele, rechtsdrehende Stromathylakoide gewickelt, die auch als Lamellenthylakoide bezeichnet werden. Die Spiralen steigen in einem Winkel von etwa 20° an und verbinden sich mit jedem Granalthylakoid über eine brückenartige Spaltverbindung [ 149 ] [ 152 ] [ 146 ] .
Die Stromalamellen erstrecken sich als große, senkrecht zu den Granasäulen verlaufende Flächen. Diese Flächen sind entweder direkt oder über Verzweigungen, die linkshändige helikale Membranoberflächen bilden, mit den rechtsdrehenden Helices verbunden. [ 146 ] Die linkshändigen helikalen Oberflächen weisen einen ähnlichen Neigungswinkel wie die rechtsdrehenden Helices (~20°) auf, jedoch nur ein Viertel ihrer Steigung. Pro Granum befinden sich etwa vier linkshändige helikale Verzweigungen, wodurch ein hinsichtlich der Steigung ausgeglichenes Netzwerk aus rechts- und linksdrehenden helikalen Membranoberflächen mit unterschiedlichen Radien und Steigungen entsteht, das das Netzwerk mit minimaler Oberflächen- und Biegeenergie stabilisiert. [ 146 ] Obwohl verschiedene Teile des Thylakoidsystems unterschiedliche Membranproteine enthalten, sind die Thylakoidmembranen durchgehend, und der von ihnen umschlossene Thylakoidraum bildet ein einziges, zusammenhängendes Labyrinth. [ 149 ]
Thylakoidzusammensetzung
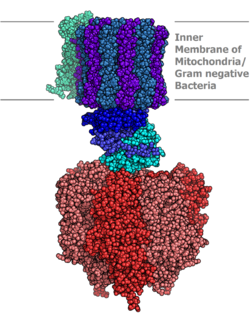
In den Thylakoidmembranen sind wichtige Proteinkomplexe eingebettet, die die Lichtreaktionen der Photosynthese durchführen . Photosystem II und Photosystem I enthalten Lichtsammelkomplexe mit Chlorophyll und Carotinoiden , die Lichtenergie absorbieren und zur Anregung von Elektronen nutzen. Moleküle in der Thylakoidmembran verwenden die angeregten Elektronen, um Wasserstoffionen in den Thylakoidraum zu pumpen, wodurch der pH-Wert sinkt und das Medium sauer wird. Die ATP-Synthase ist ein großer Proteinkomplex, der den Konzentrationsgradienten der Wasserstoffionen im Thylakoidraum nutzt, um ATP- Energie zu erzeugen, während die Wasserstoffionen zurück ins Stroma strömen – ähnlich einer Turbine in einem Staudamm. [ 120 ]
Es gibt zwei Arten von Thylakoiden: Granalthylakoide, die in Grana angeordnet sind, und Stromathylakoide, die mit dem Stroma in Kontakt stehen . Granalthylakoide sind scheibenförmige, scheibenförmige Strukturen mit einem Durchmesser von etwa 300–600 Nanometern. Stromathylakoide sind spiralförmige Membranen, die sich um die Grana winden. [ 149 ] Die flachen Ober- und Unterseiten der Granalthylakoide enthalten ausschließlich den relativ flachen Photosystem-II- Proteinkomplex. Dadurch können sie sich dicht stapeln und Grana mit vielen Schichten eng aneinanderliegender Membranen, der sogenannten Granalmembran, bilden. Dies erhöht die Stabilität und vergrößert die Oberfläche für die Lichtabsorption. [ 149 ]
Im Gegensatz dazu sind Photosystem I und ATP-Synthase große Proteinkomplexe, die in das Stroma hineinragen. Sie passen nicht in die anliegenden Granamembranen und befinden sich daher in der Stromathylakoidmembran – an den Rändern der Granathylakoidscheiben und der Stromathylakoide. Diese großen Proteinkomplexe könnten als Abstandshalter zwischen den Stromathylakoidschichten fungieren. [ 149 ]
Die Anzahl der Thylakoide und die Gesamtfläche der Thylakoide eines Chloroplasten werden durch Lichteinwirkung beeinflusst. Beschattete Chloroplasten enthalten größere und zahlreichere Grana mit einer größeren Thylakoidmembranfläche als Chloroplasten, die hellem Licht ausgesetzt sind; letztere weisen kleinere und weniger Grana sowie eine geringere Thylakoidfläche auf. Die Ausdehnung der Thylakoide kann sich innerhalb von Minuten nach Lichteinwirkung oder -entzug verändern. [ 130 ]
Pigmente und Chloroplastenfarben
In den in den Thylakoidmembranen der Chloroplasten eingebetteten Photosystemen befinden sich verschiedene Photosynthesepigmente , die Lichtenergie absorbieren und weiterleiten . Die Pigmenttypen unterscheiden sich in den verschiedenen Chloroplastengruppen und sind für die große Vielfalt der Chloroplastenfärbungen verantwortlich. Andere Plastidentypen , wie Leukoplasten und Chromoplasten , enthalten wenig Chlorophyll und betreiben keine Photosynthese.

Chlorophylle
Chlorophyll a kommt in allen Chloroplasten sowie in deren cyanobakteriellen Vorfahren vor. Es ist ein blaugrünes Pigment [ 154 ], das maßgeblich für die Färbung der meisten Cyanobakterien und Chloroplasten verantwortlich ist. Daneben existieren weitere Chlorophyllformen, wie beispielsweise die akzessorischen Pigmente Chlorophyll b , Chlorophyll c , Chlorophyll d [ 12 ] und Chlorophyll f .
Chlorophyll b ist ein olivgrünes Pigment, das ausschließlich in den Chloroplasten von Pflanzen , Grünalgen , sekundären Chloroplasten, die durch sekundäre Endosymbiose einer Grünalge entstehen, und einigen Cyanobakterien vorkommt . [ 12 ] Die Chlorophylle a und b verleihen den meisten Pflanzen- und Grünalgenchloroplasten ihre grüne Farbe. [ 154 ]
Chlorophyll c findet sich hauptsächlich in sekundären endosymbiotischen Chloroplasten, die von einer Rotalge abstammen , jedoch nicht in den Chloroplasten der Rotalgen selbst. Chlorophyll c kommt auch in einigen Grünalgen und Cyanobakterien vor . [ 12 ]
Chlorophyll d und f sind Pigmente, die nur in einigen Cyanobakterien vorkommen. [ 12 ] [ 155 ]
Carotinoide

Neben Chlorophyllen findet sich in den Photosystemen auch eine weitere Gruppe gelb - oranger Pigmente, die Carotinoide [ 154 ] . Es gibt etwa dreißig photosynthetische Carotinoide [ 156 ] . Sie helfen beim Transport und der Abgabe überschüssiger Energie [ 12 ] , und ihre leuchtenden Farben überstrahlen mitunter das Grün des Chlorophylls, beispielsweise im Herbst , wenn sich die Blätter einiger Landpflanzen verfärben [ 157 ] . β-Carotin ist ein leuchtend rot-oranges Carotinoid, das wie Chlorophyll a in nahezu allen Chloroplasten vorkommt [ 12 ] . Xanthophylle , insbesondere das orange-rote Zeaxanthin , sind ebenfalls weit verbreitet [ 156 ] . Viele weitere Carotinoidformen existieren, die nur in bestimmten Chloroplastengruppen vorkommen [ 12 ] .
Phycobiline
Phycobiline bilden eine dritte Pigmentgruppe, die in Cyanobakterien sowie in Chloroplasten von Glaucophyten , Rotalgen und Cryptophyten vorkommt . [ 12 ] [ 158 ] Phycobiline existieren in allen Farben, wobei Phycoerythrin eines der Pigmente ist, das vielen Rotalgen ihre rote Farbe verleiht. [ 159 ] Phycobiline organisieren sich häufig zu relativ großen Proteinkomplexen mit einem Durchmesser von etwa 40 Nanometern, den sogenannten Phycobilisomen . [ 12 ] Ähnlich wie Photosystem I und die ATP-Synthase ragen Phycobilisomen in das Stroma hinein und verhindern so die Thylakoidstapelung in den Chloroplasten von Rotalgen. [ 12 ] In den Chloroplasten von Cryptophyten und einigen Cyanobakterien sind die Phycobilin-Pigmente nicht in Phycobilisomen organisiert, sondern befinden sich im Thylakoidraum. [ 12 ]
| Photosynthetische Pigmente. Vorkommen von Pigmenten in verschiedenen Chloroplastengruppen und Cyanobakterien. Farbige Zellen weisen auf das Vorhandensein von Pigmenten hin. Chl = Chlorophyll [ 12 ] [ 156 ] [ 158 ] | |||||||||
| Chlorophyll a | Chlorophyll b | Chlorophyll c | Chlorophyll d und f | Xanthophylle | α-Carotin | β-Carotin | Phycobiline | ||
| Landpflanzen | |||||||||
| Grünalgen | |||||||||
| Euglenophyten und Chlorarachniophyten | |||||||||
| Mehrzellige Rotalgen | |||||||||
| Einzellige Rotalgen | |||||||||
| Haptophyten und Dinophyten | |||||||||
| Cryptophyten | |||||||||
| Glaukophyten | |||||||||
| Cyanobakterien | |||||||||
Spezialisierte Chloroplasten in C4 - Pflanzen
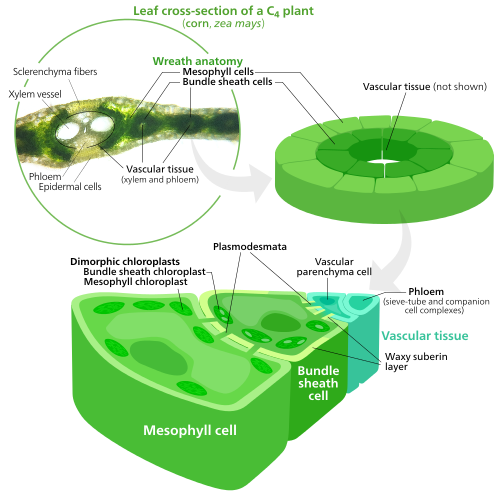
Um Kohlendioxid im Rahmen der Photosynthese in Zuckermoleküle umzuwandeln , nutzen Chloroplasten das Enzym RuBisCO . RuBisCO kann jedoch nicht zwischen Kohlendioxid und Sauerstoff unterscheiden . Bei hohen Sauerstoffkonzentrationen lagert RuBisCO daher versehentlich Sauerstoff an die Zuckervorstufen an. Dies führt zu einem Verlust an ATP- Energie und zur Freisetzung von CO₂ , ohne dass Zucker produziert wird. Dies ist problematisch, da O₂ in den ersten Lichtreaktionen der Photosynthese entsteht und somit im weiteren Verlauf des Calvin-Zyklus , der RuBisCO benötigt, Störungen verursacht. [ 160 ]
C4 - Pflanzen haben eine Lösung für dieses Problem entwickelt – durch die räumliche Trennung der Lichtreaktionen und des Calvin-Zyklus. Die Lichtreaktionen, die Lichtenergie in ATP und NADPH speichern , finden in den Mesophyllzellen eines C4-Blattes statt . Der Calvin -Zyklus, der die gespeicherte Energie zur Zuckersynthese mithilfe von RuBisCO nutzt, findet in den Bündelscheidenzellen statt , einer Zellschicht, die eine Blattader umgibt . [ 160 ]
Infolgedessen sind die Chloroplasten in C4 - Mesophyllzellen und Bündelscheidenzellen für jedes Stadium der Photosynthese spezialisiert. In den Mesophyllzellen sind die Chloroplasten auf die Lichtreaktionen spezialisiert, weshalb ihnen RuBisCO fehlt . Sie besitzen normale Grana und Thylakoide [ 141 ] , mit denen sie ATP und NADPH sowie Sauerstoff produzieren. Sie speichern CO₂ in einer C4-Verbindung, weshalb dieser Prozess als C4 - Photosynthese bezeichnet wird . Diese C4-Verbindung wird dann zu den Bündelscheidenchloroplasten transportiert, wo sie CO₂ abgibt und ins Mesophyll zurückkehrt. Die Bündelscheidenchloroplasten führen keine Lichtreaktionen durch, wodurch eine Sauerstoffanreicherung und die damit verbundene Störung der RuBisCO-Aktivität verhindert wird. [ 160 ] Aus diesem Grund fehlen ihnen in Granastapeln organisierte Thylakoide – obwohl Bündelscheidenchloroplasten im Stroma noch frei schwimmende Thylakoide besitzen, in denen sie den zyklischen Elektronentransport durchführen , eine lichtgetriebene Methode zur ATP- Synthese für den Calvin-Zyklus, ohne dabei Sauerstoff zu erzeugen. Ihnen fehlt Photosystem II ; sie besitzen lediglich Photosystem I – den einzigen Proteinkomplex, der für den zyklischen Elektronentransport benötigt wird. [ 141 ] [ 160 ] Da die Aufgabe der Bündelscheidenchloroplasten in der Durchführung des Calvin-Zyklus und der Zuckerproduktion besteht, enthalten sie häufig große Stärkekörner . [ 141 ]
Beide Chloroplastentypen enthalten große Mengen an peripherem Chloroplastenretikulum [ 141 ] , das die Oberfläche für den Stofftransport in und aus den Chloroplasten vergrößert . [ 129 ] [ 130 ] Mesophyllchloroplasten besitzen etwas mehr peripheres Retikulum als Bündelscheidenchloroplasten. [ 161 ]
Funktion und Chemie
Chloroplasten der Schließzellen
Im Gegensatz zu den meisten Epidermiszellen enthalten die Schließzellen der Pflanzenspaltöffnungen relativ gut entwickelte Chloroplasten. [ 162 ] Ihre genaue Funktion ist jedoch umstritten. [ 163 ]
Angeborene Immunität der Pflanze
Pflanzen besitzen keine spezialisierten Immunzellen – alle Pflanzenzellen sind an der Immunantwort der Pflanze beteiligt . Chloroplasten spielen neben dem Zellkern , der Zellmembran und dem endoplasmatischen Retikulum [ 164 ] eine Schlüsselrolle in der Pathogenabwehr . Aufgrund ihrer Funktion in der Immunantwort der Pflanzenzelle greifen Pathogene häufig die Chloroplasten an. [ 164 ]
Pflanzen verfügen über zwei Hauptimmunreaktionen: die Hypersensitivitätsreaktion , bei der sich infizierte Zellen abkapseln und programmierten Zelltod erleiden , und die systemische erworbene Resistenz , bei der infizierte Zellen Signale freisetzen, die den Rest der Pflanze vor der Anwesenheit eines Pathogens warnen. Chloroplasten stimulieren beide Reaktionen, indem sie gezielt ihr Photosynthesesystem schädigen und reaktive Sauerstoffspezies (ROS) produzieren . Hohe ROS-Konzentrationen lösen die Hypersensitivitätsreaktion aus . Die ROS töten zudem direkt alle Pathogene innerhalb der Zelle ab. Niedrigere ROS-Konzentrationen initiieren die systemische erworbene Resistenz und regen die Produktion von Abwehrmolekülen im Rest der Pflanze an. [ 164 ]
Bei einigen Pflanzen ist bekannt, dass sich Chloroplasten während einer Infektion näher an den Infektionsort und den Zellkern bewegen . [ 164 ]
Chloroplasten können als zelluläre Sensoren fungieren. Nach der Erkennung von Stress in einer Zelle, beispielsweise durch einen Krankheitserreger, beginnen Chloroplasten mit der Produktion von Molekülen wie Salicylsäure , Jasmonsäure , Stickstoffmonoxid und reaktiven Sauerstoffspezies ( ROS), die als Abwehrsignale dienen können. Da ROS als zelluläre Signale instabile Moleküle sind, verlassen sie wahrscheinlich nicht den Chloroplasten, sondern geben ihr Signal an ein unbekanntes sekundäres Botenmolekül weiter. All diese Moleküle initiieren die retrograde Signalübertragung – Signale vom Chloroplasten, die die Genexpression im Zellkern regulieren. [ 164 ]
Neben der Signalübertragung zur Abwehr helfen Chloroplasten mithilfe der Peroxisomen [ 165 ] bei der Synthese eines wichtigen Abwehrmoleküls, Jasmonat . Chloroplasten synthetisieren alle Fettsäuren in einer Pflanzenzelle [ 164 ] [ 166 ] – Linolsäure , eine Fettsäure, ist eine Vorstufe von Jasmonat. [ 164 ]
Photosynthese
Eine der Hauptfunktionen der Chloroplasten ist ihre Rolle in der Photosynthese , dem Prozess, bei dem Licht in chemische Energie umgewandelt wird, um anschließend Nahrung in Form von Zucker zu produzieren . Wasser (H₂O ) und Kohlendioxid (CO₂ ) werden in der Photosynthese verbraucht, und mithilfe von Lichtenergie werden Zucker und Sauerstoff (O₂ ) gebildet . Die Photosynthese gliedert sich in zwei Phasen: die Lichtreaktionen , in denen Wasser gespalten wird, um Sauerstoff zu erzeugen, und die Dunkelreaktionen , auch Calvin-Zyklus genannt, in denen aus Kohlendioxid Zuckermoleküle aufgebaut werden. Die beiden Phasen sind durch die Energieträger Adenosintriphosphat (ATP) und Nicotinamidadenindinukleotidphosphat (NADP⁺ ) miteinander verbunden . [ 167 ] [ 168 ]
Lichtreaktionen

Die Lichtreaktionen finden an den Thylakoidmembranen statt. Sie nehmen Lichtenergie auf und speichern sie in NADPH , einer Form von NADP + , und ATP, um die Dunkelreaktionen anzutreiben .
Energieträger
ATP ist die phosphorylierte Form von Adenosindiphosphat (ADP), das Energie in der Zelle speichert und die meisten Zellaktivitäten antreibt. ATP ist die energiereiche Form, während ADP die (teilweise) verbrauchte Form darstellt. NADP + ist ein Elektronenträger, der hochenergetische Elektronen transportiert. In den Lichtreaktionen wird es reduziert , d. h. es nimmt Elektronen auf und wird zu NADPH .
Photophosphorylierung
Wie Mitochondrien nutzen auch Chloroplasten die in einem H⁺ - Gradienten (Wasserstoffionenkonzentration) gespeicherte potenzielle Energie zur ATP-Synthese. Die beiden Photosysteme fangen Lichtenergie ein, um Elektronen aus Wassermolekülen zu aktivieren und diese über die Elektronentransportkette freizusetzen . Die Moleküle zwischen den Photosystemen nutzen die Energie der Elektronen, um Wasserstoffionen in den Thylakoidraum zu pumpen. Dadurch entsteht ein Konzentrationsgradient , sodass sich im Thylakoidsystem bis zu tausendmal mehr Wasserstoffionen befinden als im Stroma [ 120 ] . Die Wasserstoffionen im Thylakoidraum diffundieren dann entlang ihres Konzentrationsgradienten zurück ins Stroma und gelangen durch die ATP-Synthase dorthin . Die ATP-Synthase nutzt die Energie der strömenden Wasserstoffionen, um Adenosindiphosphat zu Adenosintriphosphat (ATP) zu phosphorylieren . [ 120 ] [ 169 ] Da die Chloroplasten-ATP-Synthase in das Stroma hineinragt, wird das ATP dort synthetisiert und kann somit in den Dunkelreaktionen verwendet werden. [ 170 ]
NADP + Reduktion
Elektronen werden häufig aus den Elektronentransportketten entnommen, um NADP + mit Elektronen zu beladen und es so zu NADPH zu reduzieren . Ähnlich wie die ATP-Synthase gibt auch die Ferredoxin-NADP + -Reduktase , das Enzym, das NADP + reduziert , das produzierte NADPH in das Stroma ab, genau dort, wo es für die Dunkelreaktionen benötigt wird. [ 170 ]
Da die NADP + -Reduktion Elektronen aus den Elektronentransportketten entfernt, müssen diese ersetzt werden – die Aufgabe des Photosystems II , das Wassermoleküle (H₂O ) spaltet, um die Elektronen von seinen Wasserstoffatomen zu gewinnen . [ 120 ] [ 167 ]
Zyklische Photophosphorylierung
Während Photosystem II Wasser photolysiert , um neue Elektronen zu gewinnen und zu aktivieren, reaktiviert Photosystem I lediglich verbrauchte Elektronen am Ende einer Elektronentransportkette. Normalerweise werden die reaktivierten Elektronen von NADP + aufgenommen , manchmal fließen sie jedoch über weitere H + -pumpende Elektronentransportketten zurück, um mehr Wasserstoffionen in den Thylakoidraum zu transportieren und so mehr ATP zu generieren. Dies wird als zyklische Photophosphorylierung bezeichnet , da die Elektronen recycelt werden. Zyklische Photophosphorylierung ist typisch für C4 - Pflanzen , die mehr ATP als NADPH benötigen . [ 160 ]
Dunkelreaktionen

Der Calvin-Zyklus , auch Dunkelreaktion genannt , ist eine Reihe biochemischer Reaktionen, die CO₂ in G3P-Zuckermoleküle einbauen und dabei die Energie und Elektronen aus dem in der Lichtreaktion gebildeten ATP und NADPH nutzen. Der Calvin-Zyklus findet im Stroma der Chloroplasten statt. [ 160 ]
Obwohl sie als „Dunkelreaktionen“ bezeichnet werden , finden sie in den meisten Pflanzen im Licht statt, da die Dunkelreaktionen von den Produkten der Lichtreaktionen abhängig sind. [ 11 ]
Kohlenstofffixierung und G3P-Synthese
Der Calvin-Zyklus beginnt mit der Fixierung von CO₂ durch das Enzym RuBisCO in Ribulose-1,5-bisphosphat (RuBP)-Moleküle mit fünf Kohlenstoffatomen. Dabei entstehen instabile C6-Moleküle, die sofort in C3-Moleküle, die sogenannte 3-Phosphoglycerinsäure (3-PGA), zerfallen. Das in den Lichtreaktionen gebildete ATP und NADPH werden genutzt, um 3-PGA in Glycerinaldehyd-3-phosphat (G3P) umzuwandeln. Die meisten G3P-Moleküle werden unter Verwendung von ATP-Energie wieder zu RuBP recycelt, jedoch verlässt jedes sechste produzierte Molekül den Zyklus – es ist das Endprodukt der Dunkelreaktionen. [ 160 ]
Zucker und Stärke
Glycerinaldehyd-3-phosphat kann sich verdoppeln und größere Zuckermoleküle wie Glucose und Fructose bilden . Diese Moleküle werden weiterverarbeitet, und aus ihnen wird die noch größere Saccharose , ein Disaccharid , das allgemein als Haushaltszucker bekannt ist, hergestellt. Dieser Prozess findet jedoch außerhalb des Chloroplasten, im Cytoplasma , statt . [ 171 ]
Alternativ können Glucose- Monomere im Chloroplasten zu Stärke verknüpft werden , die sich in den Stärkekörnern des Chloroplasten anreichert. [ 171 ] Unter Bedingungen wie hohen atmosphärischen CO₂- Konzentrationen können diese Stärkekörner sehr groß werden und die Grana und Thylakoide verformen. Die Stärkekörner verdrängen die Thylakoide, lassen diese aber intakt. [ 172 ] Staunässe in den Wurzeln kann ebenfalls zu einer Stärkeansammlung in den Chloroplasten führen, möglicherweise weil weniger Saccharose aus dem Chloroplasten (oder genauer gesagt, der Pflanzenzelle ) exportiert wird. Dies verringert den freien Phosphatvorrat der Pflanze , was indirekt die Stärkesynthese in den Chloroplasten stimuliert. [ 172 ] Obwohl die Stärkekörner mit niedrigen Photosyntheseraten in Verbindung gebracht werden, beeinträchtigen sie die Effizienz der Photosynthese möglicherweise nicht wesentlich [ 173 ] und könnten lediglich eine Nebenwirkung eines anderen photosynthesehemmenden Faktors sein. [ 172 ]
Photorespiration
Photorespiration kann auftreten, wenn die Sauerstoffkonzentration zu hoch ist. RuBisCO kann Sauerstoff und Kohlendioxid nicht gut unterscheiden und kann daher versehentlich O₂ anstelle von CO₂ an RuBP anlagern . Dieser Prozess verringert die Effizienz der Photosynthese – er verbraucht ATP und Sauerstoff, setzt CO₂ frei und produziert keinen Zucker. Dabei kann bis zu die Hälfte des im Calvin-Zyklus fixierten Kohlenstoffs verloren gehen. [ 167 ] In verschiedenen Abstammungslinien haben sich mehrere Mechanismen entwickelt, die die Kohlendioxidkonzentration im Verhältnis zu Sauerstoff im Chloroplasten erhöhen und so die Effizienz der Photosynthese steigern. Diese Mechanismen werden als Kohlendioxid-Konzentrierungsmechanismen (CCMs) bezeichnet. Dazu gehören der Crassulaceen-Säurestoffwechsel , die C₄ - Kohlenstofffixierung [ 167 ] und Pyrenoide . Chloroplasten in C₄ - Pflanzen zeichnen sich durch einen ausgeprägten Chloroplastendimorphismus aus .
pH
Aufgrund des H + -Gradienten über die Thylakoidmembran ist das Innere des Thylakoids sauer mit einem pH-Wert um 4, [ 174 ] während das Stroma leicht basisch ist mit einem pH-Wert um 8. [ 175 ] Der optimale pH-Wert des Stromas für den Calvin-Zyklus liegt bei 8,1; die Reaktion kommt nahezu zum Erliegen, wenn der pH-Wert unter 7,3 sinkt. [ 176 ]
CO₂ im Wasser kann Kohlensäure bilden , welche den pH-Wert isolierter Chloroplasten stören und die Photosynthese beeinträchtigen kann, obwohl CO₂ selbst für die Photosynthese benötigt wird . Chloroplasten in lebenden Pflanzenzellen sind davon jedoch weniger stark betroffen. [ 175 ]
Chloroplasten können K +- und H + -Ionen mithilfe eines noch wenig verstandenen lichtgetriebenen Transportsystems in sich hinein und aus sich heraus pumpen. [ 175 ]
Bei Lichteinfall kann der pH-Wert des Thylakoidlumens um bis zu 1,5 pH-Einheiten sinken, während der pH-Wert des Stromas um fast eine pH-Einheit ansteigen kann. [ 176 ]
Aminosäuresynthese
Chloroplasten allein produzieren fast alle Aminosäuren einer Pflanzenzelle in ihrem Stroma [ 177 ], mit Ausnahme der schwefelhaltigen Aminosäuren wie Cystein und Methionin . [ 178 ] [ 179 ] Cystein wird im Chloroplasten (und auch im Proplastid ) gebildet, aber auch im Cytosol und in den Mitochondrien synthetisiert , wahrscheinlich weil es Schwierigkeiten hat, Membranen zu passieren, um zu seinem Wirkort zu gelangen. [ 179 ] Es ist bekannt, dass der Chloroplast die Vorstufen von Methionin produziert, aber es ist unklar, ob das Organell den letzten Schritt des Stoffwechselwegs durchführt oder ob dies im Cytosol geschieht . [ 180 ]
Andere Stickstoffverbindungen
Chloroplasten produzieren alle Purine und Pyrimidine der Zelle – die Stickstoffbasen, die in DNA und RNA vorkommen . [ 177 ] Sie wandeln außerdem Nitrit (NO 2 − ) in Ammoniak (NH 3 ) um, welches die Pflanze mit Stickstoff für die Synthese ihrer Aminosäuren und Nukleotide versorgt . [ 177 ]
Andere chemische Produkte
Der Plastid ist der Ort der vielfältigen und komplexen Lipidsynthese in Pflanzen. [ 181 ] [ 182 ] Der Kohlenstoff, der zur Bildung des Großteils der Lipide verwendet wird, stammt aus Acetyl-CoA , dem Decarboxylierungsprodukt von Pyruvat . [ 181 ] Pyruvat kann nach seiner Entstehung in der Glykolyse durch passive Diffusion durch die Membran aus dem Cytosol in den Plastid gelangen . [ 183 ] Pyruvat wird im Plastid auch aus Phosphoenolpyruvat gebildet, einem Metaboliten, der im Cytosol aus Pyruvat oder PGA entsteht . [ 181 ] Acetat aus dem Cytosol steht für die Lipidsynthese im Plastid nicht zur Verfügung. [ 184 ] Die typische Kettenlänge der im Plastid produzierten Fettsäuren beträgt 16 oder 18 Kohlenstoffatome mit 0–3 cis -Doppelbindungen. [ 185 ]
Die Biosynthese von Fettsäuren aus Acetyl-CoA erfordert primär zwei Enzyme. Die Acetyl-CoA-Carboxylase erzeugt Malonyl-CoA, das sowohl im ersten Schritt als auch in den Verlängerungsschritten der Synthese verwendet wird. Die Fettsäuresynthase (FAS) ist ein großer Komplex aus Enzymen und Cofaktoren, darunter das Acylträgerprotein (ACP), das die Acylkette während ihrer Synthese hält. Die Synthese beginnt mit der Kondensation von Malonyl-ACP mit Acetyl-CoA zu Ketobutyryl-ACP. Zwei Reduktionen unter Verwendung von NADPH und eine Dehydratisierung führen zur Bildung von Butyryl-ACP. Die Verlängerung der Fettsäure erfolgt durch wiederholte Zyklen von Malonyl-ACP-Kondensation, -Reduktion und -Dehydratisierung. [ 181 ]
Andere Lipide stammen aus dem Methylerythritolphosphat-Weg (MEP-Weg) und bestehen aus Gibberellinen , Sterolen , Abscisinsäure , Phytol und unzähligen sekundären Metaboliten . [ 181 ]
Standort

Verteilung in einer Pflanze
Nicht alle Zellen einer vielzelligen Pflanze enthalten Chloroplasten. Alle grünen Pflanzenteile enthalten Chloroplasten, da ihre Farbe vom Chlorophyll stammt . [ 11 ] Die Pflanzenzellen , die Chloroplasten enthalten, sind in der Regel Parenchymzellen , Chloroplasten können aber auch im Kollenchymgewebe vorkommen . [ 186 ] Eine Pflanzenzelle, die Chloroplasten enthält, wird als Chlorenchymzelle bezeichnet . Eine typische Chlorenchymzelle einer Landpflanze enthält etwa 10 bis 100 Chloroplasten.
Bei einigen Pflanzen, wie beispielsweise Kakteen , befinden sich Chloroplasten in den Stängeln [ 187 ] , bei den meisten Pflanzen sind sie jedoch in den Blättern konzentriert . Ein Quadratmillimeter Blattgewebe kann bis zu einer halben Million Chloroplasten enthalten [ 11 ] . Innerhalb eines Blattes finden sich Chloroplasten hauptsächlich in den Mesophyllschichten und den Schließzellen der Stomata . Palisadenmesophyllzellen können 30–70 Chloroplasten pro Zelle enthalten, während Schließzellen der Stomata nur etwa 8–15 pro Zelle sowie deutlich weniger Chlorophyll aufweisen . Chloroplasten finden sich auch in den Bündelscheidenzellen eines Blattes, insbesondere bei C4 - Pflanzen , die den Calvin-Zyklus in ihren Bündelscheidenzellen durchführen . In der Epidermis eines Blattes fehlen sie häufig [ 162 ] .
Mobilfunkstandort

Chloroplastenbewegung
Die Chloroplasten von Pflanzen- und Algenzellen können sich optimal an das verfügbare Licht anpassen. Bei schwachem Licht breiten sie sich flächig aus und maximieren so die Oberfläche zur Lichtabsorption. Bei starkem Licht suchen sie Schutz, indem sie sich in vertikalen Säulen entlang der Zellwand anordnen oder sich seitlich drehen, sodass das Licht von der Seite auf sie trifft. Dies reduziert die Lichtexposition und schützt sie vor photooxidativen Schäden . [ 188 ] Diese Fähigkeit, Chloroplasten so zu verteilen, dass sie sich gegenseitig Schutz bieten oder sich ausbreiten können, könnte der Grund dafür sein, dass Landpflanzen viele kleine statt weniger großer Chloroplasten entwickelt haben. [ 189 ] Die Chloroplastenbewegung gilt als eines der am strengsten regulierten Reiz-Reaktions-Systeme in Pflanzen. [ 190 ] Es wurde auch beobachtet, dass Mitochondrien den Chloroplasten bei deren Bewegung folgen. [ 191 ]
Bei höheren Pflanzen wird die Chloroplastenbewegung durch Phototropine gesteuert , Blaulicht- Photorezeptoren, die auch für den Phototropismus der Pflanzen verantwortlich sind . Bei einigen Algen, Moosen , Farnen und Blütenpflanzen wird die Chloroplastenbewegung neben Blaulicht auch durch Rotlicht beeinflusst [ 188 ] , wobei sehr lange Wellenlängen im roten Bereich die Bewegung eher hemmen als beschleunigen. Blaulicht bewirkt im Allgemeinen, dass Chloroplasten Schutz suchen, während Rotlicht sie anzieht, um die Lichtabsorption zu maximieren [ 191 ] .
Untersuchungen an Vallisneria gigantea , einer Wasserpflanze , haben gezeigt, dass sich Chloroplasten innerhalb von fünf Minuten nach Lichteinfall bewegen können, obwohl sie anfänglich keine erkennbare Richtung aufweisen. Sie bewegen sich möglicherweise entlang von Mikrofilamenten . Die Tatsache, dass sich das Mikrofilamentnetzwerk nach der Bewegung der Chloroplasten zu einer wabenförmigen Struktur um diese herum verändert, deutet darauf hin, dass die Mikrofilamente zur Verankerung der Chloroplasten beitragen könnten. [ 190 ] [ 191 ]
Differenzierung, Replikation und Vererbung

Chloroplasten sind eine spezielle Art von Pflanzenzellorganellen, den Plastiden , wobei die beiden Begriffe manchmal synonym verwendet werden. Es gibt viele weitere Plastidentypen mit unterschiedlichen Funktionen. Alle Chloroplasten einer Pflanze stammen von undifferenzierten Proplastiden in der Zygote [ 177 ] , der befruchteten Eizelle, ab. Proplastiden kommen häufig in den apikalen Meristemen ausgewachsener Pflanzen vor . In den Wurzelspitzenmeristemen entwickeln sich normalerweise keine Chloroplasten aus Proplastiden [ 192 ] – stattdessen ist die Bildung von Stärke speichernden Amyloplasten häufiger. [ 177 ]
In Trieben können sich Proplastiden aus den apikalen Meristemen der Triebe im Laufe der Blattreifung, sofern sie ausreichend Licht erhalten, allmählich zu Chloroplasten im photosynthetisch aktiven Blattgewebe entwickeln. [ 15 ] Dieser Prozess beinhaltet Einstülpungen der inneren Plastidenmembran, wodurch Membranschichten entstehen, die in das innere Stroma hineinragen . Diese Membranschichten falten sich anschließend zu Thylakoiden und Grana . [ 193 ]
Werden Angiospermen- Sprossen nicht ausreichend Licht für die Chloroplastenbildung ausgesetzt, können sich Proplastiden zunächst zu Etioplasten entwickeln , bevor sie zu Chloroplasten werden. Ein Etioplast ist ein Plastid ohne Chlorophyll , dessen innere Membran Einstülpungen aufweist, die in seinem Stroma ein Röhrennetzwerk, den sogenannten Prolamellarkörper , bilden . Obwohl Etioplasten kein Chlorophyll enthalten, verfügen sie über einen gelben Chlorophyllvorläufer . [ 15 ] Innerhalb weniger Minuten nach Lichteinfall beginnt sich der Prolamellarkörper in Thylakoidstapel umzustrukturieren, und die Chlorophyllproduktion setzt ein. Dieser Prozess, bei dem der Etioplast zum Chloroplasten wird, dauert mehrere Stunden. [ 193 ] Gymnospermen benötigen kein Licht zur Chloroplastenbildung. [ 193 ]
Licht allein garantiert jedoch nicht, dass sich ein Proplastid zu einem Chloroplasten entwickelt. Ob sich ein Proplastid zu einem Chloroplasten oder einer anderen Art von Plastid entwickelt, wird größtenteils vom Zellkern gesteuert [ 15 ] und ist stark von der Art der Zelle abhängig, in der es sich befindet. [ 177 ]

Plastiden-Interkonversion
Die Differenzierung von Plastiden ist nicht permanent; tatsächlich sind zahlreiche Umwandlungen möglich. Chloroplasten können sich in Chromoplasten umwandeln , die pigmentgefüllte Plastiden sind und für die leuchtenden Farben von Blüten und reifen Früchten verantwortlich sind . Stärkespeichernde Amyloplasten können sich ebenfalls in Chromoplasten umwandeln, und Proplastiden können sich direkt zu Chromoplasten entwickeln. Chromoplasten und Amyloplasten können sich auch wieder in Chloroplasten zurückverwandeln, wie es beispielsweise bei Karotten oder Kartoffeln unter Lichteinwirkung geschieht. Wird eine Pflanze verletzt oder führt ein anderer Faktor dazu, dass eine Pflanzenzelle in einen meristematischen Zustand zurückkehrt, können sich Chloroplasten und andere Plastiden wieder in Proplastiden zurückverwandeln. Die Kategorien Chloroplast, Amyloplast, Chromoplast und Proplastid sind nicht absolut; Zwischenformen sind häufig. [ 177 ]
Division
Die meisten Chloroplasten in einer photosynthetischen Zelle entwickeln sich nicht direkt aus Proplastiden oder Etioplasten. Tatsächlich enthält eine typische meristematische Sprosszelle nur 7–20 Proplastiden . Diese Proplastiden differenzieren sich zu Chloroplasten, die sich teilen und so die 30–70 Chloroplasten bilden, die in einer ausgereiften photosynthetischen Pflanzenzelle vorkommen. Bei einer Zellteilung liefert die Chloroplastenteilung die zusätzlichen Chloroplasten, die auf die beiden Tochterzellen verteilt werden. [ 194 ]
Bei einzelligen Algen ist die Chloroplastenteilung die einzige Möglichkeit der Neubildung von Chloroplasten. Es findet keine Proplastidendifferenzierung statt – teilt sich eine Algenzelle, teilt sich auch ihr Chloroplast, und jede Tochterzelle erhält einen reifen Chloroplasten. [ 193 ]
Fast alle Chloroplasten einer Zelle teilen sich, nicht nur eine kleine Gruppe schnell teilender Chloroplasten. [ 195 ] Chloroplasten besitzen keine klar definierte S-Phase – ihre DNA-Replikation ist weder synchronisiert noch auf die ihrer Wirtszellen beschränkt. [ 196 ] Viele unserer Erkenntnisse über die Chloroplastenteilung stammen aus der Untersuchung von Organismen wie Arabidopsis und der Rotalge Cyanidioschyzon merolæ . [ 189 ]

Der Teilungsprozess beginnt mit der Bildung von Filamenten aus den Proteinen FtsZ1 und FtsZ2 . Mithilfe des Proteins ARC6 bilden diese Filamente im Stroma des Chloroplasten einen sogenannten Z-Ring. [ 189 ] [ 197 ] Das Min-System steuert die Positionierung des Z-Rings und gewährleistet so eine möglichst gleichmäßige Teilung des Chloroplasten. Das Protein MinD verhindert die Verknüpfung von FtsZ und die Bildung von Filamenten. Ein weiteres Protein, ARC3, ist möglicherweise ebenfalls beteiligt, seine genaue Funktion ist jedoch noch nicht vollständig erforscht. Diese Proteine sind an den Polen des Chloroplasten aktiv und verhindern dort die Z-Ring-Bildung. In der Nähe des Chloroplastenzentrums hemmt MinE diese Proteine und ermöglicht so die Z-Ring-Bildung. [ 189 ]
Als Nächstes bilden sich die beiden Plastidenteilungsringe (PD-Ringe). Der innere Plastidenteilungsring befindet sich an der Innenseite der inneren Chloroplastenmembran und entsteht zuerst. [ 189 ] Der äußere Plastidenteilungsring umschließt die äußere Chloroplastenmembran. Er besteht aus etwa 5 Nanometer dicken Filamenten [ 189 ] , die in Reihen mit einem Abstand von 6,4 Nanometern angeordnet sind, und zieht sich zusammen, um den Chloroplasten einzuschnüren. Dies ist der Zeitpunkt, an dem die Chloroplastenkontraktion beginnt. [ 197 ] Bei einigen Arten wie Cyanidioschyzon merolæ besitzen die Chloroplasten einen dritten Plastidenteilungsring im Intermembranraum. [ 189 ] [ 197 ]
Gegen Ende der Einschnürungsphase lagern sich Dynaminproteine um den äußeren Plastidenteilungsring an [ 197 ] und tragen so zur Kompression des Chloroplasten bei [ 189 ] . Gleichzeitig lösen sich der Z-Ring und der innere Plastidenteilungsring auf [ 197 ] . In dieser Phase werden die zahlreichen im Stroma vorhandenen Chloroplasten-DNA-Plasmide auf die beiden entstehenden Tochterchloroplasten verteilt [ 198 ] .
Später wandern die Dynamine unter den äußeren Teilungsring des Plastiden und treten in direkten Kontakt mit der äußeren Membran des Chloroplasten [ 197 ] , um den Chloroplasten in zwei Tochterchloroplasten zu spalten. [ 189 ]
Ein Rest des äußeren Plastidenteilungsrings verbleibt zwischen den beiden Tochterchloroplasten, und ein Rest des Dynaminrings bleibt an einem der Tochterchloroplasten haften. [ 197 ]
Von den fünf oder sechs Ringen, die an der Chloroplastenteilung beteiligt sind, ist nur der äußere Plastidenteilungsring während der gesamten Einschnürungs- und Teilungsphase vorhanden – obwohl sich der Z-Ring zuerst bildet, beginnt die Einschnürung erst nach der Bildung des äußeren Plastidenteilungsrings. [ 197 ]

Verordnung
Bei Algenarten mit nur einem Chloroplasten ist die Regulation der Chloroplastenteilung extrem wichtig, um sicherzustellen, dass jede Tochterzelle einen Chloroplasten erhält – Chloroplasten können nicht neu gebildet werden. [ 91 ] [ 189 ] Bei Organismen wie Pflanzen, deren Zellen mehrere Chloroplasten enthalten, ist die Koordination weniger streng und weniger wichtig. Wahrscheinlich sind Chloroplasten- und Zellteilung bis zu einem gewissen Grad synchronisiert, obwohl die Mechanismen hierfür größtenteils unbekannt sind. [ 189 ]
Licht ist nachweislich eine Voraussetzung für die Chloroplastenteilung. Chloroplasten können unter minderwertigem Grünlicht wachsen und einige Einschnürungsstadien durchlaufen , teilen sich aber nur langsam vollständig – sie benötigen helles Weißlicht, um die Teilung abzuschließen. In Spinatblättern, die unter Grünlicht gewachsen sind, wurden viele große, hantelförmige Chloroplasten beobachtet. Die Belichtung mit Weißlicht kann diese Chloroplasten zur Teilung anregen und die Anzahl der hantelförmigen Chloroplasten reduzieren. [ 195 ] [ 198 ]
Chloroplastenvererbung
Wie Mitochondrien werden auch Chloroplasten üblicherweise von einem einzigen Elternteil vererbt. Die biparentale Vererbung von Chloroplasten – bei der Plastidengene von beiden Elternpflanzen vererbt werden – kommt in sehr geringem Maße bei einigen Blütenpflanzen vor. [ 199 ]
Viele Mechanismen verhindern die Vererbung der Chloroplasten-DNA von beiden Elternteilen. Dazu gehören die selektive Zerstörung von Chloroplasten oder deren Genen in der Gamete oder Zygote sowie der Ausschluss von Chloroplasten eines Elternteils aus dem Embryo. Die elterlichen Chloroplasten können so sortiert werden, dass in jedem Nachkommen nur ein Typ vorhanden ist. [ 200 ]
Nacktsamer wie Kiefern vererben Chloroplasten meist väterlicherseits [ 201 ] , während Blütenpflanzen sie häufig mütterlicherseits erben [ 202 ] [ 203 ] . Früher ging man davon aus, dass Blütenpflanzen Chloroplasten ausschließlich mütterlicherseits vererben. Mittlerweile sind jedoch zahlreiche Fälle dokumentiert, in denen Bedecktsamer Chloroplasten väterlicherseits erben [ 199 ].
Angiospermen , die Chloroplasten mütterlicherseits vererben, verfügen über zahlreiche Mechanismen, um eine väterliche Vererbung zu verhindern. Die meisten von ihnen produzieren Spermien , die keine Plastiden enthalten. Es gibt viele weitere dokumentierte Mechanismen, die eine väterliche Vererbung bei diesen Blütenpflanzen verhindern, wie beispielsweise unterschiedliche Replikationsraten der Chloroplasten im Embryo. [ 199 ]
Bei Angiospermen wird die väterliche Vererbung von Chloroplasten häufiger bei Hybriden als bei Nachkommen von Eltern derselben Art beobachtet. Dies deutet darauf hin, dass inkompatible Hybridgene die Mechanismen stören könnten, die die väterliche Vererbung verhindern. [ 199 ]
Transplastomische Pflanzen
In letzter Zeit haben Chloroplasten das Interesse von Entwicklern gentechnisch veränderter Pflanzen geweckt . Da Chloroplasten bei den meisten Blütenpflanzen nicht vom männlichen Elternteil vererbt werden, können Transgene in diesen Plastiden nicht über Pollen verbreitet werden . Dies macht die Plastidentransformation zu einem wertvollen Werkzeug für die Erzeugung und den Anbau von biologisch gesicherten, gentechnisch veränderten Pflanzen, wodurch die Umweltrisiken deutlich reduziert werden. Diese Strategie der biologischen Sicherung eignet sich daher für die Koexistenz von konventioneller und ökologischer Landwirtschaft . Obwohl die Zuverlässigkeit dieses Mechanismus noch nicht für alle relevanten Kulturpflanzenarten untersucht wurde, sind aktuelle Ergebnisse bei Tabakpflanzen vielversprechend und zeigen eine Ausfallrate der transplastomen Pflanzen von 3 zu 1.000.000. [ 203 ]
Fußnoten
- ^ a b Nicht zu verwechseln mit Chromatophoren – den pigmentierten Zellen in einigen Tieren – oder Chromatophoren – den membrangebundenen Vesikeln in einigen Bakterien.
- Aus diesem Grund werden Glaucophyten-Chloroplasten auch als „Muroplasten“ bezeichnet, abgeleitet vom lateinischen Wort „muro“ , was Mauer bedeutet.
Referenzen
- ^ Jones D (2003) [1917]. Roach P, Hartmann J, Setter J (Hrsg.). English Pronouncing Dictionary . Cambridge: Cambridge University Press. ISBN 3-12-539683-2Die
- ^ „Chloroplast“ . Merriam-Webster.com Dictionary . Merriam-Webster. OCLC 1032680871 .
- ^ Basic Biology (18. März 2016). „Bakterien“ .
- ^ von Mohl, H. (1835/1837). Ueber die Vermehrung der Pflanzen-Zellen durch Teilung . Dissertation. Tübingen 1835. Flora 1837, .
- ^ ein b Schimper, AF (1883). „Über die Entwicklung der Chlorophyllkörner und Farbkörper“. Bot. Zeitung (auf Deutsch). 41 : 105– 14, 121– 31, 137– 46, 153– 62. Archiviert vom Original am 19. Oktober 2013.
- ^ Strasburger E (1884). Das botanische Praktikum (1. Aufl.). Jena: Gustav Fischer.
- Gunning B, Koenig F, Govindjee P (2006). „Eine Widmung an die Pioniere der Chloroplastenstrukturforschung“ . In: Wise RR, Hoober JK (Hrsg.). Struktur und Funktion der Plastiden . Niederlande: Springer. S. xxiii– xxxi. ISBN 978-1-4020-6570-5Die
- ^ Hoober JK (1984). Chloroplasten . New York: Plenum. ISBN 978-1-4613-2767-7Die
- ^ „Chloroplast“ . Online-Etymologiewörterbuch .
- Moore KR, Magnabosco C, Momper L, Gold DA, Bosak T, Fournier GP (2019). „Eine erweiterte ribosomale Phylogenie der Cyanobakterien stützt eine tiefe Positionierung der Plastiden“ . Frontiers in Microbiology . 10 1612. doi : 10.3389/fmicb.2019.01612 . PMC 6640209. PMID 31354692 .
- Campbell NA , Reece JB, Urry LA, Cain ML, Wasserman, Minorsky PV, Jackson RB (2009). Biologie ( 8. Aufl . ). Benjamin Cummings (Pearson). S. 186–187 . ISBN 978-0-8053-6844-4Die
- Kim E , Archibald JM ( 2009 ) . „ Diversity and Evolution of Plastids and Their Genomes “ . In Sandelius AS , Aronsson H ( Hrsg . ) . The Chloroplast . Plant Cell Monographs . Band 13. S. 1–39 . doi : 10.1007 / 978-3-540-68696-5_1 . ISBN 978-3-540-68692-7. S2CID 83672683 .
- Bryant DA, Guglielmi G, de Marsac NT, Castets AM, Cohen-Bazire G (1979). „Die Struktur cyanobakterieller Phycobilisomen: Ein Modell“. Archives of Microbiology . 123 (2): 311–334 . Bibcode : 1979ArMic.123..113B . doi : 10.1007/BF00446810 . S2CID 1589428 .
- ^ Mereschkowsky K (1905). „Über Natur und Ursprung der Chromatophoren im Pflanzenreich“. Biol Centralbl (auf Deutsch). 25 : 593–604 .
- ^ a b c d Alberts B (2002). Molekularbiologie der Zelle (4. Aufl.). New York [ua]: Garland. ISBN 0-8153-4072-9Die
- ^ Gabr A, Grossman AR, Bhattacharya D (August 2020). „Paulinella, ein Modell zum Verständnis der primären Endosymbiose von Plastiden“ . J Phycol . 56 (4): 837–843 . Bibcode : 2020JPcgy..56..837G . doi : 10.1111/jpy.13003 . PMC 7734844. PMID 32289879 .
- ^ a b c d e f g h i j Campbell NA, Reece JB, Urry LA, Cain ML, Wasserman, Minorsky PV, Jackson RB (2009). Biologie (8. Aufl.). Benjamin Cummings (Pearson). S. 516. ISBN 978-0-8053-6844-4Die
- ^ a b c d e Milo R, Phillips R. „Zellbiologie in Zahlen: Wie groß sind Chloroplasten?“ . book.bionumbers.org . Abgerufen am 7. Februar 2017 .
- ^ a b Sánchez-Baracaldo P, Raven JA, Pisani D, Knoll AH (September 2017). „Frühe photosynthetische Eukaryoten besiedelten Habitate mit niedrigem Salzgehalt“ . Proceedings of the National Academy of Sciences of the United States of America . 114 (37): E7737 – E7745. Bibcode : 2017PNAS..114E7737S . doi : 10.1073/pnas.1620089114 . PMC 5603991. PMID 28808007 .
- ^ Falcón, Luisa I; Magallón, Susana; Castillo, Amanda (4. März 2010). „Datierung des cyanobakteriellen Vorfahren des Chloroplasten“ . Das ISME Journal . 4 (6): 777–783 . Bibcode : 2010ISMEJ...4..777F . doi : 10.1038/ismej.2010.2 . ISSN 1751-7362 . PMID 20200567 .
- ^ a b c d e Nakayama T, Archibald JM (April 2012). „Evolving a photosynthetic organelle“ . BMC Biology . 10 (1) 35. doi : 10.1186/1741-7007-10-35 . PMC 3337241. PMID 22531210 .
- ^ a b c d McFadden GI ( Januar 2001). „Chloroplastenursprung und -integration“ . Plant Physiology . 125 (1): 50–3 . doi : 10.1104/pp.125.1.50 . PMC 1539323. PMID 11154294 .
- ^ a b c d e f g h i j k l m n o p q r s Wise RR, Hoober JK (2006). Struktur und Funktion der Plastiden . Dordrecht: Springer. S. 3–21 . ISBN 978-1-4020-4061-0Archiviert vom Original am 8. März 2016. Abgerufen am 21. Mai 2013 .
- ^ Ponce-Toledo RI, Deschamps P, López-García P, Zivanovic Y, Benzerara K, Moreira D (Februar 2017). „Ein früh abzweigendes Süßwasser-Cyanobakterium am Ursprung der Plastiden“ . Current Biology . 27 (3): 386–391 . Bibcode : 2017CBio...27..386P . doi : 10.1016 / j.cub.2016.11.056 . PMC 5650054. PMID 28132810 .
- ^ de Vries J, Archibald JM (Februar 2017). „Endosymbiose: Haben sich Plastiden aus einem Süßwasser-Cyanobakterium entwickelt?“ Current Biology . 27 (3): R103– R105. Bibcode : 2017CBio...27.R103D . doi : 10.1016/j.cub.2016.12.006 . PMID 28171752 .
- ^ López-García P, Eme L, Moreira D (Dezember 2017). „Symbiose in der eukaryotischen Evolution“ . Journal of Theoretical Biology . 434 : 20–33 . Bibcode : 2017JThBi.434...20L . doi : 10.1016/j.jtbi.2017.02.031 . PMC 5638015. PMID 28254477 .
- ^ a b Macorano, Luis; Nowack, Eva CM (13. September 2021). „Paulinella chromatophora“ . Current Biology . 31 (17): R1024– R1026. Bibcode : 2021CBio...31R1024M . doi : 10.1016/j.cub.2021.07.028 . PMID 34520707 .
- ^ Archibald JM (Januar 2009). „Das Rätsel der Plastidenevolution“ . Current Biology . 19 (2): R81–8. Bibcode : 2009CBio...19..R81A . doi : 10.1016 / j.cub.2008.11.067 . PMID 19174147. S2CID 51989 .
- Keeling PJ ( Oktober 2004 ) . „ Diversität und Evolutionsgeschichte von Plastiden und ihren Wirten “ . American Journal of Botany . 91 ( 10 ) : 1481–93 . Bibcode : 2004AmJB ... 91.1481K . doi : 10.3732 / ajb.91.10.1481 . PMID 21652304. S2CID 17522125 .
- ^ a b Chaal BK, Green BR (Februar 2005). „Proteinimportwege in ‚komplexen‘ Chloroplasten, die aus einer sekundären Endosymbiose mit einem Vorfahren aus einer Rotalge stammen“. Plant Molecular Biology . 57 (3): 333–42 . Bibcode : 2005PMolB..57..333C . doi : 10.1007/s11103-004-7848-y . PMID 15830125. S2CID 22619029 .
- ^ McFadden, Geoffrey I.; Van Dooren, Giel G. (2004). „Evolution: Das Genom der Rotalge bestätigt einen gemeinsamen Ursprung aller Plastiden“. Current Biology . 14 (13): R514– R516. Bibcode : 2004CBio...14.R514M . doi : 10.1016/j.cub.2004.06.041 . PMID 15242632 .
- Keeling PJ ( März 2010). „ Der endosymbiotische Ursprung , die Diversifizierung und das Schicksal der Plastiden “ . Philosophical Transactions of the Royal Society of London . Series B , Biological Sciences . 365 ( 1541 ) : 729–48 . doi : 10.1098 / rstb.2009.0103 . PMC 2817223. PMID 20124341 .
- ^ Ball S, Colleoni C, Cenci U, Raj JN, Tirtiaux C (März 2011). „Die Evolution des Glykogen- und Stärkestoffwechsels in Eukaryoten liefert molekulare Hinweise zum Verständnis der Etablierung der Plastiden-Endosymbiose“ . Journal of Experimental Botany . 62 (6): 1775–801 . doi : 10.1093/jxb/erq411 . PMID 21220783 .
- ^ Guiry, Michael D. (2. Januar 2024). „Wie viele Algenarten gibt es? Eine Wiederholung. Vier Reiche, 14 Stämme, 63 Klassen und die Zahl wächst stetig . “ Journal of Phycology . 60 (2): 214–228 . Bibcode : 2024JPcgy..60..214G . doi : 10.1111/jpy.13431 . ISSN 0022-3646 . PMID 38245909 .
- ^ Archibald, John M. (27. Januar 2009). „Das Rätsel der Plastidenevolution“ . Current Biology . 19 (2): R81– R88. Bibcode : 2009CBio...19..R81A . doi : 10.1016/j.cub.2008.11.067 . PMID 19174147 .
- ^ Miyagishima, Shin-ya (1. März 2011). „Mechanismus der Plastidenteilung: Vom Bakterium zum Organell“ . Plant Physiology . 155 (4 ) : 1533–1544 . doi : 10.1104/pp.110.170688 . ISSN 1532-2548 . PMC 3091088. PMID 21311032 .
- ^ Wise, Robert R.; Hoober, J. Kenneth (Hrsg.) (2006). Struktur und Funktion der Plastiden . Fortschritte in der Photosynthese und Atmung. Band 23. Dordrecht: Springer Netherlands. doi : 10.1007/978-1-4020-4061-0 . ISBN 978-1-4020-4060-3Die
- ^ "Rhodo-" . Das freie Wörterbuch . Farlex . Abgerufen am 7. Juni 2013 .
- ^ a b c d e f Campbell NA, Reece JB, Urry LA, Cain ML, Wasserman, Minorsky PV, Jackson RB (2009). Biologie (8. Aufl.). Benjamin Cummings (Pearson). S. 582–92 . ISBN 978-0-8053-6844-4Die
- ^ a b Lewis LA, McCourt RM (Oktober 2004). „Grünalgen und der Ursprung der Landpflanzen“. American Journal of Botany . 91 (10): 1535–56 . Bibcode : 2004AmJB...91.1535L . doi : 10.3732/ajb.91.10.1535 . PMID 21652308 .
- ^ Machida M, Takechi K, Sato H, Chung SJ, Kuroiwa H, Takio S, et al. (April 2006). „Gene für den Peptidoglycan-Syntheseweg sind essentiell für die Chloroplastenteilung in Moosen“ . Proceedings of the National Academy of Sciences of the United States of America . 103 (17): 6753–8 . Bibcode : 2006PNAS..103.6753M . doi : 10.1073 / pnas.0510693103 . PMC 1458953. PMID 16618924 .
- ^ Moroney JV, Somanchi A (Januar 1999). „Wie konzentrieren Algen CO2, um die Effizienz der photosynthetischen Kohlenstofffixierung zu erhöhen?“ . Plant Physiology . 119 (1): 9–16 . doi : 10.1104/pp.119.1.9 . PMC 1539202 . PMID 9880340 .
- Robison , T. A., Oh, Z. G., Lafferty, D., Xu, X., Villarreal, J. C. A., Gunn, L. H., Li, F.-W. (3. Januar 2025). „Hornkraut enthüllt ein räumliches Modell für Pyrenoid-basierte CO₂-Konzentrierungsmechanismen in Landpflanzen“. Nature Plants . 11 (1). Nature Publishing Group: 63–73 . doi : 10.1038/s41477-024-01871-0 . ISSN 2055-0278 . PMID 39753956 .
- ^ a b Tartar A, Boucias DG (April 2004). „Die nicht-photosynthetische, pathogene Grünalge Helicosporidium sp. besitzt ein modifiziertes, funktionelles Plastidengenom“ . FEMS Microbiology Letters . 233 (1): 153–7 . doi : 10.1016/j.femsle.2004.02.006 . PMID 15043882 .
- ^Ueno, Ryohei; Urano, Naoto; Suzuki, Motofumi (1 June 2003). "Phylogeny of the non-photosynthetic green micro-algal genus Prototheca (Trebouxiophyceae, Chlorophyta) and related taxa inferred from SSU and LSU ribosomal DNA partial sequence data". FEMS Microbiology Letters. 223 (2): 275–280. doi:10.1016/s0378-1097(03)00394-x. ISSN 0378-1097. PMID 12829298.
- ^ abcNowack EC, Vogel H, Groth M, Grossman AR, Melkonian M, Glöckner G (January 2011). "Endosymbiotic gene transfer and transcriptional regulation of transferred genes in Paulinella chromatophora". Molecular Biology and Evolution. 28 (1): 407–22. doi:10.1093/molbev/msq209. PMID 20702568.
- ^Archibald, John M. (25 September 2017). "Evolution: Protein Import in a Nascent Photosynthetic Organelle". Current Biology. 27 (18): R1004–R1006. Bibcode:2017CBio...27R1004A. doi:10.1016/j.cub.2017.08.013. ISSN 0960-9822. PMID 28950079.
- ^Singer, Anna; Poschmann, Gereon; Mühlich, Cornelia; Valadez-Cano, Cecilio; Hänsch, Sebastian; Hüren, Vanessa; Rensing, Stefan A.; Stühler, Kai; Nowack, Eva C.M. (25 September 2017). "Massive Protein Import into the Early-Evolutionary-Stage Photosynthetic Organelle of the Amoeba Paulinella chromatophora". Current Biology. 27 (18): 2763–2773.e5. Bibcode:2017CBio...27E2763S. doi:10.1016/j.cub.2017.08.010. ISSN 0960-9822. PMID 28889978.
- ^Rogers MB, Gilson PR, Su V, McFadden GI, Keeling PJ (January 2007). "The complete chloroplast genome of the chlorarachniophyte Bigelowiella natans: evidence for independent origins of chlorarachniophyte and euglenid secondary endosymbionts". Molecular Biology and Evolution. 24 (1): 54–62. doi:10.1093/molbev/msl129. PMID 16990439.
- ^ a b Moustafa A, Beszteri B, Maier UG, Bowler C, Valentin K, Bhattacharya D (Juni 2009). „ Genomische Spuren einer kryptischen Plastiden-Endosymbiose in Kieselalgen“ (PDF) . Science . 324 (5935): 1724–6 . Bibcode : 2009Sci...324.1724M . doi : 10.1126/science.1172983 . PMID 19556510. S2CID 11408339 .
- ^ Burki, Fabien; Roger, Andrew J.; Brown, Matthew W.; Simpson, Alastair GB (1. Januar 2020). „Der neue Stammbaum der Eukaryoten“ . Trends in Ecology & Evolution . 35 (1): 43–55 . Bibcode : 2020TEcoE..35...43B . doi : 10.1016/j.tree.2019.08.008 . ISSN 0169-5347 . PMID 31606140 .
- ^ Sibbald, Shannon J.; Archibald, John M. (20. Mai 2020). „Genomische Einblicke in die Plastidenevolution“ . Genome Biology and Evolution . 12 (7): 978–990 . doi : 10.1093/gbe/evaa096 . PMC 7348690. PMID 32402068 .
- Hackett JD , Anderson DM, Erdner DL, Bhattacharya D (Oktober 2004). „Dinoflagellaten: ein bemerkenswertes evolutionäres Experiment “ . American Journal of Botany . 91 ( 10 ) : 1523–34 . doi : 10.3732 / ajb.91.10.1523 . PMID 21652307 .
- Christian , R.; Labbancz, J.; Usadel, B.; Dhingra, A. (2023). „Understanding protein import in diverse non-green plastids“ . Frontiers in Genetics . 14, 969931. doi : 10.3389 /fgene.2023.969931 . PMC 10063809. PMID 37007964 .
- ^ Hines, Hunter N.; McCarthy, Peter J.; Esteban, Genoveva F. (27. Februar 2022). „Ein Gehäuse bauendes Ciliat der Gattung Pseudoblepharisma aus subtropischem Süßwasser“ . Diversity . 14 (3): 174. Bibcode : 2022Diver..14..174H . doi : 10.3390/d14030174 .
- Strassert , Jürgen FH; Irisarri, Iker; Williams, Tom A.; Burki, Fabien (25. März 2021). „Eine molekulare Zeitskala für die Evolution der Eukaryoten mit Implikationen für den Ursprung von aus Rotalgen stammenden Plastiden“ . Nature Communications . 12 (1): 1879. Bibcode : 2021NatCo..12.1879S . doi : 10.1038/s41467-021-22044- z . ISSN 2041-1723 . PMC 7994803. PMID 33767194 .
- ^ Toledo RI (5. März 2018). Ursprung und frühe Evolution photosynthetischer Eukaryoten (Dissertation). Université Paris-Saclay.
- ^ Bodył A (Februar 2018). „Haben sich einige von Rotalgen stammende Plastiden durch Kleptoplastidie entwickelt? Eine Hypothese“. Biological Reviews of the Cambridge Philosophical Society . 93 (1): 201–222 . doi : 10.1111 / brv.12340 . PMID 28544184. S2CID 24613863 .
- ^ a b Janouškovec J, Gavelis GS, Burki F, Dinh D, Bachvaroff TR, Gornik SG, et al. (Januar 2017). „Wichtige Übergänge in der Dinoflagellaten-Evolution durch Phylotranskriptomik aufgedeckt“ . Proceedings of the National Academy of Sciences of the United States of America . 114 (2): E171– E180 . Bibcode : 2017PNAS..114E.171J . doi : 10.1073/pnas.1614842114 . PMC 5240707. PMID 28028238 .
- ^ a b c d Nair SC, Striepen B (August 2011). „Was machen menschliche Parasiten eigentlich mit einem Chloroplasten?“ . PLOS Biology . 9 (8) e1001137. doi : 10.1371/journal.pbio.1001137 . PMC 3166169 . PMID 21912515 .
- ^ Quigg A, Kotabová E, Jarešová J, Kaňa R, Setlík J, Sedivá B, et al. (10. Oktober 2012). „ Die Photosynthese in Chromera velia stellt ein einfaches System mit hoher Effizienz dar“ . PLOS ONE . 7 (10) e47036. Bibcode : 2012PLoSO...747036Q . doi : 10.1371/journal.pone.0047036 . PMC 3468483. PMID 23071705 .
- ^ Meeson BW, Chang SS, Sweeney BM (1982). „Charakterisierung von Peridinin-Chlorophyll-α-Proteinen aus dem marinen Dinoflagellaten Ceratium furca“. Botanica Marina . 25 (8): 347–50 . Bibcode : 1982BoMar..25..347M . doi : 10.1515/botm.1982.25.8.347 . S2CID 83867103 .
- ^ Dorrell RG, Smith AG (Juli 2011). „Ergibt Rot und Grün Braun ?: Perspektiven auf Plastidenerwerb bei Chromalveolaten“ . Eukaryotic Cell . 10 (7): 856–68 . doi : 10.1128/EC.00326-10 . PMC 3147421. PMID 21622904 .
- Tengs T, Dahlberg OJ, Shalchian-Tabrizi K, Klaveness D , Rudi K, Delwiche CF, Jakobsen KS (Mai 2000). „Phylogenetische Analysen deuten darauf hin, dass die 19' - Hexanoyloxy -Fucoxanthin- haltigen Dinoflagellaten tertiäre Plastiden haptophytischer Herkunft besitzen . “ Molecular Biology and Evolution . 17 (5): 718–29 . doi : 10.1093/oxfordjournals.molbev.a026350 . PMID 10779532 .
- ^ Žerdoner Čalasan A, Kretschmann J, Gottschling M (März 2018). „Fehlende Kophylogenie deutet auf wiederholte Diatomeenaufnahme bei Dinoflagellaten mit einem tertiären Endosymbionten hin“. Organisms Diversity & Evolution . 18 (1): 29–38 . Bibcode : 2018ODivE..18...29Z . doi : 10.1007/s13127-017-0348-0 . S2CID 3830963 .
- ^ a b c Schnepf E, Elbrächter M (1999). „Dinophyten-Chloroplasten und Phylogenie – Eine Übersicht“ . Grana . 38 ( 2–3 ): 81–97 . Bibcode : 1999Grana..38...81S . doi : 10.1080/00173139908559217 .
- ^ Skovgaard A (1998). „Die Rolle der Chloroplastenretention bei einem marinen Dinoflagellaten“ . Aquatic Microbial Ecology . 15 : 293–301 . doi : 10.3354/ame015293 .
- ^ Dorrell RG, Howe CJ (August 2015). „Integration von Plastiden in ihre Wirte: Erkenntnisse aus der Dinoflagellatenforschung“ . Proceedings of the National Academy of Sciences of the United States of America . 112 (33): 10247–54 . Bibcode : 2015PNAS..11210247D . doi : 10.1073 / pnas.1421380112 . PMC 4547248. PMID 25995366 .
- ^ Stocking, CR & Gifford, EM (1959). „Einbau von Thymidin in die Chloroplasten von Spirogyra“. Biochemical and Biophysical Research Communications . 1 (3): 159–164 . Bibcode : 1959BBRC....1..159S . doi : 10.1016/0006-291X(59)90010-5 .
- ^ Ris, H.; Plaut, W. (1962). „ Ultrastruktur DNA-haltiger Bereiche im Chloroplasten von Chlamydomonas“ . J. Cell Biol . 13 (3): 383–91 . doi : 10.1083/jcb.13.3.383 . PMC 2106071. PMID 14492436 .
- ^ Lyttleton, JW (1962). „Isolierung von Ribosomen aus Spinatchloroplasten“. Exp. Cell Res . 26 (1): 312–317 . doi : 10.1016/0014-4827(62)90183-0 . PMID 14467684 .
- ^ Heber, U. (1962). „Proteinsynthese in Chloroplasten während der Photosynthese“. Nature . 195 ( 1): 91–92 . Bibcode : 1962Natur.195...91H . doi : 10.1038/195091a0 . PMID 13905812. S2CID 4265095 .
- ^ „Chloroplasten und andere Plastiden“ . Universität Hamburg. Archiviert vom Original am 25. September 2012. Abgerufen am 27. Dezember 2012 .
- ^ a b c d e f g Sandelius AS (2009). Der Chloroplast: Wechselwirkungen mit der Umwelt . Springer. S. 18. ISBN 978-3-540-68696-5Die
- ^ a b c Dann L (2002). Bioscience—Explained (PDF) . Grüne DNA: BIOWISSENSCHAFT ERKLÄRT. Archiviert (PDF) vom Original am 14. Dezember 2010.
- Clegg MT, Gaut BS, Learn GH, Morton BR (Juli 1994). „ Raten und Muster der Chloroplasten-DNA-Evolution“ . Proceedings of the National Academy of Sciences of the United States of America . 91 (15): 6795–801 . Bibcode : 1994PNAS...91.6795C . doi : 10.1073 / pnas.91.15.6795 . PMC 44285. PMID 8041699 .
- Shaw J, Lickey EB, Schilling EE, Small RL (März 2007). „ Vergleich vollständiger Chloroplastengenomsequenzen zur Auswahl nichtkodierender Regionen für phylogenetische Studien an Angiospermen: Die Schildkröte und der Hase III“. American Journal of Botany . 94 ( 3 ): 275–88 . doi : 10.3732/ajb.94.3.275 . PMID 21636401. S2CID 30501148 .
- ^ a b Burgess J (1989). Einführung in die Pflanzenzellentwicklung . Cambridge: Cambridge University Press. S. 62. ISBN 0-521-31611-1Die
- ^ Green, Beverley R. (28. April 2011). „Chloroplastengenome photosynthetischer Eukaryoten“ . The Plant Journal . 66 (1): 34–44 . doi : 10.1111/j.1365-313X.2011.04541.x . ISSN 0960-7412 . PMID 21443621 .
- ^ Pflanzenbiochemie ( 3. Aufl.). Academic Press. 2005. S. 517. ISBN 978-0-12-088391-2.
Anzahl der ctDNA-Kopien pro Chloroplast.
- ^ a b Kobayashi T, Takahara M, Miyagishima SY, Kuroiwa H, Sasaki N, Ohta N, et al. (Juli 2002). „Nachweis und Lokalisierung eines chloroplastenkodierten HU-ähnlichen Proteins, das Chloroplastennukleoide organisiert“ . The Plant Cell . 14 (7): 1579–89 . Bibcode : 2002PlanC..14.1579K . doi : 10.1105/tpc.002717 . PMC 150708. PMID 12119376 .
- ^ a b Kolodner R, Tewari KK (Januar 1979). „Invertierte Wiederholungen in der Chloroplasten-DNA höherer Pflanzen“ . Proceedings of the National Academy of Sciences of the United States of America . 76 (1): 41–5 . Bibcode : 1979PNAS...76...41K . doi : 10.1073 / pnas.76.1.41 . PMC 382872. PMID 16592612 .
- ^ a b Palmer JD, Thompson WF (Juni 1982). „Chloroplasten-DNA-Umlagerungen treten häufiger auf, wenn eine große invertierte Wiederholungssequenz verloren geht“. Cell . 29 ( 2): 537–550 . doi : 10.1016/0092-8674(82)90170-2 . PMID 6288261. S2CID 11571695 .
- ^ Odahara M, Kishita Y, Sekine Y (August 2017). „MSH1 erhält die Stabilität des Organellengenoms aufrecht und interagiert genetisch mit RECA und RECG im Moos Physcomitrella patens“ . The Plant Journal . 91 (3): 455–465 . Bibcode : 2017PlJ....91..455O . doi : 10.1111/tpj.13573 . PMID 28407383 .
- ^ Rowan BA, Oldenburg DJ, Bendich AJ (Juni 2010). „RecA erhält die Integrität der Chloroplasten-DNA-Moleküle in Arabidopsis aufrecht“ . Journal of Experimental Botany . 61 (10): 2575–88 . doi : 10.1093/jxb/erq088 . PMC 2882256. PMID 20406785 .
- ^ a b c d e f Krishnan NM, Rao BJ (Mai 2009). „Ein vergleichender Ansatz zur Aufklärung der Chloroplastengenomreplikation“ . BMC Genomics . 10 (237): 237. doi : 10.1186/1471-2164-10-237 . PMC 2695485. PMID 19457260 .
- ^ Heinhorst S, Cannon GC (1993). „DNA-Replikation in Chloroplasten“ . Journal of Cell Science . 104 : 1–9 . doi : 10.1242/jcs.104.1.1 .
- ^ a b c d e f Bendich AJ (Juli 2004). „Zirkuläre Chloroplastenchromosomen: die große Illusion“ . The Plant Cell . 16 (7): 1661–6 . Bibcode : 2004PlanC..16.1661B . doi : 10.1105/ tpc.160771 . PMC 514151. PMID 15235123 .
- ^ „Auswirkung chemischer Mutagene auf die Nukleotidsequenz“ . Biocyclopedia . Abgerufen am 24. Oktober 2015 .
- Bernstein H, Bernstein C (Juli 1973). „Zirkuläre und verzweigte zirkuläre Konkatenate als mögliche Zwischenprodukte bei der DNA-Replikation des Bakteriophagen T4“. Journal of Molecular Biology . 77 (3): 355–61 . doi : 10.1016/0022-2836(73)90443-9 . PMID 4580243 .
- ^ a b Alberts B (2002). Molekularbiologie der Zelle (4. Aufl.). New York [ua]: Garland. ISBN 0-8153-4072-9Die
- ^ Huang CY, Ayliffe MA, Timmis JN (März 2003). „Direkte Messung der Transferrate von Chloroplasten-DNA in den Zellkern“. Nature . 422 ( 6927): 72–6 . Bibcode : 2003Natur.422...72H . doi : 10.1038/nature01435 . PMID 12594458. S2CID 4319507 .
- Martin W, Rujan T, Richly E, Hansen A, Cornelsen S, Lins T, et al. (September 2002). „ Evolutionäre Analyse der Genome von Arabidopsis, Cyanobakterien und Chloroplasten enthüllt die Phylogenie der Plastiden und Tausende von Cyanobakteriengenen im Zellkern“ . Proceedings of the National Academy of Sciences of the United States of America . 99 (19): 12246–51 . Bibcode : 2002PNAS...9912246M . doi : 10.1073 / pnas.182432999 . PMC 129430. PMID 12218172 .
- ^ Smith DR, Lee RW (April 2014). „Ein Plastid ohne Genom: Evidenz aus der nicht-photosynthetischen Grünalgengattung Polytomella“ . Plant Physiology . 164 (4): 1812–9 . doi : 10.1104/pp.113.233718 . PMC 3982744. PMID 24563281 .
- ^ Archibald JM (Dezember 2006). „Algengenomik: Erforschung des Einflusses der Endosymbiose“ . Current Biology . 16 (24): R1033–5. Bibcode : 2006CBio...16R1033A . doi : 10.1016/j.cub.2006.11.008 . PMID 17174910 .
- ^ Koussevitzky S, Nott A, Mockler TC, Hong F, Sachetto-Martins G, Surpin M, et al. (Mai 2007). „Signale aus Chloroplasten konvergieren zur Regulation der nukleären Genexpression“. Science . 316 ( 5825): 715–9 . Bibcode : 2007Sci...316..715K . doi : 10.1126/science.1140516 . PMID 17395793. S2CID 245901639 .
- Bob Grant (1. April 2009). „Kommunikation mit Chloroplasten“ . The Scientist .
- ^ de Vries, Jan; Curtis, Bruce A.; Gould, Sven B.; Archibald, John M. (10. April 2018). „Embryophyten-Stresssignalisierung entwickelte sich in den Algenvorfahren der Landpflanzen“ . Proceedings of the National Academy of Sciences . 115 (15): E3471– E3480 . Bibcode : 2018PNAS..115E3471D . doi : 10.1073/pnas.1719230115 . ISSN 0027-8424 . PMC 5899452. PMID 29581286 .
- ^ Nishiyama, Tomoaki; Sakayama, Hidetoshi; de Vries, Jan; Buschmann, Henrik; Saint-Marcoux, Denis; Ullrich, Kristian K.; Haas, Fabian B.; Vanderstraeten, Lisa; Becker, Dirk; Lang, Daniel; Vosolsobě, Stanislav; Rombauts, Stephane; Wilhelmsson, Per KI; Janitza, Philipp; Kern, Ramona (Juli 2018). „Das Chara-Genom: Sekundäre Komplexität und Implikationen für die Landbesiedlung von Pflanzen“ . Cell . 174 ( 2): 448–464.e24. doi : 10.1016/j.cell.2018.06.033 . PMID 30007417. S2CID 206569169 .
- Zhao , Chenchen; Wang, Yuanyuan; Chan, Kai Xun; Marchant, D. Blaine; Franks, Peter J.; Randall, David; Tee, Estee E.; Chen, Guang; Ramesh, Sunita; Phua, Su Yin; Zhang, Ben; Hills, Adrian; Dai, Fei; Xue, Dawei; Gilliham, Matthew (12. März 2019). „Die Evolution der retrograden Chloroplastensignalisierung erleichtert die Anpassung grüner Pflanzen an das Land“ . Proceedings of the National Academy of Sciences . 116 (11): 5015–5020 . Bibcode : 2019PNAS..116.5015Z . doi : 10.1073/pnas.1812092116 . ISSN 0027-8424 . PMC 6421419 . PMID 30804180 .
- ^ Dadras, Armin; Fürst-Jansen, Janine MR; Darienko, Tatjana; Krone, Denis; Scholz, Patricia; Sonne, Siqi; Herrfurth, Cornelia; Rieseberg, Tim P.; Irisarri, Iker; Steinkamp, Rasmus; Hansen, Maike; Buschmann, Henrik; Valerius, Oliver; Braus, Gerhard H.; Hoecker, Ute (28. August 2023). „Umweltgradienten zeigen Stresszentren vor der Terrestrialisierung der Pflanzen“ . Naturpflanzen . 9 (9): 1419–1438 . Bibcode : 2023NatPl...9.1419D . doi : 10.1038/s41477-023-01491-0 . ISSN 2055-0278 . PMC 10505561 . PMID 37640935 .
- ^ Hedtke B, Börner T, Weihe A (August 1997). „Mitochondriale und chloroplastenartige RNA-Polymerasen vom Phagentyp in Arabidopsis“. Wissenschaft . 277 (5327): 809–11 . doi : 10.1126/science.277.5327.809 . PMID 9242608 .
- ^ Harris EH, Boynton JE, Gillham NW (Dezember 1994). „Chloroplastenribosomen und Proteinsynthese“ . Microbiological Reviews . 58 (4): 700–54 . doi : 10.1128/MMBR.58.4.700-754.1994 . PMC 372988. PMID 7854253 .
- Soll J, Schleiff E ( März 2004). „Proteinimport in Chloroplasten“ . Nature Reviews Molecular Cell Biology . 5 ( 3 ) : 198–208 . doi : 10.1038 / nrm1333 . PMID 14991000. S2CID 32453554 .
- ^ Campbell NA, Reece JB, Urry LA, Cain ML, Wasserman, Minorsky PV, Jackson RB (2009). Biologie (8. Aufl.). Benjamin Cummings (Pearson). S. 340. ISBN 978-0-8053-6844-4Die
- ^ Lung SC, Chuong SD (April 2012). „Ein Transitpeptid-ähnliches Sortierungssignal am C-Terminus lenkt den Präproteinrezeptor Toc159 von Bienertia sinuspersici zur äußeren Chloroplastenmembran“ . The Plant Cell . 24 (4): 1560–78 . Bibcode : 2012PlanC..24.1560L . doi : 10.1105/tpc.112.096248 . PMC 3398564. PMID 22517318 .
- ^ Waegemann K, Soll J (März 1996). „Phosphorylierung der Transitsequenz von Chloroplasten-Vorläuferproteinen“ . The Journal of Biological Chemistry . 271 (11): 6545–54 . doi : 10.1074/jbc.271.11.6545 . PMID 8626459 .
- ^ a b May T, Soll J (Januar 2000). „14-3-3-Proteine bilden einen Leitungskomplex mit Chloroplasten-Vorläuferproteinen in Pflanzen“ . The Plant Cell . 12 (1): 53–64 . Bibcode : 2000PlanC..12...53M . doi : 10.1105 / tpc.12.1.53 . PMC 140214. PMID 10634907 .
- ^ Jarvis P, Soll J (Dezember 2001). „Toc, Tic und der Import von Chloroplastenproteinen“ . Biochimica et Biophysica Acta (BBA) – Molecular Cell Research . 1541 ( 1–2 ): 64–79 . doi : 10.1016/S0167-4889(01)00147-1 . hdl : 2381/14128 . PMID 11750663 .
- ^ Wise RR, Hoober JK (2007). Struktur und Funktion der Plastiden . Springer. S. 32–33 . ISBN 978-1-4020-6570-5Die
- ^ „Oedogonium Link ex Hirn, 1900: 17“ . algaeBASE . Abgerufen am 19. Mai 2013 .
- ^ „Chlamydomonas Ehrenberg, 1833: 288“ . algaeBASE . Abgerufen am 19. Mai 2013 .
- ^ „Spirogyra Link, 1820: 5“ . algaeBASE . Abgerufen am 19. Mai 2013 .
- ^ "Sirogonium Kützing, 1843: 278" . algaeBASE . Abgerufen am 19. Mai 2013 .
- ^ „Zygnema C.Agardh, 1817: xxxii, 98“ . algaeBASE . Abgerufen am 19. Mai 2013 .
- ^ "Micrasterias C.Agardh ex Ralfs, 1848: 68" . algaeBASE . Abgerufen am 19. Mai 2013 .
- ^ John DM, Brook AJ, Whitton BA (2002). Die Süßwasseralgenflora der Britischen Inseln: Ein Bestimmungsführer für Süßwasser- und Landalgen . Cambridge: Cambridge University Press. S. 335. ISBN 978-0-521-77051-4Die
- ^ Fuks B, Homblé F (Oktober 1996). „ Mechanismus der Protonenpermeation durch Chloroplastenlipidmembranen“ . Plant Physiology . 112 (2): 759–66 . doi : 10.1104/pp.112.2.759 . PMC 158000. PMID 8883387 .
- ^ Joyard J, Block MA, Douce R (August 1991). „Molekulare Aspekte der Biochemie der Plastidenhülle“ . European Journal of Biochemistry . 199 (3): 489–509 . doi : 10.1111/j.1432-1033.1991.tb16148.x . PMID 1868841 .
- ^ „Chloroplast“ . Enzyklopädie der Wissenschaften . Abgerufen am 27. Dezember 2012 .
- Campbell NA , Reece JB, Urry LA, Cain ML, Wasserman, Minorsky PV, Jackson RB (2009). Biologie ( 8. Aufl . ) . Benjamin Cummings (Pearson). S. 196–197 . ISBN 978-0-8053-6844-4Die
- ^ Koike H, Yoshio M, Kashino Y, Satoh K (Mai 1998). „Polypeptidzusammensetzung der Hüllmembranen von Spinatchloroplasten: Zwei Hauptproteine nehmen 90 % der äußeren Hüllmembranen ein“ . Plant & Cell Physiology . 39 (5): 526–32 . doi : 10.1093/oxfordjournals.pcp.a029400 . PMID 9664716 .
- ^ Köhler RH, Hanson MR (Januar 2000). „Plastidentubuli höherer Pflanzen sind gewebespezifisch und entwicklungsabhängig reguliert“ . Journal of Cell Science . 113 (Teil 1): 81–9 . doi : 10.1242/jcs.113.1.81 . PMID 10591627. Archiviert vom Original am 20. September 2016 .
- ^ Gray JC, Sullivan JA, Hibberd JM, Hansen MR (2001). „Stromulen: Bewegliche Ausstülpungen und Verbindungen zwischen Plastiden“. Plant Biology . 3 (3): 223–33 . Bibcode : 2001PlBio...3..223G . doi : 10.1055/s-2001-15204 . S2CID 84474739 .
- ^ Schattat M, Barton K, Baudisch B, Klösgen RB, Mathur J (April 2011). „Die Verzweigung von Plastidenstromeln fällt mit der Dynamik des angrenzenden endoplasmatischen Retikulums zusammen“ . Plant Physiology . 155 (4): 1667–77 . doi : 10.1104/pp.110.170480 . PMC 3091094. PMID 21273446 .
- ^ Schattat MH, Griffiths S, Mathur N, Barton K, Wozny MR, Dunn N, et al. (April 2012). „Differenzielle Färbung zeigt, dass Plastiden keine Netzwerke zum Austausch von Makromolekülen bilden“ . The Plant Cell . 24 (4): 1465–77 . Bibcode : 2012PlanC..24.1465S . doi : 10.1105/tpc.111.095398 . PMC 3398557. PMID 22474180 .
- Brunkard JO, Runkel AM, Zambryski PC (August 2015). „Chloroplasten erweitern Stromulen unabhängig und als Reaktion auf interne Redoxsignale“ . Proceedings of the National Academy of Sciences of the United States of America . 112 (32): 10044–9 . Bibcode : 2015PNAS..11210044B . doi : 10.1073 / pnas.1511570112 . PMC 4538653. PMID 26150490 .
- Burgess J ( 1989 ). Einführung in die Pflanzenzellentwicklung ( Taschenbuchausgabe ) . Cambridge : Cambridge University Press . S. 46. ISBN 0-521-31611-1Die
- ^ Biosynthese von Peptidoglykan-Vorstufen in Pflanzen: Konservierung zwischen Mooschloroplasten und gramnegativen Bakterien
- ^ a b Whatley JM (5. Juli 1994). „Das Vorkommen eines peripheren Retikulums in Plastiden der Nacktsamerart Welwitschia mirabilis“ . New Phytologist . 74 (2): 215–220 . doi : 10.1111/j.1469-8137.1975.tb02608.x .
- ^ a b c Wise RR (2007). Struktur und Funktion der Plastiden . Springer. S. 17–18 . ISBN 978-1-4020-6570-5Die
- ^ Manuell AL, Quispe J, Mayfield SP (August 2007). „Struktur des Chloroplastenribosoms: Neue Domänen für die Translationsregulation“ . PLOS Biology . 5 (8) e209. doi : 10.1371/journal.pbio.0050209 . PMC 1939882. PMID 17683199 .
- Bieri , P .; Leibundgut, M.; Saurer, M.; Boehringer, D.; Ban, N. (15. Februar 2017). „ Die vollständige Struktur des Chloroplasten-70S-Ribosoms im Komplex mit dem Translationsfaktor pY“ . The EMBO Journal . 36 (4): 475–486 . doi : 10.15252/embj.201695959 . PMC 5694952. PMID 28007896 .
- ^ a b Lim K, Kobayashi I, Nakai K (Juli 2014). „Veränderungen der rRNA-mRNA-Interaktion während der Plastidenevolution“ . Molecular Biology and Evolution . 31 (7): 1728–40 . doi : 10.1093/molbev/msu120 . PMID 24710516 .
- ^ Hirose T, Sugiura M (Januar 2004). „Funktionelle Shine-Dalgarno-ähnliche Sequenzen für die Translationsinitiierung von Chloroplasten-mRNAs“ . Plant & Cell Physiology . 45 (1): 114–117 . doi : 10.1093/pcp/pch002 . PMID 14749493. S2CID 10774032 .
- ^ Ma J, Campbell A, Karlin S (Oktober 2002). „Korrelationen zwischen Shine-Dalgarno-Sequenzen und Genmerkmalen wie vorhergesagten Expressionsniveaus und Operonstrukturen“ . Journal of Bacteriology . 184 (20): 5733–45 . doi : 10.1128/JB.184.20.5733-5745.2002 . PMC 139613. PMID 12270832 .
- ^ Lim K, Furuta Y, Kobayashi I (Oktober 2012). „Große Variationen in bakteriellen ribosomalen RNA-Genen“ . Molecular Biology and Evolution . 29 (10): 2937–48 . doi : 10.1093/molbev/mss101 . PMC 3457768. PMID 22446745 .
- Austin JR , Frost E, Vidi PA, Kessler F, Staehelin LA (Juli 2006). „ Plastoglobulen sind Lipoprotein - Subkompartimente des Chloroplasten, die permanent an Thylakoidmembranen gekoppelt sind und biosynthetische Enzyme enthalten . “ The Plant Cell . 18 ( 7 ): 1693–703 . Bibcode : 2006PlanC..18.1693A . doi : 10.1105 / tpc.105.039859 . PMC 1488921. PMID 16731586 .
- ^ a b Crumpton-Taylor M, Grandison S, Png KM, Bushby AJ, Smith AM (Februar 2012). „Kontrolle der Stärkekornanzahl in Arabidopsis-Chloroplasten“ . Plant Physiology . 158 (2): 905–16 . doi : 10.1104/pp.111.186957 . PMC 3271777. PMID 22135430 .
- ^ Zeeman SC, Delatte T, Messerli G, Umhang M, Stettler M, Mettler T, Streb S, Reinhold H, Kötting O (2007). „Stärkeabbau: Neuere Erkenntnisse deuten auf unterschiedliche Stoffwechselwege und neuartige Mechanismen hin“. Functional Plant Biology . 34 (6): 465–73 . Bibcode : 2007FunPB..34..465Z . doi : 10.1071/FP06313 . PMID 32689375. S2CID 15995416 .
- ^ Rochaix JD (1998). Die Molekularbiologie der Chloroplasten und Mitochondrien in Chlamydomonas . Dordrecht [ua]: Kluwer Acad. Publ. S. 550–565 . ISBN 978-0-7923-5174-0Die
- Gunning BE , Steer MW (1996). Pflanzenzellbiologie : Struktur und Funktion . Boston , Mass.: Jones and Bartlett Publishers. S. 24. ISBN 0-86720-504-0Die
- ^ Hanson D, Andrews TJ, Badger MR (2002). „Variabilität des Pyrenoid-basierten CO₂ - Konzentrierungsmechanismus in Hornmoosen (Anthocerotophyta)“ . Functional Plant Biology . 29 (3): 407–16 . Bibcode : 2002FunPB..29..407H . doi : 10.1071/PP01210 . PMID 32689485 .
- ^ a b Ma Y, Pollock SV, Xiao Y, Cunnusamy K, Moroney JV (Juni 2011). „Identifizierung eines neuen Gens, CIA6, das für die normale Pyrenoidbildung in Chlamydomonas reinhardtii erforderlich ist“ . Plant Physiology . 156 (2): 884–96 . doi : 10.1104/pp.111.173922 . PMC 3177283. PMID 21527423 .
- ^ a b Retallack B, Butler RD (Januar 1970). „Die Entwicklung und Struktur der Pyrenoide in Bulbochaete hiloensis“. Journal of Cell Science . 6 (1): 229–41 . doi : 10.1242/jcs.6.1.229 . PMID 5417694 .
- ^ Brown MR, Arnott HJ (1970). „Struktur und Funktion des Algenpyrenoids“ (PDF) . Journal of Phycology . 6 : 14–22 . doi : 10.1111/j.1529-8817.1970.tb02350.x . S2CID 85604422. Archiviert vom Original (PDF) am 31. Mai 2013. Abgerufen am 31. Dezember 2012 .
- ^ a b c d e f g Bussi Y; Shimoni E; Weiner A; Kapon R; Charuvi D; Nevo R; Efrati E; Reich Z (2019). „Fundamentale helikale Geometrie festigt die photosynthetische Membran der Pflanze“ . Proc Natl Acad Sci USA . 116 (44): 22366–22375 . Bibcode : 2019PNAS..11622366B . doi : 10.1073/pnas.1905994116 . PMC 6825288. PMID 31611387 .
- ^ Infanger S, Bischof S, Hiltbrunner A, Agne B, Baginsky S, Kessler F (März 2011). „Der Chloroplasten-Importrezeptor Toc90 stellt die Akkumulation von Toc159-Clientproteinen in der Arabidopsis thaliana ppi2-Mutante teilweise wieder her“ (PDF) . Molecular Plant . 4 (2): 252–63 . doi : 10.1093/mp/ssq071 . PMID 21220583 .
- ^ „Thylakoid“ . Merriam-Webster Dictionary . Merriam-Webster . Abgerufen am 19. Mai 2013 .
- ^ a b c d e f g h Mustárdy L, Buttle K, Steinbach G, Garab G (Oktober 2008). „ Das dreidimensionale Netzwerk der Thylakoidmembranen in Pflanzen: Quasihelikales Modell der Granum-Stroma-Anordnung“ . The Plant Cell . 20 (10): 2552–7 . Bibcode : 2008PlanC..20.2552M . doi : 10.1105/tpc.108.059147 . PMC 2590735. PMID 18952780 .
- ^ Paolillo Jr, DJ (1970). „Die dreidimensionale Anordnung der Intergranallamellen in Chloroplasten“. J Cell Sci . 6 (1): 243–55 . doi : 10.1242/jcs.6.1.243 . PMID 5417695 .
- ^ Shimoni E; Rav-Hon O; Ohad I; Brumfeld V; Reich Z (2005). „Dreidimensionale Organisation der Thylakoidmembranen höherer Pflanzenchloroplasten, dargestellt durch Elektronenmikroskopie“ . Plant Cell . 17 (9): 2580–6 . Bibcode : 2005PlanC..17.2580S . doi : 10.1105/tpc.105.035030 . PMC 1197436. PMID 16055630 .
- ^ a b Austin JR, Staehelin LA (April 2011). „Dreidimensionale Architektur der Grana- und Stromathylakoide höherer Pflanzen, bestimmt durch Elektronenmikroskopie“ . Plant Physiology . 155 (4): 1601–1611 . doi : 10.1104/pp.110.170647 . PMC 3091084. PMID 21224341 .
- ^ „Chloroplast in einer Pflanzenzelle“ . TUMEGGY / SCIENCE PHOTO LIBRARY . Abgerufen am 19. August 2020 .
- ^ a b c Campbell NA, Reece JB, Urry LA, Cain ML, Wasserman, Minorsky PV, Jackson RB (2009). Biologie (8. Aufl.). Benjamin Cummings (Pearson). S. 190–193 . ISBN 978-0-8053-6844-4Die
- ^ „Australische Wissenschaftler entdecken erstes neues Chlorophyll seit 60 Jahren“ . Universität Sydney. 20. August 2010.
- ^ a b c Takaichi S (15. Juni 2011). „Carotinoide in Algen: Verteilung, Biosynthese und Funktionen“ . Marine Drugs . 9 (6): 1101–1118 . doi : 10.3390/md9061101 . PMC 3131562. PMID 21747749 .
- ^ Shapley D (15. Oktober 2012). „Warum verfärben sich die Blätter im Herbst?“ . Nachrichtenartikel . Abgerufen am 21. Mai 2013 .
- ^ a b Howe CJ, Barbrook AC, Nisbet RE, Lockhart PJ, Larkum AW (August 2008). „The origin of plastids“ . Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 363 (1504): 2675–85 . doi : 10.1098 / rstb.2008.0050 . PMC 2606771. PMID 18468982 .
- ^ „Einführung in die Rhodophyta“ . Museum für Paläontologie der Universität von Kalifornien . Abgerufen am 20. Mai 2013 .
- Campbell NA , Reece JB, Urry LA, Cain ML, Wasserman, Minorsky PV, Jackson RB (2009). Biologie ( 8. Aufl . ) . Benjamin Cummings (Pearson) . S. 200–201 . ISBN 978-0-8053-6844-4Die
- ^ Lawton JR (März 1988). „Ultrastruktur der Chloroplastenmembranen in Blättern von Mais und Weidelgras, dargestellt durch selektive Färbemethoden“ . New Phytologist . 108 (3): 277–283 . Bibcode : 1988NewPh.108..277L . doi : 10.1111 / j.1469-8137.1988.tb04163.x . JSTOR 2433294. PMID 33873933 .
- ^ a b Lawson T. und JIL Morison. Essay 10.1 Photosynthese der Schließzellen. Pflanzenphysiologie und -entwicklung, Sechste Auflage [1]
- Zeiger E, Talbott LD, Frechilla S, Srivastava A, Zhu J (2002). „Der Chloroplast der Schließzelle: Eine Perspektive für das 21. Jahrhundert“. New Phytologist . 153 (3): 415–424 . Bibcode : 2002NewPh.153..415Z . doi : 10.1046/j.0028-646X.2001.NPH328.doc.x . PMID 33863211 .
- Padmanabhan MS, Dinesh - Kumar SP (November 2010). „ Alle an Bord – die Rolle von Chloroplasten, endoplasmatischem Retikulum und Zellkern bei der Steuerung der angeborenen Immunität von Pflanzen“ . Molecular Plant -Microbe Interactions . 23 (11): 1368–80 . Bibcode : 2010MPMI...23.1368P . doi : 10.1094/MPMI-05-10-0113 . PMID 20923348 .
- ^ Katsir L, Chung HS, Koo AJ, Howe GA (August 2008). „Jasmonat-Signalisierung: ein konservierter Mechanismus der Hormonwahrnehmung“ . Current Opinion in Plant Biology . 11 (4): 428–35 . Bibcode : 2008COPB...11..428K . doi : 10.1016 / j.pbi.2008.05.004 . PMC 2560989. PMID 18583180 .
- ^ Schnurr JA, Shockey JM, de Boer GJ, Browse JA (August 2002). „Fettsäureexport aus dem Chloroplasten. Molekulare Charakterisierung einer wichtigen plastidären Acyl-Coenzym-A-Synthetase aus Arabidopsis“ . Plant Physiology . 129 (4): 1700–9 . doi : 10.1104/pp.003251 . PMC 166758. PMID 12177483 .
- ^ a b c d Biologie – Konzepte und Zusammenhänge . Pearson. 2009. S. 108–118 .
- ^ Campbell NA, Williamson B, Heyden RJ (2006). Biologie: Das Leben erforschen . Boston, Massachusetts: Pearson Prentice Hall. ISBN 978-0-13-250882-7Archiviert vom Original am 2. November 2014. Abgerufen am 6. Januar 2009 .
- ^ Jagendorf AT, Uribe E (Januar 1966). „ATP-Bildung durch Säure-Base-Übergang von Spinatchloroplasten“ . Proceedings of the National Academy of Sciences of the United States of America . 55 (1): 170–7 . Bibcode : 1966PNAS...55..170J . doi : 10.1073 / pnas.55.1.170 . PMC 285771. PMID 5220864 .
- ^ Berg JM , Tymoczko JL, Stryer L (2002). Biochemie (5. Auflage, 4. Druckausgabe). New York, NY [ua]: WH Freeman. S. Abschnitt 19.4. ISBN 0-7167-3051-0Die
- ^ Berg JM , Tymoczko JL, Stryer L (2002). Biochemie (5. Auflage, 4. Druckausgabe). New York, NY [ua]: WH Freeman. S. Abschnitt 20.1. ISBN 0-7167-3051-0Die
- ^ a b c Wample RL, Davis RW (September 1983). „Einfluss von Überschwemmungen auf die Stärkeakkumulation in Chloroplasten der Sonnenblume (Helianthus annuus L.)“ . Plant Physiology . 73 (1): 195–8 . doi : 10.1104/pp.73.1.195 . PMC 1066435. PMID 16663176 .
- ^ Carmi A, Shomer I (1979). „Stärkeakkumulation und photosynthetische Aktivität in Primärblättern der Bohne ( Phaseolus vulgaris L.)“. Annals of Botany . 44 (4): 479–484 . doi : 10.1093/oxfordjournals.aob.a085756 .
- ^ Berg JM, Tymoczko JL, Stryer L (2002). Biochemie (5. Aufl.). WH Freeman. S. Abschnitt 19.4. Archiviert vom Original am 16. Januar 2021. Abgerufen am 30. Oktober 2012 .
- Hauser M, Eichelmann H, Oja V, Heber U, Laisk A (Juli 1995). „Stimulation der schnellen pH-Regulation im Chloroplastenstroma in vivo durch Licht, dargestellt durch die CO₂-Solubilisierung in Blättern“ . Plant Physiology . 108 ( 3 ) : 1059–1066 . doi : 10.1104/pp.108.3.1059 . PMC 157457. PMID 12228527 .
- ^ a b Werdan K, Heldt HW, Milovancev M (August 1975). „Die Rolle des pH-Werts bei der Regulation der Kohlenstofffixierung im Chloroplastenstroma. Untersuchungen zur CO₂-Fixierung im Licht und im Dunkeln“. Biochimica et Biophysica Acta (BBA) - Bioenergetics . 396 (2): 276–92 . doi : 10.1016/0005-2728(75)90041-9 . PMID 239746 .
- Burgess J ( 1989 ). Einführung in die Pflanzenzellentwicklung . Cambridge : Cambridge University Press . S. 56. ISBN 0-521-31611-1Die
- ^ Ferro M, Salvi D, Riviere-Rolland H, Vermat T, Seigneurin-Berny D, Grunwald D, et al. (August 2002). „Integrale Membranproteine der Chloroplastenhülle: Identifizierung und subzelluläre Lokalisierung neuer Transporter“ . Proceedings of the National Academy of Sciences of the United States of America . 99 (17): 11487–92 . Bibcode : 2002PNAS...9911487F . doi : 10.1073 / pnas.172390399 . PMC 123283. PMID 12177442 .
- ^ a b Rolland N, Droux M, Douce R (März 1992). „Subzelluläre Verteilung der O-Acetylserin(thiol ) lyase in Blumenkohlblütenständen (Brassica oleracea L.) . Plant Physiology . 98 (3): 927–35 . doi : 10.1104/pp.98.3.927 . PMC 1080289. PMID 16668766 .
- ^ Ravanel S, Gakière B, Job D, Douce R (Juni 1998). „Die spezifischen Merkmale der Methioninbiosynthese und des Methioninstoffwechsels in Pflanzen“ . Proceedings of the National Academy of Sciences of the United States of America . 95 (13): 7805–12 . Bibcode : 1998PNAS...95.7805R . doi : 10.1073/pnas.95.13.7805 . PMC 22764. PMID 9636232 .
- ^ a b c d e Buchanan BB, Gruissem W, Jones RL (Hrsg.). 2015. Biochemie und Molekularbiologie der Pflanzen. Wiley Blackwell.
- ^ Joyard J, Ferro M, Masselon C, Seigneurin-Berny D, Salvi D, Garin J, Rolland N (April 2010). „Chloroplasten-Proteomik hebt die subzelluläre Kompartimentierung des Lipidstoffwechsels hervor“. Progress in Lipid Research . 49 (2): 128–58 . doi : 10.1016/j.plipres.2009.10.003 . PMID 19879895 .
- ^ Proudlove MO, Thurman DA (1981). „Die Aufnahme von 2-Oxoglutarat und Pyruvat durch isolierte Erbsenchloroplasten“ . New Phytologist . 88 (2): 255–264 . Bibcode : 1981NewPh..88..255P . doi : 10.1111/j.1469-8137.1981.tb01722.x .
- ^ Bao X, Focke M, Pollard M, Ohlrogge J. 2000. Verständnis der in vivo Kohlenstoffvorläuferversorgung für die Fettsäuresynthese im Blattgewebe. Plant Journal 22, 39–50.
- ^ Ohlrogge J, Browse J (1995). „Lipidbiosynthese“ . The Plant Cell . 7 (7): 957–970 . doi : 10.1105 / tpc.7.7.957 . PMC 160893. PMID 7640528 .
- ^ Roberts K (2007). Handbuch der Pflanzenwissenschaft . Chichester, West Sussex, England: Wiley. S. 16. ISBN 978-0-470-05723-0Die
- ^ Campbell NA, Reece JB, Urry LA, Cain ML, Wasserman, Minorsky PV, Jackson RB (2009). Biologie (8. Aufl.). Benjamin Cummings (Pearson). S. 742. ISBN 978-0-8053-6844-4Die
- ^ a b Wells, C.; Balish, E. (1979). „Die mitogene Aktivität von Lipopolysaccharid für Milzzellen von keimfreien, konventionellen und gnotobiotischen Ratten“. Canadian Journal of Microbiology . 25 (9): 1087–93 . doi : 10.1139/m79-166 . PMID 540263 .
- Glynn JM , Miyagishima SY , Yoder DW, Osteryoung KW, Vitha S (Mai 2007 ) . „ Chloroplast division “ . Traffic . 8 ( 5 ) : 451–61 . doi : 10.1111 / j.1600-0854.2007.00545.x . PMID 17451550. S2CID 2808844 .
- ^ a b Dong XJ, Nagai R, Takagi S (1998). „Mikrofilamente verankern Chloroplasten entlang der äußeren periklinalen Wand in Epidermiszellen von Vallisneria durch Kooperation von PFR und Photosynthese“ . Plant and Cell Physiology . 39 (12): 1299–306 . doi : 10.1093/oxfordjournals.pcp.a029334 .
- ^ a b c Takagi S (Juni 2003). „Aktinbasierte photochemische Orientierungsbewegung von Chloroplasten in Pflanzenzellen“ . The Journal of Experimental Biology . 206 (Teil 12): 1963–9 . Bibcode : 2003JExpB.206.1963T . doi : 10.1242/jeb.00215 . PMID 12756277 .
- ^ Gunning BE , Steer MW (1996). Pflanzenzellbiologie: Struktur und Funktion . Boston, Mass.: Jones and Bartlett Publishers. S. 20. ISBN 0-86720-504-0Die
- Burgess J ( 1989 ). Einführung in die Pflanzenzellentwicklung (Taschenbuchausgabe). Cambridge: Cambridge University Press. S. 54–55 . ISBN 0-521-31611-1Die
- ^ Burgess J (1989). Einführung in die Pflanzenzellentwicklung (Taschenbuchausgabe). Cambridge: Cambridge University Press. S. 57. ISBN 0-521-31611-1Die
- Possingham JV , Rose RJ (1976). „Chloroplastenreplikation und Chloroplasten-DNA-Synthese in Spinatblättern“. Proceedings of the Royal Society B: Biological Sciences . 193 (1112): 295–305 . Bibcode : 1976RSPSB.193..295P . doi : 10.1098/rspb.1976.0047 . S2CID 2691108 .
- ^ Cannon GC, Heinhorst S (1. Januar 1993). „DNA-Replikation in Chloroplasten“ . Journal of Cell Science . 104 (1): 1–9 . CiteSeerX 10.1.1.1026.3732 . doi : 10.1242/jcs.104.1.1 .
- ^ a b c d e f g h i Miyagishima SY, Nishida K, Mori T, Matsuzaki M, Higashiyama T, Kuroiwa H, Kuroiwa T (März 2003). „Ein pflanzenspezifisches, dynaminverwandtes Protein bildet einen Ring an der Chloroplastenteilungsstelle“ . The Plant Cell . 15 (3): 655–65 . Bibcode : 2003PlanC..15..655M . doi : 10.1105/tpc.009373 . PMC 150020. PMID 12615939 .
- Hashimoto H, Possingham JV (April 1989). „Einfluss von Licht auf den Chloroplastenteilungszyklus und die DNA-Synthese in kultivierten Blattscheiben von Spinat“ . Plant Physiology . 89 ( 4 ): 1178–83 . doi : 10.1104/pp.89.4.1178 . PMC 1055993. PMID 16666681 .
- ^ a b c d Hansen AK, Escobar LK, Gilbert LE, Jansen RK (Januar 2007). „Väterliche, mütterliche und biparentale Vererbung des Chloroplastengenoms in Passiflora (Passifloraceae): Implikationen für phylogenetische Studien“. American Journal of Botany . 94 (1): 42–6 . Bibcode : 2007AmJB...94...42H . doi : 10.3732/ajb.94.1.42 . PMID 21642206 .
- ^ Birky CW (Dezember 1995). „Uniparentale Vererbung mitochondrialer und chloroplastidärer Gene: Mechanismen und Evolution“ . Proceedings of the National Academy of Sciences of the United States of America . 92 (25): 11331–8 . Bibcode : 1995PNAS...9211331B . doi : 10.1073 / pnas.92.25.11331 . PMC 40394. PMID 8524780 .
- ^ Powell W, Morgante M, McDevitt R, Vendramin GG, Rafalski JA (August 1995). „Polymorphe einfache Sequenzwiederholungsregionen in Chloroplastengenomen: Anwendungen in der Populationsgenetik von Kiefern“ . Proceedings of the National Academy of Sciences of the United States of America . 92 (17): 7759–63 . Bibcode : 1995PNAS...92.7759P . doi : 10.1073/pnas.92.17.7759 . PMC 41225. PMID 7644491. Bei Kiefern wird das
Chloroplastengenom über Pollen vererbt
. - Stegemann S, Hartmann S, Ruf S, Bock R (Juli 2003). „Hochfrequenter Gentransfer vom Chloroplastengenom in den Zellkern“ . Proceedings of the National Academy of Sciences of the United States of America . 100 (15): 8828–33 . Bibcode : 2003PNAS..100.8828S . doi : 10.1073 / pnas.1430924100 . PMC 166398. PMID 12817081 .
- Ruf S, Karcher D, Bock R (April 2007). „Bestimmung des Transgen - Einschlussgrades durch Chloroplastentransformation“ . Proceedings of the National Academy of Sciences of the United States of America . 104 (17): 6998–7002 . Bibcode : 2007PNAS..104.6998R . doi : 10.1073 / pnas.0700008104 . PMC 1849964. PMID 17420459 .
Externe Links
- Chloroplasten – Zellzentrierte Datenbank
- Clegg MT, Gaut BS, Learn GH, Morton BR (Juli 1994). „Raten und Muster der Chloroplasten-DNA-Evolution“ . Proceedings of the National Academy of Sciences of the United States of America . 91 (15): 6795–801 . Bibcode : 1994PNAS...91.6795C . doi : 10.1073/pnas.91.15.6795 . PMC 44285. PMID 8041699 .
- Co-Extra-Forschung zur Chloroplastentransformation
- NCBI vollständiges Chloroplastengenom