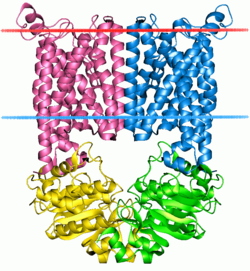
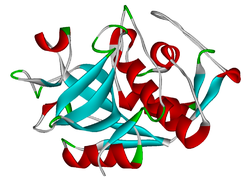
In der Molekularbiologie sind die zytotoxischen Proteine der Seeanemonen letale, porenbildende Proteine , die unter dem Sammelbegriff Actinoporine bekannt sind – eine Unterklasse der Cytolysine . Es gibt verschiedene Gruppen von Cytolysinen, die sich in ihrer Struktur und Funktion unterscheiden. [ 1 ] Dieser Eintrag beschreibt die größte Gruppe, die 20 kDa großen, stark basischen Peptide. Diese Cytolysine bilden kationenselektive Poren in Sphingomyelin-haltigen Membranen . Beispiele hierfür sind Equinatoxine (aus Actinia equina), Sticholysine (aus Stichodactyla helianthus), Magnificalysine (aus Heteractis magnifica) und Tenebrosine (aus Actinia tenebrosa), die porenbildende, hämolytische, zytotoxische und herzstimulierende Eigenschaften aufweisen.
Cytolysine nehmen eine stabile , lösliche Struktur an, die bei Kontakt mit einer Membran eine Konformationsänderung erfährt. Dies führt zu einer aktiven, membrangebundenen Form, die sich spontan in die Membran einlagert . Sie oligomerisieren häufig auf der Membranoberfläche , bevor sie die Lipiddoppelschicht punktieren und so die Zelllyse auslösen . Die 20 kDa großen Cytolysine der Seeanemone benötigen für die Bindung eine Phosphocholin-Lipidkopfgruppe; Sphingomyelin ist jedoch erforderlich, damit das Toxin die Membranpermeabilität erhöht . [ 2 ] Die Kristallstrukturen von Equinatoxin II [ 3 ] und Sticholysin II [ 4 ] zeigten beide ein kompaktes Beta-Sandwich aus zehn Strängen in zwei Faltblättern , die beidseitig von zwei kurzen Alpha-Helices flankiert werden. Diese Topologie ähnelt der von Osmotin. Es wird angenommen, dass sich die Beta-Sandwich-Struktur an die Membran anlagert, während eine dreigängige Alpha-Helix, die auf der Oberfläche des Beta-Faltblatts liegt, an der Bildung von Membranporen beteiligt sein könnte , möglicherweise durch das Eindringen der Helix in die Membran .
Struktur
Actinoporine sind kleine (~20 kDa) porenbildende Proteine, die von Seeanemonen produziert werden. [ 5 ] Ihre Struktur besteht aus einem β-Sandwich-Kern, der von zwei α-Helices flankiert wird. Eine dieser α-Helices, die sich am N-Terminus befindet, ist in Lösung flexibel und spielt eine entscheidende Rolle bei der Membraninsertion während der Porenbildung. Die Gesamtstruktur ist unter den Actinoporinen hochgradig konserviert und entscheidend für ihre Fähigkeit, mit Lipidmembranen zu interagieren. [ 4 ]

Porenbildungsmechanismus
Actinoporine entfalten ihre zytolytische Aktivität durch die Erkennung von Sphingomyelin-reichen Membranen. Nach der Bindung lagert sich die flexible N-terminale α-Helix in die Lipiddoppelschicht der Membran ein. [ 5 ] Diese Einlagerung initiiert die Oligomerisierung mehrerer Actinoporin-Moleküle, wodurch ein selektiv für Kationen permeabler Kanal entsteht. Das daraus resultierende osmotische Ungleichgewicht verursacht Zellschwellung und -lyse. [ 6 ]
Isoformen und genetische Vielfalt
Viele Seeanemonenarten produzieren durch Genduplikation und Diversifizierung mehrere Actinoporin-Isoformen. Diese Isoformen unterscheiden sich oft geringfügig in ihren Aminosäuresequenzen, was ihre Porenbildungsfähigkeit und zytolytische Aktivität beeinflussen kann. [ 6 ] Beispielsweise produzieren Arten wie Actinia equina , Heteractis crispa und Stichodactyla helianthus mehrere unterschiedliche Actinoporine mit verschiedenen biochemischen Eigenschaften. [ 6 ]
Referenzen
- ^ Anderluh G, Macek P (Februar 2002). „Zytolytische Peptid- und Proteintoxine aus Seeanemonen (Anthozoa: Actiniaria)“. Toxicon . 40 (2): 111–24 . Bibcode : 2002Txcn...40..111A . doi : 10.1016/S0041-0101(01)00191-X . PMID 11689232 .
- ^ Anderluh G, Macek P (November 2003). „Dissecting the actinoporin pore-forming mechanism“ . Structure . 11 (11): 1312–3 . doi : 10.1016/j.str.2003.10.007 . PMID 14604518 .
- ^ Hinds MG, Zhang W, Anderluh G, Hansen PE, Norton RS (Februar 2002). „Lösungsstruktur des eukaryotischen porenbildenden Cytolysins Equinatoxin II: Implikationen für die Porenbildung“. Journal of Molecular Biology . 315 (5): 1219–29 . doi : 10.1006/jmbi.2001.5321 . PMID 11827489 .
- Mancheño JM, Martín-Benito J, Martínez-Ripoll M, Gavilanes JG, Hermoso JA (November 2003). „ Kristall- und elektronenmikroskopische Strukturen des Aktinoporins Sticholysin II liefern Einblicke in den Mechanismus der Membranporenbildung“ . Structure . 11 (11): 1319–28 . doi : 10.1016/j.str.2003.09.019 . PMID 14604522 .
- ^ Palacios - Ortega , Juan; García-Linares, Sara; Rivera-de-Torre, Esperanza; Heras-Márquez, Diego; Gavilanes, José G.; Slotte, J. Peter; Martínez-del-Pozo, Álvaro (Oktober 2021). „Strukturelle Grundlagen der Sticholysin-Funktionalität“ . Biochimica et Biophysica Acta (BBA) – Proteine und Proteomik . 1869 (10) 140696. doi : 10.1016/j.bbapap.2021.140696 . PMID 34246789 .
- Valle , A .; Alvarado-Mesén, J.; Lanio, ME; Álvarez, C.; Barbosa, JARG; Pazos, IF (September 2015). „ Die Multigenfamilien der Actinoporine (Teil I): Isoformen und genetische Struktur“ . Toxicon . 103 : 176–187 . Bibcode : 2015Txcn..103..176V . doi : 10.1016 /j.toxicon.2015.06.028 . PMID 26187849 .