Sexueller Konflikt oder sexueller Antagonismus entsteht, wenn die beiden Geschlechter unterschiedliche optimale Fitnessstrategien in Bezug auf die Fortpflanzung verfolgen , insbesondere hinsichtlich der Art und Häufigkeit der Paarung. Dies kann potenziell zu einem evolutionären Wettrüsten zwischen Männchen und Weibchen führen . [ 1 ] [ 2 ] Beispielsweise können Männchen von mehreren Paarungen profitieren, während mehrere Paarungen Weibchen aufgrund der anatomischen Unterschiede der jeweiligen Art schaden oder sie gefährden können. [ 3 ] Sexueller Konflikt ist die Grundlage der evolutionären Unterscheidung zwischen Männchen und Weibchen. [ 4 ]
Die Entwicklung eines evolutionären Wettrüstens lässt sich auch im Modell der sexuellen Selektion durch Verdrängung beobachten [ 5 ] , welches intersexuelle Konflikte im Kontext der Evolution sekundärer Geschlechtsmerkmale , der sensorischen Ausbeutung und des weiblichen Widerstands betrachtet [ 1 ] . Laut diesem Modell schafft ein kontinuierlicher sexueller Konflikt ein Umfeld, in dem die Paarungshäufigkeit und die Entwicklung sekundärer Geschlechtsmerkmale der Männchen in etwa mit dem Grad des weiblichen Widerstands korrelieren [ 1 ] . Es wurde primär bei Tieren untersucht , ist aber prinzipiell auf alle sich sexuell fortpflanzenden Organismen wie Pflanzen und Pilze anwendbar . Es gibt Hinweise auf sexuelle Konflikte auch bei Pflanzen [ 6 ] .
Sexuelle Konflikte treten im Wesentlichen in zwei Formen auf:
- Interlocus-Sexualkonflikt bezeichnet die Interaktion antagonistischer Allele an einem oder mehreren Genorten bei Männchen und Weibchen. [ 7 ] Ein Beispiel hierfür ist der Konflikt um die Paarungsrate. Männchen weisen häufig eine höhere optimale Paarungsrate auf als Weibchen, da sie in den meisten Tierarten weniger Ressourcen in ihren Nachwuchs investieren. Daher verfügen Männchen über zahlreiche Anpassungen, um Weibchen zur Paarung zu bewegen. Ein weiteres gut dokumentiertes Beispiel für Interlocus-Sexualkonflikt sind die Samenflüssigkeitsproteine von Drosophila melanogaster . Diese erhöhen die Eiproduktionsrate der Weibchen und verringern deren Wunsch, sich erneut mit einem Männchen zu paaren (was den Interessen des Männchens dient), verkürzen aber gleichzeitig die Lebensspanne der Weibchen [ 8 ] und reduzieren somit deren Fitness.
- Intralokulärer Geschlechtskonflikt – Diese Art von Konflikt stellt ein Kräftemessen zwischen natürlicher Selektion beider Geschlechter und sexueller Selektion eines Geschlechts dar. Ein Beispiel hierfür ist die Schnabelfarbe bei Zebrafinken. Ornamente können zwar aufwändig in der Produktion sein, spielen aber eine wichtige Rolle bei der Partnerwahl . Gleichzeitig machen sie ein Individuum jedoch anfälliger für Fressfeinde. Daher unterliegen die Allele für solche phänotypischen Merkmale einer antagonistischen Selektion. Dieser Konflikt wird durch einen ausgeprägten Geschlechtsdimorphismus gelöst, wodurch sexuell antagonistische Allele in der Population erhalten bleiben. Es gibt Hinweise darauf, dass intralokuläre Konflikte eine wichtige Einschränkung in der Evolution vieler Merkmale darstellen können. [ 9 ]
Sexueller Konflikt kann zu antagonistischer Koevolution führen , bei der ein Geschlecht (meist das Männchen) ein vorteilhaftes Merkmal entwickelt, das durch ein gegenläufiges Merkmal des anderen Geschlechts kompensiert wird. Ähnlich kann sexueller Konflikt zwischen verschiedenen Geschlechtern das Ergebnis eines sogenannten Perpetuum-Locus sein. Dieser Perpetuum-Locus beginnt mit Merkmalen, die den Fortpflanzungswettbewerb der Männchen begünstigen, was sich schließlich in deren Persistenz manifestiert. Diese vorteilhaften Merkmale führen aufgrund ihrer Persistenz zu einer Verringerung der Fitness der Weibchen. Daraufhin können Weibchen eine Gegenanpassung entwickeln, also ein vorteilhaftes Merkmal, das die direkten Kosten der Männchen reduziert. Dies wird als weibliche Resistenz bezeichnet. Nach diesem Ereignis sinkt die Fitnessminderung der Weibchen, und der Zyklus beginnt von neuem. [ 5 ] Sexueller Konflikt zwischen verschiedenen Geschlechtern spiegelt Interaktionen zwischen Partnern wider, die darauf abzielen, ihre optimalen Fitnessstrategien zu erreichen, und lässt sich durch evolutionäre Konzepte erklären.
Sensorische Ausbeutung durch Männchen ist ein Mechanismus, mit dem Männchen versuchen, die Zurückhaltung der Weibchen zu überwinden. Dies kann zu einer Vertreibungsselektion führen, die wiederum ein koevolutionäres Wettrüsten auslöst. Weitere Mechanismen sexueller Konflikte sind beispielsweise traumatische Besamung , erzwungene Kopulation , Penisfechten , Liebespfeile und andere.
Weiblicher Widerstand umfasst traditionell die Reduzierung negativer Auswirkungen auf von Männchen eingesetzte Mechanismen, kann aber außerhalb der Norm auch sexuellen Kannibalismus , eine erhöhte Fitness der Weibchen auf Basis ihrer Nachkommen und eine gesteigerte Aggressivität gegenüber Männchen beinhalten.
Einige betrachten sexuelle Konflikte als einen Teilbereich der sexuellen Selektion (die traditionell als mutualistisch angesehen wurde ), während andere sie als ein eigenständiges evolutionäres Phänomen betrachten. [ 10 ]
Interessenkonflikte zwischen den Geschlechtern

Die Unterschiede zwischen den allgemeinen evolutionären Interessen von Männern und Frauen lassen sich besser verstehen, wenn man die verschiedenen Faktoren analysiert, die den sexuellen Konflikt beeinflussen. In Situationen zwischen einem Mann und einer Frau sind nur die relativen Positionen der optimalen Merkmalswerte relevant, da erst deren Vergleich Aufschluss über den resultierenden Konflikt gibt. Die Balkendarstellung der Merkmalswerte am unteren Rand der Abbildung zeigt die relative Intensität jedes Merkmals an. Die linke Seite repräsentiert das schwach ausgeprägte Ende des Intensitätsbereichs, die rechte Seite das stark ausgeprägte.
Männchen und Weibchen unterscheiden sich in den folgenden allgemeinen Fitnesskomponenten, was zu sexuellen Konflikten führt. Siehe die beigefügte Abbildung in diesem Abschnitt.
Paarungsrate
Männchen steigern ihre Fitness im Allgemeinen durch die Paarung mit mehreren Weibchen, während Weibchen eine mittlere Position einnehmen, da sie keine bestimmte Seite des Spektrums bevorzugen. Beispielsweise sind Weibchen tendenziell wählerischer, doch die beobachtete sexuelle Promiskuität bei Soay-Schafen deutet darauf hin, dass Weibchen keine festgelegte Partnerpräferenz besitzen. [ 11 ] Da es sich bei Soay-Schafen jedoch um eine Hausschafrasse handelt, unterliegen sie aufgrund menschlicher Eingriffe möglicherweise nicht den traditionellen Evolutionsmechanismen.
Reizschwelle bei Frauen
Im Allgemeinen profitieren Weibchen davon, wählerischer zu sein, als es den Männchen lieb ist. Beispielsweise zeigt die neotropische Spinne Paratrechalea ornata während der Balz ein Verhalten, bei dem die Männchen Brautgeschenke überreichen, um die Paarung zu sichern. Diese Brautgeschenke ermöglichen es dem Männchen, die Dauer der Kopulation zu kontrollieren und die Eiablage des Weibchens zu beschleunigen. [ 12 ]
Grad der weiblichen Treue
Da die Treue der Weibchen vom jeweiligen Paarungssystem der Art abhängt, befinden sie sich im mittleren Bereich des Spektrums. Männchen hingegen haben unterschiedliche Präferenzen, je nachdem, ob sie unverpaart oder verpaart sind. Verpaarte Männchen profitieren von hoher weiblicher Treue, während unverpaarte Männchen von geringer weiblicher Treue profitieren, um ihre Paarungshäufigkeit zu erhöhen.
Toxizität der Samenflüssigkeit
Weibliche Tiere profitieren von einer geringen Toxizität der Samenflüssigkeit, während männliche Tiere von einem hohen Toxizitätsgrad profitieren, da dieser ihren Wettbewerbsvorteil erhöht. [ 8 ]
Weibliche Fruchtbarkeit
Males benefit from a high female fecundity as it means that females can produce more offspring and have a higher potential for reproduction. It is important to note that females also benefit from high fecundity, and thus this trait is probably more affected by classical natural selection.
Maternal investment
In many species, males benefit from high maternal investment as it allows them to preserve more energy and time for additional matings rather than investing their resources on one offspring. Females are expected to invest a certain amount of time and resources, but it can also be detrimental to the female if too much maternal investment is expected.
Sex-biased gene expression
Natural and/or sexual selection on traits that influence the fitness of either male or female give rise to fundamental phenotypic and behavioral differences between them referred to as sexual dimorphism. Selective pressures on such traits give rise to differences in expression of these genes either at transcriptional or translational level. In certain cases these differences are as dramatic as genes not being expressed at all in either of the sexes. These differences in gene expression are the result of either natural selection on reproductive potential and survival traits of either sex or sexual selection on traits relevant to intra-sexual competition and inter-sexual mate choice.[13]
Sex-biased genes could either be male- or female-biased and sequence analysis of these protein coding genes have revealed their faster rate of evolution which has been attributed to their positive selection vs. reduced selective constraint. Apart from sex specific natural selection and sexual selection that includes both intersexual and intrasexual selection, a third phenomenon also explains the differences in gene expressions between two sexes – sexual antagonism. Sexual antagonism represents an evolutionary conflict at a single or multiple locus that contribute differentially to the male and female fitness. The conflict occurs as the spread of an allele at one locus in either male or female that lowers the fitness of the other sex. This gives rise to different selection pressure on males and females. Since the allele is beneficial for one sex and detrimental to the other, counter adaptations in the form of suppressor alleles at different genetic loci can develop that reduce the effects of deleterious allele, giving rise to differences in gene expression. Selection on such traits in males would select for suppressor alleles in females thus increasing the chances of retaining the deleterious allele in the population in interlocus sexual conflict.[14]
Die Beibehaltung solcher antagonistischer Allele in einer Population könnte auch durch eine Steigerung der Gesamtfitness der mütterlichen Linie erklärt werden. So wurde beispielsweise der Genort für die männliche sexuelle Orientierung beim Menschen in subtelomeren Regionen des X-Chromosoms identifiziert, nachdem Studien an 114 Familien homosexueller Männer durchgeführt wurden. Es zeigte sich, dass die gleichgeschlechtliche Orientierung bei mütterlichen Onkeln und männlichen Cousins der homosexuellen Probanden häufiger vorkam. [ 15 ] Ein evolutionäres Modell erklärte diesen Befund mit der erhöhten Fruchtbarkeit der Frauen in der mütterlichen Linie, was zu einem zusätzlichen Fitnessgewinn beiträgt. [ 16 ]
Hinweise auf positive Selektion bei sexuell antagonistischen Genen
Kombinierte Daten aus Studien kodierender Sequenzen in C. elegans , Drosophila , Menschen und Schimpansen zeigen ein ähnliches Muster der molekularen Evolution geschlechtsspezifischer Gene. Das heißt, die meisten männlich- und weiblich-spezifischen Gene wiesen im Vergleich zu Genen, die in beiden Geschlechtern gleichermaßen exprimiert werden, ein höheres Ka/Ks-Verhältnis auf . [ 17 ] Männlich-spezifische Gene zeigen eine größere Divergenz als weiblich-spezifische Gene. Das Ka/Ks-Verhältnis war höher für männlich-spezifische Gene, die ausschließlich in reproduktiven Geweben exprimiert werden, z. B. in den Hoden von Primaten. In C. elegans , einer androdiozischen Art (einer Population, die nur aus Hermaphroditen und Männchen besteht), war die Evolutionsrate von Genen, die während der Spermatogenese exprimiert werden, bei Männchen höher als bei Hermaphroditen. Bei Drosophila wurde eine höhere Divergenz zwischen den Arten als intraspezifischer Polymorphismus an nicht-synonymen Stellen männlich-spezifischer Gene festgestellt. Dies verdeutlichte die Rolle der positiven Selektion und zeigte, dass männlich-spezifische Gene häufig adaptiver Evolution unterliegen. [ 18 ] Obwohl positive Evolution mit den meisten männlich- und weiblich-spezifischen Genen assoziiert ist, ist es schwierig, Gene zu isolieren, deren Expression ausschließlich auf sexuellen Konflikt/Antagonismus zurückzuführen ist. Da jedoch sexuell antagonistische Gene zu einer verzerrten Expression führen und die meisten verzerrten Gene positiver Selektion unterliegen, lässt sich dasselbe auch für sexuell antagonistische Gene argumentieren. Ein ähnlicher Trend wie bei der Evolution kodierender Sequenzen wurde auch bei der Genexpression beobachtet. Die Divergenz der Expression zwischen den Arten war höher als der intraspezifische Expressionspolymorphismus. Positive Selektion in akzessorischen Drüsenproteinen (Acps) (produziert von Männchen) und Proteinen des weiblichen Fortpflanzungstrakts (Frtps) wurde bereits beschrieben.
Sexueller Antagonismus, Geschlechtskopplung und genomische Lokalisation von Genen im Konfliktfall
Obwohl X-Chromosomen als Hotspots für die Ansammlung sexuell antagonistischer Allele gelten, wurden auch andere autosomale Regionen als solche identifiziert. Das XY/XX- und ZW/ZZ-System der Geschlechtsbestimmung ermöglicht eine beschleunigte Fixierung geschlechtsgebundener rezessiver Allele, die für Männchen vorteilhaft und für Weibchen nachteilig sind. Dies ist auf die ständige positive Selektion im heterogametischen Geschlecht (XY, ZW) zurückzuführen, im Gegensatz zur reinigenden Selektion, die die Allele nur im homozygoten Zustand entfernt. Bei partiell oder vollständig dominanten, geschlechtsgebundenen Merkmalen, die für Männchen nachteilig sind, beträgt die Wahrscheinlichkeit der Selektion für das Allel 2/3, verglichen mit der Wahrscheinlichkeit der Selektion gegen das Allel von 1/3. Vor diesem Hintergrund ist es wahrscheinlich, dass X- und W-Chromosomen viele sexuell antagonistische Allele beherbergen. Kürzlich identifizierten Innocenti et al. jedoch sexuell antagonistische Kandidatengene in Drosophila melanogaster , die etwa 8 % aller Gene ausmachen. Diese waren auf dem X-, zweiten und dritten Chromosom verteilt. Proteine der akzessorischen Drüsen, die männlich-spezifisch exprimiert werden und einer positiven Selektion unterliegen, befinden sich ausschließlich auf Autosomen. Sie wirken teilweise geschlechtsantagonistisch, da sie in Weibchen nicht exprimiert werden und dominant sind, weshalb sie auf dem X-Chromosom unterrepräsentiert sind. [ 19 ]
Evolutionstheorien
Der interlokale sexuelle Konflikt umfasst zahlreiche evolutionäre Konzepte, die auf ein breites Spektrum von Arten angewendet werden, um die Interaktionen zwischen den Geschlechtern zu erklären. Der Konflikt zwischen den Interaktionen von Männchen und Weibchen kann als ein andauerndes evolutionäres Wettrüsten beschrieben werden.
Laut Darwin (1859) findet sexuelle Selektion statt, wenn Individuen gleichen Geschlechts im Kontext der Fortpflanzung gegenüber anderen bevorzugt werden. Sexuelle Selektion und sexueller Konflikt hängen zusammen, da Männchen sich üblicherweise mit mehreren Weibchen paaren, während Weibchen sich typischerweise mit weniger Männchen paaren. Es wird angenommen, dass sowohl die Verdrängungsselektion als auch der sexuelle Konflikt auf die sensorische Ausbeutung durch Männchen zurückzuführen sind. Männchen können die sensorischen Präferenzen der Weibchen aufgrund deren Partnerwahl ausnutzen . Beispielsweise verhalten sich Weibchen möglicherweise deutlich in Richtung Paarungs- und Befruchtungserfolg, wenn sie von Männchen mit trügerischen oder übertriebenen sekundären Geschlechtsmerkmalen angelockt werden . Da manche männliche Merkmale für Weibchen nachteilig sind, reagieren diese mit der Zeit unempfindlicher auf diese Merkmale. Sexuell antagonistische Koevolution beinhaltet den zyklischen Prozess zwischen den übertriebenen (persistenten) und den resistenten Merkmalen der Geschlechter. Verbreiten sich männliche Merkmale, die die Fitness der Weibchen verringern, ändert sich die weibliche Präferenz. [ 9 ]
Weiblicher Widerstand
Weiblicher Widerstand ist ein evolutionäres Konzept, bei dem Weibchen Merkmale entwickeln, um dem Einfluss der Männchen entgegenzuwirken. Dieses Konzept lässt sich anhand der Beispiele sexueller Konflikte beim Wasserläufer und Zwergfisch belegen.
Männliche Wasserläufer zeigen ein erzwungenes Paarungsverhalten gegenüber den Weibchen. Infolgedessen wehrt sich das Weibchen gegen das Männchen, um die schädlichen Auswirkungen zu minimieren. Diese Gegenwehr ist ein Nebenprodukt des weiblichen Widerstands. [ 9 ]
Die Population des Zwergschwertträgers (Xiphophorus pygmaeus) bestand ursprünglich aus kleinen Männchen. [ 20 ] In einer Studie wurde die Partnerwahl der Weibchen mithilfe großer, artfremder Männchen untersucht. Dabei zeigte sich, dass die Zwergschwertträgerweibchen größere Männchen bevorzugten, was darauf hindeutet, dass sich ihre Präferenz von kleinen zu großen Männchen verlagert hatte. [ 21 ] Dieses Muster der weiblichen Präferenz für größere Männchen verschwand in Populationen, die nur aus kleineren Männchen bestanden. Die Studie schlussfolgerte, dass dieses Verhalten auf den Widerstand der Weibchen zurückzuführen ist und nicht auf eine generelle Präferenz für größere Männchen. [ 5 ]
Spermienkonkurrenz
Spermienkonkurrenz ist ein von Geoff Parker (1970) entwickeltes evolutionäres Konzept, das den Mechanismus beschreibt, durch den verschiedene Männchen um die Befruchtung der Eizelle eines Weibchens konkurrieren. [ 1 ] Spermienkonkurrenz fördert sowohl offensive als auch defensive Merkmale. Offensive Spermienkonkurrenz besteht darin, dass Männchen die Spermien des vorherigen Männchens verdrängen und toxische Spermien einsetzen, um rivalisierende Spermien zu zerstören. [ 1 ] Umgekehrt besteht defensive Spermienkonkurrenz darin, dass Männchen die Weibchen an einer erneuten Paarung hindern, indem sie die Dauer ihrer eigenen Paarung verlängern oder das Interesse der Weibchen an anderen Männchen einschränken. Spermienkonkurrenz kann sich in Verhaltens-, morphologischen und physiologischen Anpassungen der Männchen äußern. Beispiele für Verhaltensanpassungen sind die Bewachung des Weibchens oder die erzwungene Kopulation. Morphologische Anpassungen umfassen beispielsweise männliche Klammerorgane, veränderte Genitalien (z. B. stachelige Genitalien) und Kopulationspfropfen . Physiologische Anpassungen können toxische Spermien oder andere Chemikalien in der Samenflüssigkeit umfassen, die die Fähigkeit des Weibchens zur erneuten Paarung verzögern. [ 22 ]
Sexueller Konflikt zeigt sich, wenn Männchen im Spermienwettbewerb andere Männchen angreifen. Beispielsweise bilden Männchen der Iberischen Felseneidechse ( Lacerta monticola ) harte Kopulationspfropfen. Diese Pfropfen werden unmittelbar nach der Kopulation in die Kloake des Weibchens eingeführt, was als eine Art „ Keuschheitsgürtel “ interpretiert wurde. Die Studie fand jedoch keine Belege für diese Hypothese, da die Männchen die Pfropfen anderer Männchen entfernen konnten. [ 23 ] Es besteht zwar kein direkter Konflikt zwischen Männchen und Weibchen, aber die Männchen könnten manipulative Eigenschaften entwickeln, um der Entfernung ihrer Pfropfen entgegenzuwirken.
Auch Männchen entwickeln unterschiedliche Verhaltensweisen zur Vaterschaftssicherung. Eine Studie zur Spermienkonkurrenz zeigte einen positiven Zusammenhang zwischen Hodengröße und dem Ausmaß der Spermienkonkurrenz innerhalb von Gruppen. Höhere Spermienkonkurrenz korrelierte mit größeren akzessorischen Geschlechtsdrüsen, Samenbläschen und inneren Prostatadrüsen. Größere Besamungspfropfen wurden seltener entfernt. [ 24 ]
Vor- und Nachteile
Männer
Dass Männchen Weibchen Schaden zufügen, ist eine Folge der männlichen Anpassung im Kontext der Spermienkonkurrenz. Zu den Vorteilen für die Männchen zählen: a) eine geringere Wahrscheinlichkeit der erneuten Paarung, b) die Fähigkeit, mehr Nachkommen zu zeugen, c) die Erhaltung der Spermienqualität und d) die Speicherung von Spermien. [ 25 ] Diese Vorteile zeigen sich in allen Variationen von Paarungsverhalten, wie beispielsweise giftigen Spermien, stacheligen Genitalien, erzwungener Kopulation, Penisfechten, Liebespfeilen , Partnerbewachung, Belästigung/aggressivem Verhalten und traumatischer Besamung.
Weibchen
Weibchen können durch Männchen eine Vielzahl schädlicher Einflüsse erfahren. Dazu gehören: a) verkürzte Lebenserwartung, b) verändertes Fressverhalten (was, wie bei Fruchtfliegen der Art Drosophila beobachtet, zu einer erhöhten Nahrungsaufnahme führen kann ), c) erhöhtes Infektionsrisiko, d) Wundheilung durch erhöhten Energieverbrauch [ 25 ] , e) Manipulation des Fortpflanzungszyklus der Weibchen durch die Männchen [ 26 ] , f) erhöhte Anfälligkeit gegenüber Fressfeinden [ 9 ] und g) eine reduzierte Immunantwort der Weibchen [ 25 ] .
Hermaphroditen
Hermaphroditen sind Organismen mit sowohl männlichen als auch weiblichen Geschlechtsorganen. Innerhalb einer rein hermaphroditischen Art kann es zu sexuellen Konflikten kommen. Ein Beispiel hierfür sind einige hermaphroditische Plattwürmer wie Pseudobiceros bedfordi . Ihr Paarungsritual besteht aus einem Penisfechten, bei dem beide Partner versuchen, sich gegenseitig zu befruchten und gleichzeitig selbst nicht getroffen zu werden. Die Befruchtung birgt Risiken, da sowohl das Stoßen als auch die subkutane Insemination erhebliche Verletzungen verursachen können. Der Konflikt besteht daher darin, sich durch geschickteres Stoßen und Abwehren sowie durch Vermeidung von Stichen weiterzuentwickeln. [ 9 ]
Auch der Regenwurm Lumbricus terrestris zeigt ein Verhalten, bei dem beide Partner versuchen, möglichst viel Sperma vom Partner aufzunehmen. Dazu verwenden sie 40 bis 44 Begattungsborsten, um die Haut des Partners zu durchdringen und dabei erhebliche Schäden zu verursachen. [ 27 ]
Es gibt Fälle, in denen Hermaphroditen ihre eigenen Eier befruchten können, dies ist jedoch selten. Die meisten Hermaphroditen nehmen zur Fortpflanzung die Rolle eines Männchens oder Weibchens an. [ 9 ] Sexuelle Konflikte um die Paarung können dazu führen, dass Hermaphroditen im Kontext der Geschlechtswahl entweder kooperieren oder aggressives Verhalten zeigen.
Sexueller Konflikt vor und während der Paarung
Kindestötung
Kindstötung ist ein Verhalten, das bei vielen Arten vorkommt. Dabei tötet ein erwachsenes Tier seine jüngeren Nachkommen, einschließlich Eier. Sexueller Konflikt ist eine der häufigsten Ursachen, obwohl es Ausnahmen gibt, wie beispielsweise männliche Barsche, die ihre eigenen Jungtiere fressen. [ 28 ] Obwohl Männchen dieses Verhalten üblicherweise zeigen, können auch Weibchen so handeln.
Kindstötung wurde bei Wirbeltieren wie Hanuman-Languren , Großkatzen, Haussperlingen und Mäusen eingehend untersucht . Dieses Verhalten kommt jedoch auch bei Wirbellosen vor . So dringen beispielsweise bei der Spinne Stegodyphus lineatus Männchen in die Nester der Weibchen ein und werfen deren Eiersäcke hinaus. [ 29 ] Weibchen haben nur ein Gelege in ihrem Leben und ihr Fortpflanzungserfolg sinkt, wenn das Gelege verloren geht. Dies führt zu erbitterten Kämpfen, bei denen es zu Verletzungen und sogar zum Tod kommen kann. Der Jacana jacana , ein tropischer Watvogel , ist ein Beispiel für Kindstötung durch das weibliche Geschlecht. [ 30 ] Weibchen verteidigen ein Revier, während die Männchen sich um ihre Jungen kümmern. Da Männchen eine begrenzte Anzahl an Tieren sind, vertreiben oder töten andere Weibchen häufig ihre Jungen. Die Männchen können sich dann erneut paaren und die Jungen des neuen Weibchens aufziehen.
Dieses Verhalten ist für beide Seiten mit Kosten verbunden, und es haben sich Gegenanpassungen beim betroffenen Geschlecht entwickelt, die von der gemeinsamen Verteidigung der Jungen bis hin zu Strategien zur Minimierung von Verlusten reichen, wie zum Beispiel die Abtreibung des vorhandenen Nachwuchses bei der Ankunft eines neuen Männchens (der Bruce-Effekt ).
Traumatische Insemination

Traumatische Insemination beschreibt die Taktik des Männchens, das Weibchen zu durchstechen und Spermien abzugeben, um die Vaterschaft zu sichern. Traumatische Insemination umfasst in diesem Sinne auch Arten, die eine extragenitale traumatische Insemination aufweisen. [ 31 ] Männchen besitzen ein nadelartiges Begattungsorgan . Beispiele hierfür sind Bettwanzen, Fledermauswanzen und Spinnen.
Bei Bettwanzen (Cimex lectularius ) beispielsweise leiten die Männchen die Paarung ein, indem sie auf das Weibchen klettern und dessen Hinterleib durchstechen. Anschließend injiziert das Männchen sein Sperma zusammen mit dem Sekret der akzessorischen Drüsen direkt in den Blutkreislauf des Weibchens. Dadurch entsteht an der Einstichstelle eine deutlich sichtbare, melanisierte Narbe. Es wurde beobachtet, dass Männchen nicht nur Weibchen, sondern auch andere Männchen und Nymphen durchstechen. Die Weibchen können dadurch gesundheitsschädliche Folgen erleiden, darunter Blutungen, Wunden, ein erhöhtes Infektionsrisiko und eine Schwächung des Immunsystems, die Spermien im Blut zu bekämpfen. [ 32 ]
Eine Studie untersuchte die Auswirkungen der Paarung von Bettwanzen anderer Arten, beispielsweise von weiblichen Hesperocimex sonorensis und einem männlichen Hesperocimex cochimiensis . Dabei wurde beobachtet, dass weibliche H. sonorensis innerhalb von 24 bis 48 Stunden nach der Paarung mit männlichen H. cochimiensis starben . Bei der Untersuchung der Weibchen zeigte sich, dass ihre Hinterleiber aufgrund zahlreicher Immunreaktionen schwarz verfärbt und geschwollen waren. [ 33 ] Es besteht ein direkter Zusammenhang zwischen der Zunahme der Paarungen und der Verkürzung der Lebensdauer der Weibchen. [ 34 ]
Die Sterblichkeitsrate weiblicher Bettwanzen aufgrund traumatischer Insemination könnte eher mit sexuell übertragbaren Krankheiten als mit der offenen Wunde selbst zusammenhängen. Dieselben Umweltmikroben, die an den Genitalien der Männchen gefunden wurden, fanden sich auch in den Weibchen. Eine Studie identifizierte insgesamt neun Mikrobenarten, von denen fünf tatsächlich zum Tod der Weibchen während der Kopulation führten. [ 35 ]
Afrikanische Fledermauswanzen (Afrocimex constrictus) praktizieren auch extragenitale traumatische Insemination. Die Männchen stechen das Weibchen außerhalb ihrer Genitalien an und inseminieren es. Es wurde beobachtet, dass sowohl Männchen als auch Weibchen unter traumatischer Insemination leiden. Männchen leiden darunter, weil sie weiblich anmutende Genitalien aufweisen und daher oft fälschlicherweise für Weibchen gehalten werden. Auch bei den Weibchen zeigt sich Polymorphismus: Einige besitzen eindeutig „weiblich anmutende“, andere hingegen „männlich anmutende“ Genitalien. Die Ergebnisse zeigen, dass Männchen und Weibchen mit „männlich anmutenden“ Genitalien weniger unter traumatischer Insemination leiden als Weibchen mit eindeutig „weiblich anmutenden“ Genitalien. Der weibliche Polymorphismus könnte ein evolutionäres Ergebnis sexueller Konflikte sein. [ 36 ]
Männliche Spinnen der Art Harpactea sadistica führen eine extragenitale traumatische Insemination durch, indem sie mit ihren nadelartigen Begattungsorganen die Scheidenwand des Weibchens durchstechen und so eine direkte Befruchtung erreichen. Während der Balz durchstechen die Männchen die Weibchen zudem mit ihren Cheliceren. Die Spermatheken der Weibchen sind verkümmert . Dieses Organ entfernt Spermien von Männchen, die sich später paaren, was auf eine kryptische Partnerwahl der Weibchen hindeutet . Kryptische Partnerwahl bedeutet, dass ein Weibchen die Möglichkeit hat, selbst zu entscheiden, mit welchem Spermium ihre Eier befruchtet werden. Es wird vermutet, dass die Männchen diese aggressive Paarungsstrategie aufgrund des weiblichen Spermaspeicherorgans entwickelt haben könnten. [ 31 ]
Giftiges Sperma
Giftiges Sperma kommt vor allem bei der Fruchtfliege Drosophila melanogaster vor. Diese Fruchtfliegen produzieren giftiges Sperma und führen zu einer traumatischen Insemination im Genitalbereich. Das Männchen führt sein Begattungsorgan in die weiblichen Geschlechtsorgane ein, nachdem es deren innere Wand durchstoßen hat, um das giftige Sperma zu injizieren.
Häufige Paarung bei Drosophila melanogaster ist mit einer verkürzten Lebensspanne der Weibchen verbunden. [ 37 ] Diese Kosten der Paarung bei D. melanogaster- Weibchen beruhen nicht auf der Spermienaufnahme, sondern werden durch Proteine der akzessorischen Drüsen (Acps) vermittelt . [ 38 ] Acps kommen in der Samenflüssigkeit der Männchen vor. Die toxische Wirkung von Acps auf Weibchen könnte sich als Nebenwirkung anderer Funktionen von Acps (z. B. Konkurrenz zwischen Männchen oder erhöhte Eiproduktion) entwickelt haben. Drosophila- Männchen profitieren möglicherweise von der Übertragung toxischen Spermas, es ist jedoch unwahrscheinlich, dass ihr Hauptnutzen für die Fortpflanzung direkt in der verkürzten Lebensspanne der Weibchen liegt. [ 25 ]
Nach der Übertragung von Acps auf das Weibchen rufen diese verschiedene Veränderungen in ihrem Verhalten und ihrer Physiologie hervor. [ 25 ] Studien haben gezeigt, dass Weibchen, die Acps von Männchen erhalten haben, eine verkürzte Lebensspanne [ 8 ] und eine geringere Fitness aufweisen. [ 39 ] Aktuell wird geschätzt, dass es in Drosophila melanogaster mehr als 100 verschiedene Acps gibt . [ 9 ] [ 40 ] Acp-Gene wurden in einer Vielzahl von Arten und Gattungen gefunden. Acps werden als konservierend beschrieben, da sie biochemische Proteinklassen in der Samenflüssigkeit erhalten. [ 25 ]
Drosophila hibisci nutzt Kopulationspfropfen anstelle einer traumatischen Befruchtung. Die Kopulationspfropfen von Drosophila hibisci sind gallertartige, harte Gebilde, die sich bei der Kopulation an den Uterus des Weibchens anheften. In einer Studie wurden zwei Hypothesen zu den Kopulationspfropfen untersucht: a) dass sie den Weibchen als Nährstoffe dienen, die sie verdauen müssen, um die Eier während der Reifung zu erhalten, oder b) dass sie als Keuschheitsmechanismus gegen das Eindringen von Spermien rivalisierender Männchen fungieren. Die Studie ergab, dass die Kopulationspfropfen keinen Einfluss auf die Ernährung der Weibchen haben und als Schutzmechanismus gegen rivalisierende Männchen dienen. [ 41 ] Obwohl diese Fruchtfliegenart ( Drosophila hibisci ) mit den Kopulationspfropfen Erfolg hatte, sind sie bei anderen Drosophila- Arten wirkungslos. Eine Studie zeigte, dass Männchen, die ihre Kopulationspfropfen in die Weibchen einführten, diese nicht daran hindern konnten, sich nur vier Stunden nach der Paarung erneut zu paaren. [ 42 ] Daher kann angenommen werden, dass männliche Drosophila melanogaster andere männliche Anpassungen entwickeln, um die Unzulänglichkeit des Paarungspfropfens auszugleichen, einschließlich intragenitaler traumatischer Insemination, um ihre Spermien direkt abzugeben.
Stachelige Genitalien

Es ist bekannt, dass Männchen des Bohnenkäfers (Callosobruchus maculatus) eine extragenitale traumatische Besamung bei Weibchen durchführen. [ 31 ] Das Begattungsorgan des männlichen Bohnenkäfers ist mit Stacheln besetzt, mit denen er den Fortpflanzungstrakt des Weibchens durchdringt.
Männchen, die sich mehrfach mit demselben Weibchen paarten, verursachten größere Schäden an ihren Genitalien. Im Vergleich zu Jungfernmännchen übertrugen diese Männchen jedoch eine geringe Menge Ejakulat. [ 43 ] Es wurde außerdem beobachtet, dass Männchen, die sich mit Weibchen paarten, manchmal kein Sperma durch die von ihnen verursachten Wunden abgaben. [ 3 ]
Weibchen, die sich mit mehr als einem Männchen paarten, wiesen eine höhere Sterblichkeit auf. Die Lebensdauer der Weibchen verkürzte sich, nachdem sie von einem Männchen eine große Menge Ejakulat erhalten hatten. Weibchen, die insgesamt zwei Ejakulate erhielten, starben jedoch seltener als solche, die nur ein Ejakulat erhielten. Es ist anzunehmen, dass Weibchen, die sich 48 Stunden nach der ersten Kopulation erneut paarten, unterernährt waren, da sie weder tranken noch fraßen. Das Ejakulat nach der zweiten Kopulation war nährstoffreich und verlängerte die Lebensdauer der Weibchen, wodurch sie mehr Nachkommen zeugen konnten. [ 43 ]
Weibchen, die sich mit jungfräulichen Männchen paarten, erlitten seltener Genitalschäden als solche, die sich mit sexuell erfahrenen Männchen paarten. Es wurde vermutet, dass die Ejakulatmenge und die darin enthaltene Spermienmenge zu den geringeren Schäden bei männlichen Jungfern beitragen. [ 43 ]
Ich liebe Darts.

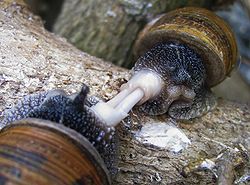
Zwitter-Schnecken paaren sich mithilfe von Liebespfeilen. Diese Liebespfeile ähneln einem scharfen Stilett und werden von den Männchen produziert. Während der Balz werden die Liebespfeile auf die Weibchen abgefeuert. Aufgrund des langwierigen Regenerationsprozesses wird jeweils nur ein Liebespfeil abgegeben. [ 44 ] Schnecken der Gattung Helix dienen als Modellorganismen für die Erforschung von Liebespfeilen. Es wurde beobachtet, dass Schnecken, die sich an ihren Partnerinnen reiben, den Liebespfeil mit Nachdruck in diese einführen. Obwohl die Pfeile die Paarung unterstützen können, garantieren sie nicht zwangsläufig den Paarungserfolg. [ 9 ] Allerdings tragen Liebespfeile tatsächlich zum Paarungserfolg bei. Zwitter-Schnecken nehmen selektiv die Rolle des Weibchens oder Männchens ein. Die Schnecken injizieren den Weibchen Liebespfeile, damit diese mehr Spermien speichern (etwa doppelt so viel) als die weniger erfolgreichen Männchen. [ 45 ] Männchen, die Weibchen erfolgreich mit Liebespfeilen trafen, wiesen eine höhere Vaterschaftswahrscheinlichkeit auf. Viele Schnecken, die von Liebespfeilen getroffen wurden, erlitten offene Wunden und starben mitunter. [ 46 ]
erzwungene Kopulation
Erzwungene Kopulation (sexueller Zwang) durch Männchen kommt bei vielen Tierarten vor und kann Verhaltensweisen wie Aggression, Belästigung und Begrapschen auslösen. Weibchen leiden vor und während der Kopulation unter den negativen Auswirkungen der gewaltsamen Paarungstaktiken der Männchen. Letztendlich werden sie gegen ihren Willen zur Kopulation gezwungen.
Belästigung
Belästigung ist ein Verhalten, das während oder vor der erzwungenen Kopulation gezeigt wird. Ein Männchen kann dem Weibchen aus der Ferne folgen, um sich auf den Angriff vorzubereiten. Beim Malabar-Reisfisch ( Horaichthys setnai , Beloniformes ) belästigen die Männchen die Weibchen, an denen sie interessiert sind, aus der Ferne. Dieses Verhalten kann darin bestehen, unter oder hinter den Weibchen zu schwimmen und ihnen sogar aus der Ferne zu folgen. Wenn das Männchen zur Kopulation bereit ist, schießt es mit hoher Geschwindigkeit auf das Weibchen zu und setzt sein keulenförmiges Organ, das Gonopodium (auch Afterflosse genannt), aus. Das Gonopodium dient der Abgabe der Spermatophore. Das Männchen nimmt sein Gonopodium und platziert es mit Nachdruck in der Nähe der weiblichen Geschlechtsorgane. Das scharfe Ende der Spermatophore durchdringt die Haut des Weibchens. Dadurch wird das Männchen fest mit dem Weibchen verbunden. Anschließend platzt die Spermatophore des Männchens und setzt Spermien frei, die zur Geschlechtsöffnung des Weibchens gelangen. [ 9 ]
Greifen
Erzwungene Kopulation kann zu aggressivem Verhalten wie dem Festhalten führen. Männchen zeigen dieses Verhalten während der Kopulation mit einem begehrenswerten Weibchen. Darwin (1871) beschrieb Männchen mit solchen Greifeigenschaften als Träger von „Greiforganen“. Seiner Ansicht nach zeigen Männchen dieses aggressive Verhalten, um das Weibchen am Weggehen oder Entkommen zu hindern. Der Zweck dieser Greiforgane besteht darin, die Dauer der Kopulation zu verlängern und gleichzeitig Weibchen von anderen Männchen fernzuhalten. Das Festhalten kann auch als Ausdruck von Bewachungsverhalten der Männchen gegenüber ihren Partnerinnen interpretiert werden. [ 9 ] Beispiele für Arten mit solchen Greifeigenschaften sind Wasserläufer , Tauchkäfer und die Dungfliege Sepsis cynipsea .
Bei der erzwungenen Paarung attackieren männliche Wasserläufer (Gattung Gerris ) die Weibchen. Da sich die Weibchen wehren, kommt es zum Kampf. Gelingt es dem Männchen, sich an das Weibchen anzuheften, trägt dieses es während und nach der Paarung. Dies ist für das Weibchen energetisch aufwendig, da es das hohe Gewicht des Männchens tragen muss, während es gleichzeitig über die Wasseroberfläche gleitet. Die Geschwindigkeit des Weibchens verringert sich in der Regel um 20 %, sobald sich das Männchen angeheftet hat. Der Zweck einer langen Paarung besteht darin, dass das Männchen die Vaterschaft sichert, um das Weibchen von anderen Männchen fernzuhalten. Lange Paarungszeiten können die Weibchen stark belasten, da sie sich nach der Paarung von der Wasseroberfläche entfernen und die Nahrungssuche einstellen. Die Paarungsdauer kann extrem lang sein. Beim Wasserläufer Aquarius najas betrug sie insgesamt 3 Monate. Beim Wasserläufer Gerris lateralis lag die Dauer zwischen 4 und 7 Minuten. [ 47 ]
Bei Wasserläufern (Gerris odontogaster) besitzen die Männchen einen abdominalen Klammermechanismus, mit dem sie die Weibchen vor der Paarung in hochkomplexen Kämpfen festhalten. Männchen mit längeren Klammern konnten mehr Purzelbäume widerständiger Weibchen überstehen und sich erfolgreich paaren. Die Genitalstrukturen der Männchen weisen eine besondere Form auf, die dem Widerstand der Weibchen entgegenwirkt. [ 48 ]
Wasserläufer der Art G. gracilicornis besitzen einen Verhaltensmechanismus und Greifstrukturen, die ihnen das Festhalten an Beute ermöglichen. Männliche Wasserläufer nutzen eine sogenannte „einschüchternde Balz“. Dabei erzeugen sie durch Vibrationen Signale, um Fressfeinde anzulocken und Weibchen zur Paarung zu bewegen. Da Weibchen lange Zeit an der Wasseroberfläche verweilen, sind sie einem höheren Risiko ausgesetzt, von Fressfeinden erbeutet zu werden. Befindet sich ein Männchen an einem Weibchen, ist es für es weniger wahrscheinlich, von Fressfeinden verletzt zu werden, da es auf ihr ruht. Daher erzeugen die Männchen durch das Klopfen mit den Beinen Wellen auf der Wasseroberfläche, um Fressfeinde anzulocken. Das Weibchen gerät in Angst und leistet dem Männchen weniger Widerstand. Infolgedessen erfolgt die Kopulation schneller, und das Männchen stellt die Signale ein. [ 49 ]
Männliche Wasserläufer der Art Gerris odontogaster besitzen Greiforgane, die die Paarung je nach Größe ihrer Abdominalfortsätze verlängern können. Männchen mit längeren Abdominalfortsätzen konnten Weibchen länger festhalten als Männchen mit kürzeren Abdominalfortsätzen. [ 50 ]
Bei den Tauchkäfern (Dytiscidae) nähern sich die Männchen den Weibchen im Wasser mit einem Greifmechanismus, bevor sie sich paaren. Die Weibchen leisten dabei wiederholt Widerstand. Die Männchen haben im Laufe der Evolution einen anatomischen Vorteil beim Greifen entwickelt. Sie besitzen eine spezielle Struktur an ihren Tarsen, die das Greifen nach den weiblichen anatomischen Strukturen Pronotum und Elytren auf deren Rücken erleichtert. [ 51 ]
Sepsis cynipsea ist ein weiteres Beispiel für sexuelle Konflikte durch Festhalten. Männchen können die Kopulation nicht erzwingen; während die Weibchen jedoch Eier legen, die von einer vorherigen Paarung befruchtet wurden, besteigt ein neues Männchen das Weibchen und beschützt es vor anderen Männchen. Obwohl die Weibchen größer sind als die Männchen, können sich die Männchen dennoch an einem Weibchen festhalten. Es ist auch bekannt, dass Weibchen versuchen, das Männchen von ihrem Rücken abzuschütteln. Gelingt ihnen dies nicht, paaren sie sich. [ 52 ]
Sexueller Kannibalismus

Sexueller Kannibalismus widerspricht der traditionellen Mann-Frau-Beziehung im Hinblick auf sexuelle Konflikte. Sexueller Kannibalismus beinhaltet, dass Weibchen Männchen während Balz- oder Paarungsversuchen töten und verzehren [ 9 ] , wie beispielsweise bei der Interaktion zwischen männlichen und weiblichen Trichternetzspinnen ( Hololena curta ) [ 53 ] .
Eine mögliche Erklärung für den in verschiedenen Taxa vorkommenden sexuellen Kannibalismus ist die sogenannte „väterliche Investition“. Das bedeutet, dass Weibchen Männchen töten und fressen, manchmal nach dem Samenaustausch, um die Qualität und Anzahl ihrer Nachkommen zu erhöhen. Der Verzehr der Männchen durch die Weibchen dient ihnen als Blutmahlzeit, da sie ihr Körpermaterial freiwillig zur Verfügung stellen. Die Idee der „väterlichen Investition“ stützt das Konzept der weiblichen Partnerwahl, da weibliche Spinnen Männchen fressen, um eine höhere Nachkommenqualität zu erzielen. Männchen könnten dabei die sensorischen Präferenzen der Weibchen ausnutzen, die deren Partnerwahl beeinflussen. Es ist bekannt, dass männliche Spinnen den Weibchen Geschenke machen, um nicht gefressen zu werden. Dies ist eine Taktik, die Männchen möglicherweise anwenden, um die Weibchen zu manipulieren und sie davon abzuhalten, sie zu töten. Weibchen könnten einen starken, unkontrollierbaren Appetit haben, den Männchen zu ihrem Vorteil nutzen, indem sie die Weibchen mit essbaren Geschenken manipulieren. [ 54 ]
Antiaphrodisiakum
Männchen verschiedener Heliconius- Schmetterlingsarten, wie beispielsweise Heliconius melpomene und Heliconius erato , übertragen während der Paarung ein Antiaphrodisiakum auf das Weibchen. [ 55 ] Diese Substanz wird ausschließlich vom Männchen produziert und dient der gegenseitigen Erkennung. Wird sie auf das Weibchen übertragen, riecht dieses fortan wie ein Männchen. Dies hält zukünftige Paarungsversuche von Männchen ab. Dieses Verhalten ist sowohl für das Weibchen von Vorteil, da Belästigungen durch Männchen nach der Paarung den Fortpflanzungserfolg durch Störungen der Eiproduktion verringern, als auch für das Männchen, da so sichergestellt wird, dass sein Sperma die Eizelle befruchtet. [ 55 ]
Sexueller Konflikt nach der Paarung
Die bekanntesten Beispiele für sexuelle Konflikte treten vor und während der Paarung auf, doch enden Interessenkonflikte nicht mit der Paarung. Anfänglich kann es zu Konflikten über das weibliche Fortpflanzungsverhalten kommen, etwa über die Fortpflanzungsrate, die Häufigkeit erneuter Paarungen und die Spermienverwertung. Bei Arten mit Brutpflege kann es zu Konflikten darüber kommen, welches Geschlecht die Brutpflege übernimmt und wie intensiv diese sein soll.
Kryptische weibliche Wahl
Die kryptische Partnerwahl der Weibchen fällt unter den Konflikt in den Fortpflanzungsmustern. Sie resultiert aus einem Prozess nach der Intromission , der es dem Weibchen ermöglicht, bevorzugt Männchen mit einem bestimmten Phänotyp zu befruchten oder Nachkommen mit diesem zu zeugen. Man geht davon aus, dass, wenn die kryptische Partnerwahl dem Weibchen indirekte genetische Vorteile in Form von fitteren Nachkommen bietet, jeder männliche Phänotyp, der diese Partnerwahl einschränkt, für das Weibchen mit Kosten verbunden ist. Kryptische Partnerwahl tritt häufig bei polyandrischen oder polygamen Arten auf.
Die Grillenart Gryllus bimaculatus ist polygam. Mehrfache Paarungen erhöhen den Schlüpferfolg der Eier, vermutlich aufgrund der erhöhten Wahrscheinlichkeit, kompatible Spermien zu finden. Daher liegt es im Interesse des Weibchens, sich mit mehreren Männchen zu paaren, um die genetische Fitness der Nachkommen zu steigern; [ 56 ] Männchen hingegen bevorzugen es, mehr Nachkommen des Weibchens zu zeugen und versuchen, Mehrfachpaarungen durch Bewachung zu verhindern, um rivalisierende Männchen fernzuhalten. [ 57 ]
Auch bei der polyandrischen Spinnenart Pisaura mirabilis wurde eine kryptische Weibchenwahl nachgewiesen. Das Vorhandensein eines Brautgeschenks durch das Männchen erhöht den Anteil der vom Weibchen zurückgehaltenen Spermien (bei Berücksichtigung der Kopulationsdauer). [ 58 ]
Elterliche Fürsorge
Elterliche Investition liegt vor, wenn ein Elternteil Eier oder Nachkommen pflegt, was deren Fitness erhöht. Intuitiv könnte man annehmen, dass die Pflege der Nachkommen beiden Elternteilen indirekte genetische Vorteile bringt und daher kaum sexuelle Konflikte entstehen. Da jedoch keiner der beiden Partner am genetischen Fitness des anderen interessiert ist, ist es vorteilhafter, egoistisch zu handeln und die Kosten der elterlichen Fürsorge auf das andere Geschlecht abzuwälzen. Folglich übt jeder Partner Selektionsdruck auf den anderen aus, mehr Fürsorge zu leisten, was zu sexuellen Konflikten führt. Da es für einen Partner vorteilhaft ist, Anpassungen in der elterlichen Fürsorge auf Kosten des anderen zu entwickeln, wird der andere Partner wahrscheinlich Gegenanpassungen entwickeln, um nicht ausgenutzt zu werden. Dadurch entsteht eine Situation, die sich mithilfe der Spieltheorie vorhersagen lässt. [ 9 ]
Bei der Art Nicrophorus defodiens , dem Totengräberkäfer, gibt es elterliche Fürsorge beider Elternteile. Allerdings setzen die Männchen nach der Paarung mit dem ersten Weibchen erneut Pheromone frei, um weitere Weibchen anzulocken und so ihre Fortpflanzungsrate zu steigern. Es liegt jedoch im Interesse des Weibchens, die elterliche Fürsorge und die Nahrungsversorgung ihrer Nachkommen zu monopolisieren. Daher beißt das Weibchen das Männchen, versucht es von seinem Signalplatz zu stoßen und stört seine weiteren Paarungsversuche, um ihm die Monogamie aufzuzwingen. [ 9 ]
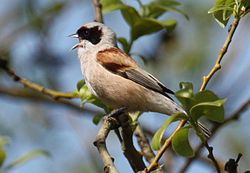
Bei der Beutelmeise (Remiz pendulinus ) baut das Männchen ein aufwendiges Nest, wobei sich das Weibchen in jeder Bauphase beteiligen kann oder auch nicht. Nach der Eiablage übernehmen die Eltern ausschließlich das Brüten und die Jungenaufzucht; allerdings kann jedes Elternteil die Rolle des Betreuers übernehmen. Weibchen kümmern sich in 50–70 % der Fälle um die Jungen, Männchen in 5–20 %. In etwa 30–35 % der Fälle werden die vier bis fünf lebensfähigen Eier dem Tod überlassen, was für beide Elternteile einen erheblichen Verlust bedeutet. Auch für das verlassene Elternteil ist das Verlassen des Nestes mit hohen Kosten verbunden. Daher ist der Zeitpunkt des Verlassens entscheidend. Der optimale Zeitpunkt für die Männchen hängt vom Zustand des Geleges ab, weshalb sie sich während der Eiablage häufig im Nest aufhalten und in dessen Nähe bleiben. Für die Weibchen ist es wichtig, das Nest nicht zu früh zu verlassen, damit das Männchen die Eier nicht ebenfalls verlässt, aber auch nicht zu spät, da das Männchen sonst vor dem Weibchen geht. Die Weibchen passen sich an, indem sie sehr aggressiv gegenüber Männchen sind, die sich dem Nest nähern, und indem sie ein oder mehrere Eier verstecken, damit die Männchen keine vollständigen Informationen über den Zustand des Geleges erhalten. [ 9 ]
Der Bruterfolg der Beutelmeise deutet auf widerstreitende Interessen zwischen Männchen und Weibchen in einer Wildpopulation hin: [ 59 ] Durch das Verlassen des Geleges erhöht jedes Elternteil seinen eigenen Bruterfolg, verringert aber gleichzeitig den des Partners. Dieses Tauziehen um die Brutpflege treibt vermutlich flexible Brutstrategien bei dieser Art an. [ 60 ] Bei der nahe verwandten Kap-Beutelmeise (Anthoscopus minutus) hingegen bebrüten und ziehen beide Elternteile die Jungen auf. Ein Faktor, der die Entscheidung für die Brutpflege beeinflusst, ist die Vaterschaft außerhalb der Paarbeziehung: Bei der Kap-Beutelmeise stammen weniger als 8 % der Jungvögel aus solchen Vaterschaften, während es bei der Beutelmeise über 24 % sind. [ 61 ]
Bei anderen Arten wie dem Guayana-Felsenhahn sowie anderen Balzvogelarten äußert sich der sexuelle Konflikt möglicherweise gar nicht in der Brutpflege. Die Weibchen dieser Arten wählen in der Regel die Männchen zur Paarung aus, lassen sich befruchten und ziehen die Jungen anschließend allein in ihren Nestern auf. [ 62 ] [ 63 ]
Siehe auch
- Verdeckter Eisprung
- Kopulation außerhalb der Paarbeziehung
- Genomische Prägung
- Intragenomischer Konflikt
- Eltern-Kind-Konflikt
- Hypothese der Roten Königin
- Sexueller Konflikt beim Menschen
- Geschlechtsdimorphismus
Anmerkungen
- ^ a b c d e Danchin, Étienne; Giraldeau, Luc-Alain; Cézilly, Frank (2008). „Sexual conflict: causes and consequences“. Behavioural Ecology . Oxford: Oxford University Press . S. 410–413 . ISBN 978-0-19-920629-2Die
- ^ Parker, GA (2006). „Sexueller Konflikt um Paarung und Befruchtung: Ein Überblick“ . Philosophical Transactions of the Royal Society B: Biological Sciences . 361 (1466): 235–59 . doi : 10.1098/rstb.2005.1785 . PMC 1569603. PMID 16612884 .
- Reinhardt , K .; Naylor, R.; Siva-Jothy, MT (2003). „Reduzierung der Kosten traumatischer Besamung: Weibliche Bettwanzen entwickeln ein einzigartiges Organ“ . Proceedings of the Royal Society B: Biological Sciences . 270 (1531): 2371–5 . Bibcode : 2003PBioS.270.2371R . doi : 10.1098 / rspb.2003.2515 . JSTOR 3592164. PMC 1691512. PMID 14667353 .
- ^ Gissis, Snait B.; Lamm, Ehud; Shavit, Ayelet (12.01.2018). Roughgarden, Joan (Hrsg.). Landscapes of Collectivity in the Life Sciences . MIT Press. S. 228. ISBN 978-0-262-34266-7Die
- ^ a b c d Holland, Brett; Rice, William R. (1998). „Perspektive: Sexuelle Selektion durch Abwehrverhalten: Antagonistische Verführung versus Widerstand“. Evolution . 52 ( 1): 1–7 . doi : 10.2307/2410914 . JSTOR 2410914. PMID 28568154 .
- ^ Lankinen, Åsa; Green, Kristina Karlsson (2015-01-01). „Nutzung von Theorien der sexuellen Selektion und des sexuellen Konflikts zur Verbesserung unseres Verständnisses der Pflanzenökologie und -evolution“ . AoB Plants . 7 plv008. doi : 10.1093/aobpla/plv008 . PMC 4344479. PMID 25613227 .
- ^ Chapman, Tracey; Arnqvist, Göran; Bangham, Jenny; Rowe, Locke (2003). „Sexual conflict“ (PDF) . Trends in Ecology & Evolution . 18 (1): 41–47 . doi : 10.1016/S0169-5347(02)00004-6 . Archiviert vom Original (PDF) am 26.07.2021 . Abgerufen am 26.08.2018 .
- Chapman , Tracey ; Liddle, Lindsay F.; Kalb, John M.; Wolfner, Mariana F.; Partridge, Linda (1995). „Die Paarungskosten bei Drosophila melanogaster -Weibchen werden durch Produkte der männlichen akzessorischen Geschlechtsdrüsen vermittelt“. Nature . 373 ( 6511): 241–244 . Bibcode : 1995Natur.373..241C . doi : 10.1038/373241a0 . PMID 7816137. S2CID 4336339 .
- ^ a b c d e f g h i j k l m n Arnqvist, G.; Rowe, L. (2005). Sexueller Konflikt . Princeton: Princeton University Press . ISBN 978-0-691-12217-5Die
- ^ T Lodé „la guerre des sexes chez les animaux“ Eds O Jacob, Paris, 2006, ISBN 2-7381-1901-8
- ^ Preston, BT; Stevenson, IR; Pemberton, JM; Coltman, DW; Wilson, K. (2005). „Die Partnerwahl der Männchen beeinflusst die Promiskuität der Weibchen bei Soay-Schafen“ . Proceedings of the Royal Society B: Biological Sciences . 272 (1561): 365–73 . Bibcode : 2005PBioS.272..365P . doi : 10.1098/rspb.2004.2977 . JSTOR 30047555. PMC 1634988. PMID 15734690 .
- ^ Albo, María J.; Costa, Fernando G. (2010). „Brautgeschenkverhalten und Balzaufwand der Männchen bei der neotropischen Spinne Paratrechalea ornata (Trechaleidae)“. Animal Behaviour . 79 (5): 1031–6 . Bibcode : 2010AnBeh..79.1031A . doi : 10.1016/j.anbehav.2010.01.018 . S2CID 39742664 .
- ^ Ellegren, Hans; Parsch, John (2007). „Die Evolution geschlechtsspezifischer Gene und geschlechtsspezifischer Genexpression“. Nature Reviews Genetics . 8 (9): 689–98 . doi : 10.1038/nrg2167 . PMID 17680007. S2CID 6392616 .
- ^ Partridge, Linda; Hurst, Laurence D. (1998). „Sex and Conflict“. Science . 281 (5385): 2003–8 . Bibcode : 1998Sci...281.2003P . doi : 10.1126/science.281.5385.2003 . PMID 9748155 .
- ^ Hamer, Dean H.; Hu, Stella; Magnuson, Victoria L.; Hu, Nan; Pattatucci, Angela ML (1993). „ Ein Zusammenhang zwischen DNA-Markern auf dem X-Chromosom und der sexuellen Orientierung von Männern“ . Science . 261 (5119): 321–7 . Bibcode : 1993Sci...261..321H . doi : 10.1126/science.8332896 . JSTOR 2881563. PMID 8332896 .
- ^ Camperio Ciani, Andrea; Cermelli, Paolo; Zanzotto, Giovanni (2008). Brooks, Robert (Hrsg.). „Sexuell antagonistische Selektion in der menschlichen männlichen Homosexualität“ . PLUS EINS . 3 (6) e2282. Bibcode : 2008PLoSO...3.2282C . doi : 10.1371/journal.pone.0002282 . PMC 2427196 . PMID 18560521 .

- ^ Khaitovich, Philipp; Hellmann, Ines; Enard, Wolfgang; Nowick, Katja; Leinweber, Marcus; Franz, Henriette; Weiß, Günter; Lachmann, Michael; Pääbo, Svante (2005). „Parallele Evolutionsmuster in den Genomen und Transkriptomen von Menschen und Schimpansen“. Wissenschaft . 309 (5742): 1850– 4. Bibcode : 2005Sci...309.1850K . doi : 10.1126/science.1108296 . PMID 16141373 . S2CID 16674740 .
- ^ Pröschel, Matthias; Zhang, Zhi; Parsch, John (2006). „Weitverbreitete adaptive Evolution von Drosophila-Genen mit geschlechtsspezifischer Expression“ . Genetics . 174 ( 2): 893–900 . Bibcode : 2006Genet.174..893P . doi : 10.1534/genetics.106.058008 . PMC 1602082. PMID 16951084 .
- ^ Innocenti, Paolo; Morrow, Edward H. (2010). Hurst, Laurence D (Hrsg.). „Die sexuell antagonistischen Gene von Drosophila melanogaster“ . PLOS Biology . 8 (3) e1000335. doi : 10.1371/journal.pbio.1000335 . PMC 2838750. PMID 20305719 .
- Ryan , MJ; Wagner Jr, WE (1987). „Asymmetrien in den Paarungspräferenzen zwischen Arten: Weibliche Schwertträger bevorzugen artfremde Männchen“ . Science . 236 ( 4801): 595–7 . Bibcode : 1987Sci...236..595R . doi : 10.1126/science.236.4801.595 . PMID 17740476. S2CID 13641443 .
- ^ Morris, Molly R.; Ryan, Michael J. (1995). „Große Körpergröße beim Zwergschwertträger Xiphophorus pygmaeus“. Biological Journal of the Linnean Society . 54 (4): 383–95 . doi : 10.1111/j.1095-8312.1995.tb01044.x .
- ^ Parker, GA (1970). „Spermienkonkurrenz und ihre evolutionären Folgen bei Insekten“. Biological Reviews . 45 (4): 525–67 . doi : 10.1111/j.1469-185X.1970.tb01176.x . S2CID 85156929 .
- Moreira , P. L.; Birkhead, T. R. (2003). „Kopulationspfropfen bei der Iberischen Felseneidechse verhindern nicht die Befruchtung durch rivalisierende Männchen“ . Functional Ecology . 17 (6): 796–802 . Bibcode : 2003FuEco..17..796M . doi : 10.1111/j.1365-2435.2003.00789.x . JSTOR 3599251 .
- ^ Ramm, Steven A.; Parker, Geoffrey A.; Stockley, Paula (2005). „Spermienkonkurrenz und die Evolution der männlichen Fortpflanzungsanatomie bei Nagetieren“ . Proceedings of the Royal Society B: Biological Sciences . 272 (1566): 949–55 . Bibcode : 2005PBioS.272..949R . doi : 10.1098/rspb.2004.3048 . JSTOR 30047628. PMC 1564092. PMID 16024351 .
- ^ a b c d e f Ravi Ram, K.; Wolfner, MF (2007). „Wesentliche Einflüsse: Drosophila Acps und das molekulare Zusammenspiel zwischen Männchen und Weibchen während der Fortpflanzung“ . Integrative and Comparative Biology . 47 (3): 427–445 . doi : 10.1093/icb/icm046 . PMID 21672851 .
- Bonduriansky , R.; Maklakov, A.; Zajitschek, F.; Brooks, R. (2008). „Sexuelle Selektion, sexueller Konflikt und die Evolution von Alterung und Lebensspanne“. Functional Ecology . 22 (3): 443–53 . Bibcode : 2008FuEco..22..443B . doi : 10.1111/j.1365-2435.2008.01417.x . S2CID 85740401 .
- ^ Durchstechen der Haut des Partners beeinflusst die Spermienaufnahme beim Regenwurm Lumbricus terrestris – Die Koene-Gruppe
- ^ Elgar, M. A.; Crespi, Bernard J. (Hrsg.). (1992). Kannibalismus: Ökologie und Evolution des Kannibalismus bei verschiedenen Taxa . New York: Oxford University Press. ISBN 978-0-19-854650-4Die
- Schneider , Jutta M.; Lubin, Yael (1996). „Infantizide männliche Eresidenspinnen“. Nature . 381 (6584): 655–656 . Bibcode : 1996Natur.381..655S . doi : 10.1038/381655a0 . S2CID 26686932 .
- ^ Emlen, Stephen T.; Demong, Natalie J.; Emlen, Douglas J. (1989). „Experimentelle Induktion von Kindstötung bei weiblichen Lappenblatthühnern“. The Auk . 106 (1): 1–7 . doi : 10.2307/4087750 . JSTOR 4087750 .
- ^ a b c Řezáč, Milan (2009). „Die Spinne Harpactea sadistica : Koevolution von traumatischer Besamung und komplexer weiblicher Genitalmorphologie bei Spinnen“ . Proceedings of the Royal Society B: Biological Sciences . 276 (1668): 2697–701 . doi : 10.1098/rspb.2009.0104 . PMC 2839943. PMID 19403531 .
- ^ Stutt, AD (1999). Reproduktionsstrategien und sexueller Konflikt bei Bettwanzen . England: Universität Sheffield .
- ^ Ryckman, Raymond E.; Ueshima, Norihiro (1964). „Biosystematik des Hesperocimex-Komplexes (Hemiptera: Cimicidae) und seiner Vogelwirte“. Annals of the Entomological Society of America . 57 (5): 624–38 . doi : 10.1093/aesa/57.5.624 .
- Stutt , Alastair D.; Siva-Jothy, Michael T. (2001). „Traumatische Insemination und sexueller Konflikt bei der Bettwanze Cimex lectularius “ . Proceedings of the National Academy of Sciences . 98 (10): 5683–7 . Bibcode : 2001PNAS...98.5683S . doi : 10.1073 / pnas.101440698 . JSTOR 3055687. PMC 33273. PMID 11331783 .
- Reinhardt , Klaus; Naylor, Richard A.; Siva-Jothy, Michael T. (2005). „Potenzielle sexuelle Übertragung von Umweltmikroben bei einem traumatisch befruchtenden Insekt“. Ecological Entomology . 30 (5): 607–11 . Bibcode : 2005EcoEn..30..607R . doi : 10.1111/j.0307-6946.2005.00730.x . S2CID 84344485 .
- Reinhardt , Klaus; Harney, Ewan; Naylor, Richard; Gorb, Stanislav; Siva-Jothy, Michael T. (2011). „ Weibchenbeschränkter Polymorphismus im Begattungsorgan eines traumatisch befruchtenden Insekts“. The American Naturalist . 170 (6): 931–935 . doi : 10.1086/522844 . PMID 18171174. S2CID 21552124 .
- ^ Fowler, Kevin; Partridge, Linda (April 1989). „Die Kosten der Paarung bei weiblichen Fruchtfliegen“. Nature . 338 (6218): 760–761 . Bibcode : 1989Natur.338..760F . doi : 10.1038/338760a0 . ISSN 0028-0836 . S2CID 4283317 .
- Chapman , Tracey; Liddle, Lindsay F.; Kalb, John M.; Wolfner, Mariana F .; Partridge, Linda (Januar 1995) . „Die Paarungskosten bei Drosophila melanogaster-Weibchen werden durch Produkte der männlichen akzessorischen Drüsen vermittelt“. Nature . 373 (6511): 241–244 . Bibcode : 1995Natur.373..241C . doi : 10.1038/373241a0 . ISSN 0028-0836 . PMID 7816137. S2CID 4336339 .
- ^ Wigby, Stuart; Chapman, Tracey (2005). „Sex Peptide Causes Mating Costs in Female Drosophila melanogaster “ . Current Biology . 15 (4): 316–21 . Bibcode : 2005CBio...15..316W . doi : 10.1016 / j.cub.2005.01.051 . PMID 15723791. S2CID 15533396 .
- Findlay , Geoffrey D.; Yi, Xianhua; MacCoss, Michael J.; Swanson, Willie J. (2008). Noor, Mohamed A. F. (Hrsg.). „Proteomics Reveals Novel Drosophila Seminal Fluid Proteins Transferred at Mating“ . PLOS Biology . 6 (7) e178. doi : 10.1371/ journal.pbio.0060178 . PMC 2486302. PMID 18666829 .
- Polak , M.; Wolf, Larry L.; Starmer, William T .; Barker, JSF (2001). „Funktion des Paarungsverschlusses bei Drosophila hibisci Bock“. Behavioral Ecology and Sociobiology . 49 ( 2–3 ): 196–205 . Bibcode : 2001BEcoS..49..196P . doi : 10.1007/s002650000281 . JSTOR 4601875. S2CID 59328 .
- ^ Bretman, Amanda; Lawniczak, Mara KN; Boone, James; Chapman, Tracey (2010). „Ein Paarungsverschlussprotein reduziert die frühe Wiederpaarung von Weibchen bei Drosophila melanogaster “. Journal of Insect Physiology . 56 (1): 107–113 . Bibcode : 2010JInsP..56..107B . doi : 10.1016/j.jinsphys.2009.09.010 . PMID 19800888 .
- Eady , Paul E.; Hamilton, Leticia; Lyons , Ruth E. (2007). „ Kopulation , Genitalschäden und früher Tod bei Callosobruchus maculatus “ . Proceedings of the Royal Society B: Biological Sciences . 274 ( 1607): 247–52 . Bibcode : 2007PBioS.274..247E . doi : 10.1098 / rspb.2006.3710 . JSTOR 25223768. PMC 1685841. PMID 17035168 .
- ^ Koene, Joris M.; Schulenburg, Hinrich (2005). „Shooting darts: Co-evolution and counter-adaptation in hermaphroditic snails“ . BMC Evolutionary Biology . 5 (1) 25. Bibcode : 2005BMCEB...5...25K . doi : 10.1186/1471-2148-5-25 . PMC 1080126. PMID 15799778 .
- Rogers , David; Chase, Ronald (2001). „Dart receipt promotes sperm storage in the garden snail Helix aspersa“. Behavioral Ecology and Sociobiology . 50 (2): 122–127 . Bibcode : 2001BEcoS..50..122R . doi : 10.1007/s002650100345 . JSTOR 4601944. S2CID 813656 .
- ^ Baur, B. (1998). Spermienkonkurrenz bei Weichtieren . Academic Press London.
- ^ Murray, AM; Giller, PS (1990). „Die Lebensgeschichte von Aquarius naja De Geer (Hemiptera: Gerridae) in Südirland“. The Entomologist . 109 : 53–64 .
- ^ Arnqvist, Göran (1992). „Kämpfe vor der Paarung bei einem Wasserläufer: Intersexueller Konflikt oder Partnerwahl?“. Animal Behaviour . 43 (4): 559–67 . Bibcode : 1992AnBeh..43..559A . doi : 10.1016/S0003-3472(05)81016-4 . S2CID 53173218 .
- ^ Han, Chang S.; Jablonski, Piotr G. (2010). „Männliche Wasserläufer locken Fressfeinde an, um Weibchen zur Paarung zu zwingen“ . Nature Communications . 1 (5): 1–6 . Bibcode : 2010NatCo...1...52H . doi : 10.1038/ncomms1051 . PMC 2964456. PMID 20975717 .
- ^ Arnqvist, Göran; Arnqvist, Goran (1989). „Sexuelle Selektion bei einem Wasserläufer: Funktion, Selektionsmechanismus und Vererbbarkeit eines männlichen Greifapparates“. Oikos . 56 (3): 344–50 . Bibcode : 1989Oikos..56..344A . doi : 10.2307/3565619 . JSTOR 3565619 .
- ^ Aiken, Ronald B. (1992). „Das Paarungsverhalten eines borealen Wasserkäfers, Dytiscus alaskanus (Coleoptera Dytiscidae)“. Ethology Ecology & Evolution . 4 (3): 245–54 . Bibcode : 1992EtEcE...4..245A . doi : 10.1080/08927014.1992.9523136 .
- Blanckenhorn , W. U.; Mühlhäuser, C.; Morf, C.; Reusch, T.; Reuter, M. (2000). „Weibliche Partnerwahl, Paarungsunwilligkeit und sexuelle Selektion der Körpergröße bei der Dungfliege Sepsis cynipsea“. Ethology . 106 (7): 577–593 . Bibcode : 2000Ethol.106..577B . doi : 10.1046/j.1439-0310.2000.00573.x .
- ^ Yong-Hong Xiao (2015), „Männliche Anpassungen zur Minimierung von sexuellem Kannibalismus während der Fortpflanzung bei der Trichternetzspinne Hololena curta “, Insect Science , 22 (6): 840–852 , Bibcode : 2015InsSc..22..840X , doi : 10.1111/1744-7917.12243 , PMID 26033974 , S2CID 1840656
- ^ Das, Megha; Yadav, Sanjeev Kumar (2020). „Paarung“. Enzyklopädie der Tierkognition und des Verhaltens . Cham: Springer International Publishing. S. 1–14 . doi : 10.1007/978-3-319-47829-6_307-1 . ISBN 978-3-319-47829-6S2CID 243660336 .
- ^ a b Schulz, Stefan; Estrada, Catalina; Yildizhan, Selma; Boppré, Michael; Gilbert, Lawrence E. (2008-01-01). „Ein Antiaphrodisiakum bei Heliconius melpomene Schmetterlingen“. Journal of Chemical Ecology . 34 (1): 82–93 . Bibcode : 2008JCEco..34...82S . doi : 10.1007/s10886-007-9393-z . ISSN 0098-0331 . PMID 18080165. S2CID 22090974 .
- ^ Tregenza, Tom; Wedell, Nina (1998). „Vorteile mehrerer Partner bei der Grille Gryllus bimaculatus “ . Evolution . 52 (6): 1726–30 . doi : 10.2307/2411345 . JSTOR 2411345. PMID 28565303 .
- ^ Sakaluk, Scott K. (1991). „Postkopulatorische Partnerbewachung bei geschmückten Grillen“. Animal Behaviour . 41 (2): 207–16 . Bibcode : 1991AnBeh..41..207S . doi : 10.1016/S0003-3472(05)80472-5 . S2CID 4494879 .
- ^ Albo, M.; Bilde, T.; Uhl, G. (2013). „Spermienspeicherung durch kryptische weibliche Partnerwahl für Brautgeschenke“ . Proceedings of the Royal Society B: Biological Sciences . 280 (1772) 20131735. doi : 10.1098/rspb.2013.1735 . PMC 3813325. PMID 24266042 .
- ^ Szentirmai et al. (2007). „Sexueller Konflikt um die Brutpflege: Antagonistische Auswirkungen des Verlassens des Geleges auf den Fortpflanzungserfolg männlicher und weiblicher Beutelmeisen“ ( PDF) . Journal of Evolutionary Biology . 20 (5): 1739–1744 . Bibcode : 2007JEBio..20.1739S . doi : 10.1111/j.1420-9101.2007.01392.x . hdl : 11370/d8bdefd4-ae1d-4005- bacd -3dae322b9de1 . PMID 17714291. S2CID 7829502 .
- ^ van Dijk, Szekely (2008). „Reproduktionsstrategien nach der Befruchtung“. Encyclopedia of Life Sciences . Archiviert vom Original am 13.05.2011 . Abgerufen am 18.03.2018 .
- ^ Ball et al. (2016). „Der Anteil außerehelicher Vaterschaft korreliert mit der elterlichen Fürsorge bei Beutelmeisen (Remizidae)“ . Ibis . 159 (2): 449–455 . doi : 10.1111/ibi.12446 . hdl : 10831/67389 .
- ^ Burton, Maurice; Burton, Robert (2002). International Wildlife Encyclopedia . Marshall Cavendish. S. 490. ISBN 978-0-7614-7270-4Die
- ^ Ridgely, Robert S.; Tudor, Guy (1994). Die Vögel Südamerikas: Die Suboscine-Sperlingsvögel . University of Texas Press . S. 778–779 . ISBN 978-0-19-857218-3Die
Referenzen
- Thierry Lodé , (2006) La guerre des sexes chez les animaux . (Der Krieg der Geschlechter im Tierreich) Odile Jacob Eds, Paris ISBN 2-7381-1901-8
- Sonderausgabe der Philosophical Transactions B zum Thema „Sexual Conflict“, frei verfügbar , Band 367, Heft 1600, 19. August 2012.
- Dawkins, R. 1989. „Der Kampf der Geschlechter“, S. 140–165 in: Das egoistische Gen. Oxford: Oxford University Press.